ここの postfusion 二層にこれらの膜タンパク質の洗剤無料配信するためターゲット脂質膜融合ペプチド プロテオリポソームに膜タンパク質の再構成とそのようなプロテオリポソームの融合の 2 つの超高速プロトコルを提案する.これらのアプローチの組み合わせにより、複雑な多成分の膜システムの高速かつ容易に制御アセンブリです。
この記事について
サマリー
要約
複雑なより大きなモデル脂質二重膜は洗剤とは互換性が低く、洗剤は 30-100 nm 小型単層小胞に膜タンパク質の配信に不可欠なです。
ここで逆の電荷を興味の膜蛋白質を軸受リポソーム膜融合を使用してこの基本的な制限をバイパスするための戦略について述べる。低いイオン強さバッファーで 5 分以内にそのような小胞の融合が発生します。正荷電の膜融合リポソームは、負に帯電するバイオミメティック ターゲット脂質に膜タンパク質の洗剤無料配信するため簡単なシャトル ベクトルとして使用できます。また高速 30 分プロトコルと膜融合プロテオリポソームに膜蛋白質を再構成する方法を示します。
これらの 2 つのアプローチを組み合わせて、エシェリヒア属大腸菌からの 2 つの膜タンパク質の電子輸送鎖の高速組立を示す、主なプロトン ポンプ ボー3-オキシダーゼと F1Fo ATP 合成酵素、膜0.1 からまで、様々 な規模の小胞 > このチェーンによって ATP の生産と同様、10 ミクロン。
概要
人工脂質膜タンパク質の機能化、膜モデル システムのアセンブリの重要なステップです。(30-200 nm の直径) 成っている最も簡単なモデル (PL) プロテオリポソーム ベシクル (また呼ばれるリポソーム SUV)、蛋白質の膜に統合します。PL が伝統的に形成される 2 つのステップ1。まず、前もって形成された SUV の関心とその臨界ミセル濃度 (CMC) 上記濃度の洗剤膜蛋白質と混在しています。第二に、様々 な透析、「バイオ ビーズ」やゲルろ過技術、膜タンパク質を残してと洗剤が削除されます。後者のアプローチは多く高速 (~ 30 分1) はそのため壊れやすく、敏感な膜タンパク質の再構成のために望ましい洗剤除去速度を多くの時間を受け取り、原因によって最初の 2 つのアプローチが限定的に、活動と蛋白質の構造の整合性の損失のかなりの損失。大きいの小胞 (ベシクル、マブラヴ、1 μ m の直径まで) このアプローチは難しく、小胞として縮小を取得します洗剤除去後、巨大リポソームは不可能 (GUV、> 1 μ m)、彼らは、洗剤 (しかし見なさいジョンソンらの不安定2遅い 2次元結晶膜タンパク質大規模な膜のため)。GUV 膜機能化3,4、5の代替的なアプローチは存在するが骨の折れる、時間がかかりをおよび CMC 以下の低濃度でいくつかの洗剤をまだ必要とします。複雑なまたは壊れやすい脂質モデル (たとえば、液滴ハイドロゲル膜6および 3 D 印刷可能な液滴インターフェイス層人工組織7) は、洗剤を容認できません。すぐに浮上して合成生物学アプリケーション8,9,10は、批判的にそのような複雑な膜構造物の高機能化に依存します。したがって、ターゲットの壊れやすい膜に膜タンパク質の迅速かつ穏やかな配信を許可する簡単かつ堅牢な方法高度分野で求められています。
代わりに、タンパク質の洗剤無料配信方法は小胞の融合、相互作用する小胞膜がそのまま postfusion 二層に団結しつつ小水溶液内容を得る複雑な外部に放出されることがなくどこ環境。小胞の融合が有効な連絡にある相補的な融合性エージェント (いくつかの蛋白質11,12とペプチド13または特別に変更された DNA14) 内にある構造再編成のいずれかを駆動膜、または脂質二重層間のクーロン相互作用はカチオンとアニオン性の相補的荷電脂質15,16、またはカチオン脂質と蛋白質の負荷電の17の形成。
元のアプローチは、核融合の前に相互作用する膜の膜融合エージェントの存在は比較的遅い (~ 30 分フュージョン12,18の最大値の半分に到達する) が自然と人工の両方に適用することができます必要があります。膜。
脂質膜融合 (図 1) を使用してのアプローチの利点は、多くの高速の膜融合 (〜 1 分半-最大、および反応を完了する 5-10 分に到達する) できます。さらに、核融合の範囲は i) は容易に荷電脂質膜融合膜と ii) イオンと反応媒体 (50 mM と、例えば、ショ糖15上で塩の浸透、一般的な強度の相対的なコンテンツによって制御できます。とおり融合を停止する)、または両方の組み合わせ。融合を開始するには、(通常 10 〜 20 ミリメートル塩) 低イオン強度が 5-10 分の中帯電融合性小胞を混在しています。メソッドの相対的な不利な点はカチオン性脂質を及ぼす融合、特に低いイオン強さ、前にカチオン プロテオリポソームの膜蛋白質の機能に悪影響を及ぼすが、この効果は、可逆的、自然によって軽減されます。融合後の膜とイオン強度媒体へのリターンの脂質組成物。
プロトコル
1. 膜融合の準備の SUV とマブラヴ
-
融合ペプチド脂質混合物の調製
- 25-50 mg/mL のクロロホルムで中立的な蛍光アニオン性、カチオン性脂質の貯蔵液の準備 (たとえば、中立ダイレクトオン (1,2-dioleoyl-sn-glycero-3-phosphocholine)、カチオン エチル-PC (1, 2-dimyristoleoyl-sn-グリセロホスファチジン-3-ethylphosphocholine)、アニオン ポパ山 (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphate) と、蛍光コレステリル-Bodipy-FL12、それぞれ)、乾燥脂質の適切な量を計量し、100% 溶解クロロホルム (注意!これを行うヒューム フードの下で)、または市販のクロロホルム クロロホルムと脂質の株式を希釈します。
注: 両方自然な脂質を抽出し、純粋な合成脂質使用ことができ、同様の結果を示します。 - ミックス 2.5 mg、カチオンとクロロホルム在庫 (1.1.1) ガラス瓶の中性脂質 2.5 mg。
注: この手順は、クロロホルム、カチオン性脂質の重量分率を 50% を含むカチオン性脂質混合物の 5 mg を得られます。必要な場合は、混合物に蛍光脂質の重量分率を 0.5% を追加します。 - 陰イオンと中性脂質はガラス瓶でクロロホルム株 (1.1.1) 4 mg 1 mg を混ぜます。これは、アニオン性の脂質混合アニオン性脂質の 20% の重量割合の 5 mg を与えます。
- 乾燥脂質の薄い層を形成する窒素の流れの下でクロロホルムを蒸発させます。
- 10 分間の真空下で残留のクロロホルムを削除します。
注: この手順が多く長く (1-12 h) を実行する伝統的が長く治療な結合特性 SUV で明白な改善はないことがわかった。 - 各バイアルに 0.5 mLバッファー A (100 mM KCl、1 mM MgCl2、50 mM モップ、pH 7.4) を追加すると、脂質膜がガラス表面と b から完全に切り離されてまで 30 分、次に渦の室温に立つように残して乾燥脂質膜を水和物します。ecomes 均質な脂質懸濁液。これほどかかります 20-40 秒。
- 25-50 mg/mL のクロロホルムで中立的な蛍光アニオン性、カチオン性脂質の貯蔵液の準備 (たとえば、中立ダイレクトオン (1,2-dioleoyl-sn-glycero-3-phosphocholine)、カチオン エチル-PC (1, 2-dimyristoleoyl-sn-グリセロホスファチジン-3-ethylphosphocholine)、アニオン ポパ山 (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphate) と、蛍光コレステリル-Bodipy-FL12、それぞれ)、乾燥脂質の適切な量を計量し、100% 溶解クロロホルム (注意!これを行うヒューム フードの下で)、または市販のクロロホルム クロロホルムと脂質の株式を希釈します。
-
押出形成 SUV とマブラヴ
- 押出成形システムを構築 (材料表参照) 次のポリカーボネート フィルターを用いて 1 mL 注射器 2 本孔サイズ: フォーム SUV、100 または 200 nm とマブラヴのフォームに 400 または 800 nm。
- 脂質懸濁液を注射器に転送します。
- 渡すことによってフィルターを 21 倍、18,19を他の所で示すように、懸濁液を押し出します。
注: 通路の数が奇数は、元脂質懸濁液に直面しているフィルター側に付く大きな脂質塊の小胞のソリューションに転送を最小限に抑えるために必要です。 - 1.5 mL 遠心チューブに小胞ソリューションを転送します。
2. 融合性逆エマルジョン法による GUV の形成
注: この手順は図 2に示されています。
-
脂質の油溶液の調製
- クロロホルム株式をミックス (1.1.1 手順参照) の中性脂質 (2 mg) と 1.5 mL 遠心チューブにヘキサデカンの 1 ml のアニオン性脂質 (0.5 mg)。
- [一定の混合と管が開いたまま 30 分 80 ° C で加熱混合物からクロロホルムを蒸発させます。チューブを閉じ、室温に涼しい許可しなさい。
-
脂質-で-油/水性バッファー インターフェイス脂質単分子膜の形成
- 0.5 mLバッファー B 1.5 mL 遠心管 (20 mM KCl、0.1 mM MgCl2、10 mM モップ pH 7.4) の上に油の脂質ソリューションの場所 200 μ L。油と (図 2 a) 緩衝水溶液の表面張力不一致による相分離境界線の凸形状に注意してください。
- 相分離境界線を平坦化、脂質単分子膜形成の指標であるまで待機します。これは通常室温で 30-60 分をかかります。
-
水-油エマルションの調製
- バッファー B、密度が水の密度よりも高い水溶性の非イオン性多糖類の溶液を準備 (例えば15% Ficoll 400 (w/v) を密度 1.05 g/mL)
注: 必要に応じて、1 つに追加できます蛍光水溶性色素、旦那のより良い視覚化のためのバッファーと、膜の他の目的水溶液内容。 - 2.1.2 から脂質の油溶液の 100 μ L で別 1.5 mL 遠心チューブに液 0.5 μ L を転送します。
- 30 の混合物 (14 W で 44 kHz) を超音波超音波水浴の s。その後、各液滴を脂質単分子膜 (図 2 b) コーティングされます水-油エマルションを形成する 45 分間渦精力的に。
- バッファー B、密度が水の密度よりも高い水溶性の非イオン性多糖類の溶液を準備 (例えば15% Ficoll 400 (w/v) を密度 1.05 g/mL)
-
水-油エマルションの旦那への変換
- 脂質-で-油/水性インターフェイス上に結果エマルジョンを置き、すぐに 10,000 x g で 2 分間のテーブル トップ遠心チューブを遠心します。旦那の結果ペレットは明確に表示されます (図 2) をする必要があります。
- 冷却油の脂質混合物を固めるために冷蔵庫で 4 ° c 管 (図 2 D、ヘキサデカン凝固 18 ° C 以下)、慎重に冷凍の油分し、し、水性相を撤回します。
注: 石油を容易にするには、ワイヤーはアンカーの形に曲がって削除凍結が使用されました。 - 新鮮なバッファー B、新鮮なチューブへの転送の 50 μ L で GUV ペレットを再懸濁します、100 × 油浸対物 (図 2 e) を使用して蛍光顕微鏡下で検査します。
3. コバルト カルセインを用いた小胞の融合
-
ゲルろ過重力列の準備。
- 100 mL の脱イオン水にゲル濾過の樹脂 (例えば極細セファデックス G-50) ~ 10 g を浸漬し、うねりの一晩を聞かせてください。
- 使い捨てプラスチック重力流列に樹脂の 3 mL のパックや、超純水で洗浄バッファー C (100 mM KCl、10 mM モップ、pH 7.4) 室温で平衡します。
-
SUV+または SUV0の準備は、コバルト カルセインを搭載しました。
- カルセイン 1 mM、1 mM CoCl2, 98 mM の NaCl、10 mM モップを含む溶液を調製し、pH を 7.4 にもたらします。
メモ: メソッドの本質は、その無料蛍光カルセインと Co2 +非蛍光性の複合体を形成します。それが持つ EDTA の添加によって再び蛍光になる高い親和性 Co2 +、コバルト カルセイン コンプレックス (図 3 a) からカルセインを転置します。 - 1.1 で説明されている陽イオン性または中性脂質のドライ フィルムにこのソリューションの 500 μ L を追加します。
- 準備 100 nm SUV 押出し 1.2 で説明されているようで。
- 卓上型超遠心機で 20 分間 1,000,000 x g で押し出しの SUV をペレットし、1 mL のバッファー Cで再懸濁します。巻き上がり・ ペレット化を繰り返して、3 回;最後の再懸濁の 0.6 mL のバッファー C を使用します。
注: これらの手順は、外部のコバルト カルセインのほとんどを削除します。 - 3.1.2 のステップのとおりバッファー C と平衡ゲル濾過樹脂搭載使い捨て重力流列を SUV を通過して残りの外部コバルト カルセインを削除します。
注: 我々 は通常フローからの最初のミリリットル ボリュームを破棄し、外部コバルト カルセイン無料 SUV を含む 2 番目のミリリットルを収集します。
- カルセイン 1 mM、1 mM CoCl2, 98 mM の NaCl、10 mM モップを含む溶液を調製し、pH を 7.4 にもたらします。
-
EDTA 搭載 SUV-の準備
- 10 ミリメートルの EDTA、80 mM の NaCl、10 mM モップ、pH 7.4 のソリューションを準備します。
- 1.1 で説明されている陰イオンの脂質のドライ フィルムにこのソリューションの 500 μ L を追加します。
- 押出し 1.2 に従って SUV-を準備します。
- ペレットし、前述の 3.2.4 で SUV-を再懸濁します。
- 3.2.5 で説明するようゲルろ過カラムを SUV-を渡すことによって残りの EDTA を削除します。
-
SUV の融合に向けてください。
- SUV0、+の SUV と-の SUV とバッファー D (1 mM モップ、pH 7.4) 0.2 ミリメートル CoCl2と KCl 使用 5 μ L バッファー + の 1 mL あたりの SUV の種類ごとの必要な濃度と補われるを希釈します。
- 少なくとも 1 h の混合物を孵化させなさい。
注: この手順は、+の SUV に表面バインドされたカルセインをブロックすることによってバック グラウンド蛍光レベルを最小限になります。
-
小胞の融合
- 2 mL 蛍光キュベットと 480 nm 励起と 510 nm の発光を用いたカルセインの蛍光を増加モニター SUV− (D 前述のバッファーで希釈) 1 ml SUV+または SUV0の 1 mL を混合することによって核融合反応を開始します。(図 3 b)。
- 反応が完了するまで待機します。
- 洗剤のトリトン X-100 と EDTA の混合物を追加 (最終濃度が 0.05% と 7 mM のそれぞれ) 小胞からカルセインを解放し、最大蛍光信号を取得します。
- 融合を図 3に示すように、次の洗剤を追加最大蛍光信号の割合として定義の範囲を決定します。
4 膜融合プロテオリポソームに膜タンパク質の高速再構成
注: この手順は、図 4 aに示します。
- ゲル濾過樹脂、3.1 で述べたように重力流列を準備し、バッファー A 室温で平衡します。
注: タンパク質活性の損失を最小限に抑えるため、指示がない限り、すべてのそれ以上の操作は≤ 4 ° C で厳密に行う必要があります。 - 蛋白質の隔離に使用する同じ抽出バッファーで希釈して 0.7 mg/mL に精製された膜タンパク質の濃度を調整します。
- 前もって形成された SUV、160 μ L バッファー、バッファー A に, コール酸 10% の 60 μ L 300 μ L 蛋白質のミックス 140 μ Lこれは 1:30 を与える蛋白質: 660 μ L の大詰めで脂質の重量比。
- 軽く 15 分ロッキング プラットフォームの混合物を振る。
注: 次の手順は、室温で行うことができます。 - ゲルろ過樹脂を通して混合物を渡すプロテオリポソーム濁った分画を収集しています。
- 15 分 400,000 × g で卓上型超遠心機とプロテオリポソームをペレットします。
- 再構成された非蛋白質を含んでいる上澄みを廃棄し、新鮮なバッファー A. の 1 mL にペレットを再懸濁します
- PL とアミド ブラック法20を使用して上清タンパク質含有量を決定します。
- 通常は 50-70% の再構成、収量を決定します。
注: 手順 4.6 4.8 は、1 mL の Ni NTA 樹脂使い捨て重力列にパックし、バッファー A で洗浄した 3.1.2 で説明されているようで、PL ソリューションを渡すことによって必要に応じて置き換え可能性があります。このような通過非再構成のタンパク質は、最もは流れであるが、PL から樹脂に優先的にバインドされますが挿入されます。
5 プロテオリポソームの蛋白質の活動の機能テスト
注: 本研究で使用される両方の蛋白質は、強力なプロトン ポンプは、ポンプの基質の添加によってプロテオリポソームに H+ (コエンザイム Q1ボー3-酸化酵素と ATP F1Foのそれぞれ)、従って建物膜 (ΔpH) の間でプロトンの勾配。融合による成功共同再構成の場合そのような酸性化、pH に敏感なプローブ ACMA (9-Amino-6-Chloro-2-Methoxyacridine)12,15、このようなタスク (のために日常的に使用される蛍光性の減少として観察できます。図 4BC)。さらに基質特異的蛋白質の活動 (bo3コエンザイム Q1酸化-オキシダーゼ22と F1Fo23,24による ATP 加水分解) 監視することができます光光度法によるさまざまなメソッドを使用します。ここでは、F1Fo二法 (図 4) を再生成する分子の ATP を使用して PL の ATP 加水分解活性を示す酵素 (ピルビン酸キナーゼ (PK) と乳酸脱水素酵素 (LDH) 維持 ATP 濃度が一定以下のようにします。PK では、ADP プロデュース F1Foその基板ホスホエノールピルビン酸 (PEP) を犠牲にして ATP に変換することによって ATP がリサイクルされます。340 の光学濃度が小さくなるよう、酸化を監視できる NADH を犠牲にして LDH によってこの反応の産物であるピルビン酸は乳酸に変換されます nm。
-
化学薬品の準備
- 1 mM のエタノールの ACMA 在庫を準備します。
- エタノールで nigericin の 1 mM の在庫 (または他のランプ) を準備します。
- エタノール、25 mM はコエンザイム Q1在庫およびバッファー A. の 1 M DTT 在庫を準備します。
- 100 mM ATP バッファー A の在庫を準備し、その pH 7.4 に調整します。
- A: 100 mM PEP バッファー、1 mM NADH および 500 〜 1,000 の濃度で PK と LDH のソリューションでのシステム コンポーネントを再生成する ATP の在庫の準備ユニット/mL。
-
コエンザイム Q1酸化駆動プロトン ボー3ポンプ-オキシダーゼ PL
- 0.5 μ M、ACMA の存在で 2 mL バッファー A 蛍光キュベットに PL の 20 μ L を追加し、430 nm 励起と 515 nm の発光を使用して安定した信号を待ちます。
- キュベットに 40 μ M コエンザイム Q1を追加します。
- プロトン ポンプ (図 4 b) の PL に 2 mM DTT を追加することによって開始します。
注: DTT 酸化型コエンザイム Q1を減らすし、ボー3にできるようになります-酸化酵素。 - 2 μ M ランプ (たとえば nigericin) を追加することによって形成された ΔpH を散らします。ACMA 蛍光信号はほぼ元のレベルにすぐに返す必要があります。
注: 必要がありますない ACMA は基質の添加によって焼入、ランプが最初反応混合物の存在する場合。
-
ATP 加水分解駆動プロトンが F1FoPL でポンプ
- 蛍光キュベット 5.2 で説明されているように、PL の 40 μ L を追加します。
- プロトン ポンプ 0.2 mM ATP を PL (図 4) に追加することによって開始します。
- 5.2.4 で説明したように、ΔpH を消費します。
-
F1FoPL と、ランプによる促進による ATP 加水分解
- 2 mL バッファー A、含んでいる 1 mM ATP 0.2 mM NADH, 2 mM PEP と分光光度計のキュベットに PL の 40 μ L と 15 μ L 各 PK と LDH の追加します。
- 340 NADH の吸光度の減少を測定することによって反応に従う nm。3 〜 4 分は後で、ATP 加水分解に対する ΔpH の背圧を解放するためのキュベットに 2 μ M ランプを追加します。反応速度はすぐに増やす必要があります。
メモ: Ni NTA 樹脂 4.10 に従って通過 PL ランプ (図 4、赤いトレース) による最強の刺激デモンストレーションを溶出液はほとんど刺激 (ブルー トレース) になります。
6. 膜融合プロテオリポソームの膜タンパク質の機能に及ぼす脂質環境およびイオン強度の影響をテストします。
- 40 μ L のプロトン ポンプを評価+の PL、PL- 、2 mL の ACMA 焼入法と PL0のバッファー 1 mM MgCl2と 20 (図 5、パネル A) 100 mM KCl (パネル B) 5.2 または 5.3 (図 5で説明したように補われる D、赤、黒、青のトレース)。
- PL+の 40 μ L を 2 mL のバッファー D 20 mM KCl、ACMA 焼入 (緑トレース) のテストと補完でマブラヴ-の同じボリュームに融合します。
- PL と同じ料金 (グレー トレース) の SUV を混合して、ステップ 2 のように制御実験を実行します。
注: は、postfusion の PL によって改善されるべきプロトン ポンプ
7. マブラヴと膜融合プロテオリポソームで旦那に膜タンパク質の配信
- 800 の 50 μ L で PL+の 50 μ L をヒューズ 1 mL のバッファー 1 mM MgCl2と 5 分の 20 mM KCl を添加した D でマブラヴ- nm。
- 5 分間 6,000 x g で小胞ペレット、上澄み含む未反応 PL+を破棄します。1 mL のバッファー 1 mM MgCl2と 100 ミリメートル、KCl を添加した D でペレットを再懸濁し、ペレット化と再 2 回以上繰り返します。
- 5.2 または 5.4 で説明したように、アッセイを焼入れ ACMA を実行します。
- 高い塩 (KCl 200 mM) の相補的な荷電ベシクルの組み合わせ、非融合性小胞と+の PL なしだけで空マブラヴ-を使用しての手順 1-3 のように、制御の実験を実行します。
注: は、相補的荷電ベシクルは図 6に示すように、使用された場合にのみ検出する postfusion LUV のプロトン ポンプ必要があります。
8. 電子輸送鎖膜のマブラヴと旦那、このチェーンによって ATP の生産で個々 のコンポーネントからのアセンブリ。
注: この手順の概略は、図 7Aの示されています。この実験で生成される ATP は、ルシフェラーゼによって合成された ATP のピロリン酸とアンプへの変換が続く、ルミノに登録されている発光ルシフェリン-ルシフェラーゼ システムによって登録されます。重要度の低いマイクロ プレート luminometers の代わりに単管ルミノを使用をお勧めします。
- ボー3のミックス 3 μ L-オキシダーゼ PL+と+ F1Fo PL の 5 μ L 形成セクション 4 で説明されているようです。
- バッファー 20 mM KCl と 5 分の 1 ミリメートル MgCl2と補われる D の 800 μ L のヒューズにマブラヴの GUV- 3 μ L (セクション 2 の説明に従って形成される)。
- 高濃度株式を使って postfusion 膜への 100 mM と 50 mM の最終濃度に KCl とモップを追加します。
注: 後融合マブラヴの場合この手順が腫れを防ぐため、外部 (バッファー A) 間の浸透圧のオフセットが原因と小 (バッファー D) 塩の濃度。- 必要に応じて、前述の未反応 SUV+を分離する 7.2 postfusion 膜をペレットし、バッファー a. の 800 μ L でペレットを再懸濁します
- ルシフェリン-ルシフェラーゼ-ADP のカクテル含む 400 μ M ADP、50 μ M ルシフェリン、バッファー A の 2.5 μ g ルシフェラーゼの 200 μ L を準備します。
- カクテルを Step8.3 から postfusion の混合物に追加します。
- 40 μ M の酸化コエンザイム Q1を加えて、ボー3による postfusion 膜の通電をトリガー-2 mM DTT を追加することによって酸化酵素。1 分待ちます。
- 通電小胞に 5 mM リン酸カリウム (KP は私、pH 7.4) を追加することで ATP 合成を開始し、ルミノ (図 7 b) と ATP の生産を検出します。〜 3 分間反応を実行します。
注: ATP 合成反応は、ボー3によって消費される酸素の枯渇まで 5-7 分の収入-オキシダーゼとルシフェラーゼ。 - 反応混合物に ATP 基準 (0.5 nmol ATP) を 2 回追加します。メジャー ATP が生成されます。
- 実際 ATP 参照標準信号による ATP 合成反応から信号を割って反応で生じた ATP の量を取得します。F1Fo反作用で使用されるの合計金額にこの値を調整し、最後に µmol ATP で ATP 合成の反応速度を表現/(mg F1Fo* 分)。
結果
融合性の相補的な充電プロテオリポソーム ターゲット二分子膜に膜タンパク質の高速洗剤無料配信するために 3 つの手順 (図 1) が含まれています: A、高脂質の混合物から SUV 融合性の形成荷電脂質の内容これらの SUV は必要に応じて、小負荷を運ぶことができます。B、膜融合 SUV の私たちの高速膜タンパク質再構成; を使用して PL への変換C減塩中ターゲット膜の膜融合 PL の融合は核融合反応を停止する高い塩の追加に続きます。膜タンパク質の活性の良い脂質環境を提供する陰イオンのターゲット層に膜タンパク質を提供する大きい小胞 (D) の場合望ましい戦略ことです (詳細についてはテキストで)。
逆エマルジョンを用いた GUV 形成プロトコルは、図2 でハイライトされます。比較的高いため脂質-油混合物のヘキサデカンを使うことが望ましい (18 ° C) の凍結温度をペレット化 GUV 後固化した油を簡単に除去できます。
コバルト カルセイン EDTA を用いた小胞の融合を図 3に示します。融合は相補的な荷電ベシクルは中より高い塩濃度の低い塩バッファーで使用時のみ見られている (> 50 mM14) または非融合性の小胞の融合を示さない。
図 4 aに SUV の融合性に膜タンパク質の再構成のこの高速のプロトコルを示します。このプロトコルを用いて、高速を示す一次陽子の溶解ポンプ ボー3-オキシダーゼと F1Fo ATP シンターゼの PL とこれらの膜の特定活動の評価に。タンパク質再構成の収量が使用脂質15の料金に依存しない、約 50-75% であることを言及することが重要です25,12、および PL に再構成した後タンパク質を少なくとも 3 つ格納することができます日、蛋白質の活動の明白な損失することがなく室温でも。この手順は、ATP 合成酵素、それの 95% 以上がその親水性を有する F1指向外側15,26の一方向の方向を提供します。
図 5では、プロトン ポンプ F1Fo (パネル) の活動と洪明甫3-オキシダーゼ (パネル B) カチオン性脂質は減少、陰イオンおよび中性脂質環境と比較して、低イオン強度に敏感が、この効果は、アニオン マブラヴ-と+の PL を融合した postfusion 膜で軽減されます。
図 6は、大規模な小胞の膜に F1Fo ATP 合成酵素の配信を示しています。この実験、+の PL と 800 nm マブラヴ-は、5 分間 20 mM KCl と反応生成物の融合したペレット融着 PL+を削除する、再停止され、プロトン ポンプの。プロトン ポンプ マブラヴ0マブラヴ-の核融合反応 (黒い跡) で使用されていたまたは空マブラヴ-だけで試金 (青のトレース) と制御実験を示さなかった。
膜融合 PL による大規模な小胞の膜の機能電子輸送チェーンの高速組立を図 7に示します。F1Fo SUV+を使いました、ボー3 SUV+ 800 との融合の nm マブラヴ-、順番にコエンザイム Q1と活性化する DTT を追加することによって postfusion の小胞でこのチェーンによって ATP の生産を示したと膜と F1Foで ATP 合成をトリガーするリン酸塩を追加します。
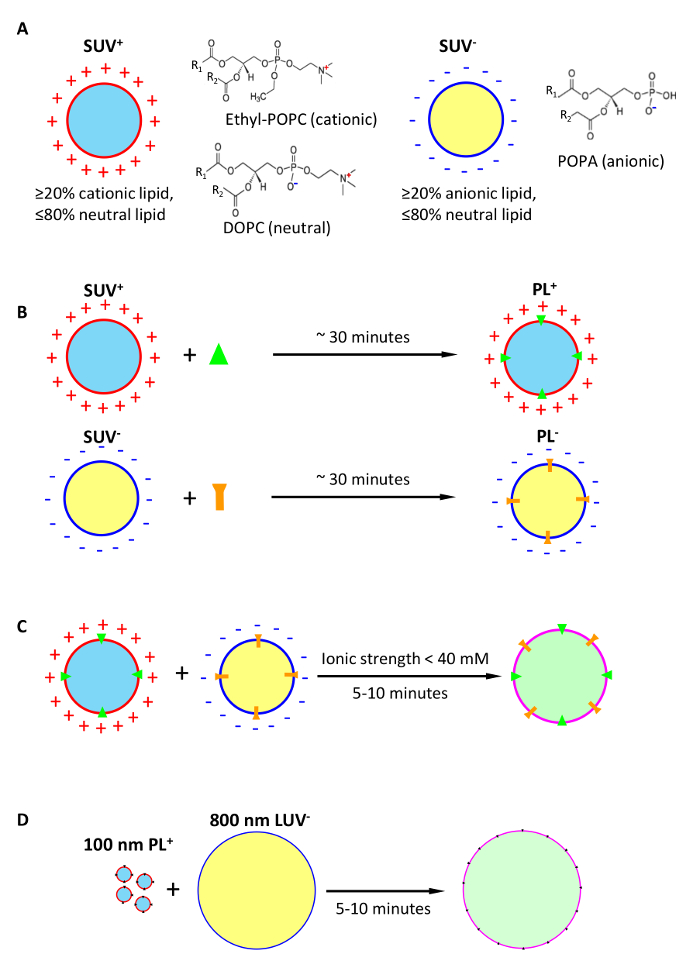
図 1: 超高速洗剤無料配信膜のベシクルの核融合による脂質二重層をターゲットの概念形成相補的な荷電脂質。陽イオンと陰イオンの膜融合小さなベシクル (SUV+、SUV-) オプションで小貨物搭載の形成は (A)。膜タンパク質の再構成によって膜融合プロテオリポソーム (PL) に SUV 融合性の (B) に変換されます。(C) 洗剤無料 100 nm PL+の融合によって示されている大きい小胞の膜に膜タンパク質の配信の融合性プラ (D) 望ましい戦略と postfusion 膜に膜タンパク質の配信800 nm マブラヴ-。この図の拡大版を表示するのにはここをクリックしてください。
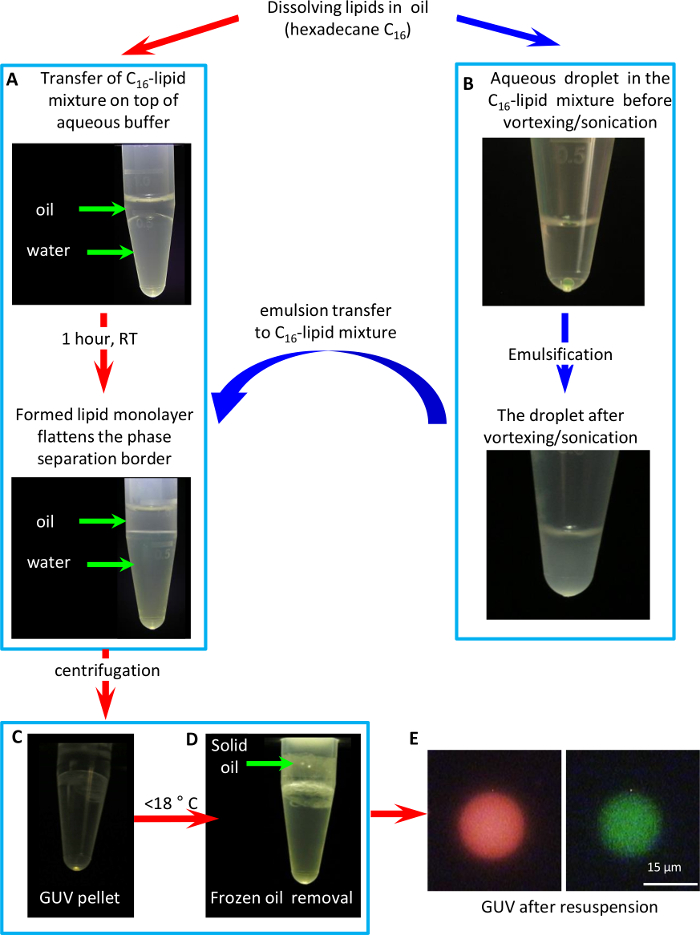
図 2: 逆エマルジョン法による GUV 形成プロトコル。(A) 油脂質混合物と水との間の国境に脂質単分子膜の形成。(B) 逆 (水油) エマルジョンの形成。(C) GUV 形成による遠心分離油水境界を通じてエマルジョンを渡すことによって。(D) 冷却管の下の < 18 の ° C を固めるし、油を除去します。その膜 (緑) や小胞の内腔 (赤) で極蛍光体 (1 mM Sulforhodamine 101) 蛍光脂質 (1% の重量割合コレステリル Bodipy FL12) を含む GUV の A (E) 蛍光顕微鏡画像。この図の拡大版を表示するのにはここをクリックしてください。
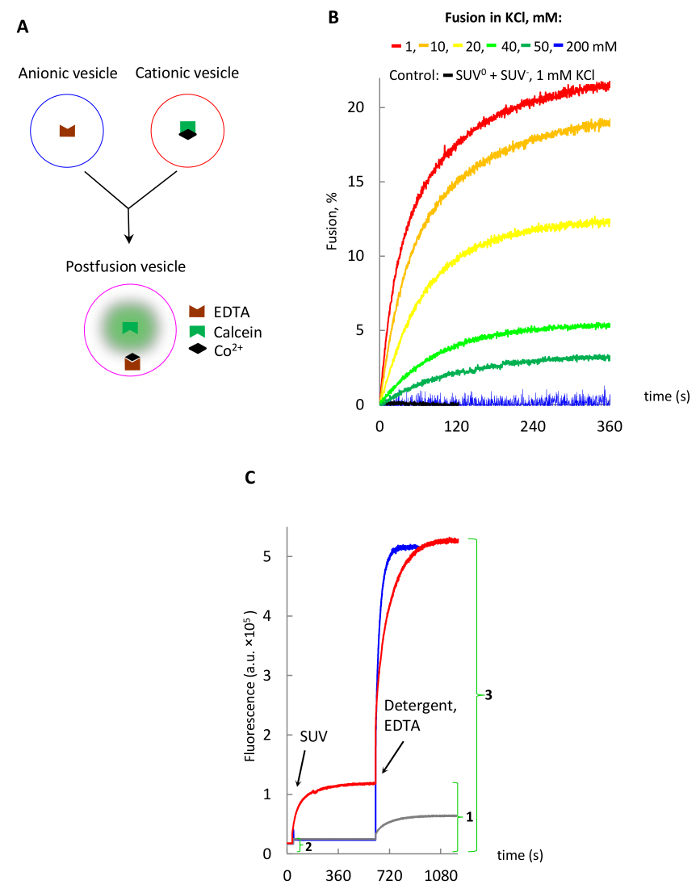
図 3: コバルト カルセイン EDTA を用いた脂質小胞融合検討します。(A) 無料カルセインが EDTA によって非蛍光性コバルト カルセインの複合体から解放される方法の模式図。(B) SUV 融合の KCl 濃度。(C) 本文で説明されているようにBに示すように postfusion の小胞に EDTA とトリトン X-100 の洗剤の添加による小カルセインのリリースです。最大の背景修正融合信号を除して計算して赤のトレースの融合範囲 (%) (1-2) バック グラウンド補正された最大の信号カプセル化されたカルセイン (3-2) のリリースで、以下、100 を掛けることによって。この図の拡大版を表示するのにはここをクリックしてください。
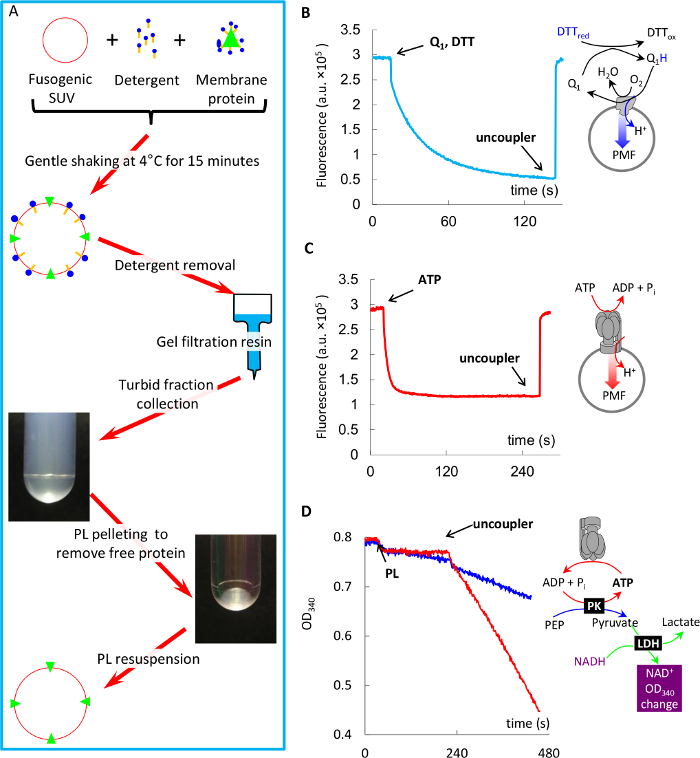
図 4: ボー3の超高速再構成-酸化酵素および膜融合プロテオリポソームとこのようなプロテオリポソームのタンパク質活性測定に F1Fo 。(A) 再構築プロトコルの概略図。(B) コエンザイム Q1酸化ボー3のプロトン ポンプを駆動-PL の酸化酵素測定 ACMA 焼入れ (テキストで説明します)。(C) ATP 加水分解駆動プロトン ポンプ F1Fo pl 測定 ACMA 焼入れ (テキストで説明します)。PL で F1Fo (D) ATP の加水分解は、ATP 再生システム (テキストで説明します) と、ランプによる促進で測定します。この図の拡大版を表示するのにはここをクリックしてください。
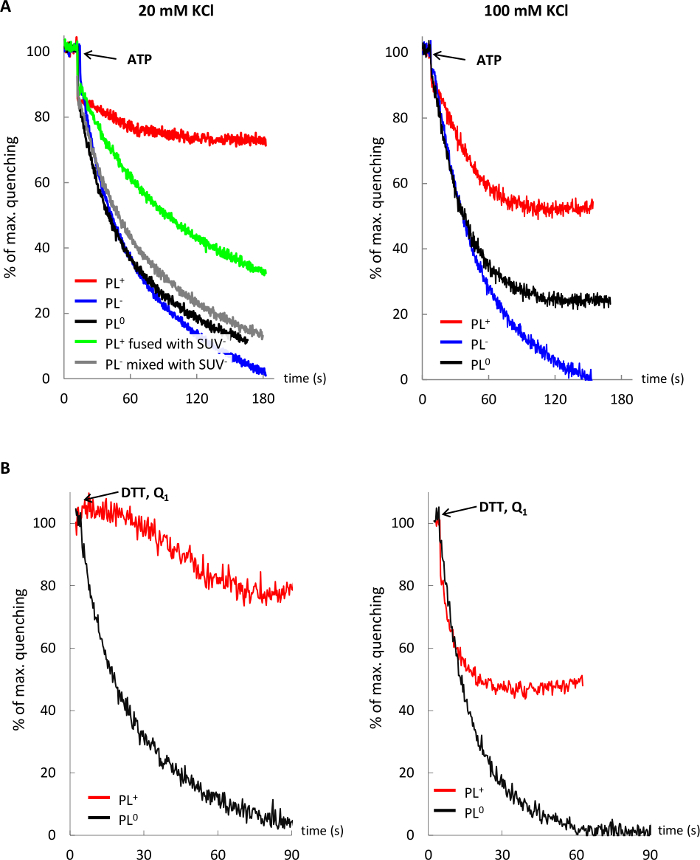
図 5: 膜タンパク質の活性に及ぼす脂質環境およびイオン強度。プロトン ポンプ F1Fo (A) と洪明甫3-20 と 100 mm KCl コントロールのトレース (アニオン マブラヴ (緑トレース) と融合した酸化酵素 (B) カチオン PL (赤いトレース)、アニオン PL (ブルー トレース)、中立的な PL (黒い跡)、カチオン PL。グレー) はプロトン ポンプ F1Fo PL-混合時に suv-の変更を示しています。この図の拡大版を表示するのにはここをクリックしてください。
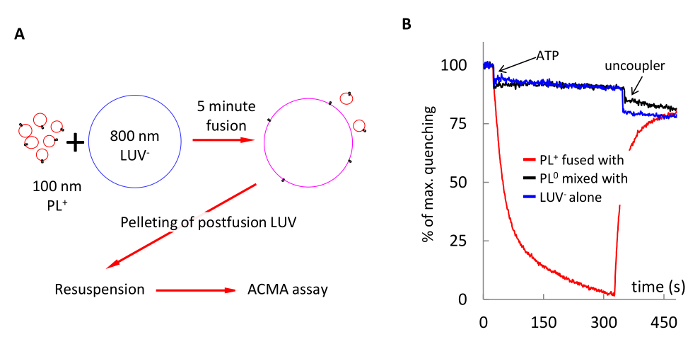
800 の膜への F1Fo ATP シンターゼの図 6: 配信+の PL との融合による nm マブラヴ- .(A) 実験の概略: PL+ 、800 nm マブラヴ-は 1 mM モップ (pH 7.4) 1 mM MgCl2、20 mM KCl を削除するペレット、5 分間で融合した PL を融着し、同じバッファーで再停止されます。(B) プロトン ポンプ postfusion LUV (赤いトレース)。ACMA 焼入れマブラヴ- (黒い跡)、混ぜ PL0または空マブラヴ-だけで試金 (青のトレース) と制御実験を示さなかった。この図の拡大版を表示するのにはここをクリックしてください。
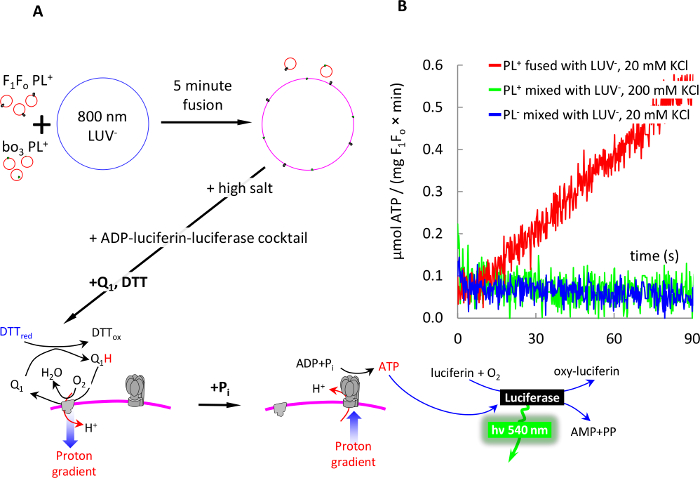
図 7: 5 分洗剤無料アセンブリ 800 の膜中の電子輸送鎖の PL+との融合による nm マブラヴ- 。実験の (A) 回路図: 100 nm F1Fo +の PL と 100 nm ボー3-オキシダーゼ PL+マブラヴ-、された融合の図 6で説明しました。融合は、それぞれ 100 と 50 mm KCl とモップの追加によって停止されました。膜は、ADP-ルシフェリン-ルシフェラーゼ カクテルと混合され、テキストで説明されているように DTT と Q1、添加による通電。1 mM リン酸 (P私)、ルシフェリン-ルシフェラーゼ システム テキストで説明するように監視対象のリアルタイムの添加による ATP の生産が開始されました。(B) ATP 合成 postfusion 小胞 (赤いトレース)。制御実験高塩 (グレー)、+の PL マブラヴ-と混合または PL0マブラヴ- (ブラック) と混合されたとき、ATP の生産を示さなかった。(手順 8.8 8.9) 本文で説明している ATP 合成率を算出されました。この図の拡大版を表示するのにはここをクリックしてください。
ディスカッション
次のこの実験的アプローチの成功のために考慮する必要があるいくつかの問題。
プロテオリポソームとターゲット膜の脂質充電の選択:カチオン性脂質がアニオン性脂質が生体膜、たとえば、~ 25、35 と大腸菌、酵母細胞膜とミトコンドリア内膜の内膜で 20% に達し、豊かな自然の中で見つかりません多くの種は、それぞれ27,28,29。PL+の膜蛋白質の機能は、カチオン性脂質、膜および外部イオンの相対的なコンテンツに依存すると二重層の正電荷の強さによって影響されるかもしれないことを期待するは無理だろう強度。したがって、どの程度興味の膜蛋白質の機能はカチオン性脂質環境の電荷に依存する実験的に対処することが重要です。ここでは、我々 はことを示す両方 F1Fo ATP 合成酵素とボー3-オキシダーゼ カチオン性脂質環境に敏感であるが、調節して最初+の PL に蛋白質を配置し、それらを渡すことによってこの効果を逆にできたアニオン膜を受け入れ、融合後の反応中のイオン強度を増加が完成しました。
特定のカチオン性脂質の選択:ほとんどの市販のカチオンの脂質は、非 triacylglyceride 自然;したがって興味の膜蛋白質との互換性のため潜在的な候補者の脂質をテストする必要があります。以前は本研究で使用される ATP のシンターゼ エチル - pc の DOTAP (非 triacylglyceride で、自然な triacylglyceride 脂質に高い構造類似性を持って形成された PL+で、最高のパフォーマンスを示した15 を発見します。脂質) PL+このタンパク質は活発だった。
小胞融合の試金:小胞の混合水溶液にコンテンツなしで互いに付着が容易にそれらの外部または両方の脂質の内容をミックスに中間の半融合状態から区別されるべき必要がある真の小胞の融合 (とき小液体内容・ ミックス)30ををリーフレットします。最適な脂質混合物または特定の条件の場合小胞はまた融合31中顕著な液体コンテンツ漏洩をデモンストレーションします。各脂質種を実験的に見つけることが必要は荷電脂質真の融合を有効に融合ペプチド混合物の最小濃度ですが 10% 未満で膜が脂質表示非融合性32を請求することが一般的に、分られます。
多価イオンの存在下で膜融合 SUV を形成しながら、これらのイオンによって即時凝集と脂質の凝集を引き起こす可能性がありますこの帯電コンポーネントを混在させることが重要です。たとえば、コバルト カルセイン EDTA メソッドの SUV を準備中、周辺固定支持コンポーネントによってポリカーボネート フィルターの目詰まりを防ぐために EDTA とカチオン性脂質混合物の混合を避けるために重要です。
また、コバルト カルセイン EDTA 法ながら非常に敏感とリアルタイムの融合を監視するのに便利なことがありますまだ過小評価すること 1 による核融合の範囲に言及することが重要です) 内無料カルセインの蛍光消光postfusion 小胞、自己クエンチングのしきい値は約 20 μ M33、および 2 と報告されている間 1 mM に達すると予想される) 表面結合コバルト-カルセイン、ゲル濾過樹脂を通過した後もそのまま SUV+にバインドして色しますは明るいオレンジ色に小胞 SUV0が淡いオレンジ色。また、EDTA 存在下で洗剤トリトン X-100 の添加によってバインドされたコバルト カルセインのリリースが SUV+ (図 3、赤のトレース) SUV0 (グレー トレース) よりはるかに強力な信号を生成することに注意してください。
視点: 我々 はここで説明した高速のアプローチが大幅に促進し、合成生物学アプリケーションを新興国のニーズに複合体膜の組み立てのスピードアップを期待します。当社膜タンパク質再構成プロトコルこの膜融合のアプローチは提供する 5-10 分だけ、長い透析ベースの再構成手法を重視する知られている壊れやすい大規模な膜タンパク質の再構成の半分だけ時間がかかる大規模な脂質二重膜に蛋白質はそのような。ここでは、大腸菌F1の Fo ATP シンターゼ、壊れやすいタンパク質の例であるを操作することによってこれらのアプローチの利点を示しています。それが 23 サブユニットで、これらの手順で使用されている、タンパク質を示しますプロトン ポンプで高い再現性をもって活動中/後の可溶化、最適条件 (たとえば、熱) にさらされた場合の整合性を容易に失うことがわかっています。
開示事項
著者が明らかに何もありません。
謝辞
著者は、感謝してイリノイ大学アーバナ ・ シャンペーン校からロバート ・ Gennis、クリストフ ・ フォン ・ Ballmoos ベルン大学からプラスミドとボー3を表現するひずみを提供する-酸化酵素。プロジェクトは、BBSRC によって支えられた付与 BB/L01985X/1 r. i. と r. b.
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| DOPC中性脂質 | アバンティ脂質 | 850375 | |
| POPA アニオン性脂質 | アバンティ脂質 | 840857 | |
| E-PCカチオン性脂質 | アバンティ脂質 | 890704 | |
| コレステリル-ボディピー-FL12 | サーモフィッシャー | C3927MP | |
| セファデックス G-50、スーパーファイン | シグマ | G5050 | |
| フィコール400、タイプ400-DL | シグマ | F8016 | |
| ACMA | シグマ | A5806 | |
| ニゲリシン | シグマ | N7143 | |
| ATP | シグマ | A26209 | |
| Q1 | シグマ | C7956 | |
| DTT | シグマ | D0632 | |
| PEP | シグマ | 860077 | |
| NADH | シグマ | N8129 | |
| PK | Sigma | P9136-1KU | |
| LDH | Sigma | L1254-1KU | |
| Luciferin | Sigma | L6882 | |
| Luciferase | Sigma/Roche | 10411523001 | |
| Calcein | Insight Biotechnology | sc-202090 | |
| CoCl2 | Sigma | C8661 | |
| EDTA | Sigma | E6758 | |
| スルフォロダミン 101 | シグマ | S7635 | |
| 押出システム | Avanti 押出機 | ||
| シングルチューブルミノメーター、モデル Sirius L | Titertek Berthold | ||
| ポリカーボネート フィルター、D19 mm | シグマ、Whatman NucleporeTrack-エッチング メンブレン WHA800309 | 、WHA800284 | 100 または 200 nm で SUV を形成し、400 または 800 nm で LUV |
| を形成名称 | 会社 | カタログ番号 | コメント |
| > | |||
| A | 100 mM KCl、50 mM MOPS pH 7.4、1 mM MgCl2 | ||
| Buffer B | 20 mM KCl、10 mM MOPS pH 7.4、0.1 mM MgCl2 | ||
| バッファーC | 100 mM KCl、10 mM MOPS pH 7.4 バッファーD | ||
| 1 mM MOPS pH 7.4 KClのさまざまな濃度 |
参考文献
- Rigaud, J. L., Levy, D. Reconstitution of membrane proteins into liposomes. Liposomes, Pt B. 372, 65-86 (2003).
- Johnson, M., et al. Two-dimensional crystallization of membrane proteins by reconstitution through dialysis. Methods Mol Biol. 955 (31-58), 31(2013).
- Dezi, M., et al. Detergent-mediated incorporation of transmembrane proteins in giant unilamellar vesicles with controlled physiological contents. Proc Nat Acad Sci U S A. 110 (18), 7276-7281 (2013).
- Girard, P., et al. A new method for the reconstitution of membrane proteins into giant unilamellar vesicles. Biophys J. 87 (1), 419-429 (2004).
- Angelova, M., et al. Preparation of Giant Vesicles by External Ac Electric-Fields - Kinetics and Applications. Trends in Colloid and Interface Science Vi. 89, 127-131 (1992).
- Leptihn, S., et al. Constructing droplet interface bilayers from the contact of aqueous droplets in oil. Nature Protocols. 8 (6), 1048-1057 (2013).
- Villar, G., Graham, A. D., Bayley, H. A Tissue-Like Printed Material. Science. 340 (6128), 48-52 (2013).
- Khalil, A. S., Collins, J. J. Synthetic biology: applications come of age. Nat Rev Genet. 11 (5), 367-379 (2010).
- Smith, M. T., Wilding, K. M., Hunt, J. M., Bennett, A. M., Bundy, B. C. The emerging age of cell-free synthetic biology. FEBS Lett. 588 (17), 2755-2761 (2014).
- Church, G., et al. Realizing the potential of synthetic biology. Nat Rev Mol Cell Biol. 15 (4), 289-294 (2014).
- Gao, Y., et al. Single reconstituted neuronal SNARE complexes zipper in three distinct stages. Science. 337 (6100), 1340-1343 (2012).
- Nordlund, G., Brzezinski, P., von Ballmoos, C. SNARE-fusion mediated insertion of membrane proteins into native and artificial membranes. Nat Commun. 5, 4303(2014).
- Decout, A., et al. Enhanced efficiency of a targeted fusogenic peptide. Biochimica Et Biophysica Acta-Biomembranes. 1372 (1), 102-116 (1998).
- Chan, Y. H., van Lengerich, B., Boxer, S. G. Effects of linker sequences on vesicle fusion mediated by lipid-anchored DNA oligonucleotides. Proc Natl Acad Sci U S A. 106 (4), 979-984 (2009).
- Ishmukhametov, R. R., Russell, A. N., Berry, R. M. A modular platform for one-step assembly of multi-component membrane systems by fusion of charged proteoliposomes. Nat Commun. 7, 13025(2016).
- Biner, O., et al. Delivery of membrane proteins into small and giant unilamellar vesicles by charge-mediated fusion. FEBS Lett. 590 (14), 2051-2062 (2016).
- Bian, T., et al. Direct detection of SERCA calcium transport and small-molecule inhibition in giant unilamellar vesicles. Biochem Biophys Res Commun. 481 (3-4), 206-211 (2016).
- Schuette, C. G., et al. Determinants of liposome fusion mediated by synaptic SNARE proteins. Proc Natl Acad Sci U S A. 101 (9), 2858-2863 (2004).
- Spencer, A. C., Torre, P., Mansy, S. S. The encapsulation of cell-free transcription and translation machinery in vesicles for the construction of cellular mimics. J Vis Exp. (80), e51304(2013).
- Verchere, A., et al. In vitro investigation of the MexAB efflux pump from Pseudomonas aeruginosa. J Vis Exp. (84), e50894(2014).
- Kaplan, R. S., Pedersen, P. L. Determination of Microgram Quantities of Protein in the Presence of Milligram Levels of Lipid with Amido Black B-10. Analytical Biochemistry. 150 (1), 97-104 (1985).
- Rumbley, J., et al. One-step purification of histidine-tagged cytochrome bo3 from Escherichia coli and demonstration that associated quinone is not required for the structural integrity of the oxidase. Biochim Biophys Acta. 1340 (1), 131-142 (1997).
- Taussky, H. H., Shorr, E. A Microcolorimetric Method for the Determination of Inorganic Phosphorus. Journal of Biological Chemistry. 202 (2), 675-685 (1953).
- Galkin, M. A., Ishmukhametov, R. R., Vik, S. B. A functionally inactive, cold-stabilized form of the Escherichia coli F1Fo ATP synthase. Biochimica Et Biophysica Acta-Bioenergetics. 1757 (3), 206-214 (2006).
- Ishmukhametov, R. R., Galkin, M. A., Vik, S. B. Ultrafast purification and reconstitution of His-tagged cysteine-less Escherichia coli F1Fo ATP synthase. Biochim Biophys Acta. 1706 (1-2), 110-116 (2005).
- Wiedenmann, A., Dimroth, P., von Ballmoos, C. Deltapsi and DeltapH are equivalent driving forces for proton transport through isolated F(0) complexes of ATP synthases. Biochim Biophys Acta. 1777 (10), 1301-1310 (2008).
- Morein, S., et al. Wild-type Escherichia coli cells regulate the membrane lipid composition in a "window" between gel and non-lamellar structures. J Biol Chem. 271 (12), 6801-6809 (1996).
- Zinser, E., et al. Phospholipid synthesis and lipid composition of subcellular membranes in the unicellular eukaryote Saccharomyces cerevisiae. J Bacteriol. 173 (6), 2026-2034 (1991).
- Daum, G., Vance, J. E. Import of lipids into mitochondria. Prog Lipid Res. 36 (2-3), 103-130 (1997).
- Pantazatos, D. P., MacDonald, R. C. Directly observed membrane fusion between oppositely charged phospholipid bilayers. J Membr Biol. 170 (1), 27-38 (1999).
- Pantazatos, D. P., Pantazatos, S. P., MacDonald, R. C. Bilayer mixing, fusion, and lysis following the interaction of populations of cationic and anionic phospholipid bilayer vesicles. J Membr Biol. 194 (2), 129-139 (2003).
- Sunami, T., et al. Detection of association and fusion of giant vesicles using a fluorescence-activated cell sorter. Langmuir. 26 (19), 15098-15103 (2010).
- Memoli, A., et al. Effects of surfactants on the spectral behaviour of calcein (II): a method of evaluation. J Pharm Biomed Anal. 19 (3-4), 627-632 (1999).
再版と許可
