固相担、タンパク質-無料、ダブル リン脂質二重膜 (DLBM) 複雑で動的な脂質ナノチューブ ネットワークに変換することができます、小胞体の 2 D のボトムアップ モデルとして使用できます。
この記事について
サマリー
要約
小胞体 (ER) のボトムアップ構造オルガネラ モデルを形成するための便利な方法を提案します。モデルは、高密度の脂質ナノチューブの形態とダイナミクス、ER を連想させる観点からで。ネットワークは、透明な Al2O3基板に付着したリン脂質二重層膜パッチから派生します。接着は、Ca2 +の周囲のバッファーによって媒介されます。その後枯渇 Ca2 +これら/EDTA による自発的な脂質ナノチューブ ネットワーク形成の結果、膜の収縮が発生します。メソッドはのみリン脂質と ER モデルの簡単な形成のための表面を微細加工し、タンパク質や化学エネルギー (例えば、 GTP または ATP) の添加を必要としません。細胞の小胞体の 3次元形態と対照をなしてモデルは二次元 (とはいえ、カーボンナノ チューブの寸法、形状、構造、およびダイナミクスは維持されます)。このユニークな体外ER モデルのみいくつかのコンポーネントで構成されています、簡単には作成し、光学顕微鏡下で観察することができます。結果として得られる構造は小胞体関連タンパク質またはチューブの間での輸送現象を研究する粒子の追加などの追加機能のためさらに飾ることができます。ここで説明した人工のネットワークは、適切な構造のモデルに対し、その生物学的機能に関連することがユニークな特徴的な形態を示されている小胞体の管状のドメインの形成に関する詳細携帯と内再編成はまだ完全には理解されています。我々 は、このメソッドが市販されているが、特別な命令を必要とする Al2O3薄い皮膜顕微鏡 coverslips を使用して注意してください。したがって、準備のため微細加工施設にアクセスすることをお勧めします。
概要
小胞体は、タンパク質の折り畳み、脂質合成、カルシウム調節1,2など生物の細胞の重要なタスクを実行します。ER 形態はそれを実行する機能に固有です。平面のスタックと継続的に細胞骨格と相互作用し、一定の動きや転位を受ける高密度ダイナミック鋼管ドメインを兼ね備えています。小胞体の構造を経ること改造の平面シート、管から小胞形成や小胞体内腔、既存管、管収縮、融合、および破損3の伸長に融合の間の連続的な変形が含まれます。管状のネットワークの独特な構造は精力的に好ましくないです。経路・ メカニズム、ER を生成および保持この組織もこれその機能に関連する方法ではありませんまだ4,5を十分に理解しています。
それは、小胞体誤動作の恒常性の状態を失うと小胞体ストレス、タンパク質合成、誤って折りたたまれたタンパク質の蓄積の増加や Ca2 +と酸化のバランスの変化によって引き起こされる条件の結果知られています。小胞体ストレスになります、細胞小器官の自然形態の変形ネットワーク組織6,7を乱すことによって具体的には。対応として、セルは恒常性の状態に戻す修復メカニズムをアクティブにします。修理に失敗,7などアルツハイマー病、2 型糖尿病、パーキンソン病、筋萎縮性側索硬化症、およびいくつかの他のいくつか代謝・変性疾患に寄与する小胞体誘発アポトーシスをもたらす 8。現在の研究対象の管状の小胞体ネットワーク組織と体外ER2を再構成することに焦点を当て、いくつかの研究。いくつかの既存モデル2,9,10開始と膜曲率3,11を維持しその形状に達する細胞小器官を助ける蛋白質を必要とします。明らかに、小胞体の構造および組織の特徴のいくつかを映すし、高度な実験的研究へのアクセスを提供するモデル システムは引っ張りだこであります。
ここでは小胞体の形態と関連付けられている関数4を勉強する基本的なプラットフォームを提供する小胞体、安易なタンパク質・化学エネルギー無料、動的の in vitroモデルの準備のための手順を提示します。このメソッドの複雑さを追加することができます、興味の分子を統合するだけいくつかの要素を使用してボトムアップ ・ アプローチと ER モデルを作製しました。ネットワークは、小胞体の構造とダイナミクスを表します。さらに、平面膜とチューブの間の可逆的な変換は、管、管の融合、スライディング、取り消しから小胞形成すべてを観察できます。不完全な理解細胞小胞体のボトムアップ型モデルとしてサービング、に加えてこのプロトコルで記述されているカーボンナノ チューブ ネットワークに脂質ルートは組み立て式、流体素子、単一分子とコロイドを勉強して研究者に対応できます。輸送現象、マランゴニ フロー、およびその他の関連分野。私たちのメソッドで使用される唯一の分子のビルディング ブロックは、リン脂質です。プロトコルは少し実験および基本的な装置を必要とする、追加要素の組み込みアクセスできます。
プロトコル
1. リン脂質小胞懸濁液の準備
注: すべての材料のために「クリーン」このプロトコル徹底的にイソプロパノール続いて脱イオン水で洗浄し、窒素とブロードライに呼ぶ。通常固体基板上への脂質膜の準備のプロトコルに適用される、強く酸化酸性剤 (ピラニア溶液) とガラス基板の治療を Al2O3を実行しないように注意してください-コーティングキャリア。
- クリーン 10 mL 丸底または反転の洋ナシ形のガラス フラスコ内の場所: [例えばテキサス赤 1, 2 - 選択の脂質共役分子蛍光、1,2-dioleoyl-sn-glycero-3-phosphoethanolamine (麻薬、30%/w)、ホスファチジルコリン (PC, 69%/w) 大豆 L αdihexadecanoyl sn グリセロホスファチジン 3 phosphoethanolamine triethylammonium 塩 (TR DHPE、1%/w)] クロロホルム;最終濃度 10 mg/mL のクロロホルムを 300 μ l 添加の脂質の 3000 μ g 合計量。
注: ガラス、ポリテトラフルオロ エチレン プランジャー クロロホルムを含む化合物を処理するときとガス タイトな注射器を使用、クリーン。
注意: クロロホルムは有毒で揮発性の高いと関連付けられた個人保護具のヒューム フードの下で常に処理する必要があります。 - ロータリーエバポレーター、45 ° の傾きで位置にフラスコを接続し 24 rpm に減らされた空気圧で 6 時間の 23 ° c の水浴中でゆっくりと回転させるし、クロロホルムを完全に削除します。20 kPa (150 Torr、80% 真空) に到達するまで、20 kPa 2 分ごとの手順で回転を開始した後の圧力権利を減らすことを開始します。
注: 調製容器に均一な厚さの均質な脂質膜の形成は、rotavap プロシージャの最も重要な要件です。脂質製剤は、回転速度、急激な圧力の変化と、最終的な圧力値に敏感したがって、必ず終了圧力と回転速度と同様、遅い削減の手順を従ってください。脂質脱水ケーキがフラスコの壁に映画として均等に形成されることを保証するための 45 ° のチルトをフラスコを位置します。回転の速すぎて乱れ回転の遅いしリードは (重力) フラスコ下部流体の厚い層の蓄積につながります。プロセス、非常に不均一脂質を膨潤後一晩中量産が最終的な超音波処理の手順にも応答しないし、結果の分数は、組成の異なる。圧力とメソッドで指定した範囲内の時間は、ゆっくり脱溶媒を保証します。クロロホルム溶媒として、あまりにも圧力の低下の急速な冷却粘度上昇および骨材と不均一な膜の形成に終って混合物。6 時間の長い期間は水分補給に脂質材料に有機溶剤のパーティションとして、可能な限りに溶媒を除去するためにお勧めします。 - 6 h 後回転を停止、20 kPa 100 kPa に達するまで 2 分ごとの手順で再度、徐々 に空気圧を高めます。フラスコを回転蒸発器から外し、3 mL の PBS とグリセリンの 30 μ L を追加します。グリセロールを溶解するため、フラスコを軽く旋回します。脂質を含むフラスコを密封するのに気密ガラス ストッパーを使用します。
注: グリセロール脂質膜の完全な脱水を防ぐために使用され、二層分離12を有効に。それは、この化合物の処理が容易になりますその粘度が低下する使用する前に加熱する必要があります。PBS バッファー温めたグリセリンはまだすぐにミックスします。グリセロールを完全に溶解するまで穏やかな旋回が必要です。 - 4 ° c 脂質膜の腫れや水分補給のため一晩冷蔵庫にフラスコを格納します。
- 次の日に制服、わずかに濁った脂質懸濁液を達成するまで超音波水浴室温 (RT、~ 21 ° C)、35 kHz の周波数を持つ脂質超音波を照射します。
メモ: 超音波処理周りかかる 10-30 s. 長時間超音波 (~ 1 分) 熱を生成し、小胞の形成に支障をきたす。 - 手順 1.1 1.5 収量小胞の構造の 2 つのタイプを含む懸濁液: 多重層膜ベシクル (MLV) と巨大リポソーム (GUV) (図 1A 1 階)。
- ストレージ、脂質懸濁液を 100 μ L 因数、30 マイクロ遠心チューブ用, の合計を使用して分割、-20 ° C で冷凍庫に保存
注: 液体窒素で凍結フラッシュ必要はありません保管する前に使用されていません。プロトコルはここで一時停止することができます。4 ° C の冷却装置で脂質懸濁液を残して原因脂質溶解回長期のため、膜組成に影響を与えます。
2. 基板の準備
注: 次のプロトコルは、ISO 14644-1 標準仕様で ISO 8 として分類されるクリーン ルームで行われます。原子層堆積法 (ALD) を使用して、Al2O3基板を作製します。指定されたプロセスのパラメーターは機器依存であり、機器の異なるモデル間で異なる場合があります。彼らはプロセスを開発する最初のパラメーターとして使用できます。
- ALD リアクターの温度を 200 ° C に設定します。
- 一緒にいられる後参照サーフェスとして堆積の厚さを決定するエリプソメトリによるシリコンウエハの試料室にガラス表面 (例えば、ガラス coverslips) をロードします。
注: ガラス基板使用アウト-の-、-ボックス、堆積前に溶剤洗浄されませんでした。彼らは、粒子を除去する窒素ガスでフラッシュされてのみ。 - 400 に、チャンバーを避難 Pa (3 torr) 主反応室にサンプルを転送し、200 に避難しペンシルバニア州
注: 原子炉の温度は適切な蒸着 200 ° C で保持されなければなりません。温度変動後堆積を開始する前に、サンプル読み込みを平衡したがってする必要があります。燃焼室圧力は、商工会議所外で広がる任意の前駆物質を避けるために原子炉圧力よりも高くなるように設定されます。 - 原子膜を堆積を開始します。1 つのサイクルは、1 s パージし、続いて 1 s パージが続く持続時間 200 ms の H2O 露出に続いて、150 ms パルス トリメチル アルミニウム暴露で構成されています。
メモ: すべての設定は、商工会議所、原子炉の圧力など、サイクル、およびパージの長さ沈着の定義された速度を達成するために自動化されています。これらのパラメーターは、機器の様々 なモデル間で異なる場合があります。構成済みのレシピ頻繁にベンダーまたはツール クリーン ルームで担当した、単位時間あたりの蒸着膜厚としてユーザーに伝達します。 - 10 に到達するため、基板上の Al2O3の nm は 100 サイクルのプロセスを繰り返します。サイクル数は、さまざまなレシピや機器間で異なる場合があります成膜速度に依存します。
- 原子炉からサンプルを削除するには、最初のベント チャンバーの圧力は大気圧に達するまでサンプルを削除します。
- 使用するまで RT で気密容器にサンプルを格納します。
注: 以上のクリーニング使用する前に勧めします。プロトコルはここで一時停止することができます。
注: サンプルは、堆積した直後に理想的に使用必要があります。最適なストレージ ・ ポリプロピレン ウェハ キャリア、クリーン ルーム対応のビニール袋、真空封止前に窒素フラッシュされることであるキャリアを包み込み続いて内部サーフェスを配置が必要です。目的は、空中の汚染物質に表面をさらすことを避けるためです。必要に応じて、5 日間の最大 RT で気密容器の表面を保つことができます。長期保存はお勧めできません。このホテルの近隣には、クリーン ルームに簡単にアクセスを持っていないと購入か海外から表面を取得ユーザーのため酸素プラズマやオゾン処理による基板を再酸化が代替ソリューション13あります。
3. 鋼管ネットワークに分子のリン脂質膜の変換
- 脂質懸濁液を解凍し、きれいなガラス顕微鏡スライド/coverslip の上に懸濁液の 4 μ L 液滴を転送します。
- 20 分の液滴を脱水します。ドロップレットは、目に見えるである乾燥後、脂質膜が平らな円形に崩壊します。
- HEPES 緩衝液の 1 mL と脂質膜を水分補給 (材料の表を参照) で 3 分。
注: 復元バッファー量観測室に転送、その後小胞サスペンション (単位体積あたりの小胞の数) の密度に影響します。観察室と必要な小胞密度の量、に応じて水分補給量をチューニングして、0.5-1 mL。いくつかの百マイクロリットルの液滴をサポートする傾向があるきれいなホウケイ酸スライド問題なく 1.5 mL。Coverslip の移動する必要はありません, ので、技術的な問題にこれは導かない。SU 8 ポリマー コーティング スライドより疎水性の表面にも 1.5 mL は堆積した12をすることができます。
注: 脂質準備されるべきたて、RT で 20 分以上の水分を補給された脂質の膜の露出はバッファーの蒸発および不完全につながる定義構成以前水分を補給された小胞の部分的な脱水につながると。 - 観測室の準備: 小胞体変換を開始する必要がある自動ピペットによるバッファー交換を可能にするオープン トップ型観測室が使用されました。この部屋は、寸法 1.5 × 1.5 × 0.5 cm、Al2O3堆積 coverslip の上に付着したポリジメチルシロキサン (PDMS) のフレームで構成されます。マウントされた観測室の方式は図 1Gで表されます。次の手順は、PDMS フレームを作製し、観察室を組み立てる実行されました。
- 100 ml の氷浴でビーカーのイソプロパノールの島の 100 g を混ぜて KOH 溶液を準備します。マグネチックスターラーと電磁攪拌プレートを使用して、島を完全に溶解するまで 10 h 以上をかき混ぜます。
注意: KOH 溶液は腐食性、皮膚のやけど、適切な個人用保護具を扱うため、常につながることができます。
注: 島のイソプロパノールで溶解度は水のように、高くないです。分解は発熱です。溶解し、連続的に攪拌前に KOH ペレットを破砕することをお勧めします。 - ガラス シャーレを水没 (d = 6 cm) それが一晩で RT し KOH 溶液に。
- 次の日、ガラス皿をソリューションから削除、5 分の脱イオン水を容器に浸し、水で数回すすぎ、簡単にその部分を確保するための窒素の流れと表面 1 h. 打撃 80 ° C で乾燥炉内配置icles が削除されます。
- 表面のパッシベーションし PDMS への接着を防ぐため、重み付けボートなどきれいなプラスチック容器にプラスチック注射器で dimethyldichlorosilane の 200 μ L を転送します。
- (低真空、~ 20 kPa) 真空デシケータにガラス 1 h のシランと一緒にシャーレを格納します。
注意: Dimethyldichlorosilane は毒性と関連付けられた個人保護具のヒューム フードの下で常に処理する必要があります。 - 残り dimethyldichlorosilane 蒸気を逃がすためにシャーレを収集する前に 15 分を待機します。ペトリ皿は、シラン処理、表面が疎水性。
注: この手順の成功をテストする簡単な方法は、シラン処理シャーレの上に水滴を置くことです。表面の液滴の接触角は、未処理ガラスと比較して目に見えて増やす必要があります。 - 250 mL のプラスチック容器 (パッケージから新鮮な透明プラスチック カップ)、シリコーンのエラストマー硬化剤 (10:1) の 1 g とシリコーン ・ エラストマーの基本の 10 g をミックスします。5 分樹脂攪拌機/プラスチックのヘラを使って混ぜます。
注: 空気の泡は攪拌しながら、時に形成され、PDMS は淡い白になります。 - < 20 kpa までの範囲でドガのすべての拡大気泡が崩壊するまで混合物を脱水する (高真空は、プロセスを加速する)。シラン処理ペトリ皿に脱の混合物を注ぐ。
- オーブンで 2 時間 65 ° C で治します。
注: > 95 ° C に温度を上げることによって硬化速度を 2 倍にすることは硬化温度の上昇は材料の剛性の増加の結果します。 - RT に硬化 PDMS でいっぱいペトリ皿を冷却し、ヘラで PDMS スラブを削除します。
- メスと、顕微鏡ステージの利用可能な開口部の適切な寸法と幾何学にフレームをカットしています。1.5 (長さ) × 1.5 (幅) × 0.5 (高さ) cm のサイズは、ほとんどの設定に適しています。
- 滑らかな側面 (ペトリ皿と接触していた底側) をもたらす、PDMS のフレーム表面のアクティブ側と接触する Al2O3フィルムが存在してフレームをプッシュするとお互いに対して表面軽く押さえる付着します。
注: PDMS フレームと Al2O3基板との密着性は弱いです。接触インタ フェースで空気泡の存在は、デ-添付ファイルと、その結果、バッファーおよび関連する内容の漏洩を引き起こす可能性があります。PDMS フレームは、それぞれ直前に使用、イソプロパノールをすすいだの DI 水ですすぎ、窒素で毎朝のブローや続く場合数回使用できます。ペトリ皿シラン処理を再利用もできます。
- 100 ml の氷浴でビーカーのイソプロパノールの島の 100 g を混ぜて KOH 溶液を準備します。マグネチックスターラーと電磁攪拌プレートを使用して、島を完全に溶解するまで 10 h 以上をかき混ぜます。
- Ca2 +-HEPES 緩衝液と観測室を埋める (材料の表を参照してください)。
注: サーフェスをパッケージを開封後すぐに使用する必要があります。空気との接触は、徐々 に表面の活性を低下させる、汚染物質の吸着につながります。商工会議所は、組立後すぐにバッファーで満たされる必要があります。後続の手順で水分を補給された脂質の追加できるように、全体の室容積を記入しないでください。 - 共焦点顕微鏡ステージ上に商工会議所を配置します。今懸濁液パスツール ピペット (図 1A-1 グラム) のプラスチックで商工会議所に巨大な小胞を含む水分を補給された脂質素材を転送します。
- 基板上に付着し、表面 (図 1H 1 j) に広がる小胞に 10-20 分を待ちます。
注: の広がり表面の脂質の沈着の直後後から開始します。拡散の速度可能性がありますにより若干異なります脂質組成、Al2O3蒸着法(ADL、RF スパッタリング法、化学気相蒸着等)、基板、および二価の陽イオン濃度の新鮮さ、バッファー。14パッチ広がりの破裂前にバッファー交換が実行されることを確認します。 - 観察した後、底に薄いバッファー フィルムのみが残るよう複数の脂質スプレッドは自動ピペットを介して周囲のバッファーをゆっくり取り外します。
注: バッファーの迅速な除去は、表面の脂質構造を摂動します。 - ゆっくりと観測室のキレート剤 HEPES 緩衝液を充填して周囲のバッファー交換に進みます (材料表参照) 自動ピペット (図 1K) を使用します。
注: バッファーの追加により急激な表面の脂質構造を摂動します。 - この最後のステップは、動的なナノチューブ ネットワーク、キレート剤によるピン止めのはずれ、MLV4 (図 1L 1 年) に DLBM の取り消しの結果として形成を得られます。
4. 顕微鏡観察
- 595 テキサス赤 DHPE を励起する白色レーザー ソース逆レーザー顕微鏡共焦点走査周波数は 400 hz 採用 (1.3 NA) の油浸対物レンズ × 40 を使用して画像を取得 nm。700 605 から排出量を収集ハイブリッド光子検出器を用いた nm。
注: また、エピ蛍光顕微鏡使用できますイメージングのため。使用可能な光源によって適切な脂質色素共役を選択します。
結果
脂質ペンション プロトコルの手順 1 で取得したし、実験で使用される小胞の 2 つの主なタイプが含まれています: Mlv、Guv。図 1A 1 階は、3 D で構築された初期のサンプルで小胞の共焦点顕微鏡の走査型レーザーを示しています。図 1A-1_Cは、それぞれ xyz、xz と yz 平面、MLV (脂質沈殿物) を示しています。図 1D 1 fには、巨大リポソーム (GUV) 膜ベシクルのようなビューが表示されます。Multilamellarity が無い、膜の内側の部分は中空です;したがって、拡散のため脂質の材料は大幅に限られています。したがって、このメソッドの唯一の有用な脂質貯蔵所、Mlv です。
脂質懸濁液は、Ca2 +-HEPES 緩衝液 (図 1G) を含む観測室に転送されます、Mlv (図 1A-1_C) は Al2O3表面の解決を開始します。連絡先、小胞の表面に付着、円形フラット二重の脂質二重膜 (DLBM) に固体のサポート (図 1H 1 j) に各 MLV から広がり始めます。MLV は、拡大を続ける DLBM の脂質を提供していますタンクとして機能します。固体のサポートに関して、遠位部 (上部) 二重膜は、ローリング運動 (図 1私) 円形のエッジの円周に沿って近位部 (下) 二重膜に接続されます。2 つの膜は互いの上にきっぱりと位置間にカプセル化された薄い液膜を持っています。展開、中に遠位の膜が横方向に拡大し、近位膜エッジによって端引かれる間、近位の膜が継続的の下にサポート表面に付着します。DLBM の広がりは、Ca2 +、近位の膜脂質頭部群と固体基板4間融合性エージェントとして機能するによって媒介されます。
広がりが長時間続く場合膜張力が増え、破裂 (図 2Aおよび2 b) です。その後、膜の撤回は、小胞体の管状の形態を作成する必要がある、もはや誘起することができます。したがって、破裂膜を認識することが重要です。我々 の実験で脂質蛍光ラベルが付きますので破裂は直接観測することができます。破裂の重要な指標は、破裂した領域 (図 2Aおよび2 b)14の蛍光強度の大幅な低下です。破裂は、緊張の高まりと遠位の膜で後続のポア形成の結果です。蛍光顕微鏡下で破裂した領域は従って未破裂地域 (二重層)14 (図 2B) の半分の発光強度 (単一の近位二層) を展示いたします。細孔の形成の間に破裂の領域に位置していた当初、膜材料を拡散パッチの端に移行します。全体のパッチ領域の成長になります。したがって、円形のパッチの輪郭の急速な拡大は、破裂の間にも観察できます。
円形パッチ領域 100-200 μ m に到達した後すぐに、パッチの破断につながる広範な成長を避けるためには、Ca2 +-HEPES バッファーが優しく自動ピペットと薄膜表面に液体のままのまで削除されます。優しく、キレート剤 HEPES バッファーが撤回 (図 1K) を開始する商工会議所には追加されます。サンプル (図 2C) の完全な脱水やバッファー (図 2Dと2 e) の急速な交換の妨害、破裂、またはパッチの変形が発生します。キレート剤の添加は、徐々 に Ca2 +表面と膜間のスペースから削除します。キレート剤 HEPES バッファーは、間 bilayer 基板のスペースを脂質膜パッチの周囲から徐々 にアクセスします。したがって、固定サイトの除去の円形パッチの端から始まり、内側に伝達 (図 1K 第 1 四半期)。ピン止めのはずれ、結果脂質膜は中心に MLV に向かって進んでいるエッジ内側から撤回をデタッチして起動します。取り消しプロセスは動的に脂質鋼管ネットワーク4 (図 1L 1 年) の開発の新しいインターフェイスにつながります。完全に分離する膜を許可しない、固定、永続的な地域につながる表面と核の集計に残るカーボンナノ チューブの長い枝分かれするネットワーク。(図 1L 1 年)。連続解除ピンニングとさらに脂質ナノチューブの撤回は漸進的なキレート化のプロセスの結果として時間をかけて観察しました。この粗大化とネットワークの枝の転位、滑らかな ER のように管状のネットワークの動的挙動に重要な役割を果たしています。
図 1L 1 年は、プロトコルで取得したカーボンナノ チューブ ネットワークの顕微鏡写真を示しています。図 1Lは図 1Mの領域のクローズ アップは、白いフレームでマークです。図 1Lと1 Mで連続の明るい赤領域は、(図 1Mに青色の点線でマーク) DLBM の後退の割合です。図 1Nと1O鋼管ネットワークの電子顕微鏡写真は、コントラストを高める反転されます。図 1Pおよび第 1 四半期3 時間 20 分にわたって膜領域における鋼管の密度の減少を示しています。緩やかなピン止めのはずれ実験期間の表面から、DLBM の収縮によって続くために管状の密度の低下が発生します。時間をかけて、固定語順換えおよび管 (図 1Pと第 1 四半期) で覆われている面積の削減につながる増加から解放されるポイントの数。管状の再編成は、2 つの固定小数点間中断脂質ナノチューブの表面自由エネルギー最小化によって動機づけられています。確立されたカーボンナノ チューブの表面エネルギーを最小にする最も効率的な方法はその長さ15を減少させることです。したがって、最初表面にカーボンナノ チューブを保持、膜融合領域が固定解除、ナノチューブはスライドし、最小の長さを採用することは、自発的に彼ら自身を整理します。これらの再配置 (図 1Pと第 1 四半期) カーボンナノ チューブによる表面の次第に減らされた範囲を引き起こします。
我々 は可視化できない Ca2 +-固定ポイントを介するが、我々 はチューブの端末または鋭いターンのあるポイントとしての場所を確立します。V ジャンクション15またはターニング ポイントとしては、シャープなターンはチューブの配置 (図 1Rと1 Xの緑の矢印) の方向の突然のシフトのため呼ばれます。エンドポイントは、(図 1Xオレンジの矢印) を取り消すからチューブを防止する管の終点を表します。「Y ジャンクション」または「3 方向接合」として識別されるチューブの精力的に好ましい処分再編成中に表示されます。Y 字は、最短の総管長さを確保できる、各チューブ間の角度が約 120 ° と 3 本のチューブを接続します。エンドポイントを所有していないし、代わりに複数のカーボンナノ チューブ間に配置された、Y 分岐は固定されません。(青い矢印、図 1R) をスライドを実行することができます唯一の Y 字タイプです。図 1Rと1のように、2 つ個々 Y 接合 (図 1Sで青い矢印) の形成に非常に不安定な交差点の結果に沿って Y ジャンクションのスライディング。図 1Sとを重ね合わせて点線の白い線は、図 1Rで鋼管ネットワーク フラグメントの輪郭を表します。Y 接合の一部には、エンド端末 (図 1Tの黄色の矢印) が、時間をかけて、最終的に撤回 (図 1U) が所有しています。単一に V 字の変換、直管 2 つの線分の交点のピン止めのはずれ、V 形状を形成する管の 1 つの取り消しは図 1Vと1 wとで観察できます。図 1Xと1 年、それぞれ。
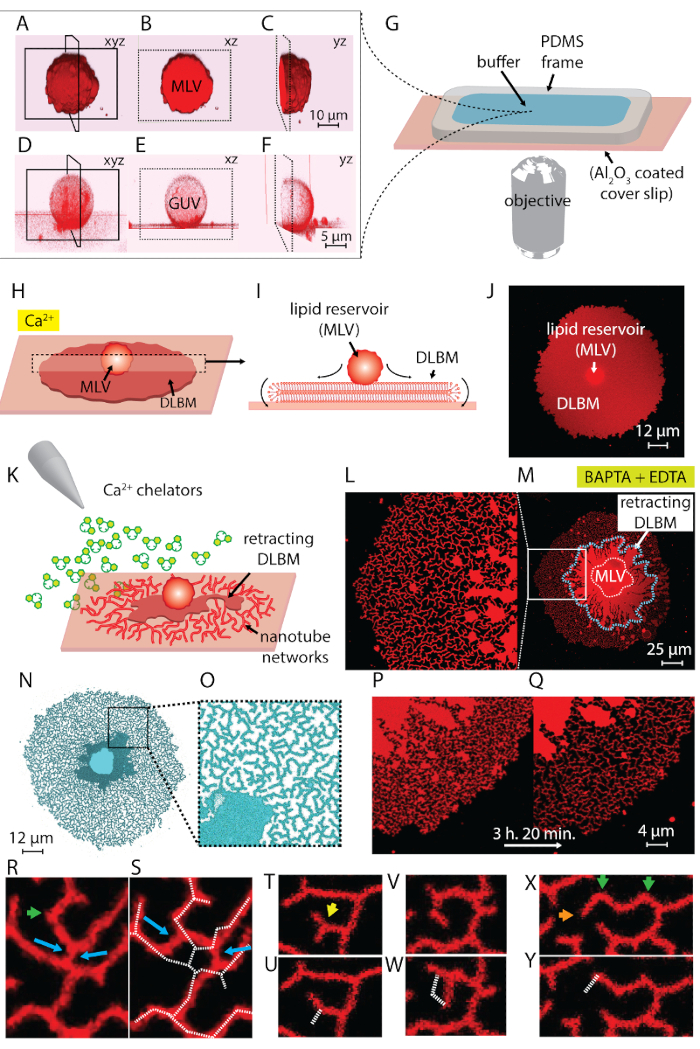
図 1: 小胞体のような管状ネットワークに堆積物の脂質の変換。(A ~ F)レーザー走査型共焦点顕微鏡の初期のサンプルでは、3 D で構築された小胞の。(A ~ C)多重脂質小胞 (MLV、脂質沈殿物) xyz、xz と yz 面、それぞれ。(D-F)巨大リポソーム (GUV) 膜ベシクルの同様の見解。膜の内側の部分は中空、制約が著しく広がりのため脂質の材料になります。したがって、このメソッドの便利な脂質貯蔵所、Mlv。 (G) バッファーおよび脂質の寄託先倒立顕微鏡に搭載観測室のイラストです。商工会議所は、PDMS から成るオープン ボリューム トップを提供、Al2O3コーティング coverslip の上に付着したフレーム。(H-J)Ca2 +の存在下で MLV の拡散現象のイラスト。(H) に Al2O3との接触、MLV は自発的に円形、ダブル脂質二分子膜 (DLBM) の形で します。(I) 周辺が転がり運動を実行、xz 平面に DLBM の回路図側面図。MLV (d = 5-15 μ m) と DLBM (厚さ 10 nm) は描画されませんスケール。(J)、共焦点顕微鏡像の最上位のビューから広がる DLBM。(K) を 1 つ含む Ca2 +キレート剤、広がりを阻害、MLV に、DLBM の収縮を引き起こして、脂質ナノチューブの形成につながるバッファーを交換するところ、このプロトコルの主な手順を説明します。(L Y)この方法で得られるカーボンナノ チューブ ネットワークの顕微鏡写真。(L) (M) の領域のクローズ アップは、フレームでマークされます。(L ・ M) の連続的な明るい赤地域 (また青色の点線でマーク m) DLBM を表します。(N と O) 鋼管ネットワークの電子顕微鏡写真は、コントラストを高める反転されます。(P および Q)3 時間 20 分 (R-Y) 代表的な鋼管再手配のコース上膜領域に管状の密度の低減の描写です。(R ・ S)スライディング、(T および U) ターニング ポイントの 1 つ、エンドポイント (V と W) 解除ピンニングの収縮によって V 接合部に Y 字の移行、V 字の撲滅。(X と Y)エンドポイントの撤回。この図の拡大版を表示するのにはここをクリックしてください。
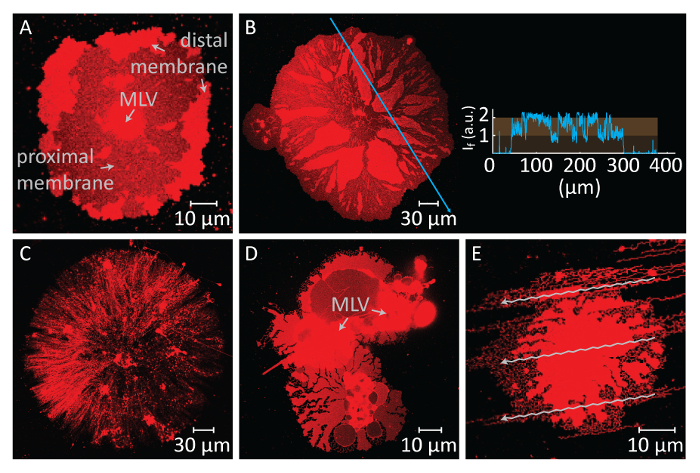
図 2: 潜在的な否定的な結果。(A と B)長いのため遠位の膜の破裂、バッファーの交換の前に待機時間。未破裂の遠位の膜貫通領域と比較すると暗い領域として、近位の膜が表示されます、破裂のエリアが表示されます。パネル B に挿入図は、電子顕微鏡写真の青い矢印に沿って光の強度を示しています。膜の破裂の領域の強度 (近位/シングル二層が表示されます) (遠位/ダブル二層) の未破裂の膜の強度の半分に対応します。(C) 乾燥脂質パッチの外観は、観察室からすべての液体の除去の結果として形成されました。(D と E)バッファーを介して自動ピペットの急速な交換によって膜の中断。(D) で、MLV は 2 Mlv、非円形、変形させた脂質パッチにつながるに分けています。(E) でキレート剤 HEPES バッファー強力な注入によって作成された (矢印) の流れのパターンは tubulated 膜構造に反映されます。この図の拡大版を表示するのにはここをクリックしてください。
ディスカッション
以下の議論で重要なステップ、可能な修正とプロトコルの制限事項を説明します。最初の重要なステップは、PDMS フレーム Al2O3表面への密着力が本質的に弱いことを考える、観察室の適切なアセンブリです。フレームが基板に正しく従っていない場合、内容は、観察室から水漏れして実験は停止に来る。適切なを妨げる要因は 1) (再利用) PDMS フレームの徹底的な洗浄が不足している、2) エアコン フレームと基板間に陥れた取得時折泡面とフレームのシールします。新しく準備されたまたは徹底的に掃除 PDMS フレームを使用する必要があります。イソプロパノール、DI 水ですすぎ、窒素で打撃は乾燥の順で各使用の前後に、フレームを洗浄する必要があります。クリーン ルーム環境で製造、使用まで密閉容器に保管するので、Al2O3表面を任意の前のクリーニングは不要です。Al2O3の両性性質のためそれはない、強く酸性又は塩基性の溶液にさらされる必要があります。個人設定のアクセシビリティによって、観測室の他の設計に用いることができます。この商工会議所の重要な機能は、オープン トップと枠材に関して使用されるソリューションとサンプルの不活性から液体サンプルに無料アクセスです。槽の寸法は、1 mL に 0.5 からボリュームを収容するべきで重要な要因でも。使用面は通常普通 coverslips (24 × 60 mm) なので、商工会議所のボリューム主フレームの幅によって決定されます。私たちの知る限りでは、サイズと通常このプロトコルで処理サンプル ボリュームを収容できる深さとスペーサーは市販されていません。我々 したがって製作の詳細とサンプル室フレームの組み立てにプロトコルのセクションを捧げています。
このプロトコルの他の重要なステップは、バッファー交換です。この手順での挑戦は、この交換を実行するために必要なタイミングです。インスタント、Al2O3基板との接触時に MLV の広がりは、DLBM の継続的な拡大は、実験 (図 2A、B) を終了その破裂につながります。したがって、広がりを常に監視する必要があります、タイムリーにバッファー交換を行う必要があります。交換をする必要があります最適なサイズ (直径 100-200 μ m) に達する膜パッチを可能にするため、拡散の初期化後余りにすぐに実行できません。その一方で、表面に連続的な接着は、破裂につながる高膜の緊張を引き起こします。したがって、拡散が中断されない場合、すべての膜パッチ最終的に破断。破裂のタイミングは、サイズと、MLV の内部構造および脂質のアクセシビリティそこに決まるので、パッチごとに異なります。したがって、交換の瞬間は、最適なサイズの非破裂のパッチが全体の人口の大半を表します timepoint に配置必要があります。バッファー交換の手順で別の挑戦は除去率とバッファーの追加です。最終的な膜構造 (図 2C E) に有害な影響を余りに急速にこの置換を実行します。基板上の液膜を離れることがなく Ca2 +-HEPES バッファーの過剰な抽出乾燥と不可逆変形膜パッチ (図 2C) で起因します。表面に液体の適切な量を維持すると、たとえ突然添加キレート剤 HEPES バッファーはまた膜構造物の摂動を発生します。図 2D、Eは力学中断膜パッチの一般的な外観を示します。全体的な形態の混乱では、(すなわち、残りエリアの管状の再構成が発生します) の最終的な構造の動的特性は必ずしも影響しません。ただし、変形構造物質的な変形を観察することは困難になります。たとえば、図 2DMLV、DLBM が引っ込む方向の方向を決定することは困難ででしょう。
プロトコルの 1 つの可能な変更は、使用される脂質です。主な焦点は哺乳類における小胞体組成を支配し、酵母の16リン脂質にされている (e.g.、ホスファチジルコリン (PC)、ホスファチジルエタノールアミン (PE) およびホスファチジルイノシトール (PI)。PC と PI の混合物の4を使用して元の実験を行った。示された結果、PC と麻薬の混合物および PE の派生物が使用されました。ただし、このプロトコルを使って得られる管状構造を作成するすべてではない任意の脂質組成を発見されています。その他の実験的調査の脂質混合物のいくつかを含む全心臓エキス、大豆豆抽出物極、極エシェリヒア属大腸菌の抽出、PC の様々 な比率で stearoyl-2-hydroxy-sn-glycero-3-phosphoinositol (Lyso-PI) との混合物および混合物様々 な比率で PC PE-PI Posphatidyl セリン (PS)。管状膜構造高い曲率を持つ個々 の脂質分子の特別な取り決めを必要とするので、観測された現象が脂質合成に固有であることが期待されます。
このプロトコルに適用されるもう一つの変更は、表面加工の方法です。ここでは、ALD は Al2O3コーティング coverslips を作製していました。これは、反応性スパッタ法4最初に報告された法によって異なります。これは代替表面工法が小胞体のようなするにつながることができますまだことを示します、表面素材の特異性に重要な制限の 1 つが表示されます。拡散のモードと接着の強さは静電相互作用、湿潤性、疎水性、表面粗さなどの要因に影響を及ぼす表面材料の特性に大きく依存。Al2O3表面が最適な接着強度を提供、脂質膜添付すること両方十分に強く二重の脂質二重膜として普及し、Ca2 +イオンの除去時に筒状のネットワークを形成をデタッチします。我々 は以前、SiO2、二重の脂質二重膜として、多重層膜ベシクルを広めるが、17のキレート剤の添加によって鋼管のネットワーク形成が認められずに同じ実験をテストしました。Al2O3だけデ-添付ファイルと管形成を観察またはプラズマ エッチング アル18。我々 の調査はこのような現象につながる貢献パラメーターがゼータの Al 及び Al2O3に近かったゼロ (mV)、表面の潜在的なおよび SiO2大幅マイナス。ホウケイ酸塩のゼータ電位は SiO219; に似てしたがって、ホウケイ酸塩の脂質膜の密着性は均等に強いかつ不可逆的です。実際、ホウケイ酸塩の表面に多重脂質貯留層の接触は通常即時破裂と単一脂質二重膜20の形成に します。このプロトコルに必要な Al2O3表面は容易にまたは商業的に利用できません。特注ガラス及び基板の専門メーカーからことができます、しかし、ように。薄膜製造装置、クリーン ルーム施設へアクセスすることを強くお勧めします。
ER のような管状ネットワーク2,10を作製する他の既存ボトムアップ メソッドを含むタンパク質だけでなく、化学エネルギーの入力 (例えば.、GTP と ATP)。七條と同僚2は、リン脂質と GTP 膜曲げタンパク質が小胞体に存在を混合することによってガラス coverslips体外に小胞体ネットワークの形成を報告しました。らによる作業10は、このような動的な管状ネットワークを分子モーターと ATP をエネルギー源として使用して作成する方法を示しています。示されるこのプロトコルは、エネルギーの膜タンパク質や有機物の加水分解は必要ありません。唯一の必要なコンポーネントは、固体基板やリン脂質です。精製とタンパク質の抽出は必要ではありません。このプロトコルは、構成分子の簡潔さについて、最も基本的なモデルを提供します。
この基本的な脂質ベース ER モデルを確立、ER 関連するコンポーネントを追加することによって複雑さを建物は興味のですシステムの個々 の影響の調査が可能になります。実際の小胞体ネットワークと同様に、モデルのチューブ、動的です。抱合とラベル付けされた膜蛋白質、または管状のネットワーク全体にわたって蛍光粒子の移行は、膜の動きの方向についての情報を与える可能性があります。カプセル化と変換と大町のコンテンツ転送の可能なマッピング中の DLBM と管の内側の蛍光液体のモニタリングは、別の焦点として役立つかもしれない。最後に、3 D 滑らかな ER モデルに向かってこのプロトコルに起因する 2D ER モデルからの移行は、カプセル化ハイドロゲルのアーキテクチャにおけるネットワークを通じて採用される可能性があります。
開示事項
著者が明らかに何もありません。
謝辞
スウェーデン チャルマース工科大学から教授アルド ・ Jesorka は、原稿の彼の非常に貴重なコメントを感謝いたします。この作品は 274433、UiO 研究ノルウェー議会 (Forskningsrådet) プロジェクトから得られる財政的支援を可能ならしめた: 生命科学融合環境、スウェーデン研究評議会 (Vetenskapsrådet) プロジェクト助成 2015年-04561,同様にスタートアップ資金は数理学研究院分子医学ノルウェー ・ オスロ大学で自然科学センターによって提供されます。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 洋ナシ形フラスコ 10 mL | Lenz Laborglasinstrumente | 3.0314.13 | 脂質混合物が調製されるもの |
| ハミルトン5 mLガラスシリンジ(P / N) | ハミルトン | P / N81520 | カーへのクロロホルムの転送用 |
| カスタム大型ハブ針ゲージ22 S | ハミルトン | 7748-18 | 3で指定されたシリンジ用の取り外し可能な針 |
| ミルトン250&マイクロ;Lガラスシリンジ | ハミルトン | 7639-01 | フラスコへのクロロホルムの脂質の移動に使用 |
| 大型ハブゲージ 22 S | ハミルトン | 7780-03 | シリンジ用の取り外し可能な針 指定 行 |
| 5 ハミルトン 50 & マイクロ;Lガラスシリンジ | ハミルトン | 7637-01 | フラスコへの蛍光色素結合脂質の移送に使用 |
| スモールハブゲージ 22 S | ハミルトン | 7770-01 | シリンジ用取り外し可能な針 7列目で指定されたシリンジ用 |
| 無水クロロホルム (≥99%) | Sigma-Aldrich | 288306 | 混合物を合計300μに完成させるために使用されます。L |
| 大豆L-αホスファチジルコリン脂質(大豆PC) | Avanti Polar Lipids Inc | 441601 | 、全組成/混合物の69%に寄与するリン脂質種 |
| 1,2-ジオレオイル-sn-グリセロ-3-ホスホエタノールアミン(DOPE) | Avanti Polar Lipids Inc | 850725 | 脂質組成/混合物の30%に寄与するリン脂質種L |
| -&α;ホスファチジルイノシトール脂質(大豆PI) | Avanti Polar Lipids Inc | 840044 | 脂質組成/混合物の30%に寄与する代替リン脂質種(元の記事BilalおよびGözen, Biomaterials Science, 2017) |
| Texas Red 1,2-dihexadecanoyl-sn-glycero-3-phosphoethanolamine,triethylammonium salt (Texas Red DHPE) | Invitrogen (Thermo Fisher Scientific) | T1395MP | 蛍光脂質複合体、脂質組成/混合物の1% |
| Digital Dry Baths/Block Heaters | Thermo Fischer | 88870006 | を下げるためにグリセロールを温める |
| 生物学用グリセロール (≥99%) | Sigma Life Science | G5516 | 脂質調製 |
| 用<強>PBSバッファー (pH = 7.8);下の17行目から21行目の成分 | 脂質懸濁液の調製に使用 | ||
| TRIZMAベース、一次標準、およびバッファー (≥99%) | シグマライフサイエンス | T1503 | PBSバッファーの調製に使用 |
| リン酸カリウム三塩基性、試薬グレード(≥98%) (K3PO4) | Sigma-Aldrich | P5629 | PBS緩衝成分 |
| 硫酸マグネシウム七水和物、BioUltra (≥99.5%) KT (MgSO47H2O) | Sigma Life Science | 63138 | PBS 緩衝成分 |
| リン酸カリウム一塩基性、無水、流動性、Redi-Dri、ACS (KH2PO4) | Sigma-Aldrich | 795488 | PBS 緩衝成分 |
| エチレンジアミン四酢酸二ナトリウム塩二水和物 ACS 試薬、 99.0-101.0%(Na2EDTA) | Sigma-Aldrich | E4884 | PBSおよびキレート剤-HEPES緩衝成分 |
| 洗浄機USC-TH | VWR | 142-0084 | 再水和脂質の超音波処理 |
| ロータリーエバポレーター - Büchiロータリーエバポレーター R-200型 | シグマ | Z626797 | クロロホルムの蒸発に |
| 圧力計 - 真空レギュレータ IRV-100 | SMC | IRV10/20 | 脂質脱水時の圧力値制御用 |
| HEPES-buffer (pH=7.8); 以下の26-27 | 脂質の再水和に使用します。内容:10 mM HEPESと100 m NaClを超純脱イオン水で希釈 | ||
| nbsp;HEPES ≥99.5% (滴定) | Sigma Life Science | H3375 | HEPES 緩衝成分 |
| 分子生物学用塩化ナトリウム、DNase、RNase、およびプロテアーゼ、検出なし、≥98% (滴定) (NaCl) | Sigma Life Science | S3014 | HEPES 緩衝液 |
| 成分<強>カルシウム HEPES 緩衝液 (pH=7.8); 下の 29 | 脂質の拡散に有効成分。内容:10 mM HEPES、100 mM NaCl、4 mM CaCl2超純脱イオン水で希釈 | ||
| 塩化カルシウム無水、BioReagent、昆虫細胞培養に適した、植物細胞培養に適した、≥96.0% (CaCl2) | Sigma Life Science | C5670 | カルシウム-HEPES緩衝液 |
| <強>キレート剤-HEPES緩衝液(pH=7.8)の調製に;下の31 | 、管状ネットワークの形成を促進するために使用されます。 内容:10 mM HEPES、100 mM NaCl、10 mM EDTA、および7 mM BAPTAを超純脱イオン水で希釈& | ||
| nbsp;1,2-ビス(2-アミノフェノキシ)エタン-N,N,N′,N′-四酢酸四ナトリウム塩 ≥95% (HPLC) (BAPTA-Na4) | Sigma Life Science | 14513 | キレート剤-HEPES 緩衝剤 |
| 水酸化ナトリウム | シグマ | 30620 | 基本溶液は、緩衝液のpHを調整するために使用されるpH |
| メーターaccumet™AE150 pH | フィッシャーサイエンティフィック | 1544693 | すべての緩衝液のpHを測定するために使用されます |
| ガラスシャーレ | VWR | HECH41042012 | 6 cm、PDMSシート |
| 水酸化カリウムACS試薬の製造に使用されます。85%、ペレット(KOH) | Sigma-Aldrich | 221473 | PDMSシートの製造のためのガラスシャーレ洗浄用のKOH溶液を作るには |
| イソプロパノールプリマレン 99.5% | Antibac AS | 600079 | KOH溶液成分 |
| 加熱乾燥オーブン - venticell | MMM Medcenter Einrichtungen GmbH | MC000714 | シラン化後のガラスシャーレの乾燥およびPDMS |
| ジクロロジメチルシランの硬化用 ≥99.5% | シグマ・アルドリッチ | 440272 | PDMSシートを調製したガラスシャーレのシラン化に使用 |
| 真空ポンプ | コール・パーマー | EW-79202-05 | デシケーターに接続 |
| シルガード184シリコーンエラストマー硬化剤 | ダウコーニング | 24236-10 | PDMSソリューションを作るためのキット |
| シルガード184シリコーンエラストマーベース | |||
| 使い捨てメス | スワンモートン | 11798343 | PDMS |
| カバーを切る | メンゼル -Gläser | MEZ102460 | 24x60 mm. Al2O3の薄膜を成膜するために使用される |
| Beneq | TFS200 (モデル番号) | 2O3の薄膜を顕微鏡カバーガラス | |
| エリプソメータに | J.A.ウーラン(株) | α-SE(型式名) | ガラス表面に蒸着した膜の厚さをシャルカテレートするシステム |
| レーザー走査型共焦点 顕微鏡 | ライカマイクロシステムズ | ライカTCS SP8 X | 実験の可視化に使用した顕微鏡 |
| 対物レンズ 40倍、1.3 NA | ライカマイクロシステムズ | 1550635 | 実験の可視化に使用 |
| 白色光レーザー光源 | ライカマイクロシステム | ライカTCS SP8 X | 膜蛍光色素の励起に |
参考文献
- Chen, S., Novick, P., Ferro-Novick, S. ER structure and function. Current Opinion in Cell Biology. 25 (4), 428-433 (2013).
- Powers, R. E., Wang, S., Liu, T. Y., Rapoport, T. A. Reconstitution of the tubular endoplasmic reticulum network with purified components. Nature. 543 (7644), 257-260 (2017).
- Pendin, D., McNew, J. A., Daga, A. Balancing ER dynamics: Shaping, bending, severing, and mending membranes. Current Opinion in Cell Biology. 23 (4), 435-442 (2011).
- Bilal, T., Gözen, I. Formation and dynamics of endoplasmic reticulum-like lipid nanotube networks. Biomaterials Science. 5 (7), 1256-1264 (2017).
- Shibata, Y., et al. Mechanisms determining the morphology of the peripheral ER. Cell. 143 (5), 774-788 (2010).
- Ozcan, L., Tabas, I. Role of endoplasmic reticulum stress in metabolic disease and other disorders. Annual Review of Medicine. 63, 317-328 (2012).
- Yamanaka, T., Nukina, N. ER dynamics and derangement in neurological diseases. Frontiers in Neuroscience. 12, (2018).
- Taalab, Y. M., et al. Mechanisms of disordered neurodegenerative function: Concepts and facts about the different roles of the protein kinase RNA-like endoplasmic reticulum kinase (PERK). Reviews in the Neurosciences. , (2018).
- Shemesh, T., et al. A model for the generation and interconversion of ER morphologies. Proceedings of the National Academy of Sciences of the United States of America. 111 (49), 5243-5251 (2014).
- Bouxsein, N. F., Carroll-Portillo, A., Bachand, M., Sasaki, D. Y., Bachand, G. D. A continuous network of lipid nanotubes fabricated from the gliding motility of kinesin powered microtubule filaments. Langmuir. 29 (9), 2992-2999 (2013).
- Sackmann, E. Endoplasmatic reticulum shaping by generic mechanisms and protein-induced spontaneous curvature. Advances in Colloid and Interface Science. 208, 153-160 (2014).
- Jesorka, A., et al. Generation of phospholipid vesicle-nanotube networks and transport of molecules therein. Nature Protocols. 6, 791(2011).
- Hook, D. A., Olhausen, J. A., Krim, J., Dugger, M. T. Evaluation of Oxygen Plasma and UV Ozone Methods for Cleaning of Occluded Areas in MEMS Devices. Journal of Microelectromechanical Systems. 19 (6), 1292-1298 (2010).
- Gözen, I., et al. Fractal avalanche ruptures in biological membranes. Nature Materials. 9 (11), 908-912 (2010).
- Lobovkina, T., Dommersnes, P., Joanny, J. -F., Hurtig, J., Orwar, O. Zipper Dynamics of Surfactant Nanotube Y Junctions. Phys Rev Lett. 97, (2006).
- van Meer, G., Voelker, D. R., Feigenson, G. W. Membrane lipids: where they are and how they behave. Nature Reviews Molecular Cell Biology. 9 (2), 112-124 (2008).
- Gözen, I., et al. Repair of large area pores in supported double bilayers. Soft Matter. 9 (10), 2787-2792 (2013).
- Gözen, I., et al. Thermal migration of molecular lipid films as a contactless fabrication strategy for lipid nanotube networks. Lab on a Chip. 13 (19), 3822-3826 (2013).
- Sides, P. J., Hoggard, J. D. Measurement of the Zeta Potential of Planar Solid Surfaces by Means of a Rotating Disk. Langmuir. 20 (26), 11493-11498 (2004).
- Nissen, J., Jacobs, K., Rädler, J. O. Interface Dynamics of Lipid Membrane Spreading on Solid Surfaces. Physical Review Letters. 86 (9), 1904-1907 (2001).
再版と許可
