ナノポアシーケンシングは、遠隔地でのコスト効率の高いシーケンシングと、リソースの乏しい設定を可能にする新しいテクノロジーです。ここでは、このような条件に適合する全血からの mRNAs の配列決定のためのプロトコルを提示する。
この記事について
サマリー
要約
リモートの場所とリソースの優先順位の低い設定では、独自の課題があります。このような状況では、ナノポアシーケンスがうまく利用され、最近のエボラウイルスの流行時に西アフリカに配備され、この可能性を浮き彫りにしました。その実用的な利点 (低コスト、機器の輸送と使用の容易さ) に加えて、この技術はまた、第二世代のシーケンシングアプローチ、特に非常に長い読み取り長、直接配列する能力に勝る基本的な利点を提供しますRNA、およびデータのリアルタイムの可用性。Raw 読み取り精度は、この技術の主な制限を表す他のシーケンスプラットフォームと比べて低くなります。ただし、これは、生成される読み取り深度が高いことによって部分的に軽減されます。ここでは、ebolaviruses の細胞受容体であるニーマンピック C1 の mRNAs エンコーディングのシーケンシングのためのフィールド互換プロトコルを提示します。このプロトコルは、動物の血液サンプルからの RNA の抽出を含み、その後、標的濃縮、バーコード、ライブラリ調製、および配列決定のための RT-PCR が実行され、他の DNA または RNA 標的との使用に容易に適合することができる。
概要
シーケンシングは、生物学的および生物医学的研究において強力で重要なツールです。ゲノム、遺伝的変異、RNA 発現プロファイルの解析が可能となり、ヒトや動物の疾患の調査においても重要な役割を果たしています (1,2)。サンガーシーケンシングは、DNA シーケンシングに利用可能な最も古い方法の1つであり、今日でも日常的に使用されており、分子生物学のコーナーストーンとなっています。過去50年にわたって、この技術は 1000 nt 以上の読み取り長と 99.999%1の高精度を達成するために改善されました。しかし、サンガーシーケンシングにも限界があります。この方法でより大きなサンプルセットまたはゲノム全体の分析をシーケンシングするには、時間がかかり、コストが1,3です。454 pyrosequencing やイルミナテクノロジーなどの第二世代 (次世代型) の DNA シーケンシング手法により、過去10年間での順序付けに必要なコストと作業負荷を大幅に削減でき、その結果、利用可能な生物学的配列情報の量4.それにもかかわらず、これらの第二世代技術を使用して実行される個々のシーケンスは高価であり、必要な機器がかさばると壊れやすい (サンガーシーケンシングデバイスに似ている) ため、フィールド条件下でのシーケンシングは困難であり、多くの場合特別な訓練を受けた人員によって目盛りが付き、修理される。また、第二世代技術の多くは読み取り長がかなり限られているため、これらのデータの下流のバイオインフォマティクス解析が困難になることがよくあります。
ポケットサイズのナノポアシーケンスデバイス (「材料表」を参照) を使用した第3世代のシーケンシングは、これらの確立されたシーケンスプラットフォームの代替手段として役立ちます。これらのデバイスでは、一本鎖 DNA または RNA 分子が、センサーによって測定されるイオン電流と同時にナノポアを通過します (図 1)。ストランドがナノポアを横断するにつれて、任意の所与の時点において細孔に存在するヌクレオチドによる電流の変調が検出され、そしてヌクレオチド配列5へと計算的に後方翻訳される。この動作原理のため、ナノポアシーケンシングでは、非常に長い読み取り (1 x 10⁶ヌクレオチド6に近い) の生成と、リアルタイムでのシーケンシング・データの分析の両方が可能になります。バーコードは、試料中の核酸に定義されたヌクレオチド配列を付着させることによって可能であり、これにより単一の配列決定の実行で複数のサンプルの分析が可能になり、サンプルのスループットが向上し、サンプルコストが低下します。高い可搬性と使いやすさにより、東アフリカにおける最近のエボラウイルス疾患の流行において現場で使用されてきたナノポアシーケンシング装置は、遠隔地への迅速な展開への適合性を強調する7,8.
ここでは、ebolaviruses などの filoviruses のための偏性エントリ受容体であるニーマン・ピック C1 (NPC1) タンパク質の mRNA エンコーディングのシーケンシングのための詳細なフィールド互換プロトコルについて説明し、種の感受性を制限することが示されています。これらのウイルス9,10.このプロトコルは、血液サンプルからの全 RNA の抽出、RT-PCR による NPC1 mRNA の特異的増幅、サンプルのバーコード、ライブラリ調製およびナノポア配列決定装置によるシーケンシングを包含する。データ分析はスペースの制限のために議論することができませんが、いくつかの基本的な方向は代表結果で提供されます。しかし、興味のある読者は、我々が使用したワークフローのより詳細な説明のために、以前のパブリケーション11と呼ばれ、他の人によっての出版物について詳細な情報を求めて12、13、14このワークフローで使用する解析ツールについて。
プロトコル
サンプルは、Njala 大学機関審査委員会 (NUIRB) プロトコル no. に続いて収集されました。IRB00008861/FWA00018924.
1. 血液サンプルからの RNA 抽出
- 6 mL の DNA/RNA 安定化試薬 (材料表参照) を事前に入力し、5回反転させて採血チューブに分析する種から全血 3 ml を採取します。4° c で1ヶ月までの血液サンプルを保管してください。
- 採血チューブの内容物を 50 mL コレクションチューブに移し、120μ l のプロテイナーゼ K を加え、5秒間ボルテックスで混ぜる。室温で30分間サンプルをインキュベートします。
- 5 s のための混合物および渦に isopropanol の9つの mL を加えなさい。
- RNA 精製スピンカラム (材料の表を参照) の上に貯水池を置き、アセンブリを真空マニホールドに置きます (「材料の表」を参照)。リザーバにサンプル混合物を追加します。すべての液体がカラムを通過するまで真空を適用します。
- あるいは、真空マニホールドが利用できない場合には、遠心分離ステップ間で廃棄されたフロースルーを用いて 12000 x gで 30 s のための繰り返し遠心分離によって700μ l 部分のカラムを通過することができる。しかし、これはおよそ26の遠心分離ステップを必要とする。
- RNA 精製スピンカラムを回収チューブに入れ、400μ l の DNA/RNA 調製バッファーを追加します (「材料の表」を参照)。30秒間 12000 x gで遠心分離し、フロースルーを廃棄します。
- 400μ l の DNA/RNA 洗浄緩衝液 (材料表参照) をカラムに加え、12000 x gで30秒間遠心分離し、フロースルーを廃棄する。
- 75μ l の DNase I (1 U/μ l) (材料表参照) と DNA 分解バッファー (材料表参照) を混ぜ、混合物をカラムに追加します。室温で15分間インキュベートします。
- 400μ l の DNA/RNA 調製バッファーをカラムに添加し、30秒間 12000 x gで遠心分離します。フロースルーを破棄します。
- 700μ l の DNA/RNA 洗浄バッファーでカラムを洗浄し、30秒間 12000 x gで遠心分離します。フロースルーを破棄します。
- ステップ1.9 を400μ l の DNA/RNA 洗浄バッファーで繰り返し、12000 x gで2分間遠心分離して、残留洗浄バッファーをすべて除去し、カラムを乾燥させます。コレクションチューブからカラムを外すときは、コレクションチューブ内のバッファでカラムの裏側を濡らしないようにしてください。
-
新しい 1.5 mL マイクロ遠心チューブにカラムを置き、70μ l のヌクレアーゼフリーの水を加えます。室温で1分間インキュベートし、12000 x gで30秒間遠心分離します。さらに使用する (またはすぐに使用する) まで、-80 ° c で RNA を保存します。
- オプション:RNA を定量化するために、アリコートを取り、UV 分光光度計 (材料の表を参照) を使用して濃度を決定します。
2. NPC1 mRNA を cDNA に逆転写
- 0.2 mL の反応管で、8μ l の鋳型 RNA (1 pg から2.5 μ g の RNA) と、それぞれ10μ l の DNase バッファーおよび DNase 酵素 (材料の表を参照) を加えます。37° c で2分間インキュベートします。その後、一時的に反応を遠心分離し、氷上に置きます。
- 4μ l の逆転写酵素のマスターミックス (材料の表を参照) とヌクレアーゼフリーの水6μ l を反応チューブに加えて、やさしく混ぜる。Thermocycler の反応を25° c で10分間 (プライマーアニーリング用)、50° c で10分間インキュベートします (RNA の逆転写用)。酵素を失活させるには、85° c で5分間インキュベートします。
- CDNA を新しい 1.5 mL マイクロ遠心チューブに移し、さらに使用する (またはすぐに使用する) まで-80 ° c で保管してください。
3. NPC1 オープンリーディングフレームの増幅
-
最初の増幅ステップ
- タッチダウン PCR15,16を設定して、50μ l 反応中の適切な反応バッファーを使用して、NPC1 cDNA をプライマーセット 1 (表 1参照) で増幅し、ホットスタート高忠実度の DNA ポリメラーゼ (材料の表を参照)1つのμ l のテンプレートが付いている容積。可能であれば、氷または4° c の涼しいブロックで反応を設定します。
- 98° c で 30 s の最初の変性ステップで thermocycler で反応をインキュベートし、続いて10サイクルで98° c での変性を10回、65° c で20秒間のプライマーアニーリング、1サイクル当たり0.5 ° c にて温度を下げ、72° c での伸長を行います。その後、98° c で 10 s、60° c で20秒、72° c で1分、次いで72° c で5分間の最終伸長ステップを使用して、さらに20サイクルを実行します。
-
磁気ビーズを用いた PCR 精製
- 50μ l の PCR 産物を 1.5 mL DNA-低結合反応チューブ (材料表参照) に移します。再懸濁磁気ビーズ (材料表参照) をボルテックスし、PCR 反応に50μ l ビーズを加えます。よく混ぜる。回転ミキサー (材料のテーブルを参照) のサンプルを室温で5分 (15 の rpm で) インキュベートして下さい。
- サンプルを簡単にスピンダウンし、1.5 mL マイクロ遠心チューブを磁気ラック (材料の表を参照) に置いて磁気ビーズをペレットにします。上清が完全に明らかになるまで待ってから、次のステップに進みます。
- ビードペレットを乱すことなく上清を吸引し、廃棄する。
- ピペット200μ l の 70% エタノールを反応管に入れ、30秒間インキュベートします。ペレットを乱すことなくエタノールを吸引し、廃棄します。合計2回の洗浄を繰り返します。エタノールが残っていないことを確認してください。まず、より大きなピペット (例えば、1000μ l) で吸引し、次いでより小さいピペット (例えば10μ l) で残りのエタノール液滴を除去することが必要であり得る。
- ペレットを室温で1分間空気乾燥させます。
- 磁気ラックから反応管を取り外し、再懸濁の30μ l にペレットを取り出し、室温で2分間インキュベートします。
- 反応管を磁気ラックに戻し、ビーズが完全にペレットになるまで待ちます。
- ペレットを乱すことなく、上清を除去し、新しい 1.5 mL 反応管に移します.
-
入れ子になった PCR によるバーコードアダプタの追加
- 5つの反応バッファーとプライマー・セット2を使用して、ホット・スタートの高フィデリティ DNA ポリメラーゼを使用して50μ l のタッチダウン PCR をセットアップします (表 1を参照)。このセットのプライマーは、ステップ 3.2 (プライマーセット1配列の内部) で生成された PCR 産物の結合を可能にする標的配列特異的領域と、その後のバーコード PCR 反応においてターゲットとして使用されるアダプタ配列 (cf. セクション 4) からなる。可能であれば、氷または4° c の涼しいブロックで反応を設定します。セクション3.2 で調製した精製 PCR 産物の1μ l を鋳型として使用する。
- 98° c で 30 s の最初の変性工程を使用して thermocycler で反応混合物をインキュベートし、続いて10サイクルで98° c で変性させ、65° c で 20 s のプライマーアニーリングを行い、サイクル当たり0.5 ° c で温度を下げます。、72° c で1分間伸長します。その後、98° c で 10 s、71° c で20秒、72° c で1分、次いで72° c で5分間の最終伸長工程で、さらに30サイクルの反応をインキュベートします。
- セクション3.2 に記載されている磁気ビーズを使用して PCR 産物をクリーンアップします。
4. NPC1 アンプリコンのバーコード
- セクション3で生成された各 PCR 産物について、50μ l の Taq DNA ポリメラーゼバーコード (材料表参照)、pcr バーコードキットのバーコードプライマーのうち2μ l を使用して、0.2 mL 反応チューブ内で、1つの pcr 反応を設定します (材料の表をご覧ください 及び表 2)、ステップ3.3.2 からの精製 PCR 産物を鋳型として1μ l とした。100μ l の最終的な容積を得るために47μ l のヌクレアーゼの自由な水を加えなさい。
- 最初の変性として、95° c で3分間の thermocycler で反応をインキュベートします。その後、95° c で15秒、62° c で15秒、65° c で1.5 分、15サイクルを実行します。最終的な伸びとして、反応を65° c で5分間インキュベートします。
- 3.2 に記載されているように PCR 産物を精製しますが、100μ l の磁気ビーズを使用し、30μ l のヌクレアーゼフリーの水で溶出します。
- 可能であれば、UV 分光光度計を使用してサンプルを定量化する。
5. ライブラリの準備
- 0.2 mL の反応チューブに、各サンプルから等量のバーコード DNA を組み合わせて、45μ l の量の DNA を合計1μ g (必要に応じて、ヌクレアーゼフリーの水を追加) します。UV 分光光度計が使用できない場合は、各サンプルの同じ体積を使用します。DA-テーリングには、7μ l の最終調製反応バッファー (資料表参照)、3μ l のエンド・ prep 酵素混合 (材料表参照)、およびヌクレアーゼフリー水を5μ l 追加します。チューブをフリックしてやさしく混ぜます。
- 反応を20° c で5分間インキュベートし、続いて65° c で5分 thermocycler します。
- セクション3.2 で説明されているように反応生成物を精製しますが、60μ l の磁気ビーズを使用し、25μ l のヌクレアーゼフリーの水で溶出します。
- 任意: 紫外線分光光度計を使用してサンプルの集中を定量化するために1つのμ l を取る。合計金額は 700 ng 以上である必要があります。
- ステップ5.3 の精製された DNA の22.5 μ l を2.5 μ l の1D2 アダプター (材料の表を参照) と、新しい 1.5 mL DNA-低結合反応チューブの25μ l (材料の表を参照) で結合し、フリックで軽く混合し、短くスピンします。ダウン。室温で10分間インキュベートします。
- セクション3.2 に記載されているように反応生成物を精製し、20μ l の磁気ビーズを使用し、DNA 結合のためのインキュベーション時間を10分に増加させ、それぞれ 1 mL のエタノールで2回の洗浄ステップを行い、46μ l のヌクレアーゼフリーの水で溶出する。
- ステップ5.6 からの反応生成物の45μ l (材料の表を参照) と50μ l のバーコード・アダプター・ミックスを、DNA 低結合反応管で組み合わせます。フリックで優しく混合し、室温で10分間インキュベートします。
- セクション3.2 に記載されているように反応生成物を精製し、40μ l の磁気ビーズを使用するが、140μ l の ABB バッファー (材料の表を参照) をエタノールの代わりに2つの洗浄ステップを行い、磁気ラックで再懸濁とペレットでビーズを切断する。溶出バッファーを15μ l で溶出します (材料表参照)。ビーズへの DNA の初期結合、および溶出工程のインキュベーション時間を10分に増やします。得られた製品を氷上で、または使用するまで4° c で保管してください。
6. フローセルの品質チェック
- 使用前にフローセルの品質チェックを実行します。このため、シーケンスデバイスをホストコンピュータに接続し、ソフトウェアを開きます。
- シーケンスデバイスにフローセル (材料のテーブルを参照) を挿入し、セレクターボックスからフローセルタイプを選択し、[使用可能] をクリックして確認します。
- 画面下部の [フローセルを確認] をクリックし、正しいフローセルタイプを選択します。
- [テストの開始] をクリックして品質チェックを開始します。フローセルを使用できるようにするには、最小で800のアクティブナノポアを合計する必要があります。
7. フローセルのロードとシーケンス実行の開始
- 時計回りの方向にスライドして、プライミングポートカバーを開きます。P1000 ピペットを200μ l にセットし、チップをプライミングポートに挿入します。チップをプライミングポートに保持したまま230μ l に調整し、20-30 μ l のバッファーを作成して気泡を除去します。
- 新しい 1.5 mL の DNA-低結合反応管では、576μ l の RBF バッファー (材料のテーブルを参照) を組み合わせることによりプライミングミックスを調製し、624μ l のヌクレアーゼフリーの水を使用します。
- 慎重に準備されたプライミングミックスの800μ l をプライミングポートに入れ、5分待ってください。サンプルポートカバーを持ち上げ、準備したプライミングミックスの200μ l をプライミングポートに追加します。
- 新しい、きれいな 1.5 mL DNA の低結合の反作用の管への RBF のバッファのピペット35のμ l。ピペットで LLB ビーズ (材料表参照) を十分に混合し、25.5 μ l のビーズを RBF バッファーに加えます。ステップ5.8 から2.5 μ l のヌクレアーゼフリーの水と12μ l の DNA ライブラリを追加し、ピペッティングによって混合します。
- サンプルポートを介してフローセルに低速の滴下方法で試料混合物の75μ l を加えます。
- サンプルポートカバーを交換し、プライミングポートを閉じて、シーケンスデバイスの蓋を閉じます。
- ソフトウェア内で、フローセルがまだ使用可能であることを確認し、新しい実験を開き、使用するキットを選択して実行パラメータを設定します。ライブベースの呼び出しを選択します。シーケンスの実行を開始するには、[実験の開始] をクリックします。十分な実験データが収集されるまで、シーケンス実行を続行します。
結果
提示されたプロトコールを試験する代表的な実験で、5種の動物種の10個の異なる血液サンプルから RNA を抽出した (すなわち、個体数 (ヤギ、ヒツジ、ブタ、イヌ、ウシ)) (表 3)。RNA の収率および品質は、以下の抽出は、サンプルの取り扱いおよび保存の違いにより、大きく変化する可能性があります。我々の代表的な実験では、RNA 濃度を 43 ng から 543 ng/μ l で観察しました (表 3)。また、RT-PCR による増幅の後、NPC-1 PCR 産物のゲル分析は様々な結果を示しました (図 2)、サンプル BC01 および BC02 (両方のヤギ) に対して著しく弱いバンドです。これらの違いは、サンプル品質の違いによって引き起こされた可能性が最も高いが、異なる種の NPC1 遺伝子に対するプライマー結合の違いによる PCR 効能の違いは除外できない。しかしながら、これらの収率および/または増幅効率の差は、全体的なシーケンシング結果に顕著に影響を与えなかった。さらに、追加の非特異的 PCR 産物がサンプル BC10 (ウシ) において発生した。サンガーシーケンシングとは対照的に、このような非特異製品は、データ分析の一部として得られた読み取りを参照シーケンスにマッピングする際に廃棄されるため、ナノポアシーケンシングの結果に悪影響を及ぼすことはありません。
各シーケンシングを実行する前に、使用するフローセルの品質チェックを強く推奨し、最小要件として800の合計細孔を必要とします。私たちの代表的な実験では、この品質チェックは、シーケンシングに使用できる1102の細孔を返しました。データはリアルタイムで提供され、すぐに分析できるので、シーケンス実行の長さは、個々のアプリケーションに合わせて調整することができます (つまり、目的の分析のために十分なシーケンスデータが生成されるまで)。実験では、シーケンスの実行は通常、一晩で行われ、我々の代表的な実験の場合には、このような14時間の実行中に約140万の読み取りを得ました。
実行するデータ分析のタイプに応じて、取得した読み取りのサブセットのみを処理することをお勧めします。我々の代表的な実験の場合、1万の読み取りのサブセットがさらなる分析のために選択された。この目的のために、シーケンス実行中に生成された fastq ファイルは、Ubuntu 18.04 LTS 環境でさらに処理し、flexbar v 3.0.3 を使用して、ナノポアシーケンスデータの逆多重化に最適化したパラメータを demultiplexed しています (バーコード・テール長300, バーコードエラーレート 0.2, バーコードギャップ-ペナルティ-1)12.逆多重化の後、読み取りマッピングとコンセンサス生成はいくつかの異なるツールを使用して行うことができますが、ナノポアシーケンスのバイオインフォマティクスの側面についての詳細な議論は、この原稿の範囲を超えています。しかし、我々の代表的な結果の場合、参照配列への読み取りマッピングは Geneious 10.2.3 を用いて行った。分析された1万読み取りのうち、5457は1750と2000ヌクレオチドの間の長さを示し、これはワークフローの一部として増幅された PCR フラグメントの予想サイズと一致します (1769 nt,図 3)。読み取りの長さ分布における追加のピークは、250から500ヌクレオチドの間で観察され、非特異的 PCR 産物に起因する可能性がある。読み取りの逆多重化は、分析された10個のバーコード/サンプルのうちの1つへの読み取りの 87.6% の代入を可能にしました (図 4)。各バーコードの demultiplexed 読み取りの割合は、バーコード10のバーコード1から 16.9% の範囲で 3.4% でした。ただし、読み取りの総数が多いため、これらの低量のバーコードデータセットでも読み取り深度が高いという意味のあるコンセンサス呼び出しが可能になりました。実際に、ソートされた読み取りを NPC1 の参照シーケンスにマッピングすると、参照にマッピングされた読み取りマップの 31.7% (バーコード 2) と 100% (バーコード7および 8) の間で、各サンプルについて、90以上の読み取り深度を読み取ります。これは、ごくわずかなエラー率で確実なコンセンサスベースコールを可能にするのに十分です。

図 1: ナノポア技術を用いた DNA 配列の模式的表現一本鎖 DNA 分子は、電気抵抗膜に埋め込まれたナノポアを通過し、ヘリカーゼは遷移速度を調節します。イオン電流は、同時に細孔を通過し、連続的に測定されます。細孔中に存在するヌクレオチドによって引き起こされる電流の変調が検出され、DNA 鎖のヌクレオチド配列に計算的に戻る。この図の大規模なバージョンを表示するには、ここをクリックしてください。
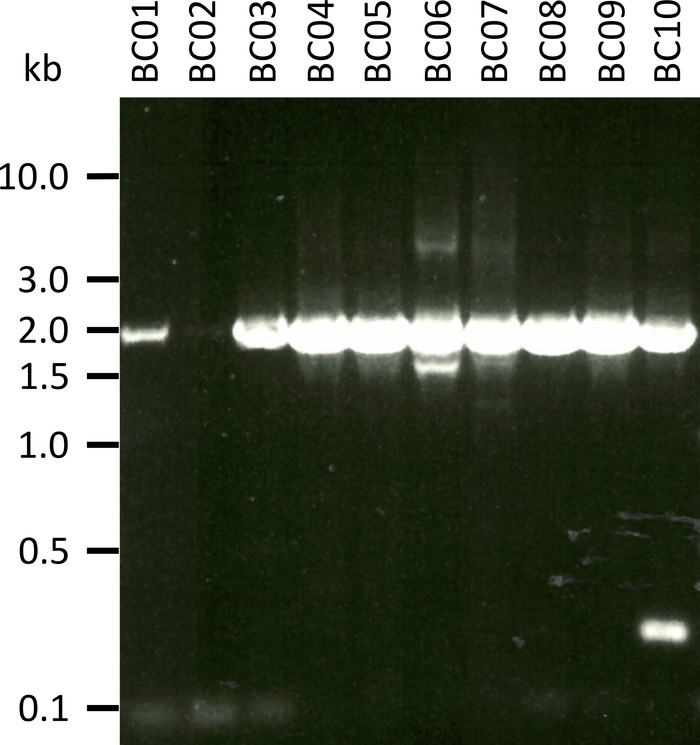
図 2: ニーマン・ピック C1 の PCR 産物を mRNA から増幅する。mRNA はヤギ (BC01 および 02)、ヒツジ (BC03 および 04)、ブタ (BC05 および 06)、イヌ (BC07 および 08)、およびウシ (BC09 および 10) から単離された。入れ子になった PCR 産物を1x テコンドーバッファーで 0.8% アガロースゲルで分離した (50x バッファーから調製: 242.28 g のトリスベース、57.1 mL の氷酢酸、100 mL を 0.5 M、dH を 1 L に、pH を8.0 に調整した) 45 V で 100 min で染色し、Sybr 安全。この図の大規模なバージョンを表示するには、ここをクリックしてください。
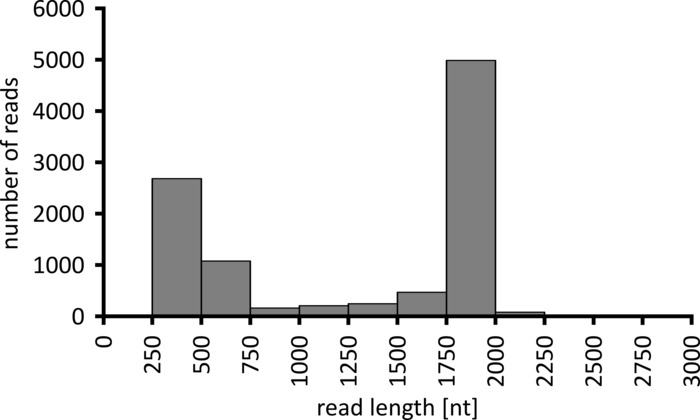
図 3: 代表的な実験から1万の読み取り長分布。指定された読み取り長間隔を持つ読み取りの数が示されます。この図の大規模なバージョンを表示するには、ここをクリックしてください。
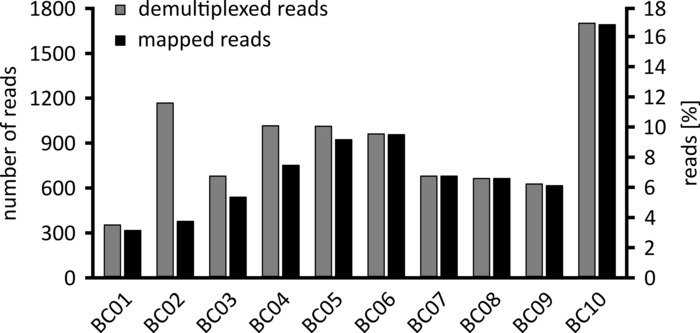
図 4: 逆多重化後の読み取りの分布バーコードごとに、demultiplexed (グレー) とマップされた読み取り (黒) の数と割合が示される。この図の大規模なバージョンを表示するには、ここをクリックしてください。
表 1: 使用したプライマーセットの概要標的配列の初期増幅は、プライマーセット1を用いて行った。次に、プライマーセット2を、ネストされた増幅およびアダプター添加に使用した。アダプターは赤色で表示されます。このファイルをダウンロードするには、ここをクリックしてください。
表 2: バーコードシーケンスの概要。個々のバーコードは、各配列されたサンプルを識別するために使用した。このファイルをダウンロードするには、ここをクリックしてください。
表 3: 代表的な実験で配列された血液サンプルからの抽出後に得られる RNA 濃度。5種それぞれから2個体の RNA 濃度が示され、260/280 nm および 260/230 nm での光学密度の比が示されている。このファイルをダウンロードするには、ここをクリックしてください。
ディスカッション
過去20年間にわたって、生物学的サンプルのシーケンシングは、広範囲の対象分野における研究のますます重要な側面となっている。酵素操作と画像ベースのデータ取得の反復サイクルを使用した DNA 特徴の密配列のシーケンスに基づく第二世代シーケンシングシステムの開発により、スループットが大幅に向上した。従来のサンガーシーケンシング技術は、所与のサンプル中の様々な核酸種と同様に複数のサンプルを並列4で分析することを可能にする。ただし、一般的に使用される第二世代システムのほとんどでは、短い読み取りのみが生成され、すべてのプラットフォームは、高感度でかさばる、高価な装置3,4に依存しています。
第二世代のシーケンスプラットフォームとは対照的に、このプロトコルで使用されるシーケンスデバイスはナノポア技術に基づいています。ここで一本鎖核酸分子はナノポアを通過し、同じナノポアを通って流れているイオン電流の変調をもたらし、そしてこれを測定して、その核酸分子の配列を推論するために再翻訳することができる。この第3世代のシーケンシング・アプローチは、他のアプローチよりも多くの利点を与えます。この技術の独特な動作原理に直接関係している主な利点は、生成された非常に長い読み取り長 (8.8 x 10⁵ヌクレオチドまでの読み取り長は6)、DNA だけでなく、配列する能力であるまた、最近では完全なインフルエンザウイルスゲノム17について実証された RNA を直接、生成されているようにリアルタイムでデータを分析する能力を有しており、これにより、数分以内に病原体の迅速なメタゲノミクス検出が可能になる。追加の実用的な利点は、ナノポアシーケンスデバイスの非常に小さいサイズであり、任意の実験室またはフィールドミッションで、遠隔地19、20、および他のシーケンスと比較して低価格での使用を可能にするプラットフォーム。ランニングコストの面では、現在、新しいフローセルが各シーケンシング実行に必要とされ、その結果、フローセルとライブラリ調製試薬の実行あたり約 $1100 のコストが発生します。これらのコストは、フローセルを洗浄して再利用するか、または1回の実行で複数のサンプルをバーコードして順序を決定することによって減少する場合があります。また、新しいタイプのフローセルは、現在、フローセルアダプタ (「flongle」と呼ばれる) の使用を必要とする少数の実験室によってベータテストされており、フローセル価格を大幅に削減し、したがってコストを実行する必要があります。
ナノポアシーケンシングの主な欠点は、83の範囲での単一の読み取り精度と、6、21、22と報告されている 86% の精度、および挿入/削除によって引き起こされる不正確さの大部分が、その正確性を維持します (欠損)5,21.しかし、高い読み取り深度はこれらの不正確さを補うことができ、最近の研究は、> 10 の読み取り深度が > 99.8%21に全体的な精度を高めるかもしれないという理論的考察に基づいて提案しました。それにもかかわらず、コンセンサスシーケンスレベルではなく単一の分子レベルで解析を実行する場合は特に、精度のさらなる向上が必要になります。このプロトコルに記述されている 1D2技術の使用は、1つの DNA 分子の両方の鎖が同じナノポアによって配列される結果となる 1d2およびバーコードアダプタ (cf. セクション 5.5) の追加に基づいて、読み取りを増加両方の DNA 鎖からの情報は、配列決定のために使用することができるので、精度。さらに、ナノポアシーケンシングの利点 (特に長い読み出し長) と他のシーケンシング技術の高い精度とを組み合わせるために追求できる回避戦略は、足場としてナノポアシーケンシング情報を使用することです。その後、他のプラットフォーム6からのシーケンスデータを用いて研磨する。
ここで示されたプロトコルの成功のための最も重要な要因は、サンプル品質、特に抽出された RNA の量および質である。十分な RNA の収穫を達成するために RNA の助けの適切で貯蔵そして敏速な抽出。適切な採血チューブを使用することにより、最大1ヶ月間血液サンプルを保存することができますが、特にサンプルが高温で保存されている場合、フィールド条件下で発生する可能性があるため、血液凝固は問題になる可能性があります。第2の重要なステップは、標的配列の増幅であり、そして特定のフィールド条件下での PCR 反応は、通常、標準的な実験室条件7の下ではあまりよく行われない。このため、堅牢な増幅を実現するには、慎重にプライマーの設計と最適化を行うことが重要です。さらに、このプロトコルで使用される入れ子になった pcr のアプローチとタッチダウン pcr は、標的遺伝子増幅4,7の特異性と感度の両方を高めることができます。実際に、リベリアとギニアでの経験では、この技術とネストされたプロトコルは、実験室サンプルからのターゲットの増幅を可能にし、実験室条件下でのプライマーセットのためにもフィールドサンプルとフィールド条件の下で必要でした1ラウンドの PCR (7と未発表の結果)。
これらのより重要なステップとは対照的に、ライブラリの準備とシーケンスの実行自体はかなり堅牢な手順です。しかし、フィールド条件下では、機器の特定の部分の可用性などの実用的な問題が問題になることができます。たとえば、バーコードサンプルのライブラリー調製前に、DNA 濃度を決定するために UV 分光光度計が必要です。しかし、そのようなデバイスがフィールド条件下で利用可能でない場合は、サンプル入力材料の違いにより、各サンプルの等しい容積を単純に組み合わせて、ライブラリの準備に必要な45μ l を構成することができ、通常は大読み取りの数。同様に、ベースコールをオンラインで実行する必要はなく、ローカルで実行できる場合でも、シーケンス実行のためのインターネット接続の必要性は問題になる可能性があります。しかし、必要に応じて、この必要性は、製造業者によって特定の状況下で除去することができます。
要約すると、提示されたプロトコルは、従来のシーケンス機器 (遠隔地など) にアクセスできない場所で比較的低コストのシーケンシングを可能にします。それはあらゆるターゲット RNA または DNA に容易に合わせることができ、こうして研究者が多数の生物学的な質問に答えることを可能にする。
開示事項
番目はオックスフォード・ナノポア・テクノロジーズ (ONT) ミニオン・アーリー・アクセス・プログラムに2014から2015に参加し、米国国立衛生研究所 (USA) が実施した以前の研究7のためのミニオンデバイスとフローセルを無償または低コストで受け取りました.彼は ONT に招かれ、ロンドンでのロンドンコーリング2015ミーティングでその仕事の一部を発表し、ONT は交通機関や宿泊施設の支払いを行いました。この原稿に記載されている作業については、ONT からの利益 (例えば、低コストでのハードウェアまたは試薬、旅行の払い戻しなど) はありませんでした。AM, KF と RS は、開示することは何もありません.
謝辞
著者は、原稿の批判的な読解のためのアリソン Groseth に感謝します。この作品は、ドイツ連邦農業・食糧省 (BLE) によるドイツ連邦議会の決定に基づいて BMEL によって財政的支援を受けました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1D2アダプター、バーコードアダプターミックス、ABBバッファー、溶出バッファー、RBFバッファー、LBBビーズ | オックスフォードナノポアテクノロジー | ズ SQK-LSK308 | 1D²シーケンシングキット |
| DNA/RNA安定化試薬付き採血管 | Zymo Research | R1150 | DNA/RNAシールド - 採血管 |
| 鈍化/TAリガーゼマスターミックス | ニューイングランドバイオラボ | M0367S | 鈍器/TAリガーゼマスターミックス |
| DNA-低結合反応チューブ | エッペンドルフ | 30108051 | DNA LoBindチューブ |
| DNaseバッファーおよびDNase | サーモフィッシャーサイエンティフィック | 11766050 | SuperScript™IV VILO™マスターミックスとezDNase™酵素 |
| フローセル | オックスフォード ナノポアテクノロジー | FLO-MIN105.24 | フローセル R9.4 |
| ホットスタート ハイフィデリティ DNA ポリメラーゼ | ニューイングランド バイオラボ | M0493L | Q5 ホットスタート ハイフィデリティ DNA ポリメラーゼ (500 U) |
| 磁気ビーズ | ベックマン・コールター | A63881 | アジャンクール AMPure XP ビーズ |
| マグネティックラック | サーモフィッシャーサイエンティフィック | 12321D | ダイナマグ-2マグネット |
| ナノポアシーケンシングデバイス | オックスフォードナノポアテクノロジー | ズ- | MinION Mk 1B |
| PCRバーコードキット | オックスフォードナノポアテクノロジー | ズ EXP-PBC001 | PCRバーコードキットI(R9) |
| 逆転写酵素マスターミックス | サーモフィッシャーサイエンティフィック | 11766050 | SuperScript™IV VILO™マスターミックスとezDNase™酵素 |
| RNA 精製 スピンカラム、DNA/RNA 調製バッファー、DNA/RNA 洗浄バッファー、DNase I、DNA 消化バッファー | Zymo Research | R1151 | Quick-DNA/RNA 血液チューブキット |
| 回転ミキサー | サーモフィッシャーサイエンティフィック | 15920D | HulaMixer サンプルミキサー |
| Taq DNA ポリメラーゼ | ニューイングランド バイオラボ | M0287S | LongAmp Taq 2x マスターミックス |
| ウルトラ II エンドプレップキット | ニューイングランドBiolabs | E7546S | NEBNext Ultra II エンドリペア/dAテーリングモジュル |
| UV分光光度計 | Implen-NanoPhotometer | ||
| 真空マニホールド | Zymo Research | S7000 | EZ-Vac 真空マニホールド |
参考文献
- Shendure, J., Ji, H. Next-generation DNA sequencing. Nature Biotechnology. 26 (10), 1135-1145 (2008).
- Shendure, J., Lieberman Aiden, E. The expanding scope of DNA sequencing. Nature Biotechnology. 30 (11), 1084-1094 (2012).
- Liu, L., et al. Comparison of next-generation sequencing systems. Journal of Biomedicine and Biotechnology. 2012, 251364(2012).
- Levy, S. E., Myers, R. M. Advancements in Next-Generation Sequencing. Annual Review of Genomics and Human Genetics. 17, 95-115 (2016).
- Lu, H., Giordano, F., Ning, Z. Oxford Nanopore MinION Sequencing and Genome Assembly. Genomics, Proteomics & Bioinformatics. 14 (5), 265-279 (2016).
- Jain, M., et al. Nanopore sequencing and assembly of a human genome with ultra-long reads. Nature Biotechnology. 36 (4), 338-345 (2018).
- Hoenen, T., et al. Nanopore Sequencing as a Rapidly Deployable Ebola Outbreak Tool. Emerging Infectious Diseases. 22 (2), 331-334 (2016).
- Quick, J., et al. Real-time, portable genome sequencing for Ebola surveillance. Nature. 530 (7589), 228-232 (2016).
- Carette, J. E., et al. Ebola virus entry requires the cholesterol transporter Niemann-Pick C1. Nature. 477 (7364), 340-343 (2011).
- Ndungo, E., et al. A Single Residue in Ebola Virus Receptor NPC1 Influences Cellular Host Range in Reptiles. mSphere. 1 (2), (2016).
- Martin, S., et al. A genome-wide siRNA screen identifies a druggable host pathway essential for the Ebola virus life cycle. Genome Medicine. 10 (1), 58(2018).
- Roehr, J. T., Dieterich, C., Reinert, K. Flexbar 3.0 - SIMD and multicore parallelization. Bioinformatics. 33 (18), 2941-2942 (2017).
- Li, H., et al. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kielbasa, S. M., Wan, R., Sato, K., Horton, P., Frith, M. C. Adaptive seeds tame genomic sequence comparison. Genome Research. 21 (3), 487-493 (2011).
- Don, R. H., Cox, P. T., Wainwright, B. J., Baker, K., Mattick, J. S. Touchdown' PCR to circumvent spurious priming during gene amplification. Nucleic Acids Research. 19 (14), 4008(1991).
- Korbie, D. J., Mattick, J. S. Touchdown PCR for increased specificity and sensitivity in PCR amplification. Nature Protocols. 3 (9), 1452-1456 (2008).
- Keller, M. W., et al. Direct RNA Sequencing of the Coding Complete Influenza A Virus Genome. Scientific Reports. 8 (1), 14408(2018).
- Greninger, A. L., et al. Rapid metagenomic identification of viral pathogens in clinical samples by real-time nanopore sequencing analysis. Genome Medicine. 7, 99(2015).
- Castro-Wallace, S. L., et al. Nanopore DNA Sequencing and Genome Assembly on the International Space Station. Scientific Reports. 7 (1), 18022(2017).
- Goordial, J., et al. In Situ Field Sequencing and Life Detection in Remote (79 degrees 26'N) Canadian High Arctic Permafrost Ice Wedge Microbial Communities. Frontiers in Microbiology. 8, 2594(2017).
- Runtuwene, L. R., et al. Nanopore sequencing of drug-resistance-associated genes in malaria parasites, Plasmodium falciparum. Scientific Reports. 8 (1), 8286(2018).
- Rang, F. J., Kloosterman, W. P., de Ridder, J. From squiggle to basepair: computational approaches for improving nanopore sequencing read accuracy. Genome Biology. 19 (1), 90(2018).
再版と許可
