私たちは、基礎研究と生物学と治療の可能性の研究のために、マウス心膜を分離し、精製するためのプロトコルを最適化しました。
この記事について
サマリー
要約
微小血管および毛細血管の血管細胞は、血管新生、血管安定化、および内皮バリア完全性の一部を果たすることが知られている。しかし、心臓の組織特異的な機能はよく理解されていません。さらに、現在、心臓起源のペリサイトを分離して精製するために容易にアクセス可能な材料を利用するプロトコルはありません。私たちのプロトコルは、細胞の供給源として広く使用されている哺乳類モデル、マウスを使用することに焦点を当てています。心臓組織の酵素消化と機械的解離を用いて、多数のマーカーにより蛍光活性化細胞選別(FACS)によりさらに精製した粗細胞混合物を得た。ペリサイトに対して単一の明確なマーカーがないため、CD31-CD34-CD45-CD140b+NG2+CD146+を有する細胞に対してゲートを付けた。精製後、これらの一次細胞を培養し、形態およびマーカー発現に変化することなく複数回通過した。私たちのプロトコルを使用して定期的に原発性マウス心膜を得る能力を持つ我々は、心血管生理学におけるペリサイトの役割とその治療の可能性をさらに理解したいと考えています。
概要
周囲細胞として知られている血管細胞は、血管の木1、2の微細血管および毛細血管を囲む。生理学的には、血管新生の一部を促進および果たすることが知られており、内皮細胞との密接な関係に起因するバリアの完全性を高めるだけでなく、安定化および成熟した血管1、2。また、これらの細胞の機能不全および/または損失は、アルツハイマー病2、3および様々な心血管疾患4などの疾患に関与している。これらの細胞は全身に見られるが、細胞数は組織に依存している。ペリサイトは、血液脳関門1、2の高血管化のために脳内で最も顕著に研究されている。しかし、心臓では、ペリサイトの生物学が研究されています。
最近、心臓心膜の分野への関心が高まっていますが、現在、生物学で最も使用されているツールの1つであるマウスから分離するための合理化されたプロトコルはありません。脳5、網膜6、胎盤7、骨格筋8、9から細胞を分離することに関する文献のプロトコルがあります。しかし、心臓からペリサイトを分離しているプロトコルはほとんどありません。単離された心臓心膜を有するいくつかのグループがある。Neesらは、マウスを含む複数の種から豊富な量の心膜を分離することができた。しかし、その方法は、再現性を低下させる特定の自社建機器を使用しました 10.Avolio et al.11,Chen et al. 12, および Baily et al. 13 もヒト心臓組織から心膜を単離することに成功したが、ヒト組織は必ずしも入手可能ではなく、一部の研究者にとって入手が困難である。ここでは、マウスモデルから心膜を得るための単離法を開発し、容易に入手可能な材料で生物学をさらに研究した。
既知のキーペリサイトマーカー14を用いた酵素消化および蛍光活性化細胞選別(FACS)を用いて、我々のプロトコルはCD31- CD34-CD45によって特徴付けられたペリサイトの集団を分離し、精製することを可能にする-CD140b+NG2+CD146+.マーカーのパネルには、包含マーカーと除外マーカーの両方が含まれています。CD45は、血化細胞を排除するマーカーとして使用される。CD31は、内皮細胞を排除するマーカーとして使用される。CD34は、血化細胞および内皮前駆細胞の両方を排除するマーカーとして使用される。CD146は、血管細胞のマーカーである。最後に、NG2およびCD140b(血小板由来成長因子受容体β−PDGFRβとも呼ばれる)は、いずれもペリサイト14に対して受け入れられたマーカーである。得られた一次培養物は、形態またはマーカー発現に変化なしで複数回培養および通過することができる。さらに、これらの細胞は内皮細胞と共培養し、相互作用を研究し、相互にクロストークすることができます。この細胞分離法により、研究者は野生型、疾患、および遺伝的変異型マウスモデルから心膜膜の生物学と病態生理学を研究することができます。
プロトコル
すべての動物は、ラボアニマルケアインターナショナル(AAALAC)認定施設の評価と認定のための協会で収容され、使用され、すべての動物の仕事は、適切な獣医の監督の下で、機関動物の下で行われましたケアと使用委員会(IACUC)は、アムジェン社の承認されたプロトコル。
1. ツールと文化メディアの準備
- オートクレーブ外科9 cmまっすぐな先端の細かいポイントはさみおよび10 cm斜めの鋸歯状の鉗子。
- 5%の胎児ウシ血清(FBS)の25 mLと1%ペニシリンストレプトマイシン(P/S)の5mLを、カルシウムマグネシウムフリーダルベッコのリン酸緩衝生理食塩水(CMF-DPBS)の500mLボトルに加えます。氷浴に溶液を入れ、使用時に冷たくなることを確認します。心臓の隔離のための50 mL円錐形の管にアリコット50 mL。50 mLアリコートにヘパリンナトリウム溶液を250単位/mL加えます。これをヘパリン化 CMF-DPBS と呼ばれます。
- 高グルコースダルベッコの改変ワシ培地(DMEM)の500 mLボトルに20%FBS(100 mL)と1%P/S(5 mL)を加えます。これを酵素フリー培養培養培養といいます。DMEMのアリコート20 mL+20%FBS+1%P/Sを加え、コラゲナーゼBの500 μg/mLに添加する。これを酵素溶液と呼ばれる。酵素フリー培養培養剤と酵素溶液の両方をインキュベーターまたは水浴で37°Cで温めます。
2. 動物の調製と心臓組織の調達
- 31G針注射器で250単位のヘパリンナトリウム溶液を用いたマウスを食後数食器内注射する。その後、マウスがホームケージでアクティブなままである間、10−15分待ちます。
注:本研究の代表的なデータは、生後4ヶ月の雄C57BL/6マウスから得られた。しかし、このプロトコルは、歪み、年齢、性別、体重などに関係なく、任意のマウスで使用することができます。 - 5%のイソファランでマウスを麻酔する。ピンチ反射でマウスの麻酔深さを確認します。
- 麻酔マウスを上げ位置に置き、前肢をテープで留める。慎重に胸腔を開き、25 G蝶の針を使用して下降大小腸をカニューレします。
- 右心房にニックを作り、可変流動性ポンプで2mL/mininで250単位/mLヘパリン化されたCMF-DPBSの少なくとも20 mLで心臓を浸透させる。PBSが右のアトリアからきれいに出てくると、灌流が完了します。
- 大通りで心臓を切り取り、冷たいCMF-DPBSに入れます。
3. 心臓組織の解離
- 15 cm x 15 cm ペトリ皿に心臓を移します。スプリングハサミと細かい点鉗子を使って心臓を小片(1mm/個)に切り、細かい点鉗子を十分な酵素溶液で覆い(10−15 mL)。
- 50 mLの円錐形チューブにピースと溶液を移し、パラフィンプラスチックフィルムでシールし、75分間120rpmで軌道シェーカーで37°Cでインキュベートします。
- 酵素溶液でコラーゲナーゼ消化した後、100 μmセルストレーナーを通して液体を新しい50 mLチューブにデカントしますが、破片が乾燥しないように十分な溶液を残します。
- 細かい点鉗子を使用して、チューブから組織を取り出し、顕微鏡スライド上にいくつかの部分を置きます。その後、2つの顕微鏡スライドの間で組織を粉砕し、組織を分解する。酵素フリー培養培養物でスライドを新しい50 mL円錐管にすすいでください。
- すべての組織片が解離されるまで、ステップ 3.4 を繰り返します。
- ステップ 3.3−3.5のソリューションを1つのチューブに組み合わせます。得られた懸濁液を100 μmのセルストレーナーを通して、新しい50 mL円錐管にひずみます。
- 220 x g,4 °C,5分間の遠心分離機,前の溶液を吸引し、新鮮な酵素フリー培養培養培養培養中に細胞ペレットを穏やかに再中断します。
- セルをカウントし、セル カウンタを使用して実行可能性を確認します。DPBSの500 mLと2−5%ウシ血清アルブミン(BSA)の10−25mLを含む冷たいFACS染色バッファーを用いて1 x 10⁶/mLに細胞を希釈する。細胞は染色され、ソートされる準備ができています。
4. FACSを用いた粗細胞混合物からのペリサイトの精製
- すべてのコントロールおよび細胞サンプルに対して5 mL FACSチューブを準備し、ラベルを付けます。無染色サンプルのアリコートアウト細胞(チューブ当たり細胞の1mL)、蛍光マイナス1(FMO)コントロール、およびアイソタイプ一致対照。並べ替えに残りのセルを使用します。すべてのコントロールおよびサンプルは同時に調製し、染色することができる。
メモ:0.5 x 10の合計13 mL6細胞/mLは、1つの心臓からの代表的なソートに使用された。しかし、その量は、研究者が単離から得る細胞の数、使用する心臓の数、心臓組織が消化される程度によって異なります。各心臓のサイズは、音量を変更できる変数でもあります。- 蛍光補正制御を最適化するには、補償ビーズ(材料の表)を使用します。標識付きの5 mL FACSチューブで実験中の各フルオロクロムに対して1つの補償制御を準備します。この実験では、NG2-FITC、CD31-APC、CD140b-PE、CD146-BV605、CD34-BV421、CD45-PE-Cy7、および細胞生存率を含むマーカーパネルから2種類の無染色ビーズと7種類のフルオロクロムを加えた合計9種類の補償コントロールを準備します。材料のテーブル)
- 各チューブに圧行バイアルから補償ビーズ(約50μL)を1滴加えます。次に、ビーズに1 μLの抗体を添加します。マーカーパネルから抗体ごとに繰り返します。パルスボルテキシングで激しく混ぜます。光から保護された室温で残すことができる細胞生存率ビーズを除き、光から保護された4°Cで30分間インキュベートする。
- 次に、各チューブに3mLのFACS染色バッファーを加え、遠心分離機を300×gで4°Cで5分間加えます。 溶液を吸引し、FACS染色バッファーの400 μLで各ビーズペレットを再ステージングします。補正コントロールを使用する準備が整いました。氷の上にいろ
- FMO コントロールを使用して、スペクトルの重なりによる背景染色を最適化します。
- FMOコントロールを調べ、5 mL FACSチューブのセクション4.1から引用された細胞の1 mLを使用し、ステップ4.1.1に記載のマーカーパネルからすべての抗体を1:100希釈で追加しますが、1つの抗体を除きます。例えば、CD31-APC、CD140b-PE、CD146-BV605、CD34-BV421、CD45-PE-Cy7、細胞生存率色素、NG2-AF488抗体用の抗体を含むことにより、NG2-AF488 FMOを調製する。パルスボルテキシングで穏やかに混ぜます。合計7対7の抗体について繰り返します。光から保護された4°Cで30分間インキュベートします。
- 次に、各チューブに3mLのFACS染色バッファーを加え、遠心分離機を300×gで4°Cで5分間加えます。 溶液を吸引し、FACS染色バッファーの400 μLで各セルペレットを再ステージングします。FMO コントロールを使用する準備が整いました。氷の上にいろ
- 非特異的染色には、アイソタイプ一致対照抗体(材料表)を使用します。
- アイソタイプ一致対照抗体(材料表)をセクション4.1から調製した細胞試料1mLに5mL FACSチューブ内の1:100希釈でそれぞれ添加することにより、アイソタイプコントロールを調製する。パルスボルテキシングで穏やかに混ぜます。光から保護された4°Cで30分間インキュベートします。
- 次に、各チューブに3mLのFACS染色バッファーを加え、遠心分離機を300×gで4°Cで5分間加えます。 溶液を吸引し、FACS染色バッファーの400 μLで各セルペレットを再ステージングします。アイソタイプコントロールを使用する準備が整いました。氷の上にいろ
- 新たに単離した細胞に抗体カクテルを加えて選別する細胞を調用意する。
- 抗マウスNG2-AF488、CD31-APC、CD140b-PE、CD146-BV605、CD34-BV421、CD45-PE-Cy7を1:100希釈各1:100希釈および細胞生存率染色剤を含有する抗体カクテルに添加することにより、セクション4.1から細胞試料を調製する。穏やかに渦を混ぜる。光から保護された30分間、4°Cでサンプルをインキュベートします。
- 染色後、5分間300×gで遠心分離によりFACS染色緩衝液で細胞を洗浄する。溶液を吸引し、FACS染色バッファー内の細胞ペレットを0.5 x 10⁶セル/mLに再ステージングします。
- 35 μmフィルタートップを持つ新しいFACSチューブを使用して、ピペット染色された細胞サンプルを蓋に、重力濾液を塗り、単一細胞懸濁液を得ます。氷の上にいろ
- 蛍光補正制御を最適化するには、補償ビーズ(材料の表)を使用します。標識付きの5 mL FACSチューブで実験中の各フルオロクロムに対して1つの補償制御を準備します。この実験では、NG2-FITC、CD31-APC、CD140b-PE、CD146-BV605、CD34-BV421、CD45-PE-Cy7、および細胞生存率を含むマーカーパネルから2種類の無染色ビーズと7種類のフルオロクロムを加えた合計9種類の補償コントロールを準備します。材料のテーブル)
- 細胞ソーターを使用して細胞を浄化します。
- セルソーター上の汚れていないセルを実行して電圧を設定し、バックグラウンド信号に対して補正します(たとえば、前方散乱の電圧を490−560に設定し、サイドスキャッタを180−250に設定します)。
- 各単色補正ビーズサンプルを一度に1つずつ実行して、各チャンネルの電圧を調整し、正の信号のゲートを調整します。データを収集します。補正行列を計算することにより、スペクトルの重複を計算するソフトウェアを使用します。すべての電圧は準備ができて設定されています。
- 各アイソタイプコントロールを一度に1つずつ実行し、このデータを使用して、非特異的なバインディングがある場合はゲートを調整できます。
- 各FMOサンプルを一度に1つずつ実行し、各チャンネルの電圧を調整して、マルチカラーパネルによるスペクトルブリードを補正します。
- 細胞選別機で染色された細胞サンプルを実行し、15 mL円錐採取管内の10mL酵素フリー培養培養培養物(DMEM + 20%FBS + 1%P/S)で細胞を集集める。単一細胞のゲート、生細胞用ゲート、CD45陰性細胞のゲート、CD34およびCD31陰性細胞のゲート、NG2陽性細胞のゲート、最後にCD146およびCD140b陽性細胞のゲートを使用します。
5. ペリサイトの培養
- ゼラチンを0.2%のゼラチンで24ウェルプレートに5分間塗り、ゼラチン溶液を吸引します。DMEMのステップ4.2.5から新たに得られた細胞をシード + 20% FBS + 1% P/Sまで 2 x 10⁴細胞/cm2.37°C、5%CO2および95%O2に設定された細胞インキュベーター中の培養細胞。
- ペリサイトの通過
- 細胞が95%のコンフルエントになったら、暖かい1x DPBSで細胞を洗浄し、200 μLの0.1%トリプシンを室温で3-5分間持ち上げます。
- プレートを軽くタップして細胞を緩めます。
- 培養培地量の3.5倍(700μL DMEM+ 20%FBS + 1% P/S)と種子通路2(P2)細胞を2 x 104細胞/cm2にコーティングされていない6ウェルプレート上に3.5倍で中和する。
- 各ウェルは、コンフルエントの場合、P3細胞として単一のT-75フラスコに移動することができ、その後1:6比で分割することができる。
6. ペリサイトの特徴付け
-
フローサイトメトリー分析
- 前述のセクション 4 と同じ FACS 染色プロトコルとゲーティング戦略を使用します。
- フローサイトメーターでコントロールと染色されたサンプルを実行します。分析ソフトウェア (材料の表) を使用してデータを収集し、データを分析します。
- 明るい画像を収集するには、37 °C、5%CO2および95%O2に設定されたセルインキュベーターでフラスコ内の細胞を成長させる。細胞が表面に付着した後、顕微鏡で画像をキャプチャします。
-
免疫細胞化学
- 96ウェルプレートで細胞を90%コンフルエントになるまで成長させます。温かい1x DPBSで細胞を洗浄し、室温で30分間4%のパラホルムアルデヒドで固定します。
- 細胞を1x DPBSで3倍洗い、0.1%の洗剤で10分間透過させます。
- 室温で1時間のブロッキングバッファーで細胞をインキュベートします。遮断後、一次抗体(ウェル当たり1抗体)をブロッキングバッファーに1:100希釈し、一晩4°Cでインキュベートする。一次抗体は、抗NG2、抗CD140b、抗CD31、抗ビメンチン、抗デスミン、および抗α平滑筋アクチンである。
- 翌日、洗浄バッファーで細胞を3倍に洗浄する(材料の表)。ブロッキングバッファーに希釈した二次抗体を1:1,000に添加し、暗闇の中で室温で2時間インキュベートする。二次抗体はFITCに結合した抗ウサギである。
- 洗浄バッファーで細胞を3倍洗う。室温で5分間、1:1,000で希釈した300μMの核汚れを加えます。
- 1x DPBSでセル3xを洗浄し、マウントメディアでマウントします。
- 共焦点顕微鏡を用いて画像細胞。
結果
心臓全体の酵素消化と解離後、および細胞のFACS精製前に、細胞は心臓から多くの異なる細胞タイプを含む粗混合物である(図1A)。FACSの精製および培養後、細胞は均質である。それらは単一核化され、非常に平坦であり、典型的な果細胞ロンボイド形態を有する(図1B)。
FACSを用いて、細胞を均質に精製する。染色されていない対照細胞サンプルは、ゲーティング戦略を示すために使用されます(図2)。まず、デブリとダレットは、前方および側面散乱分布に基づいてゲートアウトされました。その後、死んだ細胞は、生細胞よりも大きく、より強いシグナルを生成する色素とのアミン反応のためにゲートアウトされました。生細胞のうち、造血細胞はCD45+であることによってゲートアウトされた。造血細胞および内皮細胞をさらに除去するために、CD34+およびCD31+細胞をゲートアウトした。最後に、NG2+およびCD140b+/CD146+細胞は、典型的な果細胞マーカーの発現を有する血管細胞である場合に選択された(図3)。マーカーパネルはまた、対照としてマウス冠状皮内皮細胞についても試験した(補足図1)。粗細胞混合物の約1%のみが、選別後のペリサイトから構成された。
細胞が実際にペリサイトであることを検証するために、我々は更なる特徴付けのために細胞を通過させた。細胞は、T-75フラスコでP3に達すると、年を取るにつれて生存率に変化がなく、急速に成長した(補足図2)。ヒトの脳頭細胞と比較した場合、細胞は同様の形態を有していた(図4A)。マウスとヒトの平滑筋細胞と比較した場合、細胞は異なる形態を持っていた(図4A)。また、P7における免疫染色時または通過後のフローサイトメトリー分析による形態またはマーカー発現の観察された変化は認められなかった(図4B、C)。
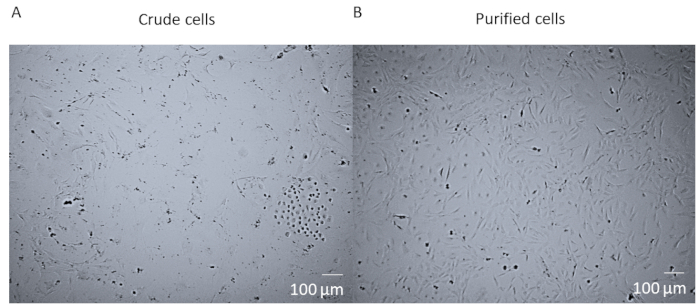
図 1:粗細胞対精製細胞。(A) 14日間T25フラスコで培養した全心臓酵素消化・解離後の粗細胞混合物の明視野画像。(B) 14日後の心臓心膜細胞の均質な集団の明視野画像。スケールバー = 100 μm.この図のより大きなバージョンを表示するには、ここをクリックしてください。

図 2:染色されていない細胞のFACS分析の代表的な画像。粗細胞混合物を浄化するために使用されるゲーティング戦略の概略表現。シングル、ライブ、CD45-、CD31-、CD34-、NG2 +、CD146 +、および CD140b+であるセルのゲート。この図のより大きなバージョンを表示するには、ここをクリックしてください。

図 3: 粗細胞のFACS分析の代表的な画像心膜膜の均質な集団を得るために使用されるソートの概略表現。粗細胞のおよそ1%はCD31- CD34-CD45-CD140b+NG2 + CD146+である。この図のより大きなバージョンを表示するには、ここをクリックしてください。

図 4: 原発性単離心膜の特徴付け(A) ヒト脳(hPC)およびマウス心臓(mPC)からの培養細胞のブライトフィールド画像は、ヒト平滑筋細胞hSMCとマウス平滑筋細胞(mSMC)とは異なる形態であるが、類似した後細胞形態を示す。スケールバー= 100 μm. (B) ペリサイトマーカーに対する免疫細胞化学によるP7における細胞のフェノティピック特性特性化スケールバー = 100 μm. (C) 陰性マーカーCD31、CD34、CD45および正マーカーNG2、CD140b、およびCD146にゲートしたP7におけるペリサイトのフローサイトメトリーによる分析。人口は均質なままである。この図のより大きなバージョンを表示するには、ここをクリックしてください。
補足図1:マーカーパネルを用いて内皮細胞のフローサイトメトリー分析の代表的な画像。マウス冠状皮内皮細胞株は、マーカーの結合特異性の制御として使用された。負のゲートの代わりに CD31 の正のゲートを除いて並べ替えで使用されたのと同じゲーティング戦略を使用して、内皮細胞は CD45、CD34、NG2、CD140b、および CD146 では陰性でしたが、CD31 では期待どおりに正でした。この図をダウンロードするには、ここをクリックしてください。
補足図2:mPCの異なる通路のフローサイトメトリー分析の代表的な画像。一次単離された心膜を培養し、12通過まで通過した。細胞をヨウ化プロピジウムで染色し、フローサイトメーターで分析した。対照集団は、死んだ細胞と生細胞の混合物である。通過間の生存細胞数に有意な差はなかった。この図をダウンロードするには、ここをクリックしてください。
ディスカッション
心膜膜に関する研究は比較的新しいため、心血管生理学および病態生理学におけるペリサイトの役割はまだ定義されていない。他の臓器では、それらは血管恒常症および灌流1、2で重要な役割を果たすることが示されている。脳などの他の臓器からのペリサイトの文献と比較して、心臓心膜に関する出版物は著しく少ない。心膜膜の単離は、その機能特性とシグナル伝達機構を理解するために重要です。したがって、このプロトコルは、より容易に利用可能な組織源から心臓心膜にアクセスし、その生物学に関する研究を促進する簡単な方法を研究者に提供します。心臓心膜炎が心臓恒常性と病態生理学にどのように寄与するかに関する質問に答えるだけでなく、その治療の可能性を調査するのに役立ちます。
マウスの心臓から分離され、CD31-CD34-CD45-CD140b+NG2+CD146+が複数回通過している(P12まで、まだ強い行っていた)、それはそうではありません生存率の低下と迅速な伝播(補足図2)。細胞はまた凍結され、少なくとも95%の生存率で回復した。しかし、我々は我々の実験のために細胞P7以下を使用することを好む。我々の頭細胞の明るい視野画像とヒト脳頭細胞を比較すると、2つの細胞株は平滑筋細胞とは形態が異なるのに対し、2つの細胞株は同等の細胞形態を有する(図4A)。我々のP7細胞は、ペリサイトマーカーに対する免疫細胞化学、一部のFACSパネル(NG2およびCD140b)、およびパネルにない少数(ビメンチン、デスミン、αSMA)を特徴とし、細胞が同質に発現した細胞を見出した(図4B)。さらに、P7細胞を同じマーカーパネルで再度フローサイトメトリーで解析し、通過によるマーカー発現の変化を評価したところ、変化がないことがわかりました(図4C)。したがって、フェノ典型的および形態学的に、我々の細胞はペリサイトである。
Nees et al.10,Avolio etal. 11, Chen et al. 12, および Baily et al. 13 による研究は、成功した心臓心膜細胞の単離を示している.しかし、Neesら10によって微細血管からペリサイトを切り離す社内カスタム構築装置の使用は、メッシュネットスタックを通じてプロテアーゼ溶液を前後に浸透させたポンプを備えた2つのチャンバーを含み、彼らが複製するのは困難でした。装置の概略図や画像を提供しなかったし、それがどのように構築されたか。Nees et al.10は多くの種から心臓心膜を正常に単離したが、その方法を再現することはできなかった。私たちのプロトコルの周皮剥離ステップは、単に眼窩シェーカー(すべての細胞を解離するために)を使用し、ほとんどの実験室で利用可能であり、組織と酵素溶液を円錐管に入れ、機械的解離ステップを行います。カスタム装置は必要ありません。第二に、残りのプロトコルは、ヒト組織の使用を伴い、したがって、ヒト組織の調達は、研究者に限定されています。我々のプロトコルは、マウスモデル(野生型、遺伝子組み換え、病気)およびすべての研究者が容易に入手可能な材料を使用して、現在のプロトコル9、12の修正と最適化です。
血管皮細胞は一般に感受性であるため、良好な収率を得るために細胞の生存率が重要である。心臓組織の調達と細胞の染色の間、組織/細胞は氷を冷たく保つ必要があります。第二に、組織の酵素消化は、個々の基準で最適化を必要とする場合があります。酵素のバイアル上の活性の単位に応じて, 濃度と消化時間を最適化する必要があります。.酵素溶液が新鮮に調製されていることを確認してください。第三に、粗混合物は、多くの細胞を含有し、いくつかの死および/または死んで、染色バッファー内のFBSの濃度を5%から2%に下げるのが最善である。ソート中にノズルを詰まらせる細胞に問題がある場合は、まず死細胞除去キットを使用して細胞を濃縮してください。また、細胞の束を防ぐために、セルプリソートにEDTA/HEPESバッファまたはDNase処理を追加することもできます。最後に、抗体のパネルはかなり大きく、多くの蛍煙管を使用しているため、FMOコントロールと補正制御が正しく行われていることを確認してください。
この方法に対する1つの制限は、心臓ごとに得ることができる心膜膜の量である。我々の場合、1匹のマウス心臓からの粗混合物のわずか1.1%は、ヒトの心臓分離の割合に匹敵するペリサイトであったが、マウスが提供する心臓組織の量により細胞数は著しく少ない。FACSの後は細胞の開始数が非常に少ないので、一度に複数の心臓から分離する方が良いでしょう。ただし、問題は、1 日で並べ替える必要があるセルの数が非常に多い点です。3,000万個以上の細胞がある場合、細胞の生存率に影響を与えずにソートを通過することは困難です。もし研究者が複数の細胞選別機を持っていたら、1日に複数の心臓から隔離することは可能であろう。もう一つの制限は、骨格筋15、16があるような心臓にペリサイトの亜集団があるかどうかわからないので、我々は我々のゲーティング戦略でサブタイプを排除しているかどうかわからないことです。私たちは心臓心膜を特徴付ける過程にあり、これまでのところ、未発表のデータでは、それらは文献の他のペリサイトと同様に機能的です。
私たちのプロトコルは、研究者が心膜炎とヘモダイナミクスへの貢献を定義するのに役立つ心心膜の特性、特性、機能性、およびその他の側面に関する質問に答えることを可能にします。これらの細胞は、彼らの生物学がよりよく理解されれば、心血管疾患への治療の可能性を持つことができます。
開示事項
著者は何も開示していない。
謝辞
著者らは、蛍色素パネルの設計、トラブルシューティング、および細胞の選別に関する彼らの助けに対して、Amgen Flowサイトメトリーコアに感謝したいと思います。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.25% トリプシン-EDTA | Corning | 25-053-Cl | 1x DPBS で希釈して 0.1%100 |
| μM セルストレーナー | FisherSci | 22363549 | |
| 15 mL ファルコンコニカルチューブ | BD | 352096 | |
| 24 ウェルプレート | コーニング | CLS3527 | |
| 25 G バタフライニードル | FisherSci | 22-253-146 | |
| 31 G ニードルシリンジ | フィッシャーサイ | B328446 | |
| 50 mL ファルコンコニカルチューブ | BD | 352098 | |
| 6ウェルプレート | Corning | CLS3516 | |
| anti-alpha smooth muscle actin rabbit mAb | abcam ab32575 | ICC 1:100 希釈 | |
| 抗CD140b rabbit mAb | 細胞シグナル伝達 | 28E1 | ICCで使用された抗体 1:100 |
| 抗CD31ウサギpAb | abcam | ab28364 | ICC1:100希釈 |
| 抗デスミンウサギpAb | で使用された抗体abcam | ab8592 | ICC 1:100 |
| 抗NG2抗体 AF488 | ミリポア | MAB5384A4 | ICC 1:100 |
| ビメンチンウサギ mAb | abcam | ab92547 | ICC1:100希釈 |
| ArCアミン反応性補償ビーズキット | Invitrogen | A10346 | /Dead Near IR色素用補正ビーズ |
| 視野顕微鏡 | カメラ付属 | ||
| CD140b-PE (クローン APB5) | eBioscience | 12-1402-81 | FACS 1:100 希釈 |
| CD146-BV605 (クローン ME-9F1) | BD | 740434 | FACS 1:100 希釈 |
| CD31-APC (クローン MEC 13.3) | BD | 551262 | FACS 1:100 希釈 |
| CD34-BV421 (クローン RAM 34) | BD | 56268 に使用された抗体 | FACS 1:100希釈 |
| CD45-PE-Cy7(クローン30-F11) | BD | 552848 | FACS 1:100希釈 |
| 遠心分離機 | eppendorf | ||
| Collagenase B | Roche | 11088815001 | 0.226 U/mg lyo |
| 共焦点顕微鏡 | |||
| DAPI | サーモフィ | ッシャーD1306 | 核染色 |
| DMEM、4.5 g/Lグルコース、L-グルタミン、ピルビン酸ナトリウム | コーニング | 10-013-CV | 500 mL |
| ダウエルハサミ | FST | 15040-11 | |
| ダルベッコリン酸緩衝生理食塩水 (DPBS) | コーニング | 21-030-CV | 500 mL |
| CaおよびMgを含まないダルベッコのリン酸緩衝生理食塩水(CMF-DPBS) | Corning | 21-031-CV | 500 mL |
| Dumont #5 Fine Forceps | FST | 11254-20 | |
| FACSAria細胞ソー | ターBD | レーザー:405 nm 50 mW、488 nm 100 mW、561 nm 50mW、633 nm 11 mW | |
| FACSAriaソフトウェア | BD | ||
| Falconチューブ丸底ポリプロピレン、5 mL | BD | 38057 | |
| セルストレーナーキャップ付きファルコンチューブ、5 mL | BD | 08-771-23 | |
| ウシ胎児血清 | コーニング | 35-015-CV | 500 mL |
| 細かいハサミ | FST | 14060-09 | |
| FlowJo ソフトウェア | FlowJo LLC | ||
| Fortessa LSR フローサイトメーター | BD | レーザー: 405 nm 50 mW、488 nm 100 mW、561 nm 50mW、633 nm 11 mW | |
| ゼラチンベースのコーティング | Cell Biologics | 6950 | |
| ヤギ抗ウサギ IgG (H+L) 交差吸収二次抗体、Alexa Fluor 488 | Invitrogen | A-11008 | ICCで使用した抗体 1:1000 |
| Graefe Forceps | FST | 11049-10 | |
| ヘパリンナトリウム溶液 | Hospira | NDC 0409-2720-02 | 10,000 USP units/10 mL; 豚腸から |
| インキュベーター | 37°Cに設定。C、5%CO2、95%O2 | ||
| Live/Dead-Near IR | Life Technologies | L10119 | |
| 顕微鏡スライド | FisherSci | 12-550-343 | |
| NG2-FITC | Millipore | AB5320A4 | FACS 1:100希釈オリ |
| ビタールシェー | カーVWR | で使用される抗体 Inside 37 °Cインキュベーターまたは部屋 | |
| パラホルムアルデヒド | FisherSci | 50-980-487 | 1x DPBSで希釈して4% |
| ペニシリン-ストレプトマイシン | Corning | 30-002-CI | |
| nbsp;ペトリ皿 | FisherSci | FB0875714 | |
| ピペットとチップ | |||
| ProLong Diamond | ThermoFisher | P36965 | 封入剤 |
| ヨウ化プロピダム | ThermoFisher | 細胞生存率色素 補足用 図 2 | |
| ウサギ IgG FITC | eBiosciences | 11-4614-80 | アイソタイプコントロール抗体 - FITC |
| ラット IgG2a APC | Biolegend | 400512 | アイソタイプコントロール抗体 - APC |
| Rat IgG2a BV421 | Biolegend | 400536 | アイソタイプコントロール抗体 - BV421 |
| Rat IgG2a BV605 | BD | 563144 | アイソタイプコントロール抗体 - BV605 |
| ラット IgG2a PE | バイオレジェンド | 400308 | アイソタイプコントロール抗体 - PE |
| ラット IgG2b PE-Cy7 | バイオレジェンド | 400617 | アイソタイプコントロール抗体 - PE-Cy7 |
| SuperBlock | ThermoFisher | 37515 | ブロッキングバッファー |
| T75 | ThermoFisher | 156499 | |
| Triton X-100 | Sigma | X100 | 界面活性剤、x DPBS で希釈して 0.1% |
| UltraComp ビーズ | Invitrogen | 01-2222-42 | 補正ビーズ |
| 可変流量蠕動ポンプ | FisherSci | 13-876-1 | |
| ViCell | Counter Beckman | ||
| Wash バッファー | :10 希釈液 Superblock 1x DPBS |
参考文献
- Armulik, A., Abramsson, A., Betsholtz, C. Endothelial/pericyte interactions. Circulation Research. 97 (6), 512-523 (2005).
- Armulik, A., Genove, G., Betsholtz, C. Pericytes: developmental, physiological, and pathological perspectives, problems, and promises. Developmental Cell. 21 (2), 193-215 (2011).
- Sengillo, J. D., et al. Deficiency in mural vascular cells coincides with blood-brain barrier disruption in Alzheimer's disease. Brain Pathology. 23 (3), 303-310 (2013).
- Avolio, E., Madeddu, P. Discovering cardiac pericyte biology: From physiopathological mechanisms to potential therapeutic applications in ischemic heart disease. Vascular Pharmacology. 86, 53-63 (2016).
- Dore-Duffy, P. Isolation and characterization of cerebral microvascular pericytes. Methods in Molecular Medicine. 89, 375-382 (2003).
- Bryan, B. A., D'Amore, P. A. Pericyte isolation and use in endothelial/pericyte coculture models. Methods in Enzymology. 443, 315-331 (2008).
- Maier, C. L., Shepherd, B. R., Yi, T., Pober, J. S. Explant outgrowth, propagation and characterization of human pericytes. Microcirculation. 17 (5), 367-380 (2010).
- Crisan, M., Corselli, M., Chen, W. C., Peault, B. Perivascular cells for regenerative medicine. Journal of Cellular Molecular Medicine. 16 (12), 2851-2860 (2012).
- Crisan, M., et al. Purification and long-term culture of multipotent progenitor cells affiliated with the walls of human blood vessels: myoendothelial cells and pericytes. Methods in Cellular Biology. 86, 295-309 (2008).
- Nees, S., et al. Isolation, bulk cultivation, and characterization of coronary microvascular pericytes: the second most frequent myocardial cell type in vitro. American Journal of Physiology Heart Circulatory Physiology. 302 (1), H69-H84 (2012).
- Avolio, E., et al. Expansion and characterization of neonatal cardiac pericytes provides a novel cellular option for tissue engineering in congenital heart disease. Journal of the American Heart Association. 4 (6), e002043(2015).
- Chen, W. C., et al. Human myocardial pericytes: multipotent mesodermal precursors exhibiting cardiac specificity. Stem Cells. 33 (2), 557-573 (2015).
- Baily, J. E., et al. Isolation of Perivascular Multipotent Precursor Cell Populations from Human Cardiac Tissue. Journal of Visualized Experiments. (116), e54252(2016).
- Murray, I. R., et al. Skeletal and cardiac muscle pericytes: Functions and therapeutic potential. Pharmacology & Therapeutics. 171, 65-74 (2017).
- Birbrair, A., et al. Role of pericytes in skeletal muscle regeneration and fat accumulation. Stem Cells Development. 22 (16), 2298-2314 (2013).
- Birbrair, A., et al. Skeletal muscle pericyte subtypes differ in their differentiation potential. Stem Cell Research. 10 (1), 67-84 (2013).
再版と許可
