このプロトコルは、皮膚におけるマラセチア-宿主相互作用を研究するためのマウスモデルの確立を概説する。インビトロでのマラセチアの培養、マラセチアによるマウス皮膚の感染、および皮膚組織における炎症および真菌負担のその後の分析について説明する。
この記事について
サマリー
要約
動物モデルは感染症の研究に欠かせない。それらは、微生物とその宿主との間で生体特異的な方法で起こる相互作用の完全なスペクトルを分析するための重要な基礎を提供する。病原性真菌は、人間にとって深刻な脅威としてますます認識され、そのような感染モデルを悪用することは、真菌病原性に対する我々の理解を大幅に改善した。マラセチア属の種は、ヒト皮膚微生物叢の最も豊富な真菌であり、脂漏性皮膚炎およびアトピー性皮膚炎などの重度の炎症性皮膚疾患の発症にも関連している。しかしながら、マラセチアと疾患病因との間の原因的な関連は未知のままであり、皮膚免疫系を有するマラセチアの複雑なクロストークの知識が乏しいことに起因する可能性があるという事実である。このプロトコルは、生体内の哺乳類の皮膚とマラセチアの相互作用を研究することを可能にする実験的マウスモデルの確立を記述する。実験室の条件下でマラセチアspp.を栽培する方法、マラセチアspp.でマウスの皮膚に感染する方法、および皮膚の炎症と真菌の負担分析によって感染の結果を評価する方法を概説します。ここで説明するモデルは、完全に免疫能力の高い動物で動作し、動物の免疫抑制または抗生物質前処理に依存しません。それは事実上すべての遺伝子組み換えマウス株にさらに適応可能であり、他の皮膚疾患モデルと組み合わせることができる。これらの特徴は、この感染モデルを生体内の皮膚のマラセチアに対する宿主の先天的かつ適応的な免疫応答を詳細に研究するための非常に強力なツールになります。
概要
皮膚は多くの異なる微生物によって取り込まれています。微生物叢への皮膚の一定の暴露は、宿主の免疫系の形成と教育に寄与する。真菌は、微生物叢の重要な部分としてますます認識されており、細菌やウイルス1と同様に、宿主の生理学と免疫のための重要な役割を果たしています。マラセチア属の種は、温血脊椎動物の皮膚を植民地化する最も豊富な真菌であり、それらはヒト皮膚の90%以上のマイコバイオーム2、3を占める。これまでに18種類のマラセチアがヒトおよび動物の皮膚4から同定されている。
皮膚の様々な病理は、少なくとも部分的に、不均衡な微生物叢組成物の結果として生じると考えられている。ジビオシスは、日和見感染および疾患5をもたらす病原性の可能性を有する種の過剰増殖につながる可能性がある。一貫して、マラセチアは、そのコンメンショナルライフスタイルに加えて、ふけや哀れなバーシカラーからより重度の炎症性疾患に至るまで、様々な皮膚病理の発達に寄与しているという証拠が増えています。脂漏性皮膚炎およびアトピー性皮膚炎として4、6.マラセチアとピテリアルシス・バーシカラーとの間の因果関係は確立されているが、より重篤な皮膚病理における真菌の病態生理学的役割はほとんど未知のままである。
皮膚恒常性および疾患におけるマラセチアの役割を決定するには、真菌と皮膚と皮膚および皮膚免疫系との相互作用に関するより深い知識が必要である。注目すべき点は、マラセチアに関する研究は、他のヒト真菌病原体(例えば、カンジダ・アルビカンスまたはアスペルギルス・フミガトゥス)と比較して、まだ駆け出し段階にある。これは、実験室条件下でのマラセチアの栽培の難しさと、生体内の宿主と接触する真菌を研究するための適切な実験モデルの欠如に起因する可能性がある。培養中の単離細胞を用いたこれまでの実験は、マラセチアと様々な免疫細胞と非免疫細胞との間の直接的および間接的な相互作用の広い範囲を示した7.しかし、これらのインビトロ実験は、真菌と様々な細胞型との間に多数の細胞および分子事象が生じる生体内の複雑な皮膚環境の状況を部分的に再現するに過ぎない。
本明細書では、我々が最近確立したマウスにおけるマラセチア皮膚感染の実験モデルのプロトコルを概説し、生体内7における真菌宿主相互作用を研究する。これには、(1)体外でのマラセチアの栽培の成功、(2)マラセチアのマウス耳皮膚へのエピキュキタン塗布、(3)マラセチア誘発皮膚の分析方法の技術的詳細の手順が含まれる。炎症と感染した皮膚の真菌の負担。重要なことに、このモデルは、真菌感染症の他のマウスモデルで実践されているように、感染前のマウスの免疫抑制(例えば、コルチコステロイドによる)または抗生物質治療に依存しない。次に、正常な皮膚におけるマラセチアに対する自然および適応免疫応答の完全なスペクトルを研究することを可能にする。注意点として、特定の病原体フリー(SPF)条件下で飼育された野生型マウスは、マラセチアと自然にコロニー形成されないため、真菌への曝露は持続的なコロニー形成をもたらさないが、宿主からクリアされる約1.5週間。しかし、このモデルは、抗真菌宿主応答開始および調節のメカニズムを研究することを可能にし、これは免疫記憶の生成方法の基礎である。このモデルは、多種多様な遺伝子組み換えマウス株に容易に適用でき、バリア欠乏モデルなどの他の既存の皮膚疾患モデルと組み合わせて、下でのマラセチアの影響を研究することができるという点で汎用性があります。病理学的および炎症性皮膚状態7.従って、マウスにおける実験的なマラセチア皮膚感染症の記載モデルは、ホメオスタシスおよび疾患の文脈における真菌と皮膚免疫系との相互作用を調べる高度な柔軟性を提供する。
このプロトコルは、マラセチアsppを有するマウスの実験的皮膚感染について説明する。 現地のガイドラインを確認し、自治体の規制に従ってください。BSL2に分類される生物は、BSL2認定バイオセーフティキャビネット(BSC)の下で訓練を受けた人員によって処理されるべきである。BSL2に分類される生物に汚染された生物廃棄物、ならびにそのような生物に感染したマウスからの死体は、処分前にオートクレーブされるべきである。マウスを用いた実験では、苦しみを最小限に抑え、3R原則(置換、精製、削減)10に従って最高の倫理的および人道的基準を確保するためにあらゆる努力をすべきである。このプロトコルに記載された実験は、M.パキデルマディス(ATCC 14522)、M.ファーフル(ATCC 14521)およびM.シンポディアルリス(ATCC 42132)7で行った。
プロトコル
このプロトコルに記載されているすべての手順は、環境連邦事務所(www.bafu.admin.ch)の封じ込められたシステムにおける生物の取り扱いに関する条例に従って行われた。マウス実験は、スイス動物保護法のガイドラインに従って厳格に行われ、スイスのチューリッヒ州の獣医局によって承認されたプロトコルの下で行われました(ライセンス番号168/2018)。
1. 実験室条件下でのマラセチアの栽培
注:このプロトコルに使用されるすべての試薬と媒体は、特に明記されていない限り、真菌の増殖を阻害する可能性がありますので、室温(RT、20〜25°C)で保管してください。
- マラセチア成長のために液体修飾ディクソン(mDixon)培地を準備する。500mLの液体mDixon培地を調製するには、18gモルトエキス、乾燥オックス胆汁、5mL Tween-40、3 gペプトン、1 mLグリセロールおよび1mLオレイン酸を500mL蒸留H2O(dH2O)で溶解する。HClとオートクレーブを使用して、培地をpH6に調整します。メディアを RT に保存します。
- オートクレーブ処理の前に500 mL mDixon培地に7.5gの寒天を加えてmDixon寒天プレートを準備します。ステアリングバーと磁気加熱プレートを使用してオートクレーブした後、mDixon寒天をゆっくりと冷却し、冷却中に媒体の部分的な固化を避けます。
- 寒天が50〜60°Cに冷却されたら、層流フードでペトリ皿に液体を分配し、一晩RTで乾燥させます。
注:寒天プレートは、蒸発を避けるために巻き付け、逆さまに保つ場合、4°Cで数週間保存することができます。 - プロバイダーが入手した指示に従って、マラセチアの単離物を分離し、凍結乾燥したストックを復活させる。
- 10 mL の液体 mDixon 培地を無菌 100 mL エルレンマイヤーフラスコに接種し、プロバイダーが入手した指示に従って復活したマラセチア懸濁液を使用します。30°Cおよび180rpmで振とうインキュベーターで培養をインキュベートする。
- クリーム色と濁度の出現をチェックして、マラセチア文化の成長を定期的に検査します。成長動態は、マラセチアの種と株に依存し、マラセチアが凍結乾燥したストックから新たに復活すると特に遅くなることがある。(図 1A)。
- mDixon培地で密に成長したマラセチア培養物の3部を無菌99%グリセロールの1部と混合してグリセロールストックを調製する。アリコートマラセチア/グリセロール混合物を滅菌スクリューキャップチューブに入れ、-80°Cで保管する。
- インビトロ伝播の場合、mDixonの液体培養物から、または凍結したグリセロールストックから、接種ループを使用してmDixon寒天プレート(4°からRTに持ち込まれる)にマラセチアをプレートします。
注:冷たいmDixon寒天培地は真菌の成長を阻害するので、使用前に4°CからRTにmDixon寒天プレートを転送します。 - 30°Cの(非揺れ)インキュベーターで、マラセチアを逆さまにして寒天プレートをインキュベートします。マラセチアコロニーの成長を定期的に検査します。
注:mDixon寒天プレート上のマラセチアコロニーは3〜5日以内に現れ、クリーム色の鈍く、凸型の標高で滑らかです(図1B)。 - マラセチアのコロニーをrtの寒天プレートに2週間保存します。その後、1.7に記載されているように冷凍グリセロールストックからマラセチアをストリークして新しいmDixon寒天板を調製する。
2. マウスの実験的なマラセチア感染に対する接種の調製
- mDixon寒天プレートから3〜5個の個々のマラセチアコロニーを有する無菌100mLエルレンマイヤーフラスコ中の液体mDixon培地の10mLを接種する(ステップ1、図1B参照)。
- マラセチア培養物を30°Cで~48~96時間、180rpmで培養物がクリーム色と濁り(図1A)にインキュベートする(図1A)。
注:マラセチアの成長に必要な時間は、マラセチアの種と株と接種に使用される真菌の量に依存します。 - マラセチア培養物の2mLを無菌2mLマイクロ遠心管に移し、遠心分離機を10,000xgで1分間移動する。
- 上清を廃棄し、リン酸緩衝塩溶液(PBS)を1mLにかみつけてペレットを洗浄する。10,000 x gで 1 分間再び遠心分離機 .
- 洗浄後、激しいピペットにより1mLのPBSにペレットを一時停止し、分光計を用いて600nm(ODA600)で溶液の光学密度を測定する。OD測定用のPBSでマラセチア懸濁液20~50倍を希釈し、読み取り値が0.1~1であることを保証します。
注:マラセチアの3日間培養の密度は、一般的に、マラセチアの種と菌株、および培養の接種に使用される酵母細胞の数に応じて、15~30 ODA600の間で変化します(ステップ2.1)。マラセチアは凝集体を形成する傾向があるので、懸濁液の均質性を確保するためには精力的なピペットが必要である。 - アリコートは、4 ODA600の密度に相当するPBS中のマラセチア懸濁液の体積を滅菌2mLチューブに入れます。感染する動物1匹につき1本のチューブを用意する。
- マラセチアを含むチューブを10,000 x gで1分間遠心分離する。
- 上清を廃棄し、天然オリーブオイル(2 ODA600酵母細胞/100°Lオリーブオイルに対応)の200°Lでマラセチアペレットを中断する。
注:オリーブオイルは、マラセチアが親油性および脂質依存性酵母であるため、マラセチアとの上皮感染に適した手段であることが判明した。オリーブオイルはPBSよりも皮膚に吸収される方が良いです。しかし、オリーブオイルでマラセチアを中断することは容易ではないことに注意してください。ボルテックスによるマラセチア/オリーブオイル懸濁液を改善します。感染に使用されるまで、懸濁液はRTに保ちます。 - コントロール動物の模擬感染のためにオリーブオイルだけでチューブを準備します。
3.マウスをマラセチアに感染させる
- 6-8週の年齢で雌C57BL/6マウスを注文し、少なくとも1週間の実験動物施設で順応することができます。感染していない対照群を含む、グループあたり3〜5匹のマウスを計算します。
- PBSで1.3 mg/mLキシラジンおよび6.5 mg/mLケタミンを含む無菌麻酔カクテルを調製する。麻酔カクテルの5 mLは、20匹の動物を麻酔するのに十分です。麻酔する動物の数に応じてカクテルの音量を調整します。
- 腹腔内に麻酔カクテルの体重10μL/gを注入して動物を麻酔し(体重65mgケタミンと13mgキシラジン/体重に対応)、麻酔された動物を37°Cの加熱パッドに置きます。
注:示された用量では、動物は通常~30〜60分間麻酔されたままである。
- 腹腔内に麻酔カクテルの体重10μL/gを注入して動物を麻酔し(体重65mgケタミンと13mgキシラジン/体重に対応)、麻酔された動物を37°Cの加熱パッドに置きます。
- 後足を鉗子でつまんで反射神経を確認し、動物が完全に麻酔されていることを確認します。
- 麻酔中の脱水症状を防ぐために、眼にアイクリームを塗ります。
- 必要に応じて、キャリパー(0~5mmの範囲)を使用して両耳の耳の厚さを測定します。各耳の2つの異なる領域を測定し、耳あたりの平均耳の厚さを計算します。
メモ:耳の厚さを測定することはオプションであり、研究の質問に依存します。しかし、耳の厚さが皮膚炎症の読み出しとして使用される場合は、感染前にベースラインの耳の厚さを測定する必要があります。(ステップ 4 を参照)。 - 必要に応じて、軽度のテープストリッピングによって後耳皮膚の表皮バリアを破壊する:手動で皮膚に小さなテープを適用し、再びそれを取り除きます。各ラウンドに新鮮なテープを使用して、5回連続ラウンドに繰り返します。
注:マラセチアは、不安定な皮膚と比較してバリア崩壊皮膚においてより顕著な皮膚炎症を誘発する(図2A)7. - 無菌ピペットを使用して、マラセチア/オリーブオイル懸濁液の100°L(2 ODA600)を各耳の後ろ側に局所的に塗布します。オリーブオイルのみで処理される動物の対照群を含む(車両処理対照群)。
注:ボルテックスマラセチア/オリーブオイル懸濁液は、アプリケーションの直前に均質なマラセチアサスペンションを確保するために精力的に。 - 麻酔をかけられた動物は、回復の兆候(ウィスカーの動き、呼吸数の増加など)を示すまで低体温を避けるために、加熱パッドに残します。
- 200 μL の無菌および予め温めた 2% グルコース溶液をニュータルフォールドに皮下に注入し、代謝と水分補給をサポートします。
注:滅菌性2%グルコース溶液を調製するには、50mL PBSに1mgのグルコースを溶解し、0.2μmフィルタを使用して濾過します。溶液は4°Cで保存することができる。 - 動物をケージに戻します。
4.マラセチア誘発皮膚炎症の解析
注:この手順は、皮膚炎症のパラメータとして機能する感染中にマラセチア誘発耳腫脹の分析について説明する。真菌による耳の腫脹を分析するための前提条件は、テープ剥離および/または感染の前にベースラインの耳の厚さを測定することです(ステップ3.5)。
- マラセチアの短期麻酔のためのアイソフルラン室を準備する - 感染し、動物を制御します。
- 一度に1匹ずつ室内に移動し、動物が完全に麻酔されるまで待ちます。
注:適切な麻酔の徴候は、完全な身体のリラクゼーションだけでなく、遅くて重い(側面)呼吸を含みます。アイソフルランへの長時間暴露は致命的であり得るので、麻酔を注意深く監視する。 - チャンバーから動物を取り出し、組織の上に置きます。
- キャリパー(範囲0~5mm)を使用して耳の厚さを測定します。各耳の2つの異なる領域を測定し、耳あたりの平均厚さを計算します(ステップ3.5を参照)。
- 動物をケージに戻します。
注:アイソフルラン麻酔は非常に短命であり、動物はアイソフルラン室から除去した後〜30s以内に回復します。 - テープ剥離や感染の前に測定された平均ベースライン耳の厚さを、感染後の各時点で測定された平均耳の厚さから差し引くことによって、耳の厚さの増加を計算します。
- 計算された値を耳の厚さの増加としてプロットするか、または、代わりに、各動物または動物のグループの時間の経過に従って総耳の厚さとしてプロットする(図2B)。
5. 感染した皮膚における真菌負担の分析
- 収穫する各耳に滅菌2mLマイクロ遠心管を用意し、dH2Oに0.5mLの滅菌0.05%NP40とオートクレーブ鋼球(直径5mm)を含む。
- 精密バランスを使用してチューブを計量し、正確な重量を書き留めます。
- CO2窒息によりマウスを安楽死させる。
- ステップ5.1~5.2の説明に従って、ベースで耳を取り出し、0.5 mLの滅菌0.05%NP40を含むチューブにdH2Oで移します。
- 耳組織を含むチューブを計量し、臓器とチューブの重量から臓器のないチューブの重量を差し引くことによって、各サンプルの実際の重量を計算します。
- 組織ホモジナイザーを用いて25Hzで6分間耳組織を均質化する。組織が十分に均質化されていることを確認します。
- 各サンプルのプレート100μL(各ホモジネートの1/5に対応し、希釈係数=5)をmDixon寒天プレートに、30°Cのインキュベーターで逆さまにプレートをインキュベートする。
注:ホモジネートめっきの量は、予想される真菌負荷に応じて調整する必要があります。容易な列挙を可能にするために、プレートあたり少なくとも10と250以上のコロニーを得るために十分なホモジネートをプレートしてください。必要に応じて、ホモジネートの異なる希釈を有するサンプルごとに複数のプレートをプレートする。 - マラセチアコロニーの成長を定期的に検査します。
注:コロニーは通常2-3日後に表示されます。マラセチア植民地が成長するために必要な時間は、マラセチアの種と株に依存します。 - プレートごとにコロニーを数えます。
- 次の式を使用して、CFU/g 組織の数を計算します。
CFU/g組織=(コロニー/プレート数)x(希釈係数)/(gにおける皮膚試料の重量)。
注:おおよその最小検出限界は、次の式を使用して評価することができます:最小検出限界=(1コロニー/プレート)x(希釈係数)/(g内のすべての皮膚サンプルの平均重量)。 - 真菌荷重は通常、対数スケールでプロットされます(図2C)。
結果
マラセチアのインビトロ栽培
C.アルビカンスやA.フミガトゥスのような他の一般的に使用される真菌モデル病原体と比較して、マラセチアはインビトロで培養するのがより困難である。これは、マラセチアが脂肪酸11を合成することができないため、その栄養要件のために除素性脂質源に依存しているという事実に起因することができる。mDixon培地は、M.パキデルマリス、M.フルファー、M.シンポディアルリス、M.スロフィアエ、M.グロボサ、M.ヤマトエンシスを含むいくつかのマラセチア種をインビトロ7で培養するのに適しています。 、12.図1は、ステップ1およびステップ2で説明した液体mDixon培地およびmDixon寒天におけるM.シンポディアルリスの増殖に関する代表的な画像を示す。
マラセチア皮膚炎症の皮膚炎症と真菌負担の解析
感染前にテープストリッピングによってバリアが崩れたマウス耳皮膚へのマラセチアの暴露は、表皮および真皮過形成および浮腫7の発症を特徴とする皮膚の炎症を悪化させる結果となる。ステップ4および5は、マラセチア誘発耳腫脹および皮膚の真菌負担を分析するための方法の概要を示す。どちらのパラメータも、感染の経過を監視するための主要な読み出しを表します。図2Aは、WT C57BL/6マウスの不安定な皮膚と比較してバリア破壊された皮膚へのM.ファーフ暴露後に観察できる耳厚さの増加を示す。図2Bは、経時的な耳厚さの増加の代表的な要約グラフを示す。図2Cは、M.パキデルマ症に感染した後の2日目に耳皮膚の真菌負担を示す。
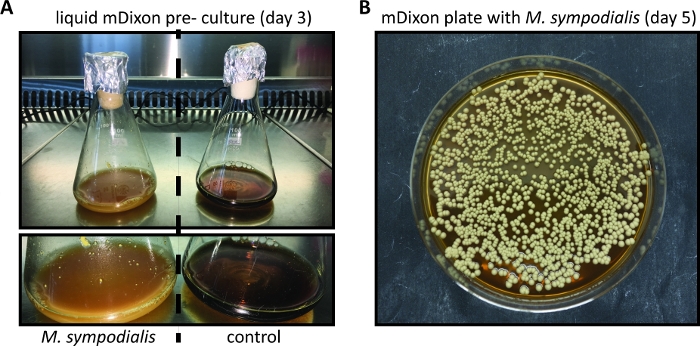
図1:マラセチアのインビトロ栽培
(A)M.シンポディアリス株ATCC 42132は、接種されなかったmDixon培地を含むコントロールエルレンマイヤーフラスコの横に、30°Cで3日間、180rpmで成長した液体mDixon培地(左)である(右)。(B) M.シンポディアルリス株ATCC 42132のコロニーは、30°Cで5日間インキュベーションした後、mDixon寒天上に及ぶ。この図の大きなバージョンを表示するには、ここをクリックしてください。
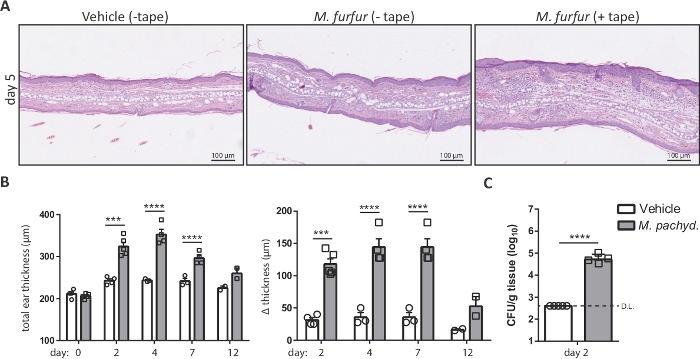
図2:耳の厚さと真菌の負担に基づくマラセチア皮膚感染症の分析
(A)オリーブオイル(車両、左)で治療したC57BL/6マウスから得られた耳切りの細胞学、またはM.ファーフルフ株JPLK23に5日間(中右)で感染した。右側では、耳の皮膚は感染前にテープストリップされた。切片をヘマトキシリンとエオシン(H&E)で染色した。(B)マラセチアにさらされた、またはコントロールとして感染していないままのC57BL/6マウスの経時的な耳の厚さの増加を示す要約グラフ。M.パキデルマディス株ATCC 14522露出または車両処理された耳の皮膚の絶対厚さは、左側に表示されます。0 日目のベースラインに対して示された時点での耳の厚さの増加が右側に表示されます。(C)M.パキデルマミス株ATCC 14522に感染したC57BL/6マウスの皮膚における真菌負担は、対照(車両)としてオリーブオイルで処理された。どちらの場合も、皮膚はテープストリップされた。サマリーグラフBおよびCの各シンボルは1匹の動物を表す。グループ間の差の統計的有意性は、一方向ANOVA(B)またはスチューデントt検定(C)を用いて計算した。p <0.001, ****p <0.0001, D.L.: 検出制限この図の大きなバージョンを表示するには、ここをクリックしてください。
ディスカッション
このプロトコルは、マラセチアsppによって一般的に使用される近交マウス株C57BL/6の皮膚の感染を記述する。このプロトコルを、異なる遺伝的背景を持つ他のマウス株(例えば、Balb/c)または遺伝子組み換えマウスに適応させる株は、感染量、分析の時点等の調整が必要な場合があります。再現性を確保するために、マウスのグループは常に同じ年齢と性別である必要があります。マウスの供給源は、遺伝的背景のわずかな変化や、ベンダー間に存在し、単一の繁殖施設の異なる単位間でも存在する可能性がある微生物叢のわずかな変化でさえ、安定した状態に保たれるべきである。感染のコース。このプロトコルに記載されているマラセチア感染モデルを設定する場合は、コロニー形成の程度、真菌クリアランスの動態およびの程度を含む感染の経過を注意深く監視するパイロット研究を行うことをお勧めします。誘発されかねな炎症および病理(例えば、感染前に耳の皮膚がバリアが崩壊した場合)、最適なアッセイ条件を決定する。
再現性を確保し、実験群間の差異を確実に検出するには、統計解析に基づいて群当たりの動物の数を計算する必要があります。サンプルサイズは、生物学的および実験的な変動(例えば、免疫系の変動による)を考慮する効果サイズ、誤差率およびパワーに基づいて計算される。倫理的な理由から、不必要に多くの動物を使用することは避けてください。マラセチア皮膚感染症に関しては、片方の耳だけを真菌で治療し、もう一方の耳を同じマウス内のコントロールとして使用することは、マウスがグルーミング時に真菌を両耳に広げる可能性があるため、お勧めできない。しかし、真菌の負担の決定、免疫細胞の分離または組織学的分析など、異なる方法論的読み出しに1/2耳を使用すると、多くの場合、十分であり、実験に使用される動物数の有意な減少をもたらす。
マラセチアの18種類が最新に記載されている。マラセチア属内の種間および連種内の変動は、他のヒト病原性真菌13に関する研究からも学んだように、宿主との相互作用に影響を及ぼし得る。異なるマラセチア種と菌株は、その起源が異なる(例えば、M.パキデルマリスは動物から分離された最も頻繁な種であり、M.リミサ、M.グロボサおよびM.シンポジアルが最も多い異なる皮膚領域間のこれらの種の可変分布を有するヒトにおける真菌皮膚微生物叢の顕著なメンバー)。一部の種は共生主義に関連しているが、他の種はより病原性であると考えられているが、詳細な証拠は比較的弱いままである。重要なことに、いくつかの種や株は、本質的に他のものよりも成長するのが難しいです。したがって、感染に使用する種/株の決定は、研究の質問に基づいて行う必要があります。
カンジダ・アルビカンスや黄色ブドウ球菌などの微生物を用いたマウス皮膚の実験的感染は、感染前の表皮関門の破壊を必要とする、 15、16.対照的に、ここで説明するマラセチア感染症のモデルは、バリア破壊7の有無にかかわらず等しく効率的である。真菌によって誘発される炎症の程度は、皮膚が感染7の前にテープ剥離された場合に大幅に増強される。したがって、マラセチアの適用前に皮膚を操作する必要があるかどうかは、研究の問題に依存します。慢性および急性皮膚炎症の様々なモデル(例えば、遅延型過敏症(DTH)および接触過敏症(CHS))のモデル)および対心不全のモデルが存在し、共生酵母の寄与を調べる上で興味深い可能性がある皮膚病理学に。
特定の病原体遊離(SPF)条件下で維持された近親交配マウスは、マラセチアと自然にコロニー形成されていない(我々の知る限り)。したがって、マウス耳皮膚へのマラセチアの実験的応用は、宿主において急性応答を誘導する真菌への一次暴露を表し、これは1〜2週間7以内に真菌クリアランスにつながる。したがって、このプロトコルに記載されているモデルは、免疫能力のあるヒトまたはマラセチアと永久に植民地化された他の宿主生物の状況を部分的に反映するだけであるが、実験的感染は十分な窓を可能にする抗真菌免疫と、この応答の根底にある細胞および分子機構を研究する機会。また、異なる実験条件下での異なるマラセチア種および株に対する応答の変動を調査することも可能である(例えば、皮膚のバリア破壊の有無にかかわらず)。
マラセチアの研究 - 宿主相互作用は、培養中の単離された細胞型(例えば、ケラチノサイト細胞株、PBMC)を用いたin vitro実験に過去に限られていた。これらの研究は、マラセチアと宿主17の間の相互作用を形作る真菌と宿主決定要因にいくつかの光を当てていますが、彼らは真菌の包括的な理解を得ることを許していません - 複合体の宿主相互作用ケラチノサイト、線維芽細胞、組織常駐免疫細胞など、絶えずコミュニケーションを行う複数の細胞型を含む皮膚の環境だけでなく、微生物の遭遇時にのみ組織に浸透する白血球集団皮膚。この多細胞ネットワークは、最先端のオルガノイドシステムでも、in vitroモデルでは完全に再現できません。従って、マウスの実験的感染は、免疫学および感染症研究におけるゴールドスタンダードであり、ここで説明するモデルの利用可能性は、マラセチア研究の分野におけるブレークスルーを表している。重要なことに、このモデルは、他の方法で不安定なマウス耳の皮膚上のマラセチアの皮状適用に依存し、組織への注射による真菌の接種を意味しない、例えば、皮下または腹腔内として、以前の研究は18を報告し、どちらも自然に植民地化された宿主の状況からより遠い。
このプロトコルで説明されているマラセチア感染のモデルを他の利用可能なマウスモデルと組み合わせる可能性は、アプリケーションの範囲と柔軟性を大幅に増加させます。後者は、アトピー性皮膚炎の重要な特徴を模倣するバリア欠乏症のモデル、ヒトと犬の両方でマラセチアに関連する疾患など、特定の皮膚疾患の様々なモデルを含む。さらに、マラセチアを用いた皮膚の皮上感染は、目的の宿主遺伝子に遺伝的欠陥を有するマウス、または目的の細胞型が遺伝的に欠失されたり、薬理学的に枯渇したりできるマウスに容易に適用できる(例えば、手段によってジフテリア毒素受容体発現マウスにおけるジフテリア毒素投与の。このようなモデルは、マラセチアを含むコンメンサルおよび病原性微生物に対する宿主応答を解剖し、真菌宿主相互作用におけるこれらの遺伝子および細胞型の役割を評価するための避けられないツールを表す。マラセチア-宿主皮膚相互作用の分析は、このプロトコルに記載されているものよりもはるかに拡張することができる。これらには、組織学による分析(例えば、真菌によって誘発される皮膚病理または表皮肥厚の程度を決定する)、細胞型に対する抗体を用いた組織切片の免疫組織化学または免疫蛍光染色による分析が含まれる。目的の特定のマーカーまたは他の分子。また、感染した皮膚組織からの細胞(例えば、組織常駐または組織浸潤白血球サブセット)の単離を伴い、マラセチアに対する免疫応答の偏光、調節、およびダイナミクスを深く研究する。
開示事項
著者たちは何も開示する必要はない。
謝辞
この作品はスイスのチューリッヒ大学の支援を受けた。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 寒天 | Sigma-Aldrich | A1296-1KG | |
| Attane Isoflurane | Piramal | Healthcare-Biosaftey | |
| キャビネット (BSC) より速い 超安全 | DASIT GROUP | TEC 5594 | BSL2 認定 |
| 遠心分離機 | Eppendorf | 5415D | 2ml Eppendorf チューブと互換性があります |
| Dessicated Ox-bile | Sigma-Aldrich | 70168-100G | |
| エッペンドルフチューブ(2 ml) | エッペンドルフ | 0030 120.094 | |
| コース | Sigma-Aldrich | 49159-5KG | |
| ギルセロール(99%) | ハネウェル10314830 | ||
| 加熱パッドアイ | ケンマイヤー | 648048 | |
| インキュベーターヘレウスB20 | レウス | 412047753 | BSL2認証 |
| ケタゾール(100 mg) | Graeub AG | ||
| マゼンティックヒーティングプレート MR Hei-Standard | Heidolph Instruments | 442-1355 | |
| Malassezia spp. | ATCC | 14522、14521、42132 | |
| 麦芽エキス | Sigma-Aldrich | 70167-500G | |
| マルチプライバイオスフィアチューブ(200µl) | Sarstedt AG | 7084211 | Safelock |
| ネイティブオリーブオイル | - | -市販 | |
| Nonidet P40 | Axon Lab | A1694,0250 | |
| Oditest 測定装置クロー | プリン | S0247 | 範囲 0-5 mm |
| オレイン酸 | Sigma-Aldrich | 75090-5ML | |
| ペプトン | オキソイド | LP0037 | |
| シャーレ | Sarstedt AG | 82.1473 | |
| リン脂質緩衝塩溶液 (PBS, 1x) | Amimed/Bioconcept | 3-05F39 | |
| Rompun (2 %) | Bayer | KP0BFHR | |
| Shaking incubator Infors Minitron | Infors-BSL2 | certified | |
| Spectrometer | Jenway | 20308 | 600nm |
| での光学密度測定分光器 | キュベット グライナー バイオワン | 613101 | |
| ステンレスボール (5mm) | ABF | KU.5G80 1.3541 | |
| シリンジ 1 ml サブQ | BD バイオサイエンス | 305501 | |
| ティッシュ ライザー II | クイアゲン | 85300 | |
| トランスポア 低アレルギーテープ | 3M | 1527-1 | |
| ツイーン 40 | シグマ・アルドリッチ | P1504-100ML | |
| ビタミンAレチノリパルミタスアイクリームバ | ウシュ&LOMB | コマーチャントあり |
参考文献
- Iliev, I. D., Leonardi, I. Fungal dysbiosis: immunity and interactions at mucosal barriers. Nature Reviews Immunology. 17 (10), 635-646 (2017).
- Findley, K., et al. Topographic diversity of fungal and bacterial communities in human skin. Nature. 498 (7454), 367-370 (2013).
- Gemmer, C. M., DeAngelis, Y. M., Theelen, B., Boekhout, T., Dawson, T. L. Fast, noninvasive method for molecular detection and differentiation of Malassezia yeast species on human skin and application of the method to dandruff microbiology. Journal of Clinical Microbiology. 40 (9), 3350-3357 (2002).
- Theelen, B., et al. Malassezia ecology, pathophysiology, and treatment. Medical Mycology. 56, suppl_1 10-25 (2018).
- Williams, M. R., Gallo, R. L. The role of the skin microbiome in atopic dermatitis. Current Allergy and Asthma Reports. 15 (11), 65(2015).
- Malassezia and the Skin. , Springer. (2010).
- Sparber, F., et al. The Skin Commensal Yeast Malassezia Triggers a Type 17 Response that Coordinates Anti-fungal Immunity and Exacerbates Skin Inflammation. Cell Host Microbe. 25 (3), 389-403 (2019).
- Koh, A. Y. Murine models of Candida gastrointestinal colonization and dissemination. Eukaryotic Cell. 12 (11), 1416-1422 (2013).
- Solis, N. V., Filler, S. G. Mouse model of oropharyngeal candidiasis. Nature Protocols. 7 (4), 637-642 (2012).
- Russel, W. M. S., Burch, R. L. The Principles of Humane Experimental Technique. , Methuen & Co. London. (1959).
- Wu, G., et al. Genus-Wide Comparative Genomics of Malassezia Delineates Its Phylogeny, Physiology, and Niche Adaptation on Human Skin. PLoS Genetics. 11 (11), 1005614(2015).
- Leong, C., Buttafuoco, A., Glatz, M., Bosshard, P. P. Antifungal Susceptibility Testing of Malassezia spp. with an Optimized Colorimetric Broth Microdilution Method. Journal of Clinical Microbiology. 55 (6), 1883-1893 (2017).
- Schonherr, F. A., et al. The intraspecies diversity of C. albicans triggers qualitatively and temporally distinct host responses that determine the balance between commensalism and pathogenicity. Mucosal Immunology. 10 (5), 1335-1350 (2017).
- Igyarto, B. Z., et al. Skin-resident murine dendritic cell subsets promote distinct and opposing antigen-specific T helper cell responses. Immunity. 35 (2), 260-272 (2011).
- Liu, H., et al. Staphylococcus aureus Epicutaneous Exposure Drives Skin Inflammation via IL-36-Mediated T Cell Responses. Cell Host Microbe. 22 (5), 653-666 (2017).
- Nakagawa, S., et al. Staphylococcus aureus Virulent PSMalpha Peptides Induce Keratinocyte Alarmin Release to Orchestrate IL-17-Dependent Skin Inflammation. Cell Host Microbe. 22 (5), 667-677 (2017).
- Sparber, F., LeibundGut-Landmann, S. Host Responses to Malassezia spp. in the Mammalian Skin. Frontiers in Immunology. 8, 1614(2017).
- Yamasaki, S., et al. C-type lectin Mincle is an activating receptor for pathogenic fungus, Malassezia. Proceedings of the National Academy of Sciences of the United States of America. 106 (6), 1897-1902 (2009).
再版と許可
