ここでは、骨肉腫由来細胞外小胞で治療した間葉系幹細胞における間葉系幹細胞における、メチル化特異的プローブ増幅法を用いて、LINE-1要素のメチル化レベルを解析する。ウシ胎児血清から細胞外小胞を分離するための一般的な手順である超遠心分離も実証されている。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
方法論記事
骨肉腫由来細胞外小胞で治療した間葉系幹細胞のメチル化解析
* These authors contributed equally
この記事について
サマリー
要約
メチル化特異的プローブ増幅(MSPA)は、DNAサンプルのメチル化レベルの相対的な差異を検出するために使用できる、シンプルで堅牢な手法です。それは、機知に富み、少量のDNAを必要とし、約4〜5時間の実作業を要します。提示された技術では、DNAサンプルはまず、メチル化または参照部位のいずれかでDNAを標的とするプローブに対してハイブリダイズされます。ハイブリダイズされたDNAは並列反応に分離され、1つはライゲーションのみを受け、もう1つは結紮を受け、もう1つは非メチル化GCGC配列でHhaI媒介消化を経る。得られたDNA断片はPCRにより増幅され、毛細管電気泳動によって分離される。メチル化GCGC部位はHhaIによって消化されず、ピークシグナルを生成しますが、非メチル化GCGC部位は消化され、ピーク信号は生成されません。各サンプルの消化済みおよび未消化のバージョンの制御正規化ピークを比較すると、DNAサンプルのメチル化投与量比が得られます。ここでは、MSPAは間葉系幹細胞における長い間在在核元素1(LINE-1)のメチル化状態に対する骨肉腫由来細胞外小胞(EV)の影響を検出するために使用される。LINE-1sは、通常、癌において低メチル化を受ける反復的なDNA元素であり、この能力において、バイオマーカーとして働く可能性がある。超遠心分離はまた、生物学的流体から細胞外小胞を分離するための費用対効果の高い方法として使用される(すなわち、EV枯渇した胎児ウシ血清[FBS]を調製し、骨肉腫条件化培地[差動遠心分離]からEVを単離する場合)。メチル化分析のために、カスタムLINE-1プローブは、LINE-1プロモーター配列と7つの制御部位の3つのメチル化部位を対象とするように設計されています。このプロトコルは、LINE-1メチル化分析のためのMSPAの使用を実証し、超遠心分離によるEV枯渇FBSの調製を記述する。
概要
DNAメチル化は、ヒト細胞で起こる主要なエピジェネティック修飾である。DNAメチル化とは、CpGジヌクレオチド中のシトシン残基に対するメチル基の結合をいう。このようなジヌクレオチドは、通常、遺伝子1の5'領域のクラスター(CpG島)に見られる。正常な細胞では、これらのジヌクレオチドの大部分は非メチル化状態で存在し、DNA転写を可能にする。なお、多くの癌は、高メチル化CpG島および転写抑制2に関連しており、特に腫瘍抑制遺伝子において、癌3の様々な特徴に寄与する。
一方、長い散在核元素-1(LINE-1またはL1)は、CpG諸島で通常高レベルのメチル化を有する反復的でトランスポーザブルなDNA元素である。LINE-1のメチル化は転位を防ぎ、ゲノムの完全性を維持するのに役立つ。いくつかのタイプの癌において、LINE−1は、低メチル化され、活性化およびそれに続く経転媒性染色体不安定性4をもたらす。LINE-1はヒトゲノム5のほぼ17%を占め、そのメチル化状態は、世界のゲノムメチル化レベル6の指標として役立つ可能性がある。グローバルLINE-1ハイメチル化は、細胞から腫瘍表現型7への移行に先立つと考えられている。したがって、早期癌発症の潜在的なマーカーとしての約束を保持する。
現在、メチル化分析には、ピロースケンシング、メチル化特異的PCR、マイクロアレイ、クロマチン免疫沈降法1など、いくつかの方法があります。次世代シーケンシングの使用により、DNAメチル化の検出にゲノム全体のアプローチを組み込むことも可能になりました。これらの方法の多くは、非メチル化シトシンがウラシルに変換され、メチル化されたシトシンが変わらないバイサルファイト処理DNAに依存しています。しかし、亜硫酸水素塩処理DNAを使用すると、非メチル化シトシンからウラシルへの不完全な変換、配列の偏った増幅、シーケンシングエラーなど、いくつかの落とし穴があります。
メチル化特異的プローブ増幅(MSPA)において、メチル化感受性制限酵素HhaI9に対する制限部位(GCGC)を含む2つのオリゴヌクレオチド標的DNA配列からなるプローブ。プローブがDNAにハイブリダイズした後、各サンプルは2つのセットに分けられます。第1セットのプローブはライゲーションを受け、第2セットではプローブがライゲーションを受け、次いでメチル化されていないCGCG部位でHhaI媒介消化を行う。その後、両方のサンプルセットをPCRで増幅し、キャピラリー電気泳動により分離します。非メチル化部位のプローブはHhaIによって消化され、PCR中に増幅されず、ピークシグナルが発生しません。これに対して、メチル化部位のプローブは消化から保護され、PCR中に増幅され、その後ピークシグナル10を生成する。
MSPAには、代替方法に対していくつかの利点があります。まず、少量のDNA(50~100ng)を必要とし、ホルマリン固定パラフィン埋込サンプル10からDNAを分析するのに適しています。これは、亜硫酸水素塩処理DNAを必要としません;実際、この方法で修飾されるDNAには適していません。同時に多くのサンプルを分析することができ、MSPAプローブは複数の遺伝子または配列を同時に標的にするように設計することができます。さらに、プローブは、HhaI制限部位がCpG島10の典型的な配列に対応するように、メチル化DNAに対して特異的かつ感受性である。
本研究では、脂肪組織由来間葉系幹細胞(AT-MSC)におけるLINE-1メチル化に対する骨肉腫(OS)由来細胞外小胞(EV)の影響を調べた。図 1を参照してください。EVは、ほとんどの細胞タイプによって分泌されるナノスケールの膜結合小胞です。それらは、親細胞11、12からタンパク質、脂質、mRNA、マイクロRNA、および追加の分子を運びます。EVは細胞間通信を媒介し、いくつかの病態生理学的条件において重要な役割を果たす13、14。最近の研究では、癌由来のEVが能動的なLINE-1をレシピエント細胞15に移す可能性が示された。HOS-143B細胞系のEVは、他の遺伝的効果16に加えて、MSCにおけるLINE-1のメチル化状態を変化させることができることが以前に報告されている。
EV単離のために細胞を増殖させる場合、FBS由来のEVは他の供給源からのEVを妨害し、結果17、18を妨げる可能性があるため、成長培地にEV枯渇したウシ血清[FBS]を使用することが重要である。超遠心分離は、FBSからEVを枯渇させる最も一般的な方法の1つです。これは、限外濾過や商用EV枯渇FBS19などの代替手段と比較して、比較的簡単で費用対効果の高い手順です。ここで、このプロトコルは、超遠心分離によってEVで枯渇したFBSを調製する方法も示す。
この記事では、OS 細胞系からの EV の分離から、OS-EV 処理された MSC における LINE-1 のメチル化解析まで、前述の技術に関する詳細なプロトコルを紹介します (図 1)。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
この研究は、ヘルシンキとウシマ病院地区の倫理委員会によって承認されました(倫理承認第217/13/03/02/2015)。
1. 超遠心分離によるEV枯渇FBSの調製
- FBSを(超)遠心管に入れ、超遠心分離機のバケツに入れ。超遠心分離がスムーズかつ安全に実行されるように、互いの10mg以内のバケットのバランスをとります。
- バケットをスイングローターにロードします(SW28、kファクター246と入力)。ローターを超遠心分離機に入れ、4 °Cで19時間100,000 x gで走ります。
- 上清の明るい色の上層(約9分の1)を注意深く集め、50mLチューブに移します。FBSのEVが含まれているため、ダークブラウンペレットを邪魔したりピペットしたりしないでください。
- 0.22 μm フィルターを通して上清を新しい 50 mL チューブに渡します。
- EV分離のために細胞を成長させた場合、細胞培養培地にフィルター滅菌、EV枯渇FBSを加える。
2. 骨肉腫由来EVの分離
- プレートOS細胞(HOS-143B細胞株)は、RPMI 1640培地を有するT-175フラスコに、10%の正常FBSおよび1%の抗生物質(100 U/mLペニシリン、0.1mg/mLストレプトマイシン)を補充した。フラスコを37°Cおよび5%のCO2のインキュベーターに置く。
- フラスコが70%~80%のコンフルエントな場合、リン酸緩衝生理食塩水(PBS)で細胞を洗浄し、10%のEV枯渇FBS(以下EV枯渇培地と呼ばれる)を含む培地で増殖させます。
注:T175フラスコで1 x 10⁶ 6 HOS-143B細胞をメッキすると、約60時間後に70%のコンフルエンシーに達する。 - 次の48時間の間に、24時間ごとに骨肉腫細胞から調整された培地を収集し、新鮮なEV枯渇培地を追加します。
- 4°Cで20分間2500 x gで調整培地を遠心分離し、細胞および細胞の破片を除去します。上清を新しいチューブに移し、下部に約2 mLの媒体を残します。
注: この段階で EV 分離を直接進めなければ、上清は -80 oC で保管できます。 - 上澄み剤を超遠心管に注ぎ、以前と同じバランスをとります。4 °Cで2時間100,000 x gでチューブを遠心分離する。
- 上清を慎重に捨て、底部に1mL前後を残します。チューブとピペットに約20 mLのPBS(0.1μmろ過)を加え、EVペレットを洗って再懸濁します。
- チューブのバランスをとり、同じ設定で超遠心分離の別のラウンドを実行します。
- 上清を慎重に取り出し、穏やかなピペッティングで200μLのPBSにEVペレットを再懸濁します。低結合チューブに EV を格納します。
注: EV は、必要になるまですぐに使用することも、-80 °C で保存することもできます。
3. OS-EVの特性評価
注:精製されたEVは、ウェスタンブロッティング(WB)、ナノ粒子追跡分析(NTA)、透過電子顕微鏡(TEM)16によって特徴付けることができます。
- EVマーカーCD63、TSG101、およびHsp70を用いて標準プロトコル16に従ってWBを行い、かつ、EVサンプル20の純度を示す負の対照としてカルネキシンを用いた。
- NTAの場合、まず、ダルベッコのPBSをろ過した0.1μmでEVサンプルを希釈し、フレームあたり30~100個の粒子を得ます。
- サンプルの約500μLを1 mLのシリンジに取り込み、NTAインストゥルメントの入口ポートにロードします。正確な測定のために、フレームごとに十分な粒子があることを確認してください。
- NTAソフトウェアを開き、周囲温度でカメラレベル13を使用して、60sの持続時間の5つのビデオを記録します。分析中は、検出しきい値 = 5、ゲイン = 10 を使用します。
- 前述の21に従って、TEM による EV サンプルの分析
4. AT-MSC 文化
注:間葉系幹細胞分離のためのヒト脂肪組織は、脂肪吸引吸引吸引吸引として提供された(フィンランドレーザーティルッカ株式会社形成外科)。書面によるインフォームド・コンセントは、選択的脂肪吸引処置を受けていた脂肪吸引ドナーから取られた。
- 標準的な機械的および酵素的分離方法22を使用して、脂肪吸引吸引吸引から AT-CS を分離する。
注: 他のソース(市販の細胞株を含む)からのMSCも使用することができます。
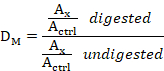
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
本研究の主な目的は、MS-EVがMSCに及ぼすエピジェネティックな影響を評価することであった。ウェスタンブロッティングによる代表的なEVマーカーCD63、Hsp70、TSG101の発現は、OS−EVの存在を確認した。(図2A)。カルネキシンシグナルの欠如は、OS−EV分離の純度を示した。TEMではさらなる純度の指標が認められ、様々なサイズの無傷の小胞が存在する(図2B)。平均OS-EV粒子濃度は7.63x10¹¹/mL(図2C)であった。EVのサイズ分布は50~500nmで、約80%の粒子が50~200nmの範囲に収まる(図2D)。
AT-MCCはOS-EVで処理され、DNAは異なる時刻でM...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
この研究は、MSPAを使用して特定の遺伝的要素のメチル化状態を検出し、定量化する方法を示しています。ここでの焦点はLINE-1でしたが、プローブは遺伝子や配列の範囲をターゲットに設計することができます。さらに、さまざまな用途に利用できるプローブミックスのリストが増えています。MSPAは、亜硫酸水素変換10を必要としないDNAメチル化分析のための簡単で堅牢な技術です。サンプルの準備からデータ分析までの完全な手順は約 2 日かかりますが、実際の実践的な作業は 4 ~ 5 時間しか必要とされません。ここに示すように、少量のDNA(70ng以下)に適用可能です。
メチル化分析プロトコルの最も重要な部分は、この研究におけるLINE-1プローブミックスのようなカスタムプローブミックスの調製である。その長さが異なるために、LINE-1プローブオリゴヌクレオチドは4〜40nMの範囲で合成されたため、溶解ステップとその後の希釈液は、製造業者の指示25に従って慎重に行わなければならなかった。ここで使用される...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者たちは開示するものは何もない。
謝辞
この研究は、ヘルシンキ大学プロジェクト資金(WBS490302、WBS73714112)ヘルシンキ大学病院国立大学レベルの健康研究のための資金(Y1014SUL05、TYH2016130)、フィンランドノルウェー医療財団、セルマとマジャ・リサ・セランダー基金(ミネルバ財団)。私たちは、変更されたMSPAプロトコルを提供し、関連する技術サポートのためにウォルター・パヴィッチに感謝します。ティーム・マザリン(ヘルシンキ大学)がビデオ制作を手伝ってくれたことに感謝しています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 用 | 1 mL シリンジ | テルモ | SS+01T1 |
| コーニング | 3524 | MSC 細胞培養 | |
| 3730xl DNA アナライザー | Applied Biosystems, ThermoFisher Scientific | 3730XL | |
| 50 mL 遠心チューブ | コーニング | 430829 | |
| ベックマン オプティマ LE-80K 超遠心分離機 | ベックマン | ||
| BlueStar Prestained Protein Marker | Nippon Genetics | MWP03 | WB: タンパク質マーカー |
| カルネキシン (クローン C5C9) | Cell Signaling Technology | 2679 | WB, 希釈率 1:800 |
| CD63 (クローン H5C6) | BD Biosciences | 556019 | WB, 希釈率 1:1000 |
| Centrifuge 5702 R | Eppendorf | 5703000010 | 馴染培地および細胞用 |
| Centrifuge 5810 | Eppendorf | 5810000010 | スピンダウン用 96ウェルプレート |
| 遠心チューブ (ポリアロマー, 14x95 mm) | Beckman | 331374 | 超遠心分離 |
| DMEM/F-12 + GlutaMAX 培地 | Gibco, Life Technologies | 31331-028 | AT-MSC培養用 |
| ウシ胎児血清 | Gibco, Life Technologies | 10270-106 | |
| GeneScan 500 LIZ サイズ標準 | 適用バイオシステムズ、ライフサイエンス | キャ | ピラリー電気泳動用 |
| GenomePlex 完全全ゲノム増幅(WGA)キット | Sigma | WGA2-10RXN | MSPAネガティブコントロール用 |
| Hi-Diホルムアミド | Applied Biosystems、Life Technologies | 4311320 | ピラリー電気泳動用 |
| HOS-143B細胞株 | ATCC | CRL-8303 | |
| Hsp70 (クローン 5G10) | BD Biosciences 554243 | WB、希釈 1:1000 | |
| IRDye 800CW ヤギ抗マウス | Li-Cor | 926-32210 | WB: 二次 |
| IRDye 800CW ヤギ抗ウサギ | Li-Cor | 926-32211 | WB: 二次 |
| LINE-1 プローブミックスプライマー | IDT | 表 1 | |
| MicroAmp Optical 96-well 反応プレート バーコード付き | Applied Biosystems, Life Technologies | 4306737 | にはシーリングフィルムも必要です |
| マイクロBCAタンパク質アッセイキット | サーモフィッシャーサイエンティフィック | 23235 | タンパク質濃度の測定 |
| MiniProtean TGX 10% ゲル | バイオ・ラッド | 456-1034 | WB: ゲル電気泳動 |
| NanoSight LM14C | NTA | マルバーン機器 | |
| 0.2 & マイクロ;m | バイオ・ラッド | 1620112 | WB: タンパク質導入 |
| NucleoSpin Tissue XS | Macherey-Nagel | 740901.50 | DNA 抽出用 |
| Odyssey Blocking Buffer | Li-Cor | 927-40000 | WB: ブロッキング、抗体 |
| PBS、1X | Corning | 21-040-CVR | |
| ペニシリン-ストレプトマイシン | Gibco、Life Technologies | DE17-602E | 抗生物質培地 |
| Protein LoBind tube, 0.5 mL | Eppendorf | 22431064 | Evs |
| REVERT Total Protein Stain and Wash Solution Kit | Li-Cor | 926-11015 | WB: 総タンパク質染色 |
| RKO 細胞株 | ATCC | CRL-2577 | MSPA ポジティブコントロール |
| RPMI 培地 1640 + GlutaMAX | Gibco, Life Technologies | 61870-010 | HOS-143B 細胞培養用 |
| サルサ MLPA HhaI 酵素 | MRC-ホランド | SMR50 | |
| サルサ MLPA 試薬キット | MRC-ホランド | EK1-FAM | |
| SALSA MLPA P300 プローブミックス | MRC-ホランド | P300-100R | |
| スイングローター SW-28 | ベックマン・コールター | 342207 | 超遠心シ |
| リンジ フィルター、0.22 & マイクロ;m | Jet Biofil | FPE-204-030 | 滅菌ろ過 FBS |
| Tecnai 12 | FEI Company | with Gatan Orius SC 1000B CCD-camera (Gatan Inc., USA); for TEM | |
| TBS, 1X tablets | Medicago | 09-7500-100 | WB: バッファー |
| Trans-Blot Turbo | Bio-Rad | WB: トランスファー | |
| サーマルサイクラー | ThermoFisher Scientific | ||
| TrypLE Express | Gibco | 12604-021 | 細胞のトリプシン化用 |
| TSG101 (クローン 4A10) | Sigma | SAB2702167 | WB、希釈率 1:500 |
参考文献
- Esteller, M. Cancer epigenomics: DNA methylomes and histone-modification maps. Nature Reviews Genetics. 8, 286-298 (2007).
- Herman, J. G., Baylin, S. B. Gene silencing in cancer in association with promoter hypermethylation. New England Journal of Medicine. 349, 2042-2054 (2003).
- Hanahan, D., Weinberg, R. A. Hallmarks of Cancer: The Next Generation. Cell. 144 (5), 646-674 (2011).
- Howard, G., Eiges, R., Gaudet, F., Jaenisch, R., Eden, A. Activation and transposition of endogenous retroviral elements in hypomethylation induced tumors in mice. Oncogene. 27, 404-408 (2008).
- Lander, E. S., et al. Initial sequencing and analysis of the human genome. Nature. 409, 860-921 (2001).
- Rodriguez, J., et al. Chromosomal instability correlates with genome-wide DNA demethylation in human primary colorectal cancers. Cancer Research. 66, 8462(2006).
- Feinberg, A. P., Ohlsson, R., Henikoff, S. The epigenetic progenitor origin of human cancer. Nature Reviews Genetics. 7, 21-33 (2006).
- Bock, C., et al. BiQ Analyzer: visualization and quality control for DNA methylation data from bisulfite sequencing. Bioinformatics. 21 (11), 4067-4068 (2005).
- Schouten, J. P., et al. Relative quantification of 40 nucleic acid sequences by multiplex ligation-dependent probe amplification. Nucleic Acids Research. 30, 57(2013).
- Nygren, A. O. H., et al. Methylation-Specific MLPA (MS-MLPA): simultaneous detection of CpG methylation and copy number changes of up to 40 sequences. Nucleic Acids Research. 33 (14), 128(2005).
- El Andaloussi, S., Mager, I., Breakefield, X. O., Wood, M. J. Extracellular vesicles: biology and emerging therapeutic opportunities. Nature Reviews Drug Discovery. 12, 347-357 (2013).
- Vallabhaneni, K. C., et al. Extracellular vesicles from bone marrow mesenchymal stem/stromal cells transport tumor regulatory microRNA, proteins, and metabolites. Oncotarget. 6 (7), 4953-4967 (2015).
- Ratajczak, J., Wysoczynski, M., Hayek, F., Janowska-Wieczorek, A., Ratajczak, M. Z. Membrane- derived microvesicles: important and underappreciated mediators of cell-to-cell communication. Leukemia. 20, 1487-1495 (2006).
- Lee, T. H., et al. Microvesicles as mediators of intercellular communication in cancer- the emerging science of cellular "debris". Seminars in Immunopathology. 33, 455-467 (2011).
- Kawamura, Y., Calle, A. S., Yamamoto, Y., Sato, T., Ochiya, T. Extracellular vesicles mediate the horizontal transfer of an active LINE-1 retrotransposon. Journal of Extracellular Vesicles. 8, 1643214(2019).
- Mannerström, B., et al. Epigenetic alterations in mesenchymal stem cells by osteosarcoma-derived extracellular vesicles. Epigenetics. 14 (4), 352-364 (2019).
- Shelke, G. V., Lässer, C., Gho, Y. S., Lötvall, J. Importance of exosome depletion protocols to eliminate functional and RNA-containing extracellular vesicles from fetal bovine serum. Journal of Extracellular Vesicles. 3, 24783(2014).
- Wei, Z., Batagov, A. O., Carter, D. R., Krichevsky, A. M. Fetal bovine serum RNA interferes with the cell culture derived extracellular RNA. Scientific Reports. 6, 31175(2016).
- Kornilov, R., et al. Efficient ultrafiltration-based protocol to deplete extracellular vesicles from fetal bovine serum. Journal of Extracellular Vesicles. 7, 1422674(2018).
- Théry, C., Amigorena, S., Raposo, G., Clayton, A. Isolation and characterization of exosomes from cell culture supernatants and biological fluids. Current Protocols in Cell Biology. 30 (1), 1-29 (2006).
- Puhka, M., et al. Metabolomic profiling of extracellular vesicles and alternative normalization methods reveal enriched metabolites and strategies to study prostate cancer-related changes. Theranostics. 7 (16), 3824(2017).
- Peltoniemi, H. H., et al. Stem cell enrichment does not warrant a higher graft survival in lipofilling of the breast: A prospective comparative study. Journal of Plastic, Reconstructive & Aesthetic Surgery. 66 (11), 1494-1503 (2013).
- Pavicic, W., Joensuu, E. I., Nieminen, T., Peltomäki, P. LINE-1 hypomethylation in familial and sporadic cancer. Journal of Molecular Medicine. 90, 827-835 (2012).
- L1.2 sequence on GenBank (accession number: AH005269.2). , Available from: https://www.ncbi.nlm.nih.gov/nuccore/AH005269 (2000).
- Designing synthetic MLPA probes (v04). MRC-Holland. , Available from: https://support.mlpa.com/downloads/files/designing-synthetic-mlpa-probes (2018).
- Takara Bio Inc. , Available from: https://www.takarabio.com/us/products/cell_biology_and_epigenetics/epigenetics/dna_preparation/msre_overview (2018).
- Pisanic, R., et al. Long interspersed nuclear element 1 retrotransposons become deregulated during the development of ovarian cancer precursor lesions. The American Journal of Pathology. 189 (3), 513-520 (2019).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
