質量分析誘導ゲノムマイニングプロトコルが確立され、ここに記載されています。ゲノム配列情報とLC-MS/MS解析に基づき、複雑な微生物や植物抽出物からの分子の同定を容易にすることを目的としています。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
天然物で覆われた化学空間は、巨大で広く認識されていない。したがって、自然界におけるそれらの機能の幅広い評価を行う簡便な方法論や、潜在的な人的利益(例えば、創薬用途)が望まれている。このプロトコルは、ゲノムマイニング(GM)と分子ネットワーキング(MN)の組み合わせ、全ゲノムシーケンシングにおける遺伝子クラスターコードアノテーションと、粗代謝抽出物の化学構造シグネチャを一致させる2つの現代的なアプローチを記述する。これは、新しい自然エンティティの発見に向けた最初のステップです。これらの概念を一緒に適用すると、ここでは MS ガイド付きゲノムマイニングと定義されます。この方法では、主成分は以前に(MNを使用して)指定されており、構造的に関連する新しい候補は、ゲノム配列アノテーション(GMを使用)に関連付けられています。GMとMNを組み合わせることは、既に知られている化合物から類似体を同定するために、新しい分子の骨格を標的にしたり、代謝プロファイルを収穫するための有益な戦略です。
概要
二次代謝の調査は、多くの場合、特定の生物学的活性のための粗抽出物をスクリーニングし、その後、活性画分に属する成分の精製、同定、および特性化から構成される。このプロセスは、いくつかの化学実体の分離を促進し、効率的であることが証明されています。しかし、今日では、これは主に再発見率が高いため、実現不可能であると見なされています。医薬品産業は特殊代謝物の役割や機能を知らずに革命を起こしたので、その同定は、自然を正確に表さない実験室条件下で行った。今日では、自然なシグナル伝達の影響、分泌、および検出不可能な低濃度でのほとんどの標的の存在をよりよく理解しています。さらに、プロセスの規制は、学術界や製薬業界がこの知識を活用するのに役立ちます。また、サイレント生合成遺伝子クラスター(BGC)2に関連する代謝産物の直接分離を含む研究にも利益2をもたらす。
この文脈において、ゲノムシーケンシングの進歩は、微生物代謝産物のスクリーニングへの関心を再び高めている。これは、発見された生合成クラスターのゲノム情報を分析することで、実験室の条件下で観察または生産されていない新しい化合物をコードする遺伝子を明らかにすることができるからです。現在、多くの微生物全ゲノムプロジェクトまたはドラフトが利用可能であり、その数は毎年増加しており、ゲノムマイニング33、44を通じて新しい生理活性分子を発見するための大きな見通しを提供しています。
生合成遺伝子クラスターのアトラスは、共同ゲノム研究所(JGI IMG-ABC)2の統合微生物ゲノムプラットフォームの構成要素として自動的に採掘された遺伝子クラスターの現在最大のコレクションである。2最近では、生合成遺伝子クラスター(MIBiG)標準化イニシアチブの最小情報は、高度にキュレーションされた参照データセット5を提供し、Bgcsの手動リアノテーションを促進しました。今日では、遺伝データの計算マイニングと既知の二次代謝産物との接続を可能にする多くのツールが利用可能です。新しい生理活性天然産物(異種発現、標的遺伝子欠失、体外再構成、ゲノム配列、同位体誘導スクリーニング[ジェノミソトピックアプローチ]、局所および世界の規制当局の操作、抵抗標的ベースの採掘、文化独立採掘、さらに最近ではMSガイド/コードアプローチ,2、6、76,728、99、9 、MS誘導/コードアプローチ)にアクセスするためのさまざまな戦略も開発されています。10、11 、12、13、14、,15)。14
ゲノムマイニングは、単一の、または小さな分子グループにアナンスする努力を必要とします。したがって、分離と構造解明のために新しい化合物が優先されるプロセスのギャップが残っています。原則として、これらのアプローチは実験ごとに1つの生合成経路のみを対象とし、それによって発見速度が遅くなります。この意味で、GMを分子ネットワークアプローチと共に使用することは、天然物研究14,15,にとって重要な進歩を表している。
液体クロマトグラフィー質量分析(LC-MS)の汎用性、精度、高感度により、化合物同定に適した方法です。現在、いくつかのプラットフォームは、対象のないメタボロ,ミクス16、17、18、19、20,17のためのアルゴリズムとソフトウェアスイート19を20投資しています。,18これらのプログラムの中核は、サンプルのバッチ間で同一の特徴の一致を可能にし、パターンを検索する機能検出(ピークピッキング)21とピークアライメントを含む。MSパターンベースのアルゴリズム22,23は特徴的な断片化パターンを比較し、23構造特徴を共有する分子ファミリーを生成するMS2類似点と一致する。これらの特徴は、次に、同時にMS2、24、25によって複雑な生物学的抽出物から既知および未知の分子を迅速に発見2する能力を与え、強調表示25され、クラスタ化することができる。,したがって、タンデムMSは、大量のデータに含まれる複数の化学式の構造情報を同時に得る汎用性の高い方法である。
グローバル天然物社会分子ネットワーキング(GNPS)26アルゴリズムは、正規化されたフラグメントイオン強度を使用して多次元ベクトルを構築し、コサイン関数を用いて類似点を比較する。異なる親イオンの関係は図表表現にプロットされ、各フラグメント化は節点(円)として視覚化され、各節点の関連はエッジ(線)によって定義されます。単一のソースからの分子のグローバルな可視化は、分子ネットワークとして定義されます。一意に断片化する構造的に発散する分子は、独自の特定のクラスターまたは星座を形成し、関連する分子は一緒にクラスターします。化学型のクラスタリングは、類似した構造特徴を生合成起源と仮定的に結び付けることを可能にする。
化学型から遺伝子型へのアプローチと遺伝子型から化学型へのアプローチの両方を組み合わせることは、Bgcsとその小分子製品27との間のバイオインフォマティクスリンクを作成する際に強力である。したがって、MS誘導ゲノムマイニングは、迅速な方法であり、低材料消費戦略であり、多様な代謝および環境条件下で1つ以上の株のWGSによって明らかにされた親イオンおよび生合成経路を橋渡しするのに役立ちます。
このプロトコルのワークフロー ( 図1) は、WGS データを、ANTISMASH28、29,、30などの生合成遺伝子クラスタアノテーション プラットフォームに供給する方法で構成されています。これは、ゲノムによってコードされる化合物の多様性および化合物のクラスを推定するのに役立ちます。目的とする化学主体をコードする生合成遺伝子クラスターを標的とする戦略を採用する必要があり、BGCを含む野生型株および/または異種株からの培養抽出物を分析して、GNPS 26,3131を用いて類似性に26基づいてクラスターイオンを生成することができる。したがって、標的となるBGCに関連し、データベースでは使用できない新しい分子を同定することが可能です(主に未知の類似体、時には低い価数で生成される)。ユーザーがこれらのプラットフォームに貢献し、バイオインフォマティクスとMS/MSデータの可用性が急速に増加しており、複雑な抽出物と分子との効率的な接続を導くために効果的な計算ツールとアルゴリズムの絶え間ない開発とアップグレードに追い込まれていることを考慮することが重要です。
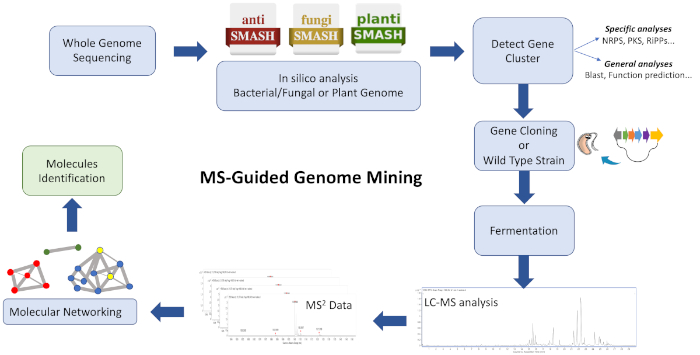
図 1: ワークフロー全体の概要図は、新しい代謝産物を同定するための、記載されたMSガイド型ゲノムマイニング手法に関与するバイオインフォマティクス、クローニング、および分子ネットワーキングのステップを示しています。この図の大きなバージョンを表示するには、ここをクリックしてください。
このプロトコルは、ゲノムマイニングと分子ネットワーキングを自然製品発見パイプラインの出発点として組み合わせるための迅速かつ効率的なワークフローを記述します。多くのアプリケーションは、1つのネットワーク内のMS検出可能な分子の組成と関連を可視化することができますが、構造的に類似したクラスター化された分子を視覚化するために、ここでいくつかが採用されています。この戦略を用いて、ストレプトマイセスsp.CBMAI 2042の代謝抽出物で観察された新規のシクロデプシペプチド産物が正常に同定される。ゲノムマイニングによって導かれ、バリノマイシンをコードする全生合成遺伝子クラスターが認識され、生産者株ストレプトマイセス・コエカラー M1146にクローン化される。最後に、MSパターンベースの分子ネットワーキングに続いて、MSによって検出された分子は、その生物発生を担うBGC32と相関している。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
生合成遺伝子クラスターのゲノムマイニング
- MS誘導ゲノムマイニングのための生合成遺伝子クラスター(BCG)を選定するための第一歩として、全ゲノムシーケンシング(WGS)を行います。目的株(細菌)の全ゲノムドラフトは、高品質のゲノムDNAを用いて以下を用いてイルミナMiSeq技術によって得ることができる:ショットガンTruSeq PCRフリーライブラリ準備およびNextera合致ペアライブラリー調製キット33。
注:シーケンス後、イルミナショットガンライブラリとイルミナメイトペアライブラリは、Newbler v3.0(ロシュ、 454) アセンブラー・プログラム (で見つかりました) および FgeneSB に基づくパイプラインを使用してコメント化 ()33微生物学リソースアナウンス(MRA)は、利用可能なリポジトリに堆積された微生物リソースの可用性を公開する記事を掲載した完全にオープンなアクセスジャーナルです(にあります)。候補タンパク質コード遺伝子はRASTサーバーアノテーション34を使用して同定され、全ゲノムショットガン(WGS)プロジェクトはDDBJ/ENA/GenBank()およびゴールド( - 完全な配列ゲノムから二次代謝遺伝子クラスターの注釈に関するシリコ情報を取得するには、シーケンスファイル(GenBank/EMBLまたはFASTA形式)をアンチSMASHプラットフォーム()に提出します。
- 最も類似した既知のクラスターに基づいて、出力データから目的の遺伝子クラスターを選択します(図 2)。
注:まず、遺伝子ごとに探索し、個々の探索(blastp)を実施して、望ましい生合成遺伝子群に関連する機能を評価することが日常的です。この手順は、たとえそれが低い割合であっても、どのBGCが所望の化合物の産生に関連している可能性があるかを判断するのにも役立つ。アンチSMASH予測は、クラスター内のすべての遺伝子を考慮してパーセンテージカバレッジを作成し、これは目指されたBGCの類似性の世界的な低い割合を表すことができます。しかし、遺伝子ごとに解析する場合、最も類似した既知のクラスターを用いてより正確な情報を得ることができる。第二に、antiSMASHには、1)検出の厳密さ:生合成遺伝子クラスターがヒットと見なされなければならない厳格さの程度という2つの選択肢があります。このオプションでは、次のパラメータを使用する必要があります: a) strict: すべての必要な領域を含む、遺伝情報に関するエラーの影響を受けにくい、排他的に明確に定義されたクラスターを検出します。b)リラックス:部分的なクラスターが1つ以上の機能領域を欠いているのを検出し、厳密な機能の検出にも使用できます。または、緩い:誤検出や不十分に定義されたBgcsの出現につながる可能性がある、一次代謝産物と一致する可能性が高い不十分なクラスターおよびクラスターを検出します。もう 1 つのオプションは、2) 追加機能です: プラットフォームが検索して出力に表示する必要がある情報の種類。一般に、これら 2 つのオプションは予測後の時間を節約できます。ただし、アンチスマッシュジョブは、より長い期間を必要とします。
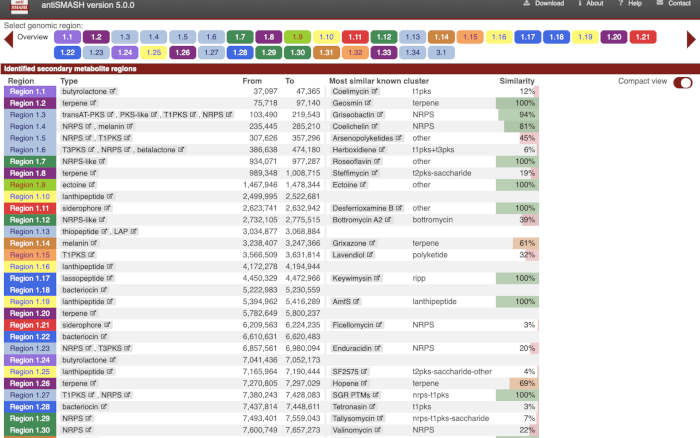
図2:アンチSMASHプラットフォームからの出力。全ゲノム配列アノテーションからのインシリコ解析における二次代謝この図の大きなバージョンを表示するには、ここをクリックしてください。
- BGCのDNA配列情報に基づいて、ESAC(大腸菌/ストレプトマイセス人工染色体)ライブラリースクリーニング用の遺伝子クラスターを横切るプライマー(20〜25nt)を設計する。
注:DNAから生合成遺伝子クラスター全体を捕捉するために、異なる方法35、36を使用することができます。35,ここで使用される方法は、代表ESACライブラリ37、38,38をストレプトマイセスsp.CBMAI 2042から構築し、平均サイズ断片を含むクローンを含有する。〜95kbの平均サイズ断片を含む。
ESACライブラリーからの生合成遺伝子クラスター全体の異種発現
- ESACベクターを大腸菌DH10Bから大腸菌ET12567に、三親結合32によって移動する。
- イノキュレート大腸菌ET12567(CamR)、TOPO10/pR9604(CarbR)、DH10B/ESAC4H(AprR)をクロラムフェニコール(25μg/mL)、カルベニシリン(100μg/mL)、および50mmmg(ムロムニシリ)のルリア・ベルタニェ(LB)培地の5mLで
- 培養物を一晩37°Cおよび250rpmで培養する。
- 抗生物質の半濃度を含むLB培地の10 mLで一晩培養の500μLを接種する。
- 0.4~0.6のA600に到達するまで、37°Cと250 rpmで培養を行います。
- 5分間2,200xgで遠心分離して細胞をg収穫する。
- 20mLのLB培地で細胞を2回洗います。
- 細胞をLB培地の500 μLで再懸濁します。
- マイクロ遠心分離チューブに各株の20 μLを混合し、抗生物質を欠いているLB培地と寒天プレートに滴下します。
- プレートを一晩37°Cでインキュベートします。
- 成長した細胞を抗生物質を含む新鮮なLB寒天プレートにストリークし、一晩で37°Cでインキュベートする。
3.ストレプトマイセス/大腸菌共役
- 組換え異種生物を得るために、ESACベクターを含む大腸菌ET12567間の結合32、ヘルパープラスミドpR9604、およびストレプトマイセスコエカラー M1146または別の選択された宿主株39を行う。
- 1日目:30°Cで250mLのエルレンマイヤーフラスコにTSBY培地25mLでS.コエリカラー M1146の単離コロニーを接種し、48時間の場合は200rpm。
- 2/3日目:イノキュレートET12567/ESAC/pR9604をクロラムフェニコール(25μg/mL)、カルベニシリン(100μg/mL)、アプラマイシン(50μg/mL)を含むLB培地5mLで、37°Cおよび250rpmで一晩で行う。
- 3/4日目:抗生物質の半働き濃度を含む200(50 mL円錐形管)の10mLで一晩培養500μLを接種する。A600 0.4~0.6に到達するまで、37°Cと250 rpmでインキュベートします。
- 遠心分離(ET12567/ESAC/pR9604およびM1146)を2200 x gで10分間用いります。
- ペレットを20mLの20 mLで20 mLで洗浄し、200μLの500 μLで再懸濁します。
- アリコート200 μLのS.コエリカラー M1146サスペンションを500 μLの2TY(懸濁液A)で希釈した。
- アリコート200μLのサスペンションAを500μLの2TY(サスペンションB)で希釈した。
- アリコート200μLのサスペンションBを、2TY(サスペンションC)の500μLで希釈した。
- ET12567/ESAC/pR9604サスペンションのアリコート200 μLと200 μLのサスペンションCと混合します。
- 抗生物質を欠いているSFM寒天プレートの結合混合物のプレート150 μL。
- 30°Cで16時間インキュベートする。
- 1 mLの抗生物質溶液をカバーする(プラスミド耐性による)。乾燥後、30°Cで4~7日間インキュベートしてください。
注:ここでは、1.0 mg/mLチオストレプトンおよび0.5mg/mLナリジク酸を含む溶液を調製した。 - チオストレプトン(50 mg/mL)およびナリジキシン酸(25mg/mL)を含むSFM寒天プレート上のストリーク推定エコンジュガント。30°Cでインキュベートする。
- ナリジク酸のみを含むSFM寒天に筋を出す。
- 分離されたコロニーを用いてPCR解析を行い、遺伝子クラスター全体がS.コエリカラー M1146宿主に転移したことを確認します。
4. ひずみ栽培
- 代謝プロファイルを得るために、適切な発酵培地および適切な培養条件下で株の前培養の1/100を接種する。
- 2200 x gで遠心分離培養を 10 分間使用します。
- 目的とする化合物40のクラスに応じて抽出を行う。
5. 質量スペクトルの取得とGNPS分析の準備
- MS/MSデータを取得するために、制御ソフトウェアを用いて適切なHPLCおよび質量分析法をプログラムします。高分解能と低解像度の両方のデータ依存質量分析(DDA)を解析できます。
注:一般的に、複雑な粗抽出サンプルの1mg/mL溶液が理想的です。希釈は、より複雑でない抽出物に必要です。MS/MSネットワークは、与えられた質量分析条件下で検出可能な分子ネットワークである点に留意すべきである。 - プロテオウィザードから MSConvert を使用して質量スペクトルを .mzXML 形式に変換します ()。変換の入力パラメータを図 3に示します。ほぼすべての企業のソフトウェアからのデータは互換性があります。
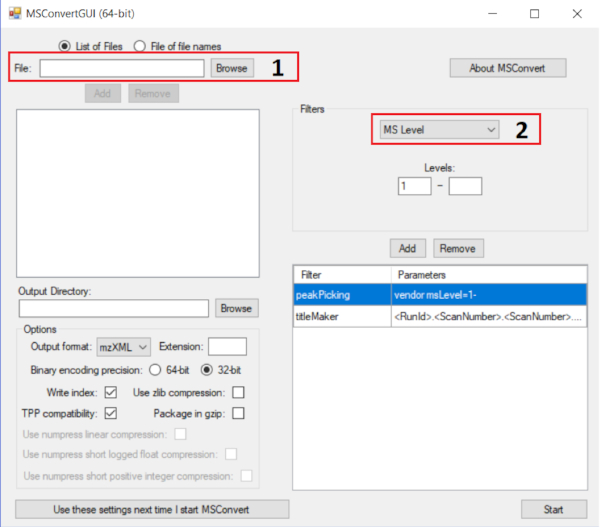
図 3: MsConvert を使用して MS ファイルを mzXML 拡張子に変換するGNPS 分析の正しいパラメータが表示されます。手順は次のとおりです: ボックス 1 にすべての MS ファイルを追加し、ボックス 2 でフィルターピークピッキングを追加します。このフィルタの場合は、アルゴリズム ベンダーを使用します。を押すと、変換のプロセスが続きます。この図の大きなバージョンを表示するには、ここをクリックしてください。
- 変換された LC-MS/MS ファイルを GNPS データベースにアップロードします。ファイル転送プロトコル (FTP) を使用するか、オンライン プラットフォームを介してブラウザで直接使用するかの 2 つのオプションがあります。
注: GNPS へのデータのインストール方法と転送方法の詳細については、をご覧ください。
6. GNPS分析
- GNPS でアカウントを作成した後 ( にあります)、作成されたアカウントにログインして [分子ネットワークの作成] を選択します。役職を追加します。
- 基本的なオプション: 分子ネットワークを実行するmzXMLファイルを選択します。最大6つのグループに編成できます。レプリケーション解除ルーチンのライブラリを選択します (図 4)。
注: これらのグループは、分子ネットワークの構築を妨げない。この情報は、グラフィカルな表現にのみ使用されます。
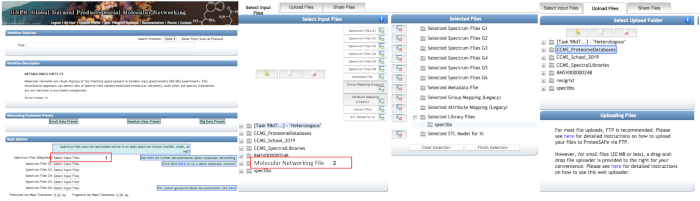
図4:オンラインGNPSプラットフォームを使用して分子ネットワーク解析を行う。mzXML ファイルの選択は、ボックス 1 をクリックして行われます。[開く] ダイアログ ボックスでは、ファイルを個人用フォルダ (ボックス 2) から選択するか、ドラッグ アンド ドロップ ファイル アップローダー (20 MB 未満) を使用して 2 番目のタブにアップロードすることができます。ファイルは最大 6 つのグループにグループ化できます。この図の大きなバージョンを表示するには、ここをクリックしてください。
- 前駆体イオン質量許容値とフラグメントイオン質量許容値をそれぞれ 0.02 Da と 0.05 Da から選択します。
注: GNPS では、1) MS/MS データの正確度と 2) 関連付けの精度に基づいて、さまざまなタイプの厳密性を使用できます。基本的なオプション: このフォルダでは、前駆体イオン質量許容値とフラグメントイオン質量許容値を設定することが可能です。これらのパラメータは、前駆体イオンとフラグメントイオンの精度を判断するためのガイドとして使用されます。選択した質量公差は、使用する質量分析計の解像度と精度によって異なります。 - ネットワークの詳細オプション:図 5に従ってパラメータを選択します。これらのパラメータは、ネットワーク クラスタのサイズと形式に直接影響します。残りのタブセクションのもう 1 つのパラメーターは上級ユーザー用です。したがって、デフォルト値のままにします。
注: 高度なパラメーターは GNPS ドキュメントで読むことができます ()。
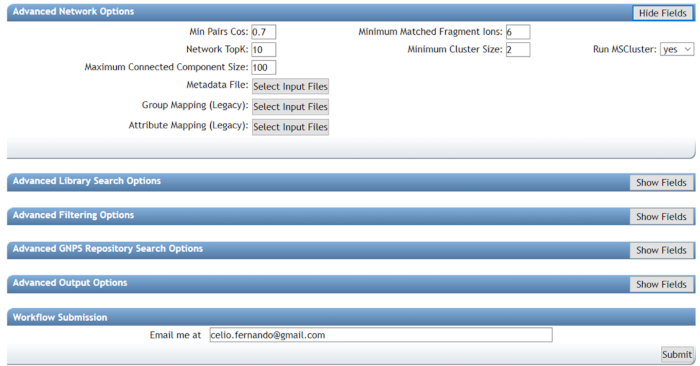
図5:GNPSを用いて分子ネットワーク解析を行う(詳細オプション)。Min Pair Cosはクラスターのサイズに直接影響を与えますが、値が高いと、遠くに関連する化合物を組み合わせる際に密接に関連する化合物と低い値を組み合わせる結果になります。値が小さすぎる場合は、使用しないでください。最小一致フラグメントイオンは、ネットワーク内でリンクされる2つの断片化スペクトル間の共有フラグメントの数を表します。両方のパラメータがネットワークフォーマットを導きます。値が小さいほど、遠くに関連する化合物がクラスター化され、その逆も同様です。適切な値を使用すると、化合物の解明に大いに役立ちます。この図の大きなバージョンを表示するには、ここをクリックしてください。
- 作業が完了したときに通知を受け取る電子メール アドレスを選択し、ジョブを送信します。
7. GNPS結果の分析
- GNPS にログインします。ジョブを開くには、[ジョブ] →[公開済みジョブ] > [完了] を選択します。図 6に示すように Web ページが開きます。分子ネットワークから得られたすべての結果が表示されます。
- すべてのネットワーク クラスタを表示するには、[スペクトル ファミリを表示(ブラウザ ネットワーク ビジュアライザー内)]を選択します(赤いボックス、図 6)。
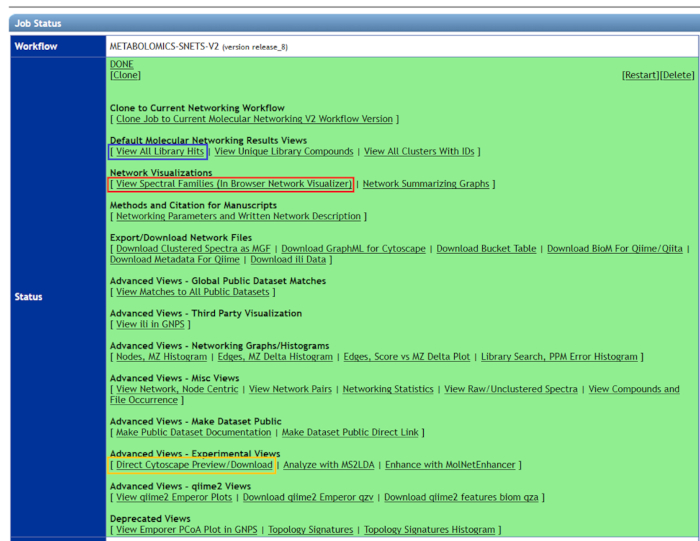
図6:GNPSを用いて分子ネットワーク結果を可視化する。すべての関連する複合クラスタは、ビュースペクトル ファミリ(赤色のボックス)で確認できます。ライブラリのヒットのみを視覚化するには、「すべてのライブラリヒットを表示」(青いボックス)を選択する必要があります。分子ネットワークの結果をよりグラフィカルに表現するには、「直接細胞景観プレビュー」(黄色のボックス)をダウンロードし、Cytoscapeの最新バージョンを使用する必要があります。この図の大きなバージョンを表示するには、ここをクリックしてください。
- 生成されたすべての分子ネットワーキングクラスタとともにリストが表示されます。発見を生成するためにライブラリ検索を選択した場合、仮の分子識別がAllIDに表示されます。[表示]を選択して、それらを視覚化します。
注:データ解析は、他の結果(ゲノムマイニング、生物学的アッセイ、ライブラリの逆複製分子など)のために駆動することができます。 - 分子ネットワーク クラスタを解析するには、[ネットワークの視覚化 ]を選択します。
注: 各クラスターは、それぞれ分子と分子の類似性を表すノード(円)とエッジで構成されています。デレプリケートされた分子は、オンライン ブラウザ ネットワーク ビジュアライザーで青いノードとして強調表示されます。 - ノード ラベル ボックスで、親の質量を選択します (赤いボックス、図 7)。
- エッジ ラベル ボックスで、[コサイン]または[DeltaMZ]を選択して、ノード間の類似性または質量差をそれぞれ確認します(黄色のボックス、図 7)。
- マルチグループ解析の場合は、ノードの色付けボックスで [円を描く] をクリックして、各ノードが各グループに表示される頻度を確認します (青いボックス、図 7)。
注: 他の選択肢もありますが、上記の選択肢は、クラスタ ノードに注釈を付けて構造を解明するのに最適です。
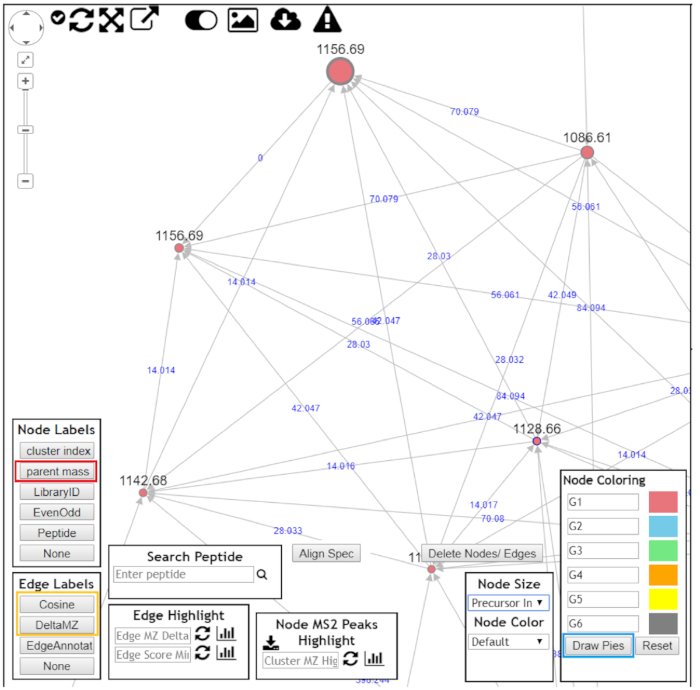
図7:GNPSを用いて分子クラスターの結果を可視化する。より良いデータの視覚化のために分子クラスターを開いた後、次の選択する必要があります: ノードラベルとして「親質量」(赤いボックス);"デルタMZ"をエッジラベル(黄色のボックス)として表示します。ノードの色付け(青いボックス)として「パイを描く」。分子クラスター内を移動し、すべてのノードにアコーズを試してみてください。この図の大きなバージョンを表示するには、ここをクリックしてください。
- すべてのライブラリ ヒットを表示するには、[すべてのライブラリ ヒットを表示する(青いボックス、図 7)]を選択します。
注: また、MNW は "直接 Cytoscape プレビュー/ダウンロード" (黄色のボックス、図 7)でダウンロードでき、ファイルを Cytoscape プラットフォーム () で開くと、グラフィカルな構造のオプションを増やすことができます。 - 逆複製化合物の手動確認と関連化合物の構造解明が必要です。GNPS プラットフォームまたはオリジナルの生ファイルで直接フラグメンテーションスペクトルを開きます。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
このプロトコルは、新しい特殊なバリノマイシン類似分子にアクセスするためのゲノムマイニング、異種発現、およびMSガイド/コードアプローチの組み合わせを使用してうまく例示されました。標的のゲノムから分子へのワークフローであるバリノマイシン(VLM)は図8に示されている。ストレプトマイセスsp. CBMAI 2042 ドラフトゲノムをインシリコで解析し、次いで VLM 遺伝子クラスターを同定し、異種宿主に移した。異種株及び野生型株を適切な発酵条件を用いて三重で栽培し、酢酸エチルで仕切り、濃縮して粗抽出物を生成した。製品から、MS/MSデータを取得し、分子ネットワーキングのためのタンデムMS代謝物プロファイルを生成しました。図9は、ストレプトマイセスsp.CBMAI 2042粗抽出物からMS/MSデータから得られたクラスター化されたイオンを表しており、その特徴断片化パターンと対応するMS類似度が、分子ファミリー共有構造特徴2の発生を示唆している...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
このプロトコルの最も強い利点は、新しい分子、特に構造類似体2の構造を解明するために、代謝プロファイルを迅速に切り下げ、ゲノム情報をMSデータとブリッジする能力である。ゲノム情報に基づいて、ポリケチド(PK)、非リボソームペプチド(NRP)、グリコシル化天然物(GNP)、および不可解なBgCsなどの異なる天然物の化学タイプを調査することができます。したがって、BGCは、既に知られているBGCに関連する新しい化合物または未知の類似体を直接産生するためにクローン化することができ、分子ネットワーキングによって発見された類似点によって促進される。したがって、この手順は、天然源によって生成される貴重な化合物を区別するのに役立ち、天然物パイプラインで一般的である将来の分離ステップのガイドとして使用することができます。
MS誘導ゲノムマイニングは、まずペプチドゲノミクス41およびグリコーゲノミクス42の分野で説明した。Dorresteinたちの研究グループ...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者らは開示するものは何もない。
謝辞
この研究のための財政支援はサンパウロ研究財団によって提供された - FAPESP (2019/10564-5, 2014/12727-5 と 2014/50249-8 から L.G.O; 2013/12598-8 および 2015/01013-4 から R.S.、2019/08853-9 から C.F.F.A.B.S.P、C.F.F.A.、L.G.O.は、国家科学技術開発評議会(205729/2018-5、162191/20191/2015-4、313492/2017-4)からフェローシップを受けました。L.G.O.はまた、科学の女性のためのプログラム(2008年、ブラジル版)によって提供される助成金のサポートに感謝しています。すべての著者は、ブラジルの卒業後のプログラムを支援するためのCAPES(高等教育人材の改善のための調整)を認めています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| アセトニトリル | Tedia | AA1120-048 | HPLCグレードの |
| 寒天 | オキソイド | LP0011 | NA |
| アプラマイシン | シグマAldrich | A2024 | NA |
| カルベニシリン | Sigma Aldrich | C9231 | NA |
| 遠心分離機 | Eppendorf | NA | 5804 |
| ラムフェニコール | シグマAldrich | C3175 | NA |
| コラム C18 | Agilent Technologies | NA | ZORBAX RRHD Extend-C18, 80Å, 2.1 x 50 mm, 1.8 & micro;メートル、1200バール圧力制限P / N 757700-902 |
| カナマイシン | シグマアルドリッチ | K1377 | NA |
| マニトールP.A.- A.C.S. | Synth | NA | NA |
| 微量遠心分離機 | Eppendorf | NA | 5418 |
| Nalidixic acid | Sigma Aldrich | N4382 | NA |
| Phusion Flash High-Fidelity PCR Master Mix | ThermoFisher Scientific | F548S | NA |
| Q-TOF 質量分析計 | Agilent technologies | NA | 6550 iFunnel Q-TOF LC/MS |
| Sacarose P.A.- A.C.S. | Synth | NA | NA |
| シェーカー/インキュベーター | Marconi | MA420 | NA |
| 塩化ナトリウム | Synth | NA | P. A. - |
| ACS 大豆抽出 | 物 NA | NA | |
| ショ糖 | Synth | NA | P. A. - ACS |
| Thermal Cycles | Eppendorf | NA | Mastercycler Nexus Gradient |
| Thiostrepton | SigmaAldrich | T8902 | NA |
| トリプトン | オキソイド | LP0042 | NA |
| トリプトン ソイ ブロス | オキソイド | CM0129 | NA |
| UPLC | Agilent Technologies | NA | 1290 インフィニティ LC システム |
| 酵母抽出 | 物 オキソイド | LP0021 | NA |
参考文献
- Davies, J. Specialized microbial metabolites: functions and origins. The Journal of Antibiotics. 66 (7), Tokyo. 361-364 (2013).
- Ziemert, N., Alanjary, M., Weber, T. The evolution of genome mining in microbes - a review. Natural Product Reports. 33 (8), 988-1005 (2016).
- Zerikly, M., Challis, G. L. Strategies for the Discovery of New Natural Products by Genome Mining. ChemBioChem. 10 (4), 625-633 (2009).
- Gomez-Escribano, J. P., Bibb, M. J. Heterologous expression of natural product biosynthetic gene clusters in Streptomyces coelicolor: from genome mining to manipulation of biosynthetic pathways. Journal of Industrial Microbiology & Biotechnology. 41 (2), 425-431 (2014).
- Medema, M. H., et al. Minimum Information about a Biosynthetic Gene cluster. Nature Chemical Biology. 11 (9), 625-631 (2015).
- Lautru, S., Deeth, R. J., Bailey, L. M., Challis, G. L. Discovery of a new peptide natural product by Streptomyces coelicolor genome mining. Nature Chemical Biology. 1 (5), 265-269 (2005).
- Chiang, Y. -M., et al. Molecular Genetic Mining of the Aspergillus Secondary Metabolome: Discovery of the Emericellamide Biosynthetic Pathway. Chemistry & Biology. 15 (6), 527-532 (2008).
- Huang, T., et al. Identification and Characterization of the Pyridomycin Biosynthetic Gene Cluster of Streptomyces pyridomyceticus NRRL B-2517. Journal of Biological Chemistry. 286 (23), 20648-20657 (2011).
- Udwary, D. W., et al. Genome sequencing reveals complex secondary metabolome in the marine actinomycete Salinispora tropica. Proceedings of the National Academy of Sciences. 104 (25), 10376-10381 (2007).
- Gross, H., et al. The Genomisotopic Approach: A Systematic Method to Isolate Products of Orphan Biosynthetic Gene Clusters. Chemistry & Biology. 14 (1), 53-63 (2007).
- Spohn, M., Wohlleben, W., Stegmann, E. Elucidation of the zinc-dependent regulation in Amycolatopsis japonicum enabled the identification of the ethylenediamine-disuccinate ([S,S ]-EDDS) genes. Environmental Microbiology. 18 (4), 1249-1263 (2016).
- Thaker, M. N., Waglechner, N., Wright, G. D. Antibiotic resistance-mediated isolation of scaffold-specific natural product producers. Nature Protocols. 9 (6), 1469-1479 (2014).
- Katz, M., Hover, B. M., Brady, S. F. Culture-independent discovery of natural products from soil metagenomes. Journal of Industrial Microbiology & Biotechnology. 43, 129-141 (2016).
- Quinn, R. A., et al. Molecular Networking as a Drug Discovery, Drug Metabolism, and Precision Medicine Strategy. Trends in Pharmacological Sciences. 38 (2), 143-154 (2017).
- Yang, J. Y., et al. Molecular Networking as a Dereplication Strategy. Journal of Natural Products. 76 (9), 1686-1699 (2013).
- Lommen, A. MetAlign: Interface-Driven, Versatile Metabolomics Tool for Hyphenated Full-Scan Mass Spectrometry Data Preprocessing. Analytical Chemistry. 81 (8), 3079-3086 (2009).
- Katajamaa, M., Miettinen, J., Oresic, M. MZmine: toolbox for processing and visualization of mass spectrometry based molecular profile data. Bioinformatics. 22 (5), 634-636 (2006).
- Pluskal, T., Castillo, S., Villar-Briones, A., Orešič, M. MZmine 2: Modular framework for processing, visualizing, and analyzing mass spectrometry-based molecular profile data. BMC Bioinformatics. 11 (1), 395(2010).
- Tautenhahn, R., Patti, G. J., Rinehart, D., Siuzdak, G. XCMS Online: A Web-Based Platform to Process Untargeted Metabolomic Data. Analytical Chemistry. 84 (11), 5035-5039 (2012).
- Kuhl, C., Tautenhahn, R., Böttcher, C., Larson, T. R., Neumann, S. CAMERA: An Integrated Strategy for Compound Spectra Extraction and Annotation of Liquid Chromatography/Mass Spectrometry Data Sets. Analytical Chemistry. 84 (1), 283-289 (2012).
- Katajamaa, M., Orešič, M. Data processing for mass spectrometry-based metabolomics. Journal of Chromatography A. 1158, 318-328 (2007).
- Liu, W. -T., et al. Interpretation of Tandem Mass Spectra Obtained from Cyclic Nonribosomal Peptides. Analytical Chemistry. 81 (11), 4200-4209 (2009).
- Ng, J., et al. Dereplication and de novo sequencing of nonribosomal peptides. Nature Methods. 6 (8), 596-599 (2009).
- Liaw, C., et al. Vitroprocines, new antibiotics against Acinetobacter baumannii, discovered from marine Vibrio sp. QWI-06 using mass-spectrometry-based metabolomics approach. Scientific Reports. 5 (1), 1-11 (2015).
- Kang, K. B., et al. Targeted Isolation of Neuroprotective Dicoumaroyl Neolignans and Lignans from Sageretia theezans Using in Silico Molecular Network Annotation Propagation-Based Dereplication. Journal of Natural Products. 81 (8), 1819-1828 (2018).
- Wang, M., et al. Sharing and community curation of mass spectrometry data with Global Natural Products Social Molecular Networking. Nature Biotechnology. 34 (8), 828-837 (2016).
- Doroghazi, J. R., et al. A roadmap for natural product discovery based on large-scale genomics and metabolomics. Nature Chemical Biology. 10 (11), 963-968 (2014).
- Medema, M. H., et al. antiSMASH: rapid identification, annotation and analysis of secondary metabolite biosynthesis gene clusters in bacterial and fungal genome sequences. Nucleic Acids Research. 39, 339-346 (2011).
- Weber, T., et al. antiSMASH 3.0-a comprehensive resource for the genome mining of biosynthetic gene clusters. Nucleic Acids Research. 43, 237-243 (2015).
- Blin, K., et al. antiSMASH 5.0: updates to the secondary metabolite genome mining pipeline. Nucleic Acids Research. 47, 81-87 (2019).
- Watrous, J., et al. Mass spectral molecular networking of living microbial colonies. Proceedings of the National Academy of Sciences. 109 (26), 1743-1752 (2012).
- Paulo, B. S., Sigrist, R., Angolini, C. F. F., De Oliveira, L. G. New Cyclodepsipeptide Derivatives Revealed by Genome Mining and Molecular Networking. ChemistrySelect. 4 (27), 7785-7790 (2019).
- Gonzaga de Oliveira, L., Sigrist, R., Sachetto Paulo, B., Samborskyy, M. Whole-Genome Sequence of the Endophytic Streptomyces sp. Strain CBMAI 2042, Isolated from Citrus sinensis. Microbiology Resource Announcements. 8 (2), 1-2 (2019).
- Aziz, R. K., et al. The RAST Server: Rapid Annotations using Subsystems Technology. BMC Genomics. 9 (1), 75(2008).
- Nah, H. -J., Pyeon, H. -R., Kang, S. -H., Choi, S. -S., Kim, E. -S. Cloning and Heterologous Expression of a Large-sized Natural Product Biosynthetic Gene Cluster in Streptomyces Species. Frontiers in Microbiology. 8, 1-10 (2017).
- Zhang, J. J., Tang, X., Moore, B. S. Genetic platforms for heterologous expression of microbial natural products. Natural Product Reports. 36 (9), 1313-1332 (2019).
- Alduina, R., et al. Artificial chromosome libraries of Streptomyces coelicolor A3(2) and Planobispora rosea. FEMS Microbiology Letters. 218 (1), 181-186 (2003).
- Jones, A. C., et al. Phage P1-Derived Artificial Chromosomes Facilitate Heterologous Expression of the FK506 Gene Cluster. PLoS One. 8 (7), 69319(2013).
- Gomez-Escribano, J. P., Bibb, M. J. Engineering Streptomyces coelicolor for heterologous expression of secondary metabolite gene clusters. Microbial Biotechnology. 4 (2), 207-215 (2011).
- Cannell, R. J. P. Natural Products Isolation. , Humana Press. Totowa, NJ. (1998).
- Kersten, R. D., et al. A mass spectrometry-guided genome mining approach for natural product peptidogenomics. Nature Chemical Biology. 7 (11), 794-802 (2011).
- Kersten, R. D., et al. Glycogenomics as a mass spectrometry-guided genome-mining method for microbial glycosylated molecules. Proceedings of the National Academy of Sciences. 110 (47), 4407-4416 (2013).
- Liu, W., et al. MS/MS-based networking and peptidogenomics guided genome mining revealed the stenothricin gene cluster in Streptomyces roseosporus. The Journal of Antibiotics. 67 (1), Tokyo. 99-104 (2014).
- Duncan, K. R., et al. Molecular Networking and Pattern-Based Genome Mining Improves Discovery of Biosynthetic Gene Clusters and their Products from Salinispora Species. Chemistry & Biology. 22 (4), 460-471 (2015).
- Cao, L., et al. MetaMiner: A Scalable Peptidogenomics Approach for Discovery of Ribosomal Peptide Natural Products with Blind Modifications from Microbial Communities. Cell Systems. , (2019).
- Chen, L. -Y., Cui, H. -T., Su, C., Bai, F. -W., Zhao, X. -Q. Analysis of the complete genome sequence of a marine-derived strain Streptomyces sp. S063 CGMCC 14582 reveals its biosynthetic potential to produce novel anti-complement agents and peptides. PeerJ. 7 (1), 6122(2019).
- Kim Tiam, S., et al. Insights into the Diversity of Secondary Metabolites of Planktothrix Using a Biphasic Approach Combining Global Genomics and Metabolomics. Toxins. 11 (9), 498(2019).
- Özakin, S., Ince, E. Genome and metabolome mining of marine obligate Salinispora strains to discover new natural products. Turkish Journal of Biology. 43 (1), 28-36 (2019).
- Trivella, D. B. B., de Felicio, R. The Tripod for Bacterial Natural Product Discovery: Genome Mining, Silent Pathway Induction, and Mass Spectrometry-Based Molecular Networking. mSystems. 3 (2), 00160(2018).
- Maansson, M., et al. An Integrated Metabolomic and Genomic Mining Workflow To Uncover the Biosynthetic Potential of Bacteria. mSystems. 1 (3), 1-14 (2016).
- Blin, K., Kim, H. U., Medema, M. H., Weber, T. Recent development of antiSMASH and other computational approaches to mine secondary metabolite biosynthetic gene clusters. Briefings in Bioinformatics. 20 (4), 1103-1113 (2019).
- Fisch, K. M. Biosynthesis of natural products by microbial iterative hybrid PKS-NRPS. RSC Advances. 3 (40), 18228-18247 (2013).
- Tatsuno, S., Arakawa, K., Kinashi, H. Analysis of Modular-iterative Mixed Biosynthesis of Lankacidin by Heterologous Expression and Gene Fusion. The Journal of Antibiotics. 60 (11), Tokyo. 700-708 (2007).
- Helfrich, E. J. N., Piel, J. Biosynthesis of polyketides by trans-AT polyketide synthases. Natural Product Reports. 33 (2), 231-316 (2016).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
