ヒトナチュラルキラー細胞における治療抗体によるFcγRIIIA駆動事象を研究するためのプロトコルをここに説明する。この人工刺激プラットフォームは、脱顆粒、ケモカイン/サイトカイン産生、および結合に関与する抗体のFcγRIIIaおよびFc部分によって媒介されるシグナル伝達経路などの下流エフェクター機能の尋問を可能にする。
この記事について
サマリー
要約
治療用抗体による臨床効果の一つのメカニズムは、ナチュラルキラー(NK)細胞に発現したFcγRIIIa(CD16)によって駆動されるサイトカイン分泌や細胞傷害性などの免疫関連機能の促進である。これらの観察は、抗体のFc部分に見られるフコース部分の除去を含むFc受容体媒介事象を増加させる方法に焦点を当てた研究につながっている。さらに研究は、アフューコスシル化抗体を用いてADCC活性を増加させるシグナル伝達、細胞プロセス、および細胞傷害性特性の機械学的変化を解明した。さらに、他の研究は、低分子阻害剤と組み合わせてこれらの抗体の潜在的な利点を示している。これらの実験は、組み合わせの設定でアフコシル化抗体を使用することの利点の基礎となる分子および細胞メカニズムを実証した。これらの観察の多くは、ヒトNK細胞上のFcγRIIIaが治療抗体によって活性化された人工的なインビトロ活性化アッセイに基づいていた。このアッセイは、サイトカイン産生および脱顆粒化などの下流エフェクターNK細胞機能を研究する柔軟性を提供した。さらに、このアッセイは、シグナル伝達経路を問い合わせて、変調またはバイオマーカーとして使用できる分子を同定するために使用されています。最後に、他の治療分子(すなわち、小分子阻害剤)が、これらの治療と治療抗体の組み合わせに関する洞察を提供するために、現在の臨床空間に不可欠である。本稿は、この人工ヒトNK細胞活性化アッセイを行うための技術基盤を提供することを目的としている。このプロトコルは、セルの活性化に関する重要なステップと、機能的読み出しからより機械的な観測に至る潜在的なダウンストリームアプリケーションを示しています。
概要
ここ数十年、抗体を用いた標的がん治療の開発に大きな焦点が当ててきました。トラスツズマブやリツキシマブなどの治療用抗体は、シグナル伝達分子の二量体化の防止および免疫系1,2の動員を含む複数のメカニズムを介して作用する。後者は、抗体依存性細胞傷害性(ADCC)を介して達成され、その中で、ナチュラルキラー(NK)細胞と呼ばれるリンパ球が抗体1、2によって標的細胞に持ち込まれる。細胞を互いに近接させることにより、NK細胞が活性化され、エフェクター分子3の分泌を通して腫瘍/標的細胞をライセ化することができる。
分子レベルでは、抗体のFab部分は腫瘍細胞上に発現するその同結合抗原に結合し、そのFc部分はNK細胞上で発現したFcγRIIIaに係合して2つの細胞を1,2に結合する。FcγRIIIaの関与後、シグナル伝達経路(すなわち、MAPKおよびPI3K経路)は、細胞骨格再配列、サイトカイン産生、および細胞傷害性4、5、6、7、8、9を駆動する。従って、ADCCはNK細胞および抗体によって媒介されるFcγRiIIa駆動イベントである。
ADCCはこれらの治療抗体の作用機序であると考えられていたため、研究者は抗体を改変してADCCを増加させる方法を探った。一つの改変は、アスパラギン297に付着したオリゴ糖鎖上のフコースの除去であり、これはFcγRIIIa10、11、12に対する抗体のFc部分の結合親和性を増大させる。動物実験では、アフコシル化抗体を受け取ったマウスは、そのフコシル化された対応するマウス13で処置されたマウスと比較して腫瘍増殖が遅かった。さらに重要なことは、オジヌツズマブ(例えば、Gazyva、承認されたアフコスチル化抗体)は、慢性リンパ性白血病または濾胞性リンパ腫14と診断された患者においてリツキシマブ(例えば、リツキサン、そのフコシル化された相手)に対してより良い有効性を示した。
最近まで、アフコシル化抗体を介してADCCの増加の根底にあるメカニズムは不明であった。FcγRIIIa駆動型の抗体を開発する研究プログラムが数多く存在し、がん細胞を標的とする抗体を標的とし、これらの抗体が推進する分子および細胞の側面を調べるインビトロアッセイの開発が不可欠です。これは、バイオマーカーを発見する可能性だけでなく、作用機序の基本的な理解を提供します。このように、抗体依存性FcγRIIIA媒介機能を研究し、シグナル伝達および細胞特性8に加えて人工的な活性化アッセイを開発した。これらの研究を通じて、アフコシル化抗体の効力の増大の根底にあるメカニズムは、細胞特性および細胞傷害特性を促進するためにシグナル伝達を増強する結合性の高まりを解明した8。
臨床試験における現在の傾向は、治療分子16の組み合わせの使用である。最も一般的に変異した経路の1つはPI3K経路であり、この経路の成分を標的とする低分子阻害剤の開発に多大な努力を促している17、18、19、20である。しかし、これらの分子が治療抗体と組み合わせてどのように作用するかを、特に阻害剤が治療抗体によって駆動されるものなど、機能するためにPI3K経路を必要とする分子に影響を与える可能性のある組み合わせにおいて、比較的未知である。
この目的のために、このアフコシル化抗体研究のために用いられるインビトロアッセイは、PI3K阻害剤と治療抗体の組み合わせの研究にも用いられている。これらの研究は、PI3K抗体の治療上の阻害の分子特性をPI3K駆動事象と定義し、アフコシル化抗体がシグナル9のこの損失を相殺する方法を説明した。これらの知見は、臨床試験を設計するための潜在的なガイダンスを貸すため、関連しています。さらに、この一連の実験はまた、潜在的なバイオマーカーとして役立つ可能性のあるケモカイン/サイトカイン転写および産生を調節するPI3Kシグナル伝達経路の運動調節に関する最初の説明された観察に至った。
上記のシグナル伝達および細胞特性を定義するために用いられる人工的なin vitro活性化アッセイは、標的細胞の不在時に抗体によって媒介されるNK細胞におけるFcγRIIIa駆動事象を研究するように設計されている。システム内に標的細胞がなければ、観察されたすべてのシグナルイベントと機能は、NK細胞に直接起因する可能性があります。提示アッセイでは、抗体が精製されたNK細胞に添加され、その時点でFc部分がFcγRIIIaに結合する。これに続いて、抗ヒトκ軽鎖抗体を用いた抗体の架橋が、細胞を人工的に刺激する。抗体の架橋は、標的抗原の結合を模倣し、下流の事象を引き起こすシグナル伝達プラットフォームを生成する。刺激の長さに応じて、研究者はシグナル伝達、細胞プロセス、細胞毒性特性、およびエフェクター機能8,9を評価することができる。同様に、このアッセイは、抗体が他の分子9と結合されたときにこれらの事象を研究する際の柔軟性を提供する。
これは、作用機序の一部としてFcγRIIIaを介してNK細胞応答を引き出す治療抗体を研究するための理想的なインビトロアッセイです。このプロトコルは、このインビトロ活性化アッセイの性能を記述し、実行できるさまざまな読み出しに関する洞察を提供します。
プロトコル
以下の議定書は、iQバイオサイエンスの人間研究倫理委員会のガイドラインに従っています。
1. PBMCsの分離とNK細胞の濃縮/精製
注:末梢血単核細胞(PBMC)の単離や濃縮/精製のための他の方法も実行できます。
- ヘパリンを含むチューブに規制条件下で血液の200 mLを引きます.
- 密度勾配媒体の15 mLを、多孔質バリアを取り付けて50 mLチューブに加えます。30 sの1000 x g でチューブを回転させます。
- 12.5 mLの血液をチューブに加え、さらに12.5mLのPBSを加え、3倍をそっと反転させます。800 x g で、室温 (RT) で 15 分間、破断なしでチューブを回転させます。
- 細胞が回転している間に多孔質の障壁がある各管のためのPBSの40 mLの50 mLの円錐管を準備する。
- 慎重にチューブを取り外し、遠心分離後に検査します。50 mLチューブ上の20 mLと25 mLの境界の間に、多孔質バリアの上にPBMCの薄く、目に見えて白い層がないか確認します。
- 薄い白色PBMC層を邪魔することなく、ピペットを使用して上からできるだけ多くの液体を慎重に取り除きます。
- きれいな10 mL血清学的ピペットで、透明で黄色い液体層に加えて、PBMC層をチューブのフィルターまで静かに取り除きます。
- ステップ1.4で調製したPBSを含む50 mL円錐にPBMCsと液体を排出する。RTでスピンチューブ、5分間300 x g。
- PBSを吸引し、さらに40mLのPBSを加えます。RTでスピンチューブ、5分間300 x g。
- 洗浄後、細胞を数え、1 x 10⁷ 細胞あたり2%BSA/PBSの40μLで再懸濁します。
- 選択した方法を用いてNK細胞の単離に進みます。選択は、マニュアルまたは自動磁気ビードベースのソート9、21を含みます。蛍光活性化細胞分類も22.
- 細胞の小さなアリコートを取り除き、細胞のフローサイトメトリーによりNK細胞の純度を決定する。ゲーティング戦略には、前方対側散乱プロファイルに基づく生細胞上のゲート、特定の生きている集団におけるNKマーカー(例えば、CD3、CD56)に基づいて純度を評価する。典型的な純度は>95%である。
- 分離が完了した後、RTで細胞を回転させ、300 x g でペレットおよび吸引に5分間回転させる。
- 細胞ペレットを、栄養素を含むRPMI 1640、10%の熱不活性化FBS、1 mMナトリウムピルビン酸、55 mM 2-ME、および10 mM HEPES(pH = 7.2)で1 x 10⁷ 細胞/mLに再懸濁します。
2. 抗体媒介性NK細胞の活性化
- 冷蔵マイクロ遠心分離機を4°Cに設定します。
- 1 x 10 6(100 μL)の中に再懸濁したNK細胞を1.5mLチューブに分配し、氷の上に置きます。
注:多数のサンプルがある場合、セルは96ウェルU-底板に分配することができます。 - 1サンプルあたり100μg/mLリツキシマブ(または対象の抗体)の1 μLを調製し、1 μLを細胞に加えて1μg/mL抗体の最終濃度を得ます。
注: 他の分子は、この時点またはそれ以前のバージョンで、組み合わせ効果の評価のために細胞に追加することができます。ここで、リチクスマブを刺激に用いた。以前の研究では、低分子阻害剤が刺激9に添加されている。 - 氷上でサンプルを30分間インキュベートします。インキュベーション時に、培地中のサンプルあたり50μg/mL抗ヒトκ軽鎖抗体を50μL調製し、ヒートブロックまたはウォーターバスで37°Cに温めます。
- 氷上の細胞をインキュベーションした後、氷冷培地を1mL加え、4°Cで5分間135 x g でスピンします。 氷冷培地の1 mLで再び洗います。
- 最後の洗浄後に上清を吸引し、ステップ2.5で調製した抗ヒトκ軽鎖混合物の50μLを加える。
- エンドユーザーが決定したタイムポイントをヒートブロックまたは水浴で37 °Cですぐにインキュベートします。
- 1 mLの氷冷培地を加えて刺激を止め、5分間135 x g の冷蔵遠心分離機ですぐにサンプルを回転させます。1 mLの氷冷培地でもう一度洗います。
3. ダウンストリームアプリケーションと読み出し
- ウェスタンブロット解析によるFcγRiIIa刺激NK細胞におけるシグナル伝達分子の調査
注:異なるタンパク質分離および膜移動装置が使用されてもよい。- 最後に氷冷培地で洗浄した後(ステップ2.8)、ホスファターゼとプロテアーゼ阻害剤を含むRIPA緩衝液20μLの細胞を氷上で30分間混合する。
- スピンチューブは2100 x g で4°Cで15分間回転します。 ライセートを清潔な1.5 mLチューブに移し、タンパク質分離に必要な試薬を加えます。
- SDS-PAGEゲル上のタンパク質を分離し、標準的なプロトコルに従ってニトロセルロースまたはPVDF膜に移します。
- 一次検出抗体の製造業者のデータシートに従って膜をブロックおよびプローブする(ここでは、pAKT、pPRAS 40、およびpERK1/2を使用した)。
- PVDF膜に関するメーカーの推奨に従ってHRP共役二次抗体および化学発光試薬を加えます。X線フィルムまたは検出機器を使用して視覚化します(ここでは、pAKTは60 kDa、pPRAS40は40 kDa、pERK1/2は42kDaおよび44 kDaで検出されました)。
- fcγRIIIA刺激NK細胞のmRNAの単離と遺伝子発現解析のための準備(材料表)
- 刺激のタイムポイントに達した後(ステップ2.7)、チューブを氷の上に置き、5分間135 x g で冷蔵遠心分離機ですぐに回転します(ステップ2.8と同様)。
- 上清を取り除き、1 mLの氷冷PBSで2倍洗います。
- グアニジウムイソチオシアネートRNA抽出を用いたライゼ細胞(材料表)mRNAの1 μgを使用して、商用キットを用いたランダムな六方体を用いて逆転写を行う(材料表)。
注: RNA 抽出または cDNA 合成の任意の方法は、9、23、24を使用できます。 - 遺伝子発現解析まで-20°CでcDNAを凍結します。
- FcγRIIIA刺激NK細胞における細胞骨格再配列アセスメント
- 最後に氷冷培地で洗浄した後(ステップ2.8)、細胞ペレットを3.7%パラホルムアルデヒドの50 μLでRTで10分間再懸濁します。
- PBSを1mL加え、RTで5分間135 x g でスピンします。
- 0.1%トリトンX-100/PBSの100 μLを5分間加えて細胞を透過させ、135 x g で細胞を5分間回転させてペレットにします。
- 1%BSA/PBSで希釈した5単位/mL AF488標識ファロイジンの100 μLを加え、RTで20分間インキュベートします。
- PBSを1mL加え、135 x g で135 x gで回転し、RTで5分間回転して洗浄します。フローサイトメトリクス解析のために、目的のボリュームのセルペレットを再懸濁します。
- CD107a表面染色を用いたFcγRIIIA刺激NK細胞の脱顆粒の評価
- ステップ2.1~2.4に記載されているように、氷上の目的の抗体を使用して細胞をインキュベートします。インキュベーション中に、サンプルごとに50 μLの抗体混合物を調製します。50 μg/mL 抗ヒト κ軽鎖抗体と1 μg/mLフルオロクロム標識CD107aの最終濃度で、細胞培地中の混合物を調製します。
- 氷上の細胞をインキュベーションした後、1 mLの氷冷培地を加えます。4°Cで5分間135 x g で回転し、1mLの氷冷媒で再び洗います。
- 最後の洗浄後に上清を吸引し、抗ヒトκ軽鎖混合物の50μLを加え、所望のタイムポイントを37°Cでインキュベートする。
- 必要なタイムポイントで、PBSの1mLを加え、RT.吸引上清で5分間135 x g で回転し、4%パラホルムアルデヒドの100 μLを加えます。RTで10分間インキュベートします。
- PBSを1mL加え、135 x g で135 x gで回転し、RTで5分間回転して洗浄します。フローサイトメトリクス解析のために、目的のボリュームのセルペレットを再懸濁します。
- FcγRIIIA刺激NK細胞からのケモカイン/サイトカイン産生の評価
注:ケモカインおよびサイトカインの生産の評価には、さまざまな方法および/またはキットを使用することができます。- 刺激のタイムポイントに達した後(ステップ2.7)、すぐにチューブを氷の上に置き、4°Cで5分間冷蔵遠心分離機で135 x gで回転します。
- 清浄な容器に上清を移す。目的のアッセイを用いてケモカインまたはサイトカイン評価まで上清を凍結する。
注:細胞ペレットは、氷冷PBSで洗浄し、シグナル伝達、遺伝子発現、および細胞骨格の再配置研究のために処理することができます。
結果
抗体のFc部分は、単球などの他の細胞タイプに発現するFcγRIIIaに結合することができるので、NK細胞の純度が高いことが不可欠です。高純度では、NK細胞のFcγRIIIa駆動イベントに直接起因する観測が可能です。ここで、NK細胞はCD56およびCD3染色に基づいて90%以上の純度を持っていた(図1)。また、生存率は95%>であった。低い実行可能性を持つ分離を使用する場合は、注意が必要です。イベントがFcγRIIIa、ホスホAKT(pAKT)、ホスホ-PRAS40(pPRAS40)、ホスホ-ERK1/2(pERK1/2)のウェスタンブロットによって駆動されたことを確認するために、NK細胞が1〜5分間活性化された。図示されるように、これらの分子の蓄積が観察された(図2)。同様に、活性化されたNK細胞は、MIP-1α、MIP-1β、IFN-γ、およびTNF-αを発現し、遺伝子発現解析で示されるように(図3)。
また、細胞骨格の再配列は活性化細胞で観察された(図4)。4時間刺激したNK細胞の割合は、細胞表面上にCD107aを発現した(図5)。また、3時間の刺激後に、IFN-γ、TNF-α、MIP-1α、MIP-1β、およびRANTESが3時間刺激後に上清で検出された(図6)。これらの読み出しは、活性化されたNK細胞がこれらのリン酸化タンパク質を有し、ならびに記載されたケモカインおよびサイトカイン8、9の遺伝子発現および産生を有することになるとして公表された研究に基づいて期待される。すべての実験において、刺激条件は抗ヒトκ軽鎖のみ対照及び抗ヒトκ光架橋制御を伴わない抗体を含むべきである。これらのNK細胞は、いかなるリンホシグナリング、脱顆粒、ケモカイン/サイトカイン産生、またはケモカイン/サイトカイン遺伝子発現を示すべきではない。
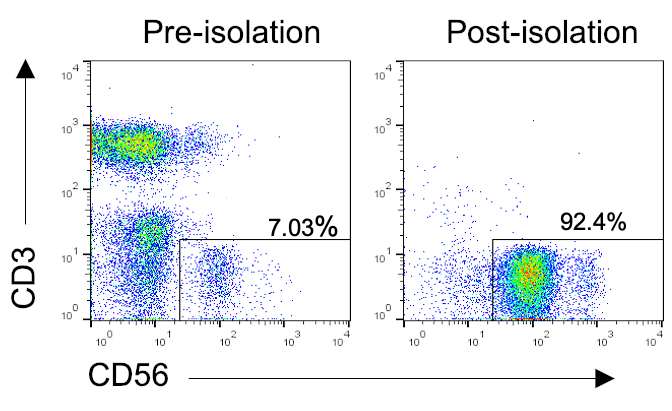
図1:PBMCからの分離後のNK細胞純度の代表的な流れプロファイル。PBCSは、健康なドナーの血液から単離され、続いてヒトNK細胞単離のための陰性選択法を用いてNK細胞の濃縮を行った(材料表)。細胞を濃縮前後にCD56およびCD3で染色し、純度を決定した。分離前後の CD56 と CD3 の代表的なドット プロット。 この図の大きなバージョンを表示するには、ここをクリックしてください。
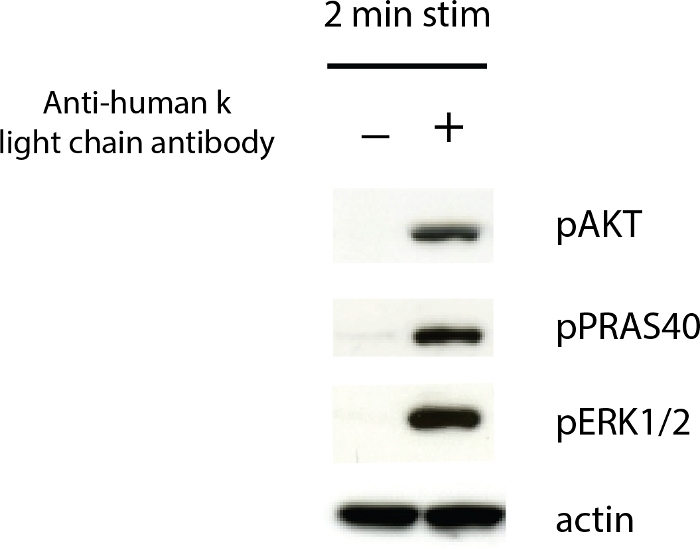
図2:FcγRIIIA活性化NK細胞はリン酸化シグナル伝達分子を示す。細胞をリツキシマブで2分間刺激し、細胞ライセートをプロトコルに従って作った。ライセートは4%~12%のゲルで分離し、続いてPVDF膜に移管した。膜をpAKT、pPRAS40、pERK1/2、およびアクチンに対する抗体でプローブした。 この図の大きなバージョンを表示するには、ここをクリックしてください。
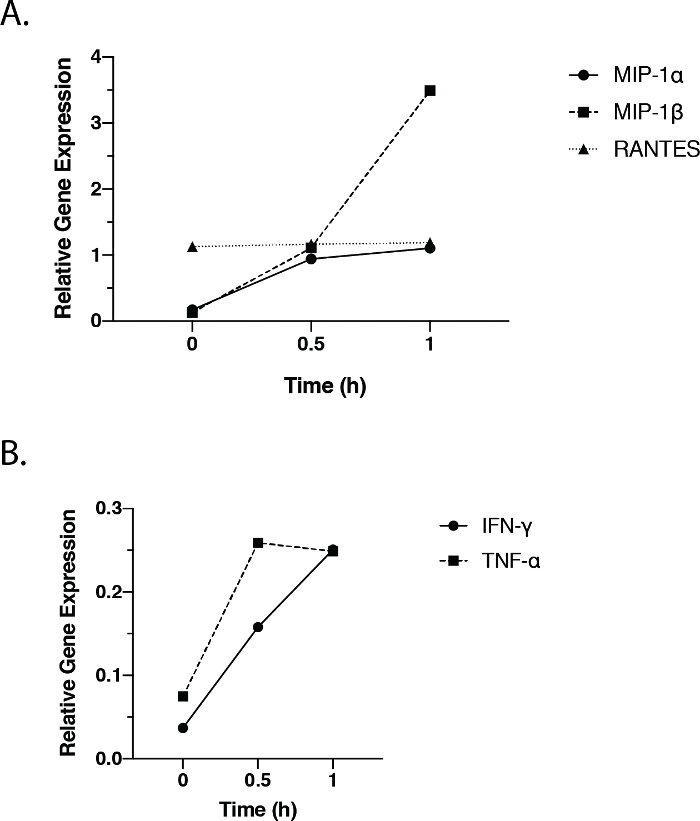
図3:FcγRIIIA活性化NK細胞はケモカインおよびサイトカイン遺伝子を発現する。NK細胞を0時間、0.5h、および1時間mRNAで刺激し、回収し、逆転写し、およびMIP-1α、MIP-1β、RANTES、IFN-γ、およびTNF-α(材料表)に対してqPCR分析を行った。(A)各時点におけるMIP-1α、MIP-1β、およびRANTESの相対式。(B) 各時点における IFN-γ と TNF-αの相対式。値はアクチン遺伝子に正規化した。 この図の大きなバージョンを表示するには、ここをクリックしてください。
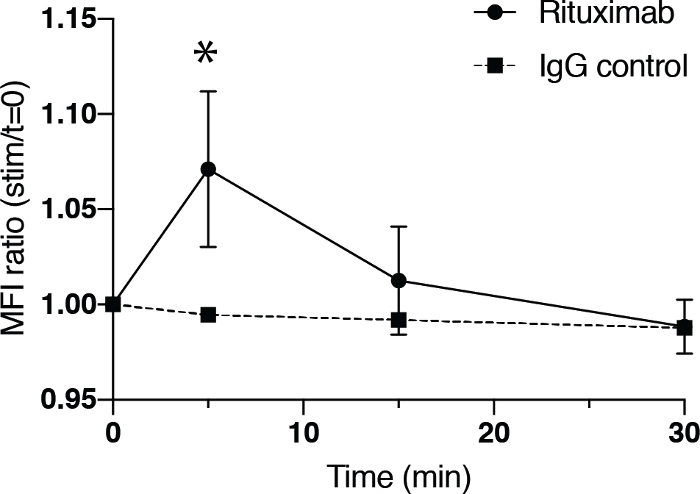
図4:FcγRIIIa活性化NK細胞は細胞骨格再配列を示す。NK細胞をリツキシマブで0分間、5分間、15分、30分間刺激し、続いてファロイジン染色およびフローサイトメトリーによる細胞骨格再配列の評価を行った。リツキシマブ(円、実線)または二次抗体単独(四角、点線)で刺激されたNK細胞の時間0におけるMFIに対する実験時点におけるMFIの比率。バーは、4つの反復のSDを表します。アスタリスクは、ペアになっていない受講者の t 検定 (*p < 0.05) に基づいて統計的有意性を表します。 この図の大きなバージョンを表示するには、ここをクリックしてください。
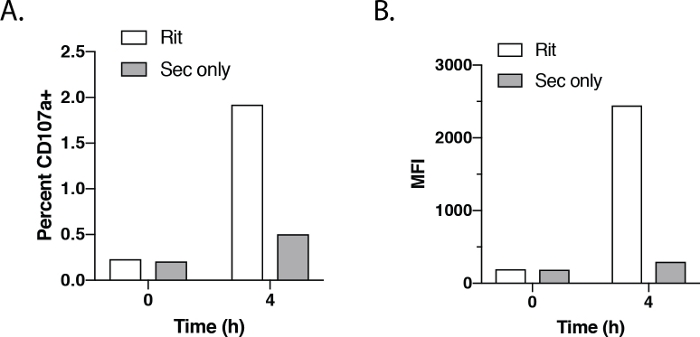
図5:FcγRIIIA活性化NK細胞はCD107aを発現する。NK細胞をリツキシマブで4時間刺激し、続いてCD107aおよびフローサイトメトリーによる脱顆粒の評価を行った。(A)リツキシマブ(白い棒)または抗ヒトκ軽鎖抗体(灰色の棒)を0時間および4時間刺激した後にCD107aを発現するNK細胞の割合(B)リツキシマブ(白棒)または抗ヒトκ軽鎖抗体(灰色棒)の0時間後及び4時間後の治療の後に刺激を受けたNK細胞のCD107a MFI(灰色の棒)。 この図の大きなバージョンを表示するには、ここをクリックしてください。
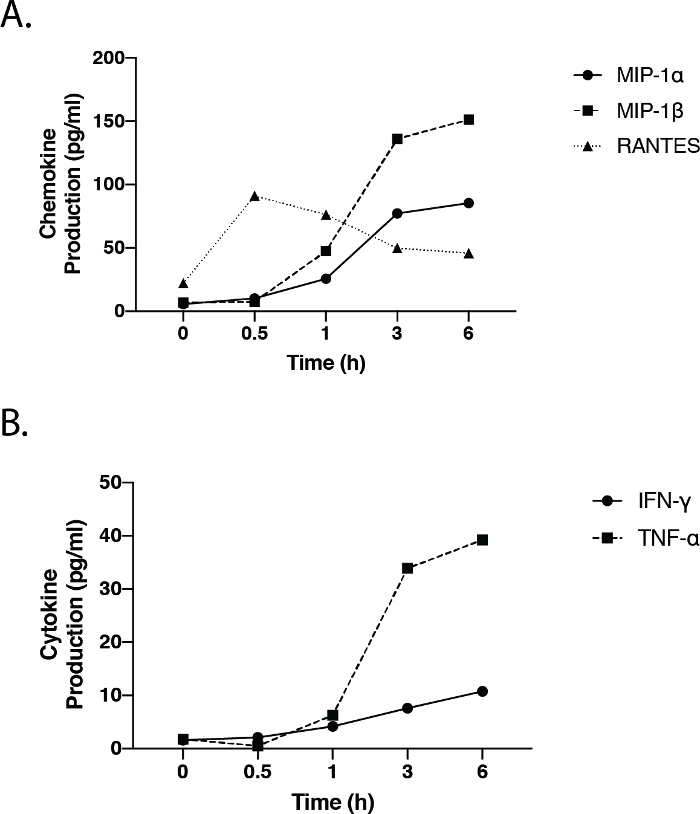
図6:FcγRIIIa活性化NK細胞はケモカインおよびサイトカインを分泌する。NK細胞をリツキシマブで0、0.5、1、3、および6時間刺激した。上清を回収し、MIP-1α、MIP-1β、RANTES、IFN-γ、およびTNF-αをフローベースおよびビーズベースのサイトカイン評価方法で測定した(材料表)。(A)各時点でMIP-1α、MIP-1β、およびRANTES製造。(B) 各時点でのIFN-γおよびTNF-α生産。 この図の大きなバージョンを表示するには、ここをクリックしてください。
ディスカッション
本プロトコルは、抗体を媒介するNK細胞におけるFcγRIIIa駆動事象を研究するための方法を説明する。これらの技術は、ADCC1、2であることが示唆される治療抗体の作用の潜在的なメカニズムの評価を可能にする。具体的には、これらの方法は、ADCCを担う基礎となる分子シグナル伝達経路および細胞プロセスを研究する柔軟性を提供する。また、ケモカインやサイトカイン産生などの他のエフェクター機能の観察も可能です。さらに、これらの方法は、ADCCを調節するために標的とすることができる潜在的なバイオマーカーおよび分子の同定を可能にする。
このプロトコルの基礎は、標的細胞が存在しない場合の抗体を用いたFcγRIIIaを介したNK細胞の人工的な刺激である。抗体結合標的細胞は、典型的には、シグナル伝達および下流効果を駆動するプラットフォームを形成するためにFc受容体の架橋を促進するのに役立つ。その代わりに、このアッセイにおいて抗ヒトκ軽鎖抗体を用いて架橋を行い、NK細胞を刺激する標的細胞の必要性をバイパスする。標的細胞がなければ、精製プロセスが成功したと仮定して、結果と観察はNK細胞に直接起因することができる。
重要なことに、抗体を架橋する抗ヒトκ軽鎖抗体を用いてFcγRIIIaに対するFc部分の結合親和性を妨げない、応答10、11、12、13の強度を指示する相互作用である。実際、研究は、アフコシル化抗体がFcγRIIIa10、11、12、13に対するそれらの親和性の増加に起因するADCCを増加させることが示されている。その後の研究では、この親和性の増加は抗ヒトκ軽鎖二次抗体の代替の影響を受けず、ADCC8の増加の基礎を研究するために使用できることを示した。NK細胞が抗体の架橋を通じて刺激されることを確実にするために、2つの陰性対照が含まれるべきです:1)二次抗ヒトκ軽鎖抗体を含まない治療抗体、および2)二次抗ヒトκ軽鎖抗体のみ。どちらの場合も、シグナリングやエフェクター関数は生成されません。
この方法はまた、小分子阻害剤に対する治療抗体の効果を研究するための柔軟性を提供する。阻害剤は、二次抗体と架橋する前に添加することができるので、阻害剤はその標的に関与する時間を持っている。しかし、研究は、阻害剤の前処理の最適な時間を決定するために行われるべきです;したがって、阻害剤は刺激に最大の効果を有する。それと, 研究者はまた、刺激後の阻害剤の効果を研究することを選択することができます。.この場合、阻害剤は、既に生成された信号およびプロセスにどのように影響するかを研究するために架橋後に添加され得る。一緒に、ここで説明する方法は、治療抗体を有する異なる低分子阻害剤の組み合わせ効果を研究する上で最大の柔軟性を提供する。
前述のように、刺激後に様々な読み出しを行うことができる。ウエスタンブロッティングは、SDS-PAGEおよび様々なベンダーからの膜移動システムを使用して信号を研究するために行うことができます。同様に、遺伝子発現は、様々なRNA抽出法、逆転写試薬、および遺伝子発現装置を用いて評価することもできる。最後に、細胞内または細胞外タンパク質の染色は、異なるフローサイトメーターを用いてサンプルを分析できる方法で行うこともできます。細胞内サイトカインとCD107a染色(ステップ3.4、同時に評価することができる)の場合、モネンシンおよび/またはブレフェルジンAを添加してシグナルを最大化する必要があります。我々は、各実験目標に異なるプラットフォームを使用し、まだ同様の結果を観察しました。したがって、この方法は、研究に応じて、様々な試薬、プラットフォーム、および器具で補完することができます。
刺激のための架橋時間は、研究の目的に依存します.シグナル伝達研究が望まれる場合、典型的な架橋刺激時間は、2分と10分の間であるpAKT、pPRAS40、およびpERK1/2は2分でピークに蓄積し、10分8、9後に消失する。機能研究(すなわち、ケモカイン/サイトカイン産生を伴うもの)については、細胞は、分析物9に応じて、少なくとも30分間刺激されなければならない。遺伝子発現解析も通常、30分の刺激9を必要とする。RANTESのmRNA産生は、刺激時にタンパク質の迅速な翻訳および放出のために細胞内に既に保存されているため、RANTES遺伝子発現を読み出しとして使用する場合は注意が必要である。脱顆粒化は、対照的に、少なくとも3時間の刺激を必要とする。これらの一般的な観察にもかかわらず、研究者は、関心のある特定の分子に最適な刺激時間を決定するために運動研究を行う必要があります。
同様に、研究者は、異なる特異性を有する抗体が同じアイソタイプであっても、異なる親和性を有するFcγRIIIaに結合するため、最適な濃度を決定するために目的の抗体を評価する必要があります。例えば、リツキシマブおよびトラスツズマブはともにIgG1アイソタイプであるが、トラスツズマブはリツキシマブ26、27よりもFcγRIIIaのバリン多型に強く結合する。この親和性の違いは、公表された研究8で観察されるように、脱顆粒化などの機能的な違いをもたらす可能性がある。
最適濃度の決定も、抗体のFc部分がFcγRIIIaに対して持っている親和性が低いために重要である。これは、プロトコルがFc受容体に抗体を結合した後の洗浄ステップを含むので、抗体を洗い流してしまう可能性がある。これは、刺激後のCD107a陽性細胞の低率によって示唆されるようにアッセイにおける感受性の欠如につながる可能性がある(図5)。しかし、最適濃度の決定は、結果が感度の欠如によるものではないという確信を与えるべきである。また、単一細胞読み出しとは対照的にバルクセルを使用する生化学的および機能的アッセイにおいて細胞が明確に活性化される(図2、図3、図6)。
プロトコルは、生理学的に起こることを完全に模倣していないので、また制限されています。また、使用される二次抗ヒトK抗体は、細胞上に発現する標的抗原によって発生する架橋を模倣することである。ここで、最大応答を生成するために二次抗体の飽和量が添加される。しかし、異なる標的細胞は異なるレベルの抗原を発現し、架橋や応答に影響を及ぼす。現在、このプラットフォームは、異なる抗原発現レベルの効果を模倣するように最適化されていません。
これらの実験を行う際に考慮すべきもう一つの要因は、個人間の異なる遺伝的背景および免疫学的歴史によるドナー間の変動である。したがって、同じアッセイで異なるドナーからのNK細胞応答を比較する際には注意が必要です。同様に、異なるドナーを使用する場合は、一般的な結論のみを行う必要があります。
全体として、記載された方法は、NK細胞における抗体駆動FcγRIIIa媒介事象を研究するための単純で柔軟な刺激プラットフォームである。これは、アフコシル化抗体8で観察されたADCCおよび有効性の増加の基礎をよりよく理解するために使用されてきた。この方法は、治療用抗体とPI3K低分子阻害剤9を組み合わせた研究においても採用された。さらに、pS6によって調節されたケモカインおよびサイトカイン産生のための未知のメカニズムが9を同定した。したがって、この人工シグナル伝達プラットフォームを用いた今後の研究は、FcγRIIIaによって駆動されるエフェクター機能の調節機構をさらに解明することができる。また、これらのメカニズムにとって重要な新しい分子や、既知の分子の新しい役割を同定する可能性もあります。
開示事項
すべての著者は、iQバイオサイエンスの従業員またはコンサルタントです。
謝辞
著者らは、この原稿のコメントと編集のためにジェームズ・リーとクリストファー・ンに感謝します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 16% パラホルムアルデヒド | サーモフィッシャーサイエンティフィック | 50-980-487 | |
| アレクサフルオア 488 ファロイジン | サーモフィッシャーサイエンティフィック | A12379 | |
| 抗マウスHRP抗体 | 細胞シグナル技術 | 7076 | |
| AutoMACS装置 | Miltenyi | NK細胞単離法; 別の単離装置を使用してもよい | |
| B-メルカプトエタノール | サーモフィッシャーサイエンティフィ | 21985023 | |
| ウシ血清アルブミン画分 V, 脂肪酸フリー | ミリポア シグマ | 10775835001 | |
| CD107a APC 抗体 | バイオレジェンド | 328620 | |
| サイトカイン 30-プレックス ヒューマンパネル | サーモフィッシャーサイエンティフィック | LHC6003M | ケモカイン/サイトカイン法; 別のケモカイン/サイトカイン分析法を使用することもできます |
| FBS | Hyclone | SH30071.01 | |
| ヤギ抗ヒト & 軽鎖抗体 | ミリポア Sigma | AP502 | |
| Halt プロテアーゼおよびホスファターゼ阻害剤 カクテル | サーモフィッシャーサイエンティフィック | 78440 | |
| HEPES | サーモフィッシャーサイエンティフィック | 15630080 | |
| 大容量 cDNA 逆転写キット | サーモフィッシャーサイエンティフィック | 4368814 | cDNA 転写法; 製造元のプロトコールに従って使用 |
| IFN-? プライマー | サーモフィッシャーサイエンティフィック | Hs00989291_m1 | |
| ロイコセップチューブ (多孔質バリア付き円錐形 50 mL) | Greiner | 227290 | |
| Lymphoprep (密度勾配培地) | Stemcell | 7851 | |
| MIP-1? プライマー | サーモフィッシャーサイエンティフィック | Hs00234142_m1 | |
| MIP-1β プライマー | サーモフィッシャーサイエンティフィック | Hs99999148_m1 | |
| NK細胞分離キット | Miltenyi | 130-092-657 | NK細胞分離キット; 別の分離キットは |
| NuPAGEを使用することができます 4-12% Bis-Tris Protein Gels | サーモフィッシャーサイエンティフィック | タンパク質分離システムは、 | |
| pAKT(S473)抗体 | 細胞シグナル伝達技術 | 4060 | |
| pERK1/2 抗体 | 細胞シグナル伝達技術 | 4370 | |
| pPRAS40 抗体 | 細胞シグナル伝達技術 | 13175 | |
| PVDF 膜 | サーモフィッシャーサイエンティフィック | ニトロセルロースを使用できる | |
| ランテスプライマー | サーモフィッシャーサイエンティフィ | Hs00982282_m1 | |
| RIPA バッファー | ミリポアシグマ | R0278 | |
| RPMI w/glutamax | サーモフィッシャーサイエンティフィ | 61870 | |
| ピルビン酸ナトリウム | サーモフィッシャーサイエンティフィック | 11360070 | |
| TNF-? プライマー | サーモフィッシャーサイエンティフィ | Hs00174128_m1 | |
| トリトン X-100 | サーモフィッシャーサイエンティフィック | 85111 | |
| トリゾール | サーモフィッシャーサイエンティフィック | 15596018 | RNA単離法;メーカーのプロトコルに従って使用 |
| Xcell Blot II トランスファーモジュール | Thermo Fisher Scientific | 別のタンパク質分離システムを使用できます | |
| Xcell SureLock Protein Gel Electrophoresis チャンバーシステム | Thermo Fisher Scientific | 別のタンパク質分離システムを使用できます | |
| β-アクチンHRP抗体 | Abcam | ab6721 | |
| β-アクチンプライマー | サーモフィッシャーサイエンティフィック | Hs00982282_m1 |
参考文献
- Hudis, C. A. Trastuzumab - Mechanism of Action and Use in Clinical Practice. New England Journal of Medicine. 357 (1), 39-51 (2007).
- Weiner, G. J. Rituximab: mechanism of action. Seminars inHhematology. 47 (2), 115-123 (2010).
- Orange, J. S. Formation and function of the lytic NK-cell immunological synapse. Nature Reviews Immunology. 8 (9), 713-725 (2008).
- Bonnema, J. D., Karnitz, L. M., Schoon, R. A., Abraham, R. T., Leibson, P. J. Fc receptor stimulation of phosphatidylinositol 3-kinase in natural killer cells is associated with protein kinase C-independent granule release and cell-mediated cytotoxicity. The Journal of Experimental Medicine. 180 (4), 1427-1435 (1994).
- Jiang, K., et al. Pivotal role of phosphoinositide-3 kinase in regulation of cytotoxicity in natural killer cells. Nature Immunology. 1 (5), 419-425 (2000).
- Kanakaraj, P., et al. Phosphatidylinositol-3 kinase activation induced upon Fc gamma RIIIA-ligand interaction. The Journal of Experimental Medicine. 179 (2), 551-558 (1994).
- Orange, J. S., Harris, K. E., Andzelm, M. M., Valter, M. M., Geha, R. S., Strominger, J. L. The mature activating natural killer cell immunologic synapse is formed in distinct stages. Proceedings of the National Academy of Sciences. 100 (24), 14151-14156 (2003).
- Liu, S. D., et al. Afucosylated Antibodies Increase Activation of FcγRIIIa-Dependent Signaling Components to Intensify Processes Promoting ADCC. Cancer Immunology Research. 3 (2), 173-183 (2015).
- Romeo, V., Gierke, S., Edgar, K. A., Liu, S. D. Effects of PI3K Inhibition on Afucosylated Antibody-Driven FcγRIIIa Events and Phospho-S6 Activity in NK Cells. The Journal of Immunology. 203 (1), 137-147 (2019).
- Mössner, E., et al. Increasing the efficacy of CD20 antibody therapy through the engineering of a new type II anti-CD20 antibody with enhanced direct and immune effector cell-mediated B-cell cytotoxicity. Blood. 115 (22), 4393-4402 (2010).
- Shields, R. L., et al. Lack of fucose on human IgG1 N-linked oligosaccharide improves binding to human Fcgamma RIII and antibody-dependent cellular toxicity. The Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. The absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. The Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Junttila, T. T., et al. Superior In vivo Efficacy of Afucosylated Trastuzumab in the Treatment of HER2-Amplified Breast Cancer. Cancer Research. 70 (11), 4481-4489 (2010).
- Goede, V., et al. Obinutuzumab (GA101) plus chlorambucil (Clb) or rituximab (R) plus Clb versus Clb alone in patients with chronic lymphocytic leukemia (CLL) and preexisting medical conditions (comorbidities): Final stage 1 results of the CLL11 (BO21004) phase III trial. Journal of Clinical Oncology. 31, 15_suppl 7004(2013).
- Sehn, L. H., et al. Randomized Phase II Trial Comparing Obinutuzumab (GA101) With Rituximab in Patients with Relapsed CD20+ Indolent B-Cell Non-Hodgkin Lymphoma: Final Analysis of the GAUSS Study. Journal of Clinical Oncology. 33 (30), 3467-3474 (2015).
- Pons-Tostivint, E., Thibault, B., Guillermet-Guibert, J. Targeting PI3K Signaling in Combination Cancer Therapy. Trends in Cancer. 3 (6), 454-469 (2017).
- Engelman, J. A. Targeting PI3K signalling in cancer: opportunities, challenges and limitations. Nature Reviews. Cancer. 9 (8), 550-562 (2009).
- Fruman, D. A., Rommel, C. PI3K and cancer: lessons, challenges and opportunities. Nature Reviews. Drug Discovery. 13 (2), 140-156 (2014).
- Janku, F., Yap, T. A., Meric-Bernstam, F. Targeting the PI3K pathway in cancer: are we making headway. Nature Reviews. Clinical Oncology. 15 (5), 273-291 (2018).
- Samuels, Y., et al. High frequency of mutations of the PIK3CA gene in human cancers. Science. 304 (5670), New York, N.Y. 554(2004).
- Kanevskiy, L. M., Telford, W. G., Sapozhnikov, A. M., Kovalenko, E. I. Lipopolysaccharide induces IFN-γ production in human NK cells. Frontiers in Immunology. 4, (2013).
- Romagnani, C., et al. Activation of human NK cells by plasmacytoid dendritic cells and its modulation by CD4+ T helper cells and CD4+ CD25hi T regulatory cells. European Journal of Immunology. 35 (8), 2452-2458 (2005).
- Sivori, S., et al. CpG and double-stranded RNA trigger human NK cells by Toll-like receptors: Induction of cytokine release and cytotoxicity against tumors and dendritic cells. Proceedings of the National Academy of Sciences. 101 (27), 10116-10121 (2004).
- Hanna, J., et al. Novel Insights on Human NK Cells' Immunological Modalities Revealed by Gene Expression Profiling. The Journal of Immunology. 173 (11), 6547-6563 (2004).
- Swanson, B. J., Murakami, M., Mitchell, T. C., Kappler, J., Marrack, P. RANTES production by memory phenotype T cells is controlled by a posttranscriptional, TCR-dependent process. Immunity. 17 (5), 605-615 (2002).
- Jo, M., Kwon, H. S., Lee, K. H., Lee, J. C., Jung, S. T. Engineered aglycosylated full-length IgG Fc variants exhibiting improved FcγRIIIa binding and tumor cell clearance. mAbs. 10 (2), 278-289 (2018).
- Isoda, Y., et al. Importance of the Side Chain at Position 296 of Antibody Fc in Interactions with FcγRIIIa and Other Fcγ Receptors. PLoS ONE. 10 (10), 0140120(2015).
再版と許可
