ここでは、in vivoで褐色脂肪組織における全脂肪酸de novo脂肪生成を分析するために、酸化重水素とガスクロマトグラフィー質量分析(GCMS)を利用した安価な定量法を紹介します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
方法論記事
酸化重水素を用いた褐色脂肪組織における de novo 脂肪酸合成の定量的測定(英語)
* These authors contributed equally
この記事について
サマリー
要約
脂肪酸合成は、全身代謝ホメオスタシスやその他の生理学的および病理学的プロセスの制御において重要な機能的役割を果たす、複雑でエネルギーを必要とする代謝経路です。グルコース処理などの他の主要な代謝経路とは対照的に、脂肪酸合成は日常的に機能的に評価されていないため、代謝状態の解釈が不完全です。さらに、この分野の新規参入者に適した公開されている詳細なプロトコルが不足しています。ここでは、in vivoでの褐色脂肪組織における全脂肪酸de novo合成の分析のために、酸化重水素とガスクロマトグラフィー質量分析(GCMS)を利用した安価な定量法について説明します。この方法は、炭素源とは無関係に脂肪酸合成酵素の生成物の合成を測定するものであり、事実上すべての組織、任意のマウスモデル、および外部摂動下で潜在的に有用です。GCMSのサンプル調製とダウンストリーム計算の詳細が記載されています。褐色脂肪は、高レベルのde novo脂肪酸合成と代謝恒常性の維持に重要な役割を果たすため、分析に焦点を当てています。
概要
肥満とそれに関連する代謝性疾患は、現在および将来の世代を危険にさらすパンデミックです1,2。肥満に関連する代謝調節不全は、エネルギー摂取量と消費の不均衡の結果として一般的に単純化されますが、環境因子および内因性因子によって制御される多数の代謝経路に影響を与えます3。しかし、代謝調節不全の動物モデルで日常的に検査されている経路はごくわずかです。
一例として、グルコース廃棄は、おそらくポータブルグルコースモニターの使用が簡単であるため、グルコースおよびインスリン負荷試験によって日常的に測定されます4。全身のグルコースと脂質の酸化相対速度も、間接熱量測定アッセイからの呼吸交換比に基づいて日常的に推定されます5,6。しかし、代謝の他のすべての側面の大部分は、日常的に機能的に評価されていません。.これにより、代謝状態の解釈が不完全になり、治療の選択肢が失われます。そのような主な経路の1つは、de novo脂肪形成です。
de novo脂肪生成(DNL)は、前駆体から新しい脂肪酸を生成するプロセスです。グルコースは全身DNLに寄与する主要な前駆体であると考えられています7が、酢酸、果糖、乳酸、分岐鎖アミノ酸などの他の前駆体は、空間的および条件依存的に関連する炭素源であることが示されています8,9,10,11,12。DNLは代謝ホメオスタシスに大きく貢献し、正常な発達に不可欠です13。さらに、DNLの変化は、癌14,15および代謝16,17,18および心血管疾患19,20に関連しています。
DNL経路は、コア酵素成分であるATPクエン酸リアーゼ(ACLY)、アセチルCoAカルボキシラーゼ(ACC1/2)、および脂肪酸合成酵素(FAS)で構成されており、主に炭素数16の飽和脂肪酸であるパルミチン酸を生成します。しかし、奇数鎖脂肪酸や分岐鎖脂肪酸もより低い速度で生産することができる9。伸長酵素と脱酸酵素は、これらの脂肪酸をさらに修飾し、さまざまな機能(例えば、長期のエネルギー貯蔵や膜流動性の操作)に有用な多様な脂肪酸種を作り出します。
DNL酵素機構の発現は、少数の転写因子によって制御されています。これまでに最もよく報告されたのは、ステロール調節要素結合タンパク質(SREBP)ファミリー、炭水化物応答要素結合タンパク質(ChREBP)、および肝臓X受容体(LXR)21,22,23,24,25,26です。それらの機能は明らかに重複しているにもかかわらず、細胞型の優勢と生理学的または病理学的状態に基づく個々の調節が報告されています21,22,27,28。
驚くべきことに、DNL経路の選択されたステップに対する多くの阻害剤は、肥満、非アルコール性脂肪性肝疾患/非アルコール性脂肪性肝炎(NAFLD/NASH)、および心血管疾患を含む多くの疾患に対して臨床使用が承認されているか、前臨床または臨床開発段階にあります29。これらの取り組みは、健康と病気におけるDNLの関連性を強調しています。
近年、de novo脂肪酸合成を定量的に評価する方法の採用が増加しています30。これを評価するための最も一般的な方法は、重標識水(D2O)の使用であり、重標識水素は、DNL基質NAPDH、アセチルCoA、およびマロニルCoAの水素との重水素交換を介して、合成中に直接的および間接的にアシル鎖に取り込まれます。このアプローチは人気が高まっていますが、この分野の新規参入者に適した公開されている詳細なプロトコルが不足しています。ここでは、Lee et al.31 によって以前に開発された計算を使用して、D2O およびガスクロマトグラフィー質量分析法 (GCMS) を使用して、FAS の生成物の de novo 合成を定量的に評価する方法を概説します。この方法は、炭素源とは無関係にde novo脂肪酸合成を測定するため、ほぼすべての組織、あらゆるマウスモデル、および外部摂動下で役立つ可能性があります。ここでは、DNLのレベルが高く、代謝恒常性の維持に重要な役割を果たす褐色脂肪組織(BAT)の分析に焦点を当てています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
すべての実験は、シンシナティ小児病院医療センターの動物管理および使用委員会によって承認されました。
1. D2Oの調製
注:実験のばらつきを避けるために、実験期間中、すべてのマウスに十分な溶液/飲料水を準備してください。
- 腹腔内注射の場合:D 2 Oのリットルあたり9 gのNaClを溶解することにより、0.9%w / v生理食塩水D 2 Oを生成し、非発熱性0.2μmフィルターでろ過して滅菌します。
- 飲用D2O水の場合:通常の飲料水920mLあたり80mLのD2Oを混合することにより、飲料水として使用する8%v/vD2O濃縮水を生成します。通常の飲料水はマウス施設から入手できます。非発熱性0.2μmフィルターでろ過して滅菌します。
2. 温度順応によるBAT活性の調節
- 温度順応開始の2週間前にケージごとに2匹のマウスがいるようにマウスを分離します。マウスがすべてのケージに適応できるように給水をウォーターボトルに変更し、22°Cに維持します。
- 温度順応を開始する1週間前に、適切な温度(熱中性の場合は30°C、室温の場合は22°C、低温暴露の場合は18°C)を設定して、マウスの環境チャンバーを準備します。
- 温度順応の開始時に、ケージを環境エンリッチメントのない新しいものと交換します(巣を避けるため)。ケージをそれぞれの温度に移動します。
注:熱中性に割り当てられたケージは、30°Cで4週間滞在します。室温に割り当てられたケージは、22°Cで4週間滞在します。低温曝露に割り当てられたケージは、1週目は18°C、2週目は14°C、3週目は10°C、4週目は6°Cと、週単位で徐々に寒くなります。 - 汚れたケージは、すべての条件で毎週交換してください。さらに、食品と水のボトルを、適切な温度で少なくとも24時間事前に調整された新しいボトルと交換します。
注:特に寒いネズミの場合、通常の状態に比べてかなり多くの量の餌を消費するため、毎週追加される餌の量に注意してください。食べ物を 自由に提供します。
3. D2Oの投与
- 組織採取の12時間〜3日前に、1 mLのシリンジと26 Gの針を使用して腹腔内注射を行い、各動物に0.9%w / v生理食塩水-D2Oを35 μL / g体重で注射します。.
注:適切なラベリング時間の選択の詳細については、ディスカッションセクションを参照してください。 - ウォーターボトルを、8%v / v D2O濃縮飲料水を含むボトルに変更します。
4. 血漿および組織の収集、処理、および保存
- 実験の最後に、承認された方法論を使用してマウスを犠牲にします(例:二酸化炭素の過剰摂取とそれに続く子宮頸部脱臼)。
- 結果に影響を与える可能性のある安楽死の前の急激な温度変化を避けるために、加熱/冷却パッドまたはその他の方法を使用してください。承認された方法論に従ってマウスを安楽死させます。すぐに血液と組織の採取に進みます。
- 26Gの針を使用して心臓穿刺で血液を採取し、エチレンジアミン四酢酸採血管に保管します。さらに処理するまで、血液を氷上に保管してください。
- 胸腔の下部から首の上部まで、マウスの背中の中央線に沿って皮膚を切り開き、皮膚の下の組織に影響を与えないように皮膚を引き上げます。肩甲骨間BATは、白い脂肪組織の薄い層の下の肩甲骨の間にあり、2つのピラミッド型の葉で構成されています。
- 氷冷したリン酸緩衝生理食塩水(PBS)で洗浄して組織を洗浄します。ペーパータオルを軽くたたいて余分な液体を取り除き、分析スケールで計量し、マイクロチューブに集めます。
- 直ちに液体窒素を使用して組織を瞬間凍結します。他のBATデポも収集できます。
- 血液サンプルを10,000 x g で4°Cで10分間遠心分離します。 遠心分離後、赤血球ペレットを乱すことなく血漿を慎重に回収します。それを新しい氷冷マイクロチューブに移し、液体窒素で瞬間凍結します。
- 褐色脂肪および血漿サンプルは、使用するまで-80°Cで保管してください。
5. 脂肪組織からの脂質抽出
- 抽出を開始する前に
- ガラスバイアルにメタノール中のヘキサデセン酸-d31 1 mM溶液を調製します。これは、内部脂肪酸の標準として機能します。
- 必要量のクロロホルム(CHCl 3)とメタノール(CH3OH)を-80°Cの冷凍庫またはドライアイスで予冷します。
注:酸化防止剤ジ-tert-ブチル-4-メチルフェノール(BHT)は、不飽和脂肪酸の二重結合の酸化を防ぐために、0.01%w / v(2.5 mg / 25 mL)の濃度でCHCl3 に添加できます。 - 各組織サンプル用の微量遠心チューブと、ブランク抽出に使用する追加のチューブを事前にラベル付けします。
注意:CH3OHおよびCHCl3 は、吸入すると揮発性が高く、有毒です。ドラフトでのみ使用してください。
注:微量遠心チューブのブランドが異なれば、溶媒漏れを防ぐという点で、バックグラウンドパルミチン酸のレベルと機能も異なります。溶媒の漏れを防ぎ、チューブの汚染パルミチン酸のレベルが最小限に抑えられていることを確認するために、最初にさまざまなチューブをテストすることをお勧めします。さらなる議論については、Yao et al.32 を参照してください。
- サンプルを冷凍庫から取り出し、ドライアイスの上に置きます。
- 事前にラベル付けされた微量遠心チューブを分析天びんの上に置き、天びんを風袋引きします。ピンセットとメス/スチールカミソリの刃をドライアイスの上に10〜20秒間置き、冷まします。
- ピンセットを使用して凍結組織サンプルをチューブから取り出し、プラスチック製の計量ボートに置きます。計量ボートは、ドライアイスの平らなブロックまたは別の予冷された表面に置くことができます。
- メスまたは鋼のかみそりの刃を使用して、重量5〜15mgに相当する組織のごく一部を解剖します。微量遠心チューブに入れ、正確な重量を記録します。各試験片について繰り返します。サンプルは、この時点で冷凍庫に保存するか、脂質抽出のために以下のステップに進めることができます。
注意: メスがサンプル間で70%エタノールで適切に洗浄され、各サンプル間で新しい計量ボートが使用されていることを確認してください。
- 各サンプルに10 mM hexadecenoic-d 31(C16:0-d31)酸 1 μL/mg を添加します。
注意: 次の手順(5.4〜5.8)は、溶剤を吸入する危険性があるため、ドラフト内で実行する必要があります。 - 250μLのCH3OH、250 μLのH2O、および500 μLのCHCl 3を、3 つの5 mmステンレス鋼ビーズで各サンプルに加えます。チューブを粉砕機の予冷ブロックに入れ、25Hzの振動周波数でサンプルを5分間混合するか、組織サンプルについてメーカーが推奨するガイドラインを使用します。マグネットを使ってビーズを取り除きます。
- サンプルを12,000 x g で4°Cで10分間遠心分離します。
注:遠心分離後、極性代謝物を含む上部水相と脂質および脂肪酸を含む下部有機相で、明確な二相分離が観察されるはずです。分離が見られない場合は、250μLのH2Oを添加し、ボルテックスおよび遠心分離のステップを繰り返す。 - マイクロピペットを使用して、各サンプルの底相から一定量の微量を、対応するラベルの付いた微量遠心チューブに入れます。
- 残りのサンプルに500 μLのCHCl3 を加え、ステップ5.6〜5.7を繰り返します。
- サンプルを窒素ガス下に置くか、CHCl3耐性の冷蔵遠心真空に4°Cで完全に乾くまで置きます。乾燥したサンプルは、誘導体化の準備が整うまで-20°Cで保存できます。
注:極性代謝物を分析するために、各サンプルの最上層をこの時点で収集し、ステップ5.9のように乾燥させることもできます。
6. 脂肪酸メチルエステル(FAME)の調製とGCMS分析
- FAMEを調製するための酸触媒によるエステル化およびエステル交換反応
注意: 次の手順は、溶剤を吸入する危険性があるため、ドラフトの下で実行する必要があります。- サンプルを冷凍庫に保管している場合は、窒素下で5分間乾燥させて、水が存在しないことを確認します。
- MS グレードの溶媒を使用して、98 mL の無水 CH3OH をガラス培地ボトルにピペットで移します。ドラフトに2mLの無水硫酸をゆっくりと加えて、CH3OHで2%H2SO4を作ります。閉じたボトルをくるくる回して混ぜます。
- CH3OH溶液中の2%H2SO4 500 μLを各サンプルに加え、短時間ボルテックスします。
- サンプルをヒートブロック上で50°Cで2時間インキュベートします。
- ヒートブロックからサンプルを取り出し、各サンプルに100 μLの飽和NaCl溶液と500 μLのヘキサンを加えます。
- サンプルを室温で1分間激しくボルテックスします。サンプルを1分間放置します。この後、2つのフェーズが明らかになるはずです。
- 上相を新しい微量遠心チューブに集めます(微量遠心チューブの適切な選択については、セクション5.1.3の注を参照してください)。
- 収率を最大化するには、手順6.1.5〜6.1.7を繰り返して、2番目のサンプルを同じラベル付きチューブに収集します。
- サンプルを窒素ガス下で室温で乾燥させます。
- サンプルを元の組織重量に対して 20 μL/mg のヘキサンに再懸濁し、ガラスインサートを使用してガラス製 GC バイアルに直ちに移します。
注:蒸発を最小限に抑えるために、サンプルを移送する際に迅速に作業します。
- GCMS分析
- FAME 同位体の存在量を測定するには、単一の四重極ガスクロマトグラフィー質量分析計(GCMS)にサンプルを注入します。
注:パルミチン酸の検出には多くのカラムタイプを使用できますが、 材料表に詳述されているように、脂肪酸シス/トランス異性体の分離用に開発されたGCMSカラムでは、以下の温度プログラムが確立されています。このカラムの長さは50m、内径は0.25mmです。 - ヘリウムをキャリアガスとして、1 mL/分で流す、270°Cのインレット温度でスプリット/スプリットレスインレットに1 μLのサンプルを注入します。低存在量の脂肪酸には、総流量 19 mL/分、セプタムパージ 3 mL/分、パージフロー 15 mL/分(0.75 分)のスプリットレス注入を使用します。パルミチン酸やオレイン酸などの高脂肪酸には、10:1〜40:1の分割比を使用します。
- 次のオーブンパラメータを使用します:80°Cの初期温度。170°Cまで20°C/分刻みで増加します。204°Cまで1°C/分刻みで増加します。250°Cまで20°C/分刻みで増加します。その後、250°Cで10分間保持します。
- 質量選択検出器(MSD)パラメータは、電子衝突イオン化モードを70 eV、スキャン速度1,562(u/s)、周波数4.1スキャン/秒で50-400 m/zの範囲でスキャンします。トランスファーラインは280°C、イオン源は230°C、四重極は150°Cで使用します。
注:他のカラムを使用することもできますが、温度プログラムは異なります。 - サンプルシーケンス:注入のサンプル順序をランダム化し、シーケンス内の 5 サンプルごとに、シーケンスの最初に少なくとも 2 つまたは 3 つのヘキサンブランクを注入し、シーケンスの最後に 2 つまたは 3 つを注入します。
- 装置固有のソフトウェア、またはMetabolite-Detector33などの無料のオープンアクセスソフトウェアを使用して、各脂肪酸メチルエステルについて 表1 のイオンを積分します。
注: 表 1 に M1-M5 同位体をカバーするイオンの概要を示しており、このラベリングウィンドウで重水素の取り込み量をカバーしていることがわかりました。ただし、 de novo フラックスが著しく高い場合や、より長い標識時間が使用される場合は、これを拡張する必要があるかもしれません。 - 各積分イオンの存在量を使用して質量同位体分布を生成し、イオン強度を分数存在量に変換して、質量同位体分布の合計が 1 になるようにします。 補足ファイルのスプレッドシートの例を参照してください。
注:重水素の取り込みを正確に決定するには、天然同位体の存在量を補正して、13C、15N、2Hなどの天然に存在する同位体の存在を可能にする必要があります。これは、Fernandez et al.34,35 によって概説されているように補正マトリックスを適用することによって実行され、標識代謝物から標識されていない測定代謝物の MID を差し引くことによって実行することはできません。実際には、fluxfix 36、polyMID37、IsoCor38 などの無料で入手できるソフトウェアを使用して、生データを分別 MID に変換することを推奨しており、FAS のメチルエステル生成物の同位体補正の式を表 1 に示しました。 - 存在するパルミチン酸の量を決定するには、次の式を利用します。
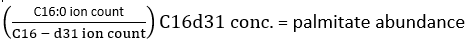
ここで、イオンカウントは表 1 に示したすべてのパルミチン酸同位体の合計を示し、C16:0-d 31 は内部標準ヘキサデセン酸-d31 を示す。内部標準は、内因性パルミチン酸のピークとは別のピークを形成します。他の脂肪酸の相対存在量も決定できますが、脂肪酸特異的同位体内部標準(D2Oの取り込みから観察されるものよりも大きい質量シフトを有する)または外部標準曲線を完全な定量のために採用する必要がある場合があります。ブランク抽出サンプルを使用してバックグラウンドパルミチン酸の量を決定し、これを最終的な組織値から差し引きます。 - パルミチン酸のモル濃縮度(ME)は、次の式で計算します。

ここで、Mi はパルミチン酸同位体の正規化された分数存在量であり、nは可能なパルミチン酸同位体の数である。例えば、分数分布がM1 = 0.25、M2 = 0.08、M3 = 0.02のパルミチン酸分子のMEは、(0.025*1)+(0.08*2)+(0.02*3)=0.245となります( 補足ファイル参照)。
- FAME 同位体の存在量を測定するには、単一の四重極ガスクロマトグラフィー質量分析計(GCMS)にサンプルを注入します。
7.体内水分濃縮を決定するための血漿サンプルの重水素アセトン交換
- 反応
- 0〜9%v / vの範囲の水中重水素の10の基準を準備します。
- ステップ 5.1.1 の標準試料を含め、サンプルあたり 4 μL になるように 5% v/v アセトン/アセトニトリル溶液を調製します。
- 標識されたセーフロック微量遠心チューブに、各血漿サンプルまたは標準液10 μL、10 M NaOH4 μL、5%アセトン/アセトニトリル4 μLを混ぜ合わせます。これをサンプルごとに 3 回に分けて実行します。
- ピペッティングでサンプルを穏やかに混合します。サンプルを室温で一晩インキュベートします。
- 抽出
- インキュベーション後、各サンプルに450〜550mgのNa2SO4 を添加する。
- ドラフト内で、600 μL の CHCl3 を各チューブに加え、15 秒間激しくボルテックスします。
- サンプルを 300 x g で 2 分間遠心分離します。
- ドラフト内で、各サンプルの上清の 80 μL アリコートを 3 回、ガラスインサートとキャップ付きの標識付きガラス製 GCMS バイアルに移します。
- GCMS分析
- カラム(内径 30 m、内径 0.25 mm、Agilent DB-35MS)でサンプルを分離し、付属の質量分析計で分析します。
- スプリット/スプリットレスインレットに、スプリット比 40:1、ヘリウム流量 1 mL/分、インレット温度 270 °C のサンプル 1 μL を注入します。
- オーブンのパラメータは、初期温度を60°Cとし、100°Cまで20°C/分刻みで昇温し、220°Cまで50°C/分刻みで昇温し、220°Cで1分間保持します。
- 質量選択検出器(MSD)パラメータは、70 eV の電子衝撃イオン化モード、58 m/z および 59 m/z の選択イオンモニタリングを使用します。トランスファーラインは280°C、イオン源は230°C、四重極は150°Cで使用します。
注:他の低ブリード、結合、架橋、中極性のカラムを使用できますが、温度プログラムは異なります。
- 液体サンプラー法を CHCl 3 洗浄で開始し、次に 6 サンプルごとに追加の CHCl3 洗浄ステップを含むサンプルのランダム化されたシーケンスを設定します。
注:アセトンをオートサンプラーのニードル洗浄として使用する場合は、CHCl 3 またはヘキサンと交換し、クロマトグラムに汚染されたアセトンピークが明らかでなくなるまで、複数のブランク CHCl3 サンプルを注入します。 - この分析法では、アセトンピークは約 1.25 分で溶出します。 表 1 に示すように、ステップ 6.2.6-6.2.7 に従ってデータを統合し、アセトン濃縮の分画存在量を計算し、m/z 比が 58-60 のピークを分析するように調整します。
- 標準試料を使用して検量線を生成し、アセトンの分別濃縮に基づいて、試験サンプルの体水分濃縮(p)の割合を決定します。
- カラム(内径 30 m、内径 0.25 mm、Agilent DB-35MS)でサンプルを分離し、付属の質量分析計で分析します。
8. in vivo de novo 脂肪生成計算
- 各検体中のFASの直接生成物である新規合成脂肪酸(FNS)の割合(パルミチン酸、奇数鎖脂肪酸、mmBCFAなど)を、次の式で計算します。
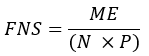
ここで、MEはパルミチン酸分子の平均モル濃縮度(ステップ6.2.9)、pは対応する血漿サンプルからの水中の重水素濃縮度(ステップ7.3.4)、Nは重水素を取り込むことができるパルミチン酸上の交換可能な水素原子の数です。 - Lee et al.31 によって確立された以下の式を使用して N を決定します。
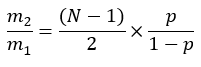
- 新しく合成された脂肪酸(MNS)のモル量は、次の方法で決定します。
MNS = FNS x 総脂肪酸量 (nmol/mg 組織)。
注:例えば、パルミチン酸モル濃縮度(ME)が0.245、体内水中の重水素濃縮度(p)が0.045、計算されたN数が22の場合、パルミチン酸の分別合成は0.247です。組織中に存在するパルミチン酸の量が2 mmol / mgの場合、新しく合成されたパルミチン酸のmmolは0.494 mmol / mgです( 補足ファイルを参照)。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
ステップ1で説明したD2O投与量に基づいて、我々は典型的に、体内水分が2.5%から6%の範囲で濃縮され、体内水分中の重水素濃縮のベースラインレベルが1時間で急速に達成され、8%濃縮飲料水 を介して 研究期間中維持されることを見出す(図1)。継続的な定常状態の体内水分濃縮は、ステップ 6 で使用される計算の仮定であるため、新しい実験モデルで体内水分濃縮の動態を実験的に検証することをお勧めします。
BATでは、 de novo で合成された脂肪酸の量が、熱中性脂肪酸に比べて室温で増加することを発見しました(図2)。D2O投与の3日後の熱中性および室温でのマウスのBAT中のパルミチン酸の質量同位体分布は、室温でより高いM1およびM2重水素濃縮を示しています(図2A)。この低温濃縮は、パルミチン酸だけでなく、BAT中の幅広い脂肪酸でも...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
複雑な代謝経路間のバランスと相互作用を理解することは、代謝関連疾患の生物学的基盤を理解する上で不可欠なステップです。ここでは、de novo脂肪酸合成の変化を決定するための非侵襲的で安価な方法論を示します。この方法は、脂肪酸重水素濃縮31からのde novo合成フラックスを推定し、体内水中のD2Oの相対的な割合を決定するために重水素−アセトン交換を使用するための計算を開発した以前に発表された方法39から適応されている。近年、我々はここで説明した方法を採用し、それを応用して、脂肪貯蔵所、脳、肝臓、および腫瘍における多様な脂肪酸の合成の変化を明らかにしました9,22,40。このプロトコルには、いくつかの重要なステップと変更可能な側面があります。これらは、全体的な実験計画、およびこの方法で使用される分析アプ...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者は開示するものは何もありません。
謝辞
貴重な議論をしてくれたSanchez-Gurmacches氏とWallace氏の研究室メンバーに感謝します。この研究は、米国心臓協会(18CDA34080527 から JSG に、19POST34380545 から RM に)、NIH (R21OD031907 JSG )、CCHMC Trustee Award、CCHMC Center for Pediatric Genomics Award、CCHMC Center for Mendelian Genomics & Therapeutics Award からの助成金によって支援されました。この研究は、シンシナティの消化器疾患研究コアセンターのNIH P30 DK078392によって部分的に支援されました。内容は著者の責任であり、必ずしも米国国立衛生研究所の公式見解を表すものではありません。RTとMWは、UCD Ad Astra Fellowshipの支援を受けました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 4 mLガラスバイアルフィ | ッシャーサイエンティフィック | 14-955-334 | |
| 0.2 µmフィルター | オリンパスプラスチック | 25-244 | |
| 26G 針付きシリンジ | BD | 309597 | |
| アセトン | メルク | 34850 | |
| アセトニトリル | メルク | 900667 | |
| ブルー GC スクリューキャップ セプタム付き | アジレント | 5190-1599 | |
| 遠心分離機 | エッペンドルフ | 5424R | |
| クロロホルム | Sigma | 366927 | |
| 酸化重水素 | Sigma | 151882 | |
| Di-tert-butyl-4-methylphenol (BHT) Select FAME カラム | Merck | B1378 | |
| Di-tert-butyl-4-methylphenol (BHT) Select FAME カラム | Agilent | CP7419 | |
| EDTA チューブ | Sarstedt | 411395105 | |
| Ethanol | Merck | 51976 | |
| Hexadesenic-d31 酸 | Larodan | 71-1631 | |
| Hexane | Merck | 34859 | |
| メタノール | Merck | 34860 | |
| マイクロ遠心チューブ | Olympus Plastic | 24-282 | |
| マウス 環境チャンバー | Caron Caron | 7001-33 | |
| 塩化カリウム | Fisher Bioreagents | BP366-500 | |
| ポタシ | MPバイオメディカル194727 | ||
| SafeLockマイクロ遠心チューブ | Eppendorf | 30120086 | |
| スクリュートップ琥珀色GCバイアル | Agilent | 5182-0716 | |
| ナトリウム | ッシャーバイオ試薬 | BP358-212 | |
| 酸化ナトリウム | メルク | S5881 | |
| リン酸ナトリウム、二塩基性 | フィッシャーBioreagents | BP332-500 | |
| メル | ク | 239313 | |
| 硫酸 | メルク | 258105 | |
| バイアルインサート | アジレント | 5183-2088 |
参考文献
- The Lancet, Diabetes Endocrinology. Childhood obesity: a growing pandemic. The Lancet. Diabetes & Endocrinology. 10 (1), 1(2022).
- Gonzalez-Muniesa, P., et al. Obesity. Nature Reviews Disease Primers. 3, 17034(2017).
- Müller, T. D., Blüher, M., Tschöp, M. H., DiMarchi, R. D. Anti-obesity drug discovery: advances and challenges. Nature Reviews Drug Discovery. 21 (3), 201-223 (2021).
- Virtue, S., Vidal-Puig, A. GTTs and ITTs in mice: simple tests, complex answers. Nature Metabolism. 3 (7), 883-886 (2021).
- Müller, T. D., Klingenspor, M., Tschöp, M. H. Revisiting energy expenditure: how to correct mouse metabolic rate for body mass. Nature Metabolism. 3 (9), 1134-1136 (2021).
- Virtue, S., Lelliott, C. J., Vidal-Puig, A. What is the most appropriate covariate in ANCOVA when analysing metabolic rate. Nature Metabolism. 3 (12), 1585(2021).
- Hellerstein, M. K. De novo lipogenesis in humans: metabolic and regulatory aspects. European Journal of Clinical Nutrition. 53 Suppl 1, S53-S65 (1999).
- Zhao, S., et al. Dietary fructose feeds hepatic lipogenesis via microbiota-derived acetate. Nature. 579 (7800), 586-591 (2020).
- Wallace, M., et al. Enzyme promiscuity drives branched-chain fatty acid synthesis in adipose tissues. Nature Chemical Biology. 14 (11), 1021-1031 (2018).
- Zhao, S., et al. ATP-citrate lyase controls a glucose-to-acetate metabolic switch. Cell Reports. 17 (4), 1037-1052 (2016).
- Green, C. R., et al. Branched-chain amino acid catabolism fuels adipocyte differentiation and lipogenesis. Nature Chemical Biology. 12 (1), 15-21 (2016).
- Zhang, Z., et al. Serine catabolism generates liver NADPH and supports hepatic lipogenesis. Nature Metabolism. 3 (12), 1608-1620 (2021).
- Chirala, S. S., et al. Fatty acid synthesis is essential in embryonic development: fatty acid synthase null mutants and most of the heterozygotes die in utero. Proceedings of the National Academy of Sciences. 100 (11), 6358-6363 (2003).
- Icard, P., et al. ATP citrate lyase: A central metabolic enzyme in cancer. Cancer Letters. 471, 125-134 (2020).
- Fhu, C. W., Ali, A. Fatty acid synthase: an emerging target in cancer. Molecules. 25 (17), 3935(2020).
- Lawitz, E. J., et al. Acetyl-CoA carboxylase inhibitor GS-0976 for 12 weeks reduces hepatic de novo lipogenesis and steatosis in patients with nonalcoholic steatohepatitis. Clinical Gastroenterology and Hepatology. 16 (12), 1983e3-1991e3 (2018).
- Smith, G. I., et al. Insulin resistance drives hepatic de novo lipogenesis in nonalcoholic fatty liver disease. The Journal of Clinical Investigation. 130 (3), 1453-1460 (2020).
- Imamura, F., et al. Fatty acids in the de novo lipogenesis pathway and incidence of type 2 diabetes: A pooled analysis of prospective cohort studies. PLoS Medicine. 17 (6), e1003102(2020).
- Lai, H. T. M., et al. Serial plasma phospholipid fatty acids in the de novo lipogenesis pathway and total mortality, cause-specific mortality, and cardiovascular diseases in the cardiovascular health study. Journal of the American Heart Association. 8 (22), e012881(2019).
- Ference, B. A., et al. Mendelian randomization study of ACLY and cardiovascular disease. The New England Journal of Medicine. 380 (11), 1033-1042 (2019).
- Herman, M. A., et al. A novel ChREBP isoform in adipose tissue regulates systemic glucose metabolism. Nature. 484 (7394), 333-338 (2012).
- Sanchez-Gurmaches, J., et al. Brown fat AKT2 Is a cold-induced kinase that stimulates ChREBP-mediated de novo lipogenesis to optimize fuel storage and thermogenesis. Cell Metabolism. 27 (1), 195e6-209e6 (2018).
- Wang, X., et al. Nuclear protein that binds sterol regulatory element of low density lipoprotein receptor promoter. II. Purification and characterization. The Journal of Biological Chemistry. 268 (19), 14497-14504 (1993).
- Briggs, M. R., Yokoyama, C., Wang, X., Brown, M. S., Goldstein, J. L. Nuclear protein that binds sterol regulatory element of low density lipoprotein receptor promoter. I. Identification of the protein and delineation of its target nucleotide sequence. The Journal of Biological Chemistry. 268 (19), 14490-14496 (1993).
- Yokoyama, C., et al. SREBP-1, a basic-helix-loop-helix-leucine zipper protein that controls transcription of the low density lipoprotein receptor gene. Cell. 75 (1), 187-197 (1993).
- Chen, G., Liang, G., Ou, J., Goldstein, J. L., Brown, M. S. Central role for liver X receptor in insulin-mediated activation of Srebp-1c transcription and stimulation of fatty acid synthesis in liver. Proceedings of the National Academy of Sciences. 101 (31), 11245-11250 (2004).
- Denechaud, P. D., et al. ChREBP, but not LXRs, is required for the induction of glucose-regulated genes in mouse liver. The Journal of Clinical Investigation. 118 (3), 956-964 (2008).
- Crewe, C., et al. SREBP-regulated adipocyte lipogenesis is dependent on substrate availability and redox modulation of mTORC1. JCI Insight. 5 (15), e129397(2019).
- Batchuluun, B., Pinkosky, S. L., Steinberg, G. R. Lipogenesis inhibitors: therapeutic opportunities and challenges. Nature Reviews Drug Discovery. 21 (4), 283-305 (2022).
- Wallace, M., Metallo, C. M. Tracing insights into de novo lipogenesis in liver and adipose tissues. Seminars in Cell & Developmental Biology. 108, 65-71 (2020).
- Lee, W. N., et al. In vivo measurement of fatty acids and cholesterol synthesis using D2O and mass isotopomer analysis. The American Journal of Physiology. 266 (5 Pt 1), E699-E708 (1994).
- Yao, C. H., Liu, G. Y., Yang, K., Gross, R. W., Patti, G. J. Inaccurate quantitation of palmitate in metabolomics and isotope tracer studies due to plastics. Metabolomics. 12, 143(2016).
- Hiller, K., et al. MetaboliteDetector: comprehensive analysis tool for targeted and nontargeted GC/MS based metabolome analysis. Analytical Chemistry. 81 (9), 3429-3439 (2009).
- Fernandez, C. A., Des Rosiers, C., Previs, S. F., David, F., Brunengraber, H. Correction of 13C mass isotopomer distributions for natural stable isotope abundance. Journal of Mass Spectrometry. 31 (3), 255-262 (1996).
- Midani, F. S., Wynn, M. L., Schnell, S. The importance of accurately correcting for the natural abundance of stable isotopes. Analytical Biochemistry. 520, 27-43 (2017).
- Trefely, S., Ashwell, P., Snyder, N. W. FluxFix: automatic isotopologue normalization for metabolic tracer analysis. BMC Bioinformatics. 17 (1), 485(2016).
- Jeong, H., et al. Correcting for naturally occurring mass isotopologue abundances in stable-isotope tracing experiments with PolyMID. Metabolites. 11 (5), 310(2021).
- Millard, P., et al. IsoCor: isotope correction for high-resolution MS labeling experiments. Bioinformatics. 35 (21), 4484-4487 (2019).
- Brunengraber, D. Z., et al. Influence of diet on the modeling of adipose tissue triglycerides during growth. American Journal of Physiology. Endocrinology and Metabolsim. 285 (4), E917-E925 (2003).
- Svensson, R. U., et al. Inhibition of acetyl-CoA carboxylase suppresses fatty acid synthesis and tumor growth of non-small-cell lung cancer in preclinical models. Nature Medicine. 22 (10), 1108-1119 (2016).
- Hellerstein, M. K., Neese, R. A. Mass isotopomer distribution analysis: a technique for measuring biosynthesis and turnover of polymers. The American Journal of Physiology. 263 (5 Pt 1), E988-E1001 (1992).
- Hellerstein, M. K., Neese, R. A. Mass isotopomer distribution analysis at eight years: theoretical, analytic, and experimental considerations. The American Journal of Physiology. 276 (6), E1146-E1170 (1999).
- Kelleher, J. K., Masterson, T. M. Model equations for condensation biosynthesis using stable isotopes and radioisotopes. The American Journal of Physiology. 262 (1 Pt 1), E118-E125 (1992).
- Kelleher, J. K., Nickol, G. B. Isotopomer spectral analysis: utilizing nonlinear models in isotopic flux studies. Methods in Enzymology. 561, 303-330 (2015).
- Argus, J. P., et al. Development and application of FASA, a model for quantifying fatty acid metabolism using stable isotope labeling. Cell Reports. 25 (10), 2919.e8-2934.e8 (2018).
- Guilherme, A., et al. Control of adipocyte thermogenesis and lipogenesis through β3-adrenergic and thyroid hormone signal integration. Cell Reports. 31 (5), 107598(2020).
- Guilherme, A., et al. Neuronal modulation of brown adipose activity through perturbation of white adipocyte lipogenesis. Molecular Metabolism. 16, 116-125 (2018).
- Guilherme, A., et al. Adipocyte lipid synthesis coupled to neuronal control of thermogenic programming. Molecular Metabolism. 6 (8), 781-796 (2017).
- Lodhi, I. J., et al. Inhibiting adipose tissue lipogenesis reprograms thermogenesis and PPARgamma activation to decrease diet-induced obesity. Cell Metabolism. 16 (2), 189-201 (2012).
- McCormack, J. G., Denton, R. M. Evidence that fatty acid synthesis in the interscapular brown adipose tissue of cold-adapted rats is increased in vivo by insulin by mechanisms involving parallel activation of pyruvate dehydrogenase and acetyl-coenzyme A carboxylase. The Biochemistry Journal. 166 (3), 627-630 (1977).
- Trayhurn, P. Fatty acid synthesis in vivo in brown adipose tissue, liver and white adipose tissue of the cold-acclimated rat. FEBS Letters. 104 (1), 13-16 (1979).
- Negron, S. G., Ercan-Sencicek, A. G., Freed, J., Walters, M., Lin, Z. Both proliferation and lipogenesis of brown adipocytes contribute to postnatal brown adipose tissue growth in mice. Science Reports. 10 (1), 20335(2020).
- Schlein, C., et al. Endogenous fatty acid synthesis drives brown adipose tissue involution. Cell Reports. 34 (2), 108624(2021).
- Mottillo, E. P., et al. Coupling of lipolysis and de novo lipogenesis in brown, beige, and white adipose tissues during chronic beta3-adrenergic receptor activation. Journal of Lipid Research. 55 (11), 2276-2286 (2014).
- Adlanmerini, M., et al. Circadian lipid synthesis in brown fat maintains murine body temperature during chronic cold. Proceedings of the National Academy of Sciences. 116 (37), 18691-18699 (2019).
- Yu, X. X., Lewin, D. A., Forrest, W., Adams, S. H. Cold elicits the simultaneous induction of fatty acid synthesis and beta-oxidation in murine brown adipose tissue: prediction from differential gene expression and confirmation in vivo. FASEB Journal. 16 (2), 155-168 (2002).
- Kushner, D. J., Baker, A., Dunstall, T. G. Pharmacological uses and perspectives of heavy water and deuterated compounds. Canadian Journal of Physiology and Pharmacology. 77 (2), 79-88 (1999).
- Diraison, F., Pachiaudi, C., Beylot, M. Measuring lipogenesis and cholesterol synthesis in humans with deuterated water: use of simple gas chromatographic/mass spectrometric techniques. Journal of Mass Spectrometry. 32 (1), 81-86 (1997).
- Yang, D., et al. Assay of low deuterium enrichment of water by isotopic exchange with [U-13C3]acetone and gas chromatography-mass spectrometry. Analytical Biochemistry. 258 (2), 315-321 (1998).
- Fu, X., et al. Measurement of lipogenic flux by deuterium resolved mass spectrometry. Nature Communications. 12 (1), 3756(2021).
- Shah, V., Herath, K., Previs, S. F., Hubbard, B. K., Roddy, T. P. Headspace analyses of acetone: a rapid method for measuring the 2H-labeling of water. Analytical Biochemistry. 404 (2), 235-237 (2010).
- Argus, J. P., Yu, A. K., Wang, E. S., Williams, K. J., Bensinger, S. J. An optimized method for measuring fatty acids and cholesterol in stable isotope-labeled cells. Journal of Lipid Research. 58 (2), 460-468 (2017).
- Belew, G. D., Jones, J. G. De novo lipogenesis in non-alcoholic fatty liver disease: Quantification with stable isotope tracers. European Journal of Clinical Investigation. 52 (3), e13733(2022).
- Zhang, Z., Chen, L., Liu, L., Su, X., Rabinowitz, J. D. Chemical basis for deuterium labeling of fat and NADPH. Journal of the American Chemical Society. 139 (41), 14368-14371 (2017).
- Belew, G. D., et al. Transfer of glucose hydrogens via acetyl-CoA, malonyl-CoA, and NADPH to fatty acids during de novo lipogenesis. Journal of Lipid Research. 60 (12), 2050-2056 (2019).
- Diraison, F., Pachiaudi, C., Beylot, M. In vivo measurement of plasma cholesterol and fatty acid synthesis with deuterated water: determination of the average number of deuterium atoms incorporated. Metabolism. 45 (7), 817-821 (1996).
- Ajie, H. O., et al. In vivo study of the biosynthesis of long-chain fatty acids using deuterated water. The American Journal of Physiology. 269 (2 Pt 1), E247-E252 (1995).
- Schloerb, P. R., Friis-Hansen, B. J., Edelman, I. S., Solomon, A. K., Moore, F. D. The measurement of total body water in the human subject by deuterium oxide dilution; with a consideration of the dynamics of deuterium distribution. The Journal of Clinical Investigation. 29 (10), 1296-1310 (1950).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
