モデル生物 Exaiptasia diaphana のヒストンマークH3K4me3に対するクロマチン免疫沈降(X-ChIP)アッセイが提示されます。アッセイの特異性と有効性は、定量的PCRと次世代シーケンシングによって確認されます。このプロトコルにより、イソギンチャク E.diaphanaのタンパク質-DNA相互作用の研究を増やすことができます。
方法論記事
クニダリアンモデル系Exaiptasia diaphanaにおけるクロマチン免疫沈降
* These authors contributed equally
この記事について
サマリー
要約
ヒストン翻訳後修飾(PTM)およびその他のエピジェネティックな修飾は、転写機構に対する遺伝子のクロマチンアクセシビリティを調節し、環境刺激に対する生物の応答能力に影響を与えます。クロマチン免疫沈降とハイスループットシーケンシング(ChIP-seq)の組み合わせは、エピジェネティクスおよび遺伝子調節の分野でタンパク質-DNA相互作用を同定し、マッピングするために広く利用されています。しかし、刺胞動物のエピジェネティクスの分野は、共生イソギンチャク Exaiptasia diaphanaのようなモデル生物のユニークな特徴が一因であり、その高い含水率と粘液量が分子法を阻害するなど、適用可能なプロトコルの欠如によって妨げられています。ここでは、 E. diaphana 遺伝子制御におけるタンパク質-DNA 相互作用の研究を容易にする特殊な ChIP 手順を示します。架橋およびクロマチン抽出ステップは、効率的な免疫沈降のために最適化され、その後、ヒストンマークH3K4me3に対する抗体を用いてChIPを行うことでバリデーションされました。その後、定量的PCRを用いていくつかの恒常的に活性化された遺伝子座周辺のH3K4me3の相対占有率を測定し、ゲノムワイドスケール解析のための次世代シーケンシングにより、ChIPアッセイの特異性と有効性を確認しました。共生イソギンチャクE . diaphana に最適化されたこのChIPプロトコルは、サンゴなどの共生刺胞動物に影響を与える環境変化に対する生物の応答に関与するタンパク質-DNA相互作用の研究を容易にします。
概要
気候変動に関する政府間パネル(IPCC)による2022年の報告書は、意識の高まりと緩和努力にもかかわらず、ますます激しく頻繁な海洋熱波により、サンゴ礁が今後数十年以内に大規模な白化と大量死亡のリスクにさらされていることを強調しています1。サンゴ礁の保全と回復の取り組みに情報を提供するために、環境条件の変化が底生刺胞動物に及ぼす現在および予測される影響を複数の生物学的レベルで調査し、応答と回復力の根本的なメカニズムを理解しています2。
この課題に対応するためには、底生刺胞動物に適用可能な調査ツールの利用可能性が重要であり、これらのツールの開発には、他の分野で確立された知識と技術を海洋生物に移転するための積極的な努力が必要です3。多くのサンゴ種を扱う際の障害は、イソギンチャクExaiptasia diaphana(一般にAiptasiaと呼ばれる)4などのモデルシステムを使用することで部分的に軽減されます。これらの急速に成長し、通性共生性のイソギンチャクは、実験室での飼育が比較的容易で、有性生殖と無性生殖の両方で、炭酸カルシウムの骨格を欠いています5。E. diaphanaのオープンアクセスリファレンスゲノム5は、シーケンシングを必要とするエピジェネティックな方法の使用を容易にします。しかし、水分含有量が高いこと、粘液が産生されること、個体当たりの組織量が少ないことなどの特徴は、複製可能なプロトコルの確立に対する課題であり、したがって、E. diaphana や同様の特徴を持つ他の刺胞動物のエピジェネティックな研究を抑制しています。
エピジェネティックな修飾は、クロマチン関連プロセスを調節することにより、生物のゲノムヌクレオチド配列を変更することなく表現型を変更することができます6。クニダリアンのエピジェネティックな制御は、主に進化の歴史と発達の文脈で研究されています7,8,9,10、共生の確立と維持11,12,13、および環境変化への応答14,15の文脈で研究されています.具体的には、温暖化13や海洋酸性化16などの環境条件の変化に応じて、ほとんどの場合、シトシン塩基へのメチル基の付加を伴うDNAメチル化のパターンの変動が観察されている。DNAメチル化パターンは世代間で遺伝することも示されており、環境ストレス要因に対するサンゴの順応におけるエピジェネティクスの役割を強調しています17。DNAメチル化と比較して、刺胞動物におけるノンコーディングRNA11,18,19、転写因子9,10、ヒストン翻訳後修飾(PTM)など、他の重要なエピジェネティックな調節因子に関する研究は比較的少ないです20。DNA関連タンパク質の研究は、利用可能な方法が研究生物の参照ゲノムへのアクセスを必要とし、サンプルサイズが大きく、特異性が高い抗体が必要であるため高価であるため、特に要求が厳しいです3。特定のヒストン残基にPTMを形成する化学基は多種多様であるため、刺胞動物のクロマチン修飾ランドスケープを理解することは、特に差し迫った環境ストレスの状況下で、依然として大きな課題です。
この研究の目的は、サンゴモデル E.diaphana (Bodegaらによるオリジナルプロトコル21)に最適化されたクロマチン免疫沈降(ChIP)プロトコルを提示することにより、刺胞動物におけるヒストンPTM、ヒストン変異体、およびその他のクロマチン関連タンパク質の研究を進めることです。ChIPは、定量PCRと組み合わせて遺伝子座特異的なタンパク質-DNA相互作用を特徴付けたり、次世代シーケンシング(NGS)と組み合わせてこれらの相互作用をゲノム全体にマッピングすることができます。一般に、タンパク質とDNAは可逆的に架橋されているため、目的のタンパク質(POI)は in vivoで結合しているのと同じ遺伝子座に結合したままです。哺乳類モデルシステムで広く使用されている一般的な架橋法は、通常、室温で15分以下に保たれていますが、架橋法は、ホルムアルデヒドが E.diaphana によって生成された粘液をより効果的に浸透できるように最適化されました。次に、組織を液体窒素で瞬間凍結し、均質化し、溶解して細胞から核を抽出します。これらのステップでの材料の損失は、1つの溶解バッファーのみを使用し、その後直接超音波処理に移り、クロマチンを~300 bpの長さのフラグメントに断片化することで回避できます。これらのフラグメントは、POIに特異的な抗体とPTMレベルの精度でインキュベートされます。抗体-タンパク質-DNA免疫複合体は、一次抗体に結合する磁気ビーズを使用して沈殿するため、POIに関連するDNAセグメントのみが選択されます。クロスリンク反転と沈殿物のクリーンアップ後、得られたDNAセグメントは、セグメントを参照ゲノムにマッピングするためのシーケンシングのためのqPCRまたはDNAライブラリ構築に使用でき、したがって、POIが関連付けられている遺伝子座を同定できます。各ステップの考慮事項の詳細については、Jordán-PlaおよびVisa22をご覧ください。
プロトコル
手順の概要を 図 1 に示します。ChIP-Seqのデータは、NCBI Sequence Read Archive (SRA)のBioProject code PRJNA931730 (https://www.ncbi.nlm.nih.gov/bioproject/PRJNA931730)で公開されています。
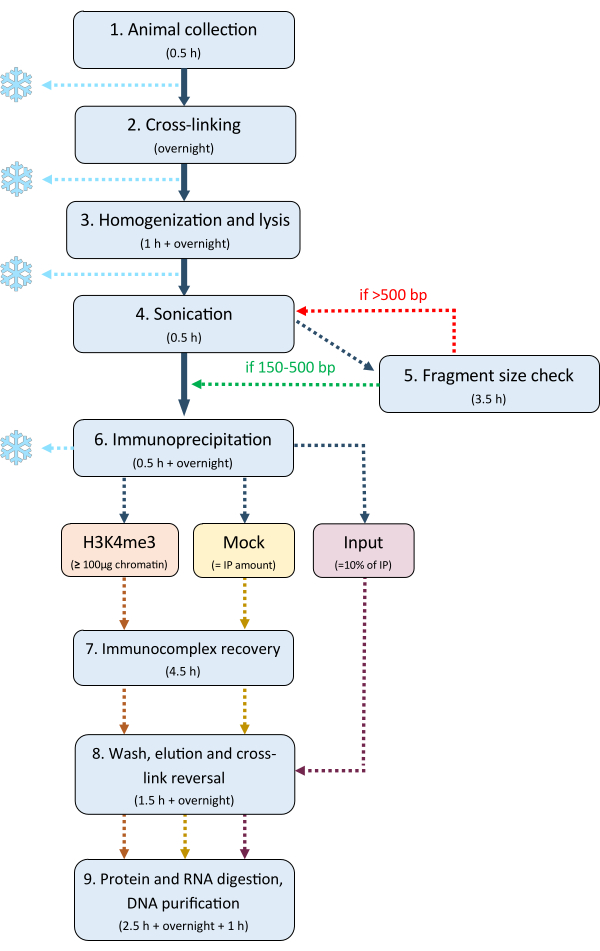
図1:ChIPプロトコルのワークフロー。 ChIPプロトコルのワークフローの概要(各ステップの推定所要時間やオプションの停止ポイントなど)。 この図の拡大版を表示するには、ここをクリックしてください。
1.動物のコレクション
- プラスチック製のヘラを使用して、~5 mmのペダル径以上の20匹の共生 E.diaphana (CC7株)を水槽の壁から静かに取り外し、15mLのチューブにピペットで移します。
注:アネモネの数は、そのサイズと目的のIPの数に基づいて最適化することをお勧めします。アネモネは、液体窒素(LN2)で急速凍結し、ChIPを開始する前に少なくとも1ヶ月間-80°Cで保存することができます。それ以外の場合は、イソギンチャクが15mLチューブの壁に沈殿するのを防ぐために、すぐに進めることをお勧めします。
2. クロスリンク
- 0.5% 架橋バッファー 10 mL を調製します (表 1)。
- イソギンチャクをチューブの底に沈殿させるか、遠心分離機で室温で~3,500 x g まで数秒間回転させた後、真空ポンプで余分な海水を取り除きます。1x DPBSで吊り下げて洗浄し、DPBSを取り外します。
- ピンセットまたはプラスチックヘラを使用して、イソギンチャクを0.5%架橋バッファーに移し、余分なバッファーの移動を避けます。ローテーター上で12rpm、4°Cで1時間インキュベートします。
- その間に、10 mLの1%架橋緩衝液を調製します(表1)。
- ステップ2.2と同様に、0.5%バッファーを取り外し、チューブに1%架橋バッファーを補充します。ローテーター上で12 rpm、4°Cで一晩インキュベートします。
注意: チューブを静かに反転させて、すべてのイソギンチャクが吊り下げられ、互いに付着していないことを確認します。 - 翌日、2 Mグリシンストックから10 mLのクエンチングバッファーを調製します(表1)。
- ステップ2.2のように1%架橋バッファーを取り出し、クエンチングバッファーにイソギンチャクを懸濁して架橋反応を停止します。ローテーター上で12rpm、4°Cで20分間インキュベートします。
- ステップ2.2のようにクエンチングバッファーを取り外し、アネモネをDPBSで2回洗浄します。複数のサンプルを取り扱う場合は、イソギンチャクをDPBSに懸濁させたまま、サンプルごとにステップ3.2〜3.4を作業します。
注:この時点でサンプルを急速凍結し、-80°Cで最大1か月間保存することで、実験を一時停止できます。凍結して保管する前に、チューブをペーパーティッシュに空にして、余分なDPBSを取り除きます。
表1:ChIPプロトコルで使用される溶液とバッファー。 成分とそれぞれの濃度は、プロトコールで使用される各バッファーについてリストされています。 この表をダウンロードするには、ここをクリックしてください。
3. 均質化と溶解
- 溶解バッファー(表1)を当日新鮮に調製し(サンプルあたり2 mL)、100倍プロテアーゼ阻害剤カクテル(PIC、 材料表を参照)を最終濃度1倍まで加えます。磁器の乳鉢と乳棒をエタノールで洗浄し、LN2ですべてのツールを冷却し始めます。
- DPBSをデカントし、イソギンチャクを紙ティッシュに空にして、できるだけ多くの液体を取り除きます。LN2をモルタルに注ぎ、ピンセットを使用してイソギンチャクを移します。
- 乳棒を使用して、組織を注意深く分割することから始め、次にサンプルが微粉末になるまで粉砕します。霜取りを防ぐために、必要に応じてLN2を補充し続けます。
- 2 mLの溶解バッファーを氷上の5 mLチューブに入れます。スパチュラを使用してサンプルを採取し、溶解バッファーに移して、サンプルがバッファーに溶解することを確認します。サンプルを氷の上に1分間置いてから、反転させて混合します。他のすべてのサンプルについて手順3.2〜3.4を繰り返し、サンプル間ですべての機器をエタノールで徹底的に洗浄します。
注:この手順では、サンプルの損失をできるだけ最小限に抑えます。 - Dounce Tissue Grinder( 材料の表を参照)を溶解バッファーで洗浄し、サンプルを移し、きつい乳棒で20〜30回ダウンスします。
- サンプルをチューブに戻し、ティッシュグラインダーをエタノールと蒸留水で洗浄し、すべてのサンプルに対して手順3.5を繰り返します。
- ローテーター上でサンプルを~14 rpm、4°Cで一晩インキュベートします。
- トリパンブルーを使用して、10 μLのサンプルと1:1の比率で混合することにより、顕微鏡下(倍率20倍)で溶解が成功するかどうかを確認します。色素が核に浸透すれば、溶解は成功します。
注:この時点で、サンプルを-80°Cで最大2か月間保存することにより、実験を一時停止できます。
4.超音波処理
- 遠心分離機でサンプルを~2,000 x g で室温で3〜5秒間短時間遠心し、キャップと壁から液体を取り除きます。
- ライセートを25Gの針と1mLのシリンジに10回通し、凝集体を分解します。
- 超音波処理中にサンプルをできるだけ冷たく保つために、サンプルを氷浴に入れます。
- 超音波処理針をエタノールで洗浄します。サンプルをソニケーター( 材料の表を参照)に、針をチューブの底から1 cm上に置き、壁に触れないようにします。
- デューティサイクルを50%に、出力を0に設定します。ソニケーターを起動し、サンプル中に泡が生成されていないことを確認します(そうでない場合は、停止して針の位置を再調整します)。出力電力をゆっくりと2に増やし、次に2分間超音波処理します。
- ソニケーターのスイッチを切り、出力電力を0に戻し、サンプルを休ませて2分間冷まします。
- サンプルごとに合計4つの超音波処理と冷却セットについて、手順4.5〜4.6を繰り返します。サンプルを取り出して氷上に保管し、他のサンプルで繰り返します。ソニケーター針をエタノールで洗浄し、サンプル間と最後に洗浄します。
注:超音波処理強度とサイクル数は、150〜500bpのサイズの断片を生成しながら、最低の超音波処理強度に到達するために最適化する必要があるかもしれません。
5. DNA抽出とフラグメントサイズチェック
注:IPに進む前に、フラグメントのサイズを確認する必要があります。フラグメントが大きすぎる場合(>500 bp)、ソニケーションサイクルの数および/またはソニケーション強度を増やす必要があります。それらが小さすぎる(<150 bp)場合は、超音波処理時間および/または強度を減らす必要があります。
- サンプルを氷上に置いたまま、サンプルのサブセットでフラグメントサイズチェックを実行します。100 μLのサブセットを新しい1.5 mLチューブに移します。
- 8 μLのRNaseカクテル( 材料表を参照)を加え、700 rpmで振とうしながら42°Cで30分間インキュベートします。
- 2 μL のプロテイナーゼ K を添加します ( 材料の表を参照)。700 rpmで振とうしながら、55°Cで1時間インキュベートします。
- サンプルを700rpmで振とうしながら、サンプルを95°Cで少なくとも1時間インキュベートすることにより、サンプルを逆架橋します。
- 1x TAEバッファーと0.01%エチジウムブロマイド( 材料表を参照)を含む1%アガロースゲルを調製するか、または別のゲル染色剤を調製します。
- 製造元の指示に従って、精製キットを使用してサンプルからDNAを抽出します( 材料の表を参照)。
- 抽出したDNAのフラグメンテーションサイズを確認するには、アガロースゲルにラダーとサンプルをロードします。1 kbpラダー4 μLと6xパープルローディング色素1 μLを混合し、アガロースゲルの1ウェルに入れます。20 μLのDNAと4 μLの6x purple loading色素を混合して最終濃度を1倍にし、ウェルにピペットで移します。すべてのサンプルについて繰り返します。
- ゲルを100 Vで約30分間泳動した後、ゲルをトレイにロードしてゲルイメージングシステムに入れ、各システムのソフトウェアの指示に従ってイメージングします( 材料の表を参照)。フラグメンテーションサイズ(平均で150〜500 bp)に基づいて、先に進むかどうかを決定します(図2)。
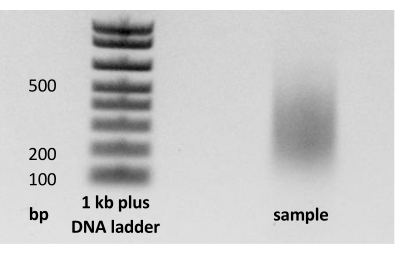
図 2: フラグメント サイズのチェック。 超音波処理に続いて、サンプルのサブセットを脱架橋し、精製し、クロマチンが150〜500 bpの断片サイズにせん断されたことを確認するためにアガロースゲル上で実行します 。
6. 免疫沈降(IP)
- ピペットを使用して、DNA抽出中に氷上に保持されたメインサンプルの量を確認します。Triton X-100を10%添加し、最終濃度を1%にします。
- サンプルを20,000 x g 、4°Cで10分間遠心し、ピペットを使用して上清をきれいなチューブに移します。
注:ここで実験を一時停止するには、サンプルを-80°Cで最大2か月間凍結します。次の IP ステップの詳細は、実験ごとに調整および最適化する必要があります。IPあたりの抗体の量を最適化する必要がある場合があります。 - 溶解バッファーをブランクとして使用して、利用可能なDNA濃度測定システムの指示に従ってクロマチン濃度を測定します( 材料の表を参照)。
- 計画しているサンプル量とIPの数に応じて、最終濃度のそれぞれ1%と1xに10%のTriton X-100と100x PIC( 材料の表を参照)を添加して、サンプルの総量を増やします。総量1,000 μLで100 μgのクロマチンを使用することをお勧めします。
- 各IPの容量を別々の低保持1.5 mLチューブに分配します( 材料の表を参照)。ChIP-qPCRの場合、モックコントロールとして、同量のサンプルを別の1.5 mLチューブに入れます。IPの体積の10%を入力制御として使用し、-20°Cで保存します。
- 4 μgの抗体(ここではH3K4me3抗体、 材料表を参照)を各IPに添加します。モックには何も追加しません。IP反応とモックをチューブローテーター上で12rpmおよび4°Cで一晩インキュベートします。
7. 磁気ビーズによる免疫複合体の回収
注意: 磁気ビーズの乾燥は常に避けてください。それらを液体で覆ったままにしておくか、できるだけ早く溶液を補充してください。常に次々とサンプルに取り組みます。
- 磁気ビーズ( 材料の表を参照)を静かに反転させて混ぜます。
- 当日新鮮なブロッキング溶液10mL(表1)を調製し、穏やかに混合します。
- ピペットチップの先端を切り取って直径を大きくし、50 μLの磁気ビーズを別々のチューブ(IPごとに1本、モック用に1本)に移します。
- 各チューブに1 mLのブロッキング溶液を加え、ローテーター上で12 rpm、4°Cで30分間インキュベートします。
- ビーズをブロッキング溶液に入れた磁気ラックに置き、分離を待ちます。その間、IP反応を2,000 x g で室温で3〜5秒間スピンダウンして、壁から残留物を除去します。
- ピペットを使用して、ブロッキング溶液の上清を取り除いて廃棄し、サンプルの1つまたはモックで壁からビーズを洗い流します。ミックスをそれぞれの低保持チューブに戻し、次のサンプルに移ります。
- ローテーター上ですべてのチューブを12 rpm、4°Cで3時間インキュベートします。
8. 洗浄、溶出、架橋反転
- 免疫複合体回収インキュベーション中に、洗浄バッファーとTE塩バッファー(表1)を調製します。
- インキュベーション後、IPとモックを磁気ラックに置き、磁石が分離するまで約10〜20秒待ちます。
- 上清を捨て、低塩分で1mLの洗浄バッファーを加えます。すべての反応を繰り返し、次にチューブを磁気ラックから取り外し、ビーズが懸濁するまで混合します。
- ローテーター上で12 rpm、4°Cで5分間インキュベートします。
- チューブをマグネティックラックに置き、低塩分で洗浄バッファーを取り出し、次に高塩分で1 mLの洗浄バッファーを加え、ステップ8.4のようにインキュベートします。
- 手順8.3〜8.5をもう一度繰り返し、低塩分と高塩分を交互に使用して合計4回の洗浄を行います。
注:高塩分を含む洗浄バッファーは非常に刺激が強いため、各洗浄ステップで正確に5分間のみ使用する必要があります。 - ピペットを使用して上清を取り除き、廃棄し、1 mLのTE塩緩衝液で洗浄します。もう一度繰り返します。2回目の洗浄後、チューブキャップからビーズを洗い流します。
- 洗浄中に溶出バッファー(表1)を調製します。2回目のTE塩バッファー洗浄液を廃棄した後、各反応液に210 μLの溶出バッファーを加えます。
- 磁気ビーズを懸濁し、700rpmで15分間振とうしながら65°Cで溶出します。
- 反応液を磁気ラックに置き、溶出液を回収して、新しい1.5 mLチューブに入れます。
- さらに 210 μL の溶出バッファーで溶出プロセスを繰り返し、溶出液を最初のバッチに添加すると、IP およびモックあたり 420 μL の最終溶出量が得られます。
- フリーザーからインプットを取り出し、溶出バッファーを総容量420μLまで加えます。
- すべての溶出液とインプット液を逆架橋するには、65 °C および 700 rpm で一晩インキュベートします。
9. タンパク質とRNAの消化とDNAの精製
- 溶出液に 420 μL の TE 塩バッファーを添加してインプットすることにより、SDS ( 材料表を参照) 濃度を 0.5% に希釈します。
- RNA消化には、10 μLのRNaseカクテル( 材料表を参照)を加え、42°C、700 rpmで30分間インキュベートします。
- タンパク質の消化には、8 μLのプロテイナーゼK( 材料表を参照)を全てに加え、55°C、700 rpmで1時間インキュベートします。
- DNA精製については、「Ren Lab ENCODE Tissue Fixation and Sonication Protocol for MicroChIP」23 に従って、いくつかの調整を加えてください。
- Phase Lockゲル( 材料表を参照)を使用して、ゲルをチューブの底まで20,000 x g で室温で1分間回転させてチューブを調製します。
- ドラフトの下に、1つのサンプルと同量のフェノール:クロロホルム:イソアミルアルコール(25:24:1)を各チューブに加えます。チューブを激しく振って、泡立つ白い層を形成するまで短時間渦巻きにします。
注意: 混合物は有毒で腐食性があり、健康に害を及ぼす可能性があります。 - 4°C、20,000 x gで10分間遠心します。水相が透明であることを確認してください。
- ピペットを使用して水相を新しいチューブに移します。サンプルごとに2本の新しいチューブが必要ですが、サンプルの量によって異なります。その場合は、サンプルの半分を最初のチューブから2番目のチューブに移します。
- 3 M 酢酸ナトリウム(NaAc、例:400 μL サンプルの場合は 40 μL)に容量の 1/10 を加え、5 mg/mL 直鎖アクリルアミド 10 μL を各サンプルに加え、反転させて混合します。
- 100%エタノールにサンプル量の2倍を加え(例:400 μLのサンプルの場合は800 μL)、激しく振とうします。ボルテックスはDNAを損傷する可能性があるため、ボルテックスしないでください。
- -20°Cで一晩、または-80°Cで30分間インキュベートします。
- 遠心分離機を4°Cに冷却し、サンプルを15,000 x g で30分間回転させてDNAをペレット化します。
- 慎重にデカントし、ペレットを1 mLの70% EtOHで洗浄します。4°Cで最大5分間回転します。
- 慎重にデカントしてから、再び数秒間回転させます。ピペットを使用してすべてのエタノールを取り除きます。少し残っている場合は、再度スピンするのに役立つ場合があります。
- ペレットを30μLのヌクレアーゼフリー水に再懸濁します( 材料の表を参照)。
注:サンプルごとに複数のチューブがある場合は、1つのペレットを30 μLに再懸濁し、次のチューブに移し、次のペレットを同じ30 μLに再懸濁します。
- DNA濃度を測定し、サンプルを-20°Cで保存します。
結果
上記のプロトコールに従って、ヒストン3リジン4(H3K4me3)のトリメチル化に関連するDNAを免疫沈降させた。ChIP-seqグレードの抗体は、以前にイソギンチャク Nematostella vectensis7 に使用されていましたが、ここでは E. diaphana 組織切片の免疫蛍光染色によって検証されました(図3)。DNA収量はインプット材料の量によって異なりますが、通常は約100 ng/μLでした。得られたDNA断片をシーケンシングとqPCR( 補足ファイル1のプライマーリスト)により解析しました。
シーケンシング深度 4,000 万リードでは、~1,760 万の一意にマッピングされたリードが得られました。品質チェックの後、生のリードをトリミングし、Bowtie24を使用してE.diaphanaゲノムにマッピングしました(材料の表を参照)。MACSを用いたChIP-Seqデータのモデルベース解析(資料表参照)により、合計19,107のピークが同定された25。H3K4me3では予想通り、ほとんどのピークが転写開始部位(TSS)付近にあり、TSSの両側、特に遺伝子本体に向かってピークカウント頻度が急激に減少しました(図4)。
シーケンシングデータから、TSSの周囲に高いピークを持つ3つの遺伝子を同定し、これらの遺伝子内の高いピークのいくつかの遺伝子座を標的とするようにqPCRプライマーを設計しました。qPCRデータは、インプットメソッドの割合を使用して正規化しました(図5)。H3K4me3 のインプットおよびモックコントロールに対する高い濃縮度が観察されました。インプットの割合は2.7%から10.7%の間で変動し、遺伝子間および同じ遺伝子内の異なる遺伝子座間で濃縮度の違いが観察されました。
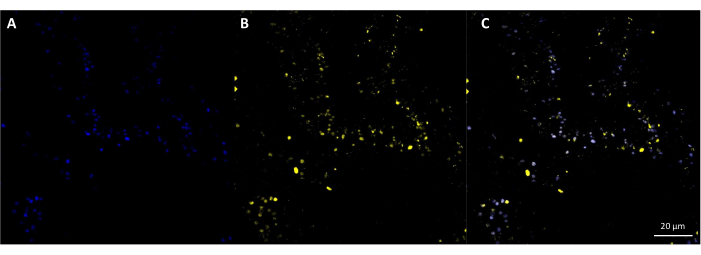
図3:H3K4me3の免疫蛍光染色。E. diaphana組織切片を、(A)青色のHoechst核酸染色剤および(B)H3K4me3に対する一次抗体に対する黄色の蛍光色素標識二次抗体で染色した。(C)原子核内での共局在を示すAとBの重なり。スケールバー = 20 μm。この図の拡大版を表示するには、ここをクリックしてください。
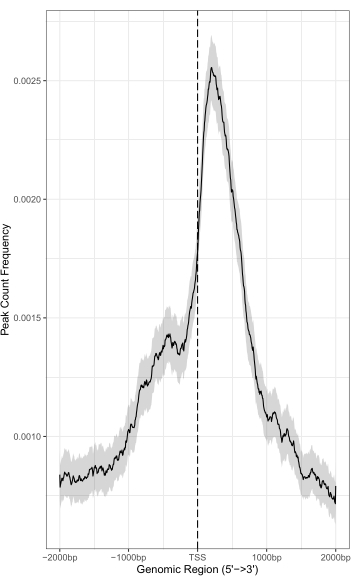
図4:転写開始部位付近のピークカウント頻度が高い。 転写開始部位(TSS)の周りの上流(-)と下流(+)2,000bpにわたるH3K4me3修飾のピークカウント頻度の分布。 この図の拡大版を表示するには、ここをクリックしてください。
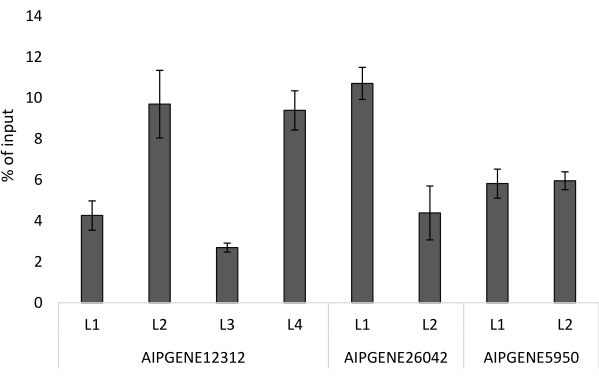
図5: Exaiptasia diaphanaにおけるH3K4me3 ChIP-qPCR。 結果は、入力に対する割合 (%) で表されます。各遺伝子(AIPGENE12312、AIPGENE26042、およびAIPGENE5950)の転写開始部位付近の遺伝子座をChIP-qPCRに選択しました。エラーバーは、反復間の標準偏差(n = 3)を示します。 この図の拡大版を表示するには、ここをクリックしてください。
補足ファイル1:qPCRに使用したプライマーのリスト。このファイルをダウンロードするには、ここをクリックしてください。
ディスカッション
上記のプロトコールに従って、得られたDNAをChIP-qPCRおよびChIP-Seqに成功裏に使用しました。H3K4me3については、以前に他の生物から報告されたものと同じ一般的なピークプロファイル26,27,28がここで得られ、ChIP-qPCRではTSS付近が最も高いピークと予想される部位で高い濃縮が見られました。ChIP-Seqデータにおけるマルチプルマッピングリードの数が比較的多いのは、PCRの重複が原因である可能性があります。DNAライブラリ調製プロトコルを変更してPCRの重複を減らすことで、一意にマッピングされたリードの量を増やすことができます。ChIP-qPCRデータにはいくつかの正規化方法があり、ここで紹介するインプット法の割合がより一般的に使用されています。この方法では、IP サンプルとモック サンプルが入力に直接正規化されますが、ChIP 中に入力が IP サンプルやモック サンプルとは異なる方法で処理されるため、エラーが発生する可能性があります。別のフォールドエンリッチメント法は、同じプライマーセットを使用してモックのシグナルに基づいてIPのシグナルを正規化し、シグナル対バックグラウンドの比率を与えます。ただし、モックサンプルの信号強度は大きく異なる場合があり、それがデータに大きな影響を与えます。ChIP-qPCRとデータ標準化の詳細については、Haring et al.29を参照してください。
一般的なChIPプロトコルと比較した上記の方法の主な調整点は、ヒストンタンパク質の約15分から一晩のインキュベーションまでの架橋時間がはるかに長いことです。この調整の主な目的は、固定ホルムアルデヒドが粘液層を通ってE.diaphanaのより深い組織に浸透するのを促進し、核内のタンパク質-DNA相互作用を維持することです。このステップの最適化は、超音波処理によるクロマチンのせん断が効果を失わないように、タンパク質-DNA相互作用を保存するための十分な架橋を確保するために重要です。SDSなどの洗剤を添加すると、超音波処理効率も向上させることができます29。さらに、ホルムアルデヒドとの長時間のインキュベーションにより、均質化ステップが容易になり、架橋ステップの前に均質化された新鮮または凍結のアネモネと比較して、より細かく均一に粉砕されたサンプルが得られることがわかりました。フラグメント長の推奨範囲は、100 bpから1,000 bp29,30の間で変化し、標的タンパク質によって異なる場合があります。過剰超音波処理はタンパク質を変性させ、したがってIP31に影響を与える可能性があるため、各ユーザーは、できるだけ少ない超音波処理力で目的のフラグメント長に到達するために超音波処理条件を最適化することが重要です。ChIPのもう一つの制限は、必要な材料の量であり、これは特にイソギンチャクのような比較的小さな生物に影響を及ぼします。この問題は、ステップ間のサンプルの損失を減らすことで解決されました。サンプルをホモジナイズした後、すぐに溶解したため、いくつかの一般的な核調製ステップが省略されました。20種類のイソギンチャクから得られたサンプルプールには、通常、3つのIPとモックコントロールとインプットコントロールの両方に十分なクロマチンが含まれていました。出発物質の量(すなわち、イソギンチャクの数)は、特に標的タンパク質を1つだけでChIPを行う場合、将来さらに減少する可能性があります。目的のダウンストリーム方法に応じて、コントロールを調整する必要があります。ChIP-qPCRの場合、追加のコントロール29を含むことを考慮すべきであるが、一方、ChIP-seqの場合、モックは入力コントロールを優先して省略することができる。
抗体の検証はこのプロトコールの範囲外であるため、ここでは簡単に触れただけですが、ChIPを実施する前の重要なステップです。特に、無脊椎動物種に市販の抗体を使用する場合、目的の標的に対する特異的抗体の利用可能性が制限となる可能性があります。最初のステップでは、 E. diaphana とゼブラフィッシュやマウスなどの他のモデル生物のH3 N末端尾部配列を比較し、高度に保存されていることを発見しました12。次に、抗体特異性を免疫蛍光法を用いて試験し、核酸と抗体のシグナルを共局在化させました。シーケンシングデータから得られたTSS周辺のH3K4me3のピークプロファイルは、抗体の特異性についてさらに確信を与えてくれます。
抗体特異性に関する別の考慮事項は、 E. diaphanaや他の多くのアントゾアンが細胞内で宿主とする共生渦鞭毛藻類との相互作用の可能性です。 Lingulodinium32 属および Symbiodinium33 属の渦鞭毛藻類におけるトランスクリプトーム解析により、コアヒストンH3およびいくつかのH3変異体を含むヒストンをコードする遺伝子が低発現レベルで発見されており、ヒストンコードの機能保存の程度は不明である34。MarinovとLynch34 は、渦鞭毛藻種内および渦鞭毛藻種間のH3変異体N末端尾部の配列保存を比較し、 Symbiodiniaceae 種は、特に隣接するアミノ酸とリジン4の一致を因子として考慮した場合に、尾部配列のリジン4の周囲に高い分岐を示しました。また、この領域は、 シロイヌナズナ、 ショウジョウバエ・メラノガスター、 Saccharomyces cerevisiaeなどの他のモデル種とは異なることも示されており、 これらはE. diaphana12の配列と一致しています。したがって、H3K4me3に対する抗体と渦鞭毛藻H3との意図しない相互作用のリスクは低いです。さらに、配列は E.diaphana ゲノムにのみアラインメントされており、qPCRプライマーは E.diaphana 配列に特異的であるべきであり、意図せずに沈殿した配列のろ過の追加層を提供します。
提示されたChIPプロトコルは、qPCRおよび次世代シーケンシングに十分なDNAを採取し、各ユーザーによる個別の最適化が必要になる可能性がありますが、おそらく共生と環境変化の文脈で、底生刺胞動物におけるタンパク質-DNA相互作用の研究を増やすための出発点を提供します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1 kb Plus DNA Ladder | Invitrogen | 10787018 | |
| 100% エタノール | |||
| 15 mL ファルコンチューブ | |||
| 16% ホルムアルデヒド溶液 (w/v)、メタノールフリー | Thermo scientific | 28906 | |
| 5 mL チューブ | |||
| 5PRIME Phase Lock チューブ | Quantabio | 2302820 | Phase lockゲル - 軽い |
| AGANIの針25 G | Terumo | AN*2516R1 | |
| Agarose | |||
| Bovine Serum Albumin | Sigma-Aldrich | A7030 | |
| Bowtie | open source, available from | ||
| https://bowtie-bio.sourceforge.net/index.shtml Branson sonifier 250 | Branson | Sonicator | |
| 遠心分離機 | Eppendorf | 5430 R | 15 mLおよび1.5 mLチューブ用ローター付き |
| ChIPグレード抗体(ここではポリクローナルH3K4me3抗体) | Diagenode | C15410003 | |
| Complete EDTAフリープロテアーゼ阻害剤 | ロシュ | 11873580001 | 100xストック用水2錠/mL カバー |
| ガラス | vwr | 48393 194 | |
| 使い捨てヘラ | vwr | 80081-188 | |
| DNA精製キット(ここではQIAGEN QIAquick PCR精製キット) | QIAGEN | 28104 | |
| Dounce tissue grinder | Wheaton | tight sptle | |
| Dulbecco's Phosphate Buffered Saline (DPBS) 1x | gibco | 14190-094 | |
| Dynabeads Protein G | Thermo Fisher Scientific | 10004D | |
| EDTA | Sigma-Aldrich | 3609 | |
| EGTA | Sigma-Aldrich | 324626 | |
| 電気泳動システム | |||
| 臭化 | |||
| FASTQC v0.11.9 | ソフトウェア | ||
| Gel Doc EZ ドキュメンテーションシステム | Bio-Rad | 1708270 | ゲルイメージングシステム |
| Glycine | Sigma-Aldrich | 50046 | |
| Injekt-F ツベルクリンシリンジ 1 mL | B. Braun | 9166017V | |
| リニアアクリルアミド (5 mg/mL) | Invitrogen | AM9520 | |
| ローリテンション 1.5 mL チューブ | |||
| 用 | 磁気分離ラック | ||
| 顕微鏡 | |||
| 顕微鏡スライド | |||
| モデルベース Analysis of ChIP-Seq (MACS) | オープンソース | ||
| Mortar and pestle, porcelain | |||
| NanoDrop 2000c spectrophotometer | Thermo scientific | ND-2000C | |
| N-lauroylsarcosine | Sigma-Aldrich | 61739 | |
| ヌクレアーゼフリー水 | |||
| パスツールピペット | |||
| フェノール:クロロホルム:イソアミルアルコール混合物 (25:24:1) | Sigma-Aldrich | 77617 | |
| プロテイナーゼ K (20 mg/mL) | Ambion | AM2546 | |
| パープルローディング染料 6x | New England BioLabs | B7024S | |
| Qubit 2.0 Fluorometer | Invitrogen | ||
| RNase Cocktail Enzyme Mix | Invitrogen | AM2286 | RNase A = 500 U/mL, RNase T1 = 20000 U/mL |
| 酢酸ナトリウム | Sigma-Aldrich | S2889 | |
| 塩化ナトリウム | Sigma-Aldrich | S9888 | |
| デオキシコール酸ナトリウム | Sigma-Aldrich | 30970 | |
| SYBR Safe DNA Gel Stain | Invitrogen | S33102 | |
| TAE バッファー | |||
| サーモミキサー | Eppendorf | 5384000012 | |
| Tris base | Sigma-Aldrich | 10708976001 | |
| Triton X-100 solution | Sigma-Aldrich | 93443 | |
| Trypan Blue Stain (0.4%) | Gibco | 15250-061 | 危険:癌を引き起こす可能性があります。生殖能力または胎児に損傷を与える疑いがある |
| チューブローテーター SB3 | Stuart | ||
| UltraPure SDS Solution, 10% | Invitrogen | 15553027 | |
| Vacuum pump |
参考文献
- Pörtner, H. -O. 2022: Summary for Policymakers. Climate Change 2022: Impacts, Adaptation, and Vulnerability. Contribution of Working Group II to the Sixth Assessment Report of the Intergovernmental Panel on Climate Change. , Cambridge University Press. Cambridge, UK. (2022).
- Cziesielski, M. J., Schmidt-Roach, S., Aranda, M. The past, present, and future of coral heat stress studies. Ecology and Evolution. 9 (17), 10055-10066 (2019).
- Eirin-Lopez, J., Putnam, H. Marine environmental epigenetics. Annual Review of Marine Science. 11, 335-368 (2021).
- Rädecker, N. Using Aiptasia as a model to study metabolic interactions in cnidarian-Symbiodinium symbioses. Frontiers in Physiology. 9 (214), (2018).
- Baumgarten, S. The genome of Aiptasia, a sea anemone model for coral symbiosis. PNAS. 112 (38), 11893-11898 (2015).
- Strahl, B. D., Allis, C. D. The language of covalent histone modifications. Nature. 403 (6765), 41-45 (2000).
- Schwaiger, M. Evolutionary conservation of the eumetazoan gene regulatory landscape. Genome Research. 24 (4), 639-650 (2014).
- Zhang, X., Jacobs, D. A broad survey of gene body and repeat methylation in cnidaria reveals a complex evolutionary history. Genome Biology and Evolution. 14 (2), evab284(2022).
- Schwaiger, M. An ancestral Wnt-Brachyury feedback loop in axial patterning and recruitment of mesoderm-determining target genes. Nature Ecology & Evolution. 6 (12), 1921-1939 (2022).
- Ozment, E., et al. Cnidarian hair cell development illuminates an ancient role for the class IV POU transcription factor in defining mechanoreceptor identity. Elife. 10, e74336(2021).
- Baumgarten, S., et al. Evidence for miRNA-mediated modulation of the host transcriptome in cnidarian-dinoflagellate symbiosis. Molecular Ecology. 27 (2), 403-418 (2018).
- Li, Y. DNA methylation regulates transcriptional homeostasis of algal endosymbiosis in the coral model Aiptasia. Science Advances. 4 (8), eaat2142(2018).
- Rodriguez-Casariego, J. A., Cunning, R., Baker, A. C., Eirin-Lopez, J. M. Symbiont shuffling induces differential DNA methylation responses to thermal stress in the coral Montastraea cavernosa. Molecular Ecology. 31 (2), 588-602 (2021).
- Putnam, H. M., Davidson, J. M., Gates, R. D. Ocean acidification influences host DNA methylation and phenotypic plasticity in environmentally susceptible corals. Evolutionary Applications. 9 (9), 1165-1178 (2016).
- Weizman, E., Levy, O. The role of chromatin dynamics under global warming response in the symbiotic coral model Aiptasia. Communications Biology. 2, 282(2019).
- Liew, Y. J. Epigenome-associated phenotypic acclimatization to ocean acidification in a reef-building coral. Science Advances. 4 (6), eaar8028(2018).
- Liew, Y. J. Intergenerational epigenetic inheritance in reef-building corals. Nature Climate Change. 10 (3), 254-259 (2020).
- Liew, Y. J., et al. Identification of microRNAs in the coral Stylophora pistillata. PLoS One. 9 (3), e91101(2014).
- Huang, C., et al. Identification of long non-coding RNAs in two anthozoan species and their possible implications for coral bleaching. Scientific Reports. 7, 5333(2017).
- Rodriguez-Casariego, J. A., et al. Coral epigenetic responses to nutrient stress: Histone H2A.X phosphorylation dynamics and DNA methylation in the staghorn coral Acropora cervicornis. Ecology and Evolution. 8 (23), 12193-12207 (2018).
- Bodega, B., et al. A cytosolic Ezh1 isoform modulates a PRC2-Ezh1 epigenetic adaptive response in postmitotic cells. Nature Structural & Molecular Biology. 24 (5), 444-452 (2017).
- Jordán-Pla, A., Visa, N. Considerations on experimental design and data analysis of chromatin immunoprecipitation experiments. Chromatin Immunoprecipitation., edited by Visa, N., Jordán-Pla, A. Visa, N., Jordán-Pla, A. , Humana Press. Totowa, NJ. 9-28 (2017).
- ENCODE. Ren Lab ENCODE Tissue Fixation and Sonication Protocol for MicroChIP. , Stanford University. Available from: https://www.encodeproject.org/documents/ (2023).
- Langmead, B., Trapnell, C., Pop, M., Salzberg, S. L. Ultrafast and memory-efficient alignment of short DNA sequences to the human genome. Genome Biology. 10, R25(2009).
- Feng, J., Liu, T., Qin, B., Zhang, Y., Liu, X. S. Identifying ChIP-seq enrichment using MACS. Nature Protocols. 7, 1728-1740 (2012).
- Howe, F. S., Fischl, H., Murray, S. C., Mellor, J. Is H3K4me3 instructive for transcription activation. BioEssays. 39 (1), e201600095(2017).
- Zhang, Z., Shi, L., Dawany, N., Kelsen, J., Petri, M. A., Sullivan, K. E. H3K4 tri-methylation breadth at transcription start sites impacts the transcriptome of systemic lupus erythematosus. Clinical Epigenetics. 8, 14(2016).
- Li, X. High-resolution mapping of epigenetic modifications of the rice genome uncovers interplay between DNA methylation, histone methylation, and gene expression. The Plant Cell. 20, 2-276 (2008).
- Haring, M. Chromatin immunoprecipitation: optimization, quantitative analysis and data normalization. Plant Methods. 3, 11(2014).
- Landt, S. G. ChIP-seq guidelines and practices of the ENCODE and modENCODE consortia. Genome Research. 22 (9), 1813-1831 (2012).
- Raha, D., Hong, M., Snyder, M. ChIP-Seq: A method for global identification of regulatory elements in the genome. Current Protocols in Molecular Biology. Chapter 21, Unit 21.19.1-Unit 21.19.14 (2010).
- Roy, S., Morse, D. A full suite of histone and histone modifying genes are transcribed in the dinoflagellate Lingulodinium. PLoS One. 7 (4), e34340(2012).
- Bayer, T., et al. Symbiodinium transcriptomes: Genome insights into the dinoflagellate symbionts of reef-building corals. PLoS One. 7 (4), e35269(2012).
- Marinov, G. K., Lynch, M. Diversity and divergence of dinoflagellate histone proteins. G3 Genes, Genomes, Genetics. 6 (2), 397-422 (2016).
再版と許可
