トロポモジュリン3(TMOD3)は、近年、腫瘍での研究が進んでいます。この研究は、TMOD3が卵巣がんで高発現し、プラチナ製剤耐性および免疫浸潤と密接に関連していることを報告した最初の研究です。これらの結果は、卵巣がんの治療結果の改善に役立つ可能性があります。
方法論記事
卵巣癌におけるプラチナ耐性および免疫浸潤のマーカーとしてのトロポモジュリン3過剰発現
* These authors contributed equally
この記事について
サマリー
要約
細胞骨格は、卵巣がんにおけるプラチナ製剤耐性に重要な役割を果たしています。トロポモジュリン3(TMOD3)は、多くの腫瘍の発生に重要ですが、卵巣がんの薬剤耐性におけるその役割は未解明のままです。本研究では、Gene Expression Omnibus(GEO)、The Cancer Genome Atlas(TCGA)、Clinical Proteomic Tumor Analysis Consortium(CPTAC)のデータベースからのデータを解析することにより、卵巣がんと正常組織におけるTMOD3の発現を比較し、プラチナ製剤感受性卵巣がんとプラチナ製剤抵抗性卵巣がんにおけるプラチナ製剤治療後のTMOD3の発現を調べました。Kaplan-Meier法を使用して、卵巣がん患者の全生存期間(OS)および無増悪生存期間(PFS)に対するTMOD3の効果を評価しました。TargetScanを用いてTMOD3を標的とするmicroRNA(miRNA)を予測し、TCGAデータベースを用いて解析しました。Tumor Immune Estimation Resource(TIMER)および腫瘍免疫系相互作用の統合リポジトリポータル(TISIDB)を使用して、TMOD3発現と免疫浸潤との関係を決定しました。卵巣がんにおけるTMOD3共発現ネットワークは、LinkedOmics、Search Tool for the Retrieval of Interacting Genes/Proteins(STRING)、およびThe Database for Annotation, Visualization, and Integrated Discovery(DAVID)バイオインフォマティクスを使用して調査されました。その結果、TMOD3は卵巣がんで高発現し、卵巣がんの等級付け、病期分類、転移と関連していることが示されました。TMOD3の発現は、プラチナ製剤で治療された卵巣がん細胞および患者で有意に減少しました。しかし、TMOD3の発現は、プラチナ製剤耐性卵巣がん細胞および組織において、プラチナ製剤感受性のものと比較して高かった。プラチナ製剤をベースとした化学療法で治療された卵巣がん患者では、TMOD3の発現が高いほどOSとPFSが低いと有意に関連していました。miRNAを介した転写後調節は、卵巣がんおよびプラチナ製剤耐性卵巣組織における高いTMOD3発現に関与している可能性があります。TMOD3 mRNAの発現は、卵巣がんにおける免疫浸潤と関連していました。これらの知見は、TMOD3が卵巣がんで高発現し、プラチナ製剤耐性および免疫浸潤と密接に関連していることを示しています。
概要
卵巣がんは、婦人科腫瘍の死亡率で世界で2番目に高いがんです1。病理組織学に基づいて、生殖細胞、性腺間葉系、上皮性腫瘍の3つのタイプに分類でき、そのうち患者の90%が上皮性卵巣癌です。卵巣がんに関連する危険因子には、持続的な排卵、ゴナドトロピン曝露の増加、および炎症性サイトカインが含まれます2。卵巣がんの症例の75%以上は進行した病期まで発見されず、効果的な治療法がありません。進行卵巣がんの患者さんは予後が不良で、腹腔内投与や標的療法などの新たな化学療法レジメンにもかかわらず、5年生存率は20%未満です。卵巣がんの標準治療は、主に腫瘍切除手術とそれに続くプラチナ製剤やパクリタキセルなどの薬剤による化学療法です。しかし、腫瘍の再発は症例の約70%で発生します1。シスプラチンは、DNAの複製と転写を妨害することにより治療効果を発揮し、現在、卵巣がん化学療法の第一選択薬です。しかし、卵巣がん患者のかなりの割合がプラチナ製剤耐性です3。薬物排出、細胞の解毒、DNA修復、アポトーシス、オートファジーなどの複数の細胞プロセスは、卵巣がん細胞のプラチナ耐性に重要です4,5,6。
細胞骨格の変化は、卵巣がんにおけるプラチナ製剤耐性に影響を与える重要なメカニズムです。最近、細胞骨格関連遺伝子は通常異常に発現し、シスプラチン誘発性アポトーシスの存在下でアクチン細胞骨格が有意に修飾されることが報告されています7。多くの研究は、シスプラチンが卵巣癌細胞のナノ力学を調節することを示しています。感受性細胞の細胞剛性は、主にアクチン重合の破壊によって寄与される用量依存的に白金とともに増加します。対照的に、シスプラチン耐性細胞は、シスプラチン処理後に細胞硬さに大きな変化を示さなかった8。さらに、シスプラチン感受性卵巣癌細胞のヤング率は、原子間力顕微鏡によって明らかにされたように、より低かった。対照的に、シスプラチン耐性卵巣癌細胞は、長いアクチンストレス繊維を特徴とする細胞骨格を示します。Rho GTPaseを阻害すると、これらの耐性細胞の硬直が減少し、シスプラチン感受性が向上します。逆に、シスプラチン感受性細胞でRho GTPaseを活性化すると、細胞の硬直が増加し、シスプラチン9に対する感受性が低下します。腫瘍抑制遺伝子である多重スプライシング(RBPMS)によるRNA結合タンパク質は、細胞骨格ネットワークのタンパク質発現を調節し、細胞の完全性を維持することにより、卵巣癌細胞のシスプラチン耐性を低下させる10。アクチンストレスファイバーは、A2780細胞と比較してA2780/CP細胞でより顕著です。卵巣癌細胞における薬剤耐性の発現は、アクチン細胞骨格の広範な再編成を誘導し、それによって細胞の機械的特性、運動性、および細胞内薬物輸送に影響を与える11。
TMOD3は、アクチンフィラメント12の増殖が遅い(尖った)末端をキャッピングすることにより、アクチンの解重合を防止する細胞骨格調節タンパク質である。TMOD3は、アクチンダイナミクスを調節することにより、細胞タイプごとに異なる役割を果たし、細胞形状の促進、細胞遊走、筋肉収縮などのさまざまなプロセスに関与しています。マウスのTMOD3欠失はE14.5-E18.5で胚死につながることが示され、TMOD3が胚発生における重要な因子である可能性が示唆された13。幹細胞および前駆細胞におけるその生物学的機能に基づいて、TMOD3は腫瘍の進行に不可欠な役割を果たす可能性があります。肝細胞癌では、TMOD3は、MAPK/ERKシグナル伝達経路14 を活性化することにより肝細胞癌細胞の増殖、浸潤、および遊走を促進し、上皮成長因子受容体15との相互作用を通じてPI3K-AKT経路を活性化することにより遠隔転移を促進する。MiRNA-490-3pは、TMOD3を標的とすることにより、肝細胞がん細胞の増殖と浸潤を阻害します16。MiR-145 は、TMOD317 を阻害することにより、放射線抵抗性の非小細胞肺がんの放射線感受性を改善します。 インビトロ 実験により、TMOD3はリシルオキシダーゼホモログ2(LOXL2)との相互作用を通じて細胞骨格を調節することにより、食道がん細胞の浸潤を媒介することが明らかになった18。さらに、プロテオミクス解析により、TMOD3の高発現がアポトーシス経路19を介して肺がんのエトポシド化学抵抗性を媒介する可能性があることが明らかになりました。近年、腫瘍におけるTMOD3の研究はますます進んでいますが、卵巣がんや化学療法におけるTMOD3の役割についてはまだ報告されていません。
この研究では、卵巣がんにおいてTMOD3がアップレギュレーションされることがわかりました。特に、TMOD3のアップレギュレーションはプラチナ耐性と関連していました。この研究では、卵巣がんにおけるTMOD3の予後的価値と腫瘍免疫浸潤との相関も評価しました。この研究は、卵巣がんにおけるTMOD3の過剰発現がプラチナ製剤耐性と関連していることを示唆しています。
プロトコル
1. 遺伝子発現オムニバス (GEO)
注:卵巣がん、プラチナ製剤で治療された卵巣がん、および薬剤耐性卵巣がんにおけるTMOD3発現は、GEOデータセットから導き出されました。すべてのデータセットの研究タイプは配列による発現プロファイリングであり、生物はホモサピエンスでした。
- GEOデータベース(Table of Materialsを参照)に移動し、検索ボックスにTMOD3、卵巣がん、薬剤耐性またはデータアクセッションなどのキーワードを入力します(補足図1Aを参照)。
- [定義] グループ ボックスでデータを異なるグループに分割します。オプションメニューの「Apply adjustment to the P-values」ボックスで「Benjamini and Hochberg (False discovery rate)」を選択し、「GEO2R」メニューの「analyzed」をクリックします。結果を取得するには、完全なテーブルをダウンロードをクリックしてください。
- ダウンロードしたデータをグラフ作成および統計ソフトウェアで調査し、プロットします( 補足図1Bを参照)。
- 2つのグループ間の比較には、対応のない t検定 を使用します。
2.TNMプロット
注:TNMplotは、The Cancer Genome Atlas(TCGA)、Therapeutic Research to Generate Effective Treatments(TARGET)、およびGenotype-Tissue Expression(GTEx)リポジトリ20からのRNA-seqデータを利用しています。正常な卵巣組織および卵巣がんにおけるTMOD3の発現をTNMplotを用いて解析しました。
- TNMplotウェブツール(材料の表を参照)に移動し、腫瘍と正常の比較をクリックします。
- 「Choose a gene」ボックスにTMOD3を挿入し、「Choose tissue」ボックスで「Ovarian Serous Cystadenocanoma」を選択します。
- 「解析の開始」をクリックして結果を取得します(補足図1Cを参照)。
3.アルカン
注:アラバマ大学バーミンガム校CANcerデータ分析ポータル(UALCAN)は、公開されているがんデータ21を分析するためのユーザーフレンドリーなオンラインリソースです。CPTACデータにおける正常組織および卵巣がんにおけるTMOD3のタンパク質レベル発現をUALCANを用いて解析しました。
- UALCAN(材料表を参照)に移動し、プロテオミクスメニューをクリックします。
- 「Enter gene names」ボックスに「TMOD3」と入力し、「CPTAC dataset」ボックスで「ovarian cancer」を選択します。
- [Explore]をクリックして結果を取得します(補足図1Dを参照)。
4. KMプロッター予後分析
注:卵巣癌におけるTMOD3の予後値は、全生存期間(OS)および無増悪生存期間(PFS)22を含む、Kaplan Meierプロッター(KMプロッター)を使用して分析されました。
- KM-plotter(資料の表を参照)に移動し、卵巣がんのKM-plotterの開始をクリックします。
- TMOD3を Affy id / Geneシンボル ボックスに挿入します。
- [患者をボックスで分割する]で[最適なカットオフを自動的に選択]を選択します。
- プラチナ製剤ベースの化学療法患者の予後解析を行う際には、化学療法の選択肢としてプラチンを含むことを選択します。
- [解析] ボックスで [次のデータセットを使用] で [TCGA] を選択します。
- Draw Kaplan-Meier plotをクリックして結果を取得します(補足図2を参照)。
5. ROCプロッター
注:Receiver Operating Characteristic Curve(ROC)プロッターは、プラチナベースの化学療法に耐性または感受性の患者におけるTMOD3の発現を分析するために使用され、ROC曲線による予測マーカーとして関心のある遺伝子の検証を可能にしました。トランスクリプトームレベルでのROCプロッターのデータセットは、主にTCGAおよびGEOデータベースからのものであり、1816人の卵巣がん患者の治療および反応データが含まれています23。
- ROCプロッター(資料の表を参照)に移動し、卵巣がんのROCプロッターをクリックします。
- TMOD3を Geneシンボル ボックスに挿入します。
- [応答] ボックスで [6 か月での無再発生存期間] を選択し、[治療] ボックスで [プラチン] を選択します。
- [ 計算 ]をクリックして結果を取得します( 補足図3を参照)。
6. mRNA-miRNA解析
注:TMOD3を標的とするmiRNAはTargetScan24によって予測され、次にTCGA卵巣がんデータセットにおけるTMOD3とこれらのmiRNAとの相関関係をcBioportal25によって分析した。その後、上記の結果をCytoscape26で可視化しました。シスプラチン感受性および薬剤耐性卵巣がん患者におけるMiRNA発現をLinkedOmics27で解析しました。
- TargetScan(資料の表を参照)に移動し、[ヒト遺伝子シンボルの入力]ボックスにTMOD3を挿入します(補足図4Aを参照)。
- cBioportalに移動します(資料の表を参照)。
- Ovarian Serous Cystadenocarcinoma (TCGA, Nature 2011) データセットを選択し、TMOD3 と miRNA の記号を [Enter Genes] ボックスに挿入します。
- 「Submit Query」をクリックすると、TCGA卵巣がんデータセットのtmod3とmiRNAとの相関データを取得し(補足図4Bを参照)、その結果をCytoscapeで可視化します(資料表を参照)(補足図4C参照)。
- LinkedOmics(資料表参照)に移動しTCGA_OVサンプルコホートを選択します。
- [検索データセットの選択] ボックスで [臨床] を選択し、[検索データセット属性の選択] ボックスで [プラチナ ステータス] を選択します。
- [Select Target Dataset] ボックスで [miRNASeq] を選択し、[Select Statistical Method] で [t-test] を選択します。
- Submit Queryをクリックして結果を取得します(補足図4D参照)。
7. 免疫浸潤解析
注:Human Protein Atlas(HPA)データベースを使用して、さまざまな免疫細胞におけるTMOD3の分布を分析しました。TIMERは、複数のがんタイプに関連する免疫浸潤を分析する便利なオンラインデータベースです28。この研究では、TIMERを使用して、TMOD3 mRNA発現と卵巣がんの純度、および免疫細胞の浸潤との関係を分析しました。TISIDBは、腫瘍と免疫系の相互作用のためのオンラインポータルである29。この研究では、TISIDBを使用して、卵巣がんにおけるTMOD3と免疫調節剤との相関関係を決定しました。
- HPA(材料表を参照)に移動し、検索ボックスにTMOD3を挿入すると、結果が表示されます。
- さまざまな免疫細胞におけるTMOD3の分布を示すには、 Immunic を選択します( 補足図5Aを参照)。
- TIMERに進み(材料の表を参照)、Gene SymbolボックスにTMOD3を挿入します。
- がんの種類ボックスでOVを選択し、[送信]をクリックして結果を取得します(補足図5Bを参照)。
- TISIDB(材料の表を参照)に移動し、TMOD3をGene Symbolボックスに挿入します。
- [ Submit ]をクリックして結果を取得します( 補足図5Cを参照)。
8. 卵巣癌におけるTMOD3共発現ネットワーク
注:TMOD3と共発現した遺伝子はLinkedOmicsで解析し、TOP50遺伝子はヒートマップで表示しました。TMOD3相互作用遺伝子はSTRING30によって予測されました。次に、重なり合う遺伝子をベン図で表示しました。重複する遺伝子は、Gene Ontology Biological Process(GO-BP)、Gene Ontology Cellular Component(GO-CC)、Gene Ontology Molecular Function(GO-MF)、および京都遺伝子およびゲノム百科事典(KEGG)の経路について、DAVID31によって機能的にアノテーションされました。
- LinkedOmics に移動し、TCGA_OV Sample コホートを選択します。
- 「Select Search Dataset」ボックスと「Select Target Dataset」ボックスで「RNAseq」を選択します。
- Submit Queryをクリックすると、TMOD3と共発現した遺伝子の結果が表示されます。
- STRING(材料の表を参照)に移動し、TMOD3をProtein Nameボックスに挿入します。
- 「Organisms」ボックスで「homo sapiens」を選択し、「search」をクリックして結果を取得します(補足図6を参照)。
- DAVIDに移動します(資料の表を参照)。
- 重複する遺伝子を [Enter Gene List] ボックスに挿入し、[Select Identifier] ボックスで [ENSEMBL _GENE_SYMBOL] を選択します。
- [ Submit List ] をクリックして結果を取得します ( 補足図 7 を参照)。
9. CTDデータベース
注:CTDデータベースは、化学、遺伝子、表現型、疾患、および環境32の間の関係を分析するための新しいツールである。CTDデータベースは、TMOD3を標的とする薬剤を予測します。その後、PubChemデータベースを使用して、薬物の最終的な分子構造を決定します。
- CTDデータベース(Table of Materialsを参照)に移動し、SearchメニューでChemical - Gene Interaction Queryを選択します。
- GENEボックスにTMOD3を挿入し、searchをクリックして結果を取得します(補足図8を参照)。
- PubChemデータベース(資料表を参照)に移動し、検索ボックスに薬剤を入力して結果を取得します(補足図9を参照)。
結果
卵巣がんにおけるTMOD3の発現
まず、GEOデータベースは、マイクロアレイデータセットGSE51088およびGSE66957でTMOD3のmRNA発現レベルが上昇していることを示しました(図1A、B)。また、TNMplotウェブツール(図1C)により、TNMplotウェブツールにより、正常な卵巣組織と比較して、卵巣がんにおいてTMOD3が高発現していました。UALCANウェブツールによるCPTACデータの解析では、TMOD3のタンパク質レベルも、正常な卵巣組織よりも卵巣がんの方が有意に高いことが示されました(図1D)。また、GEOデータセットでは、GSE53963、TMOD3の発現は、グレード2および3の卵巣がんよりもグレード4の卵巣がんで有意に高いことが示され(図1E)、GSE23554データセットでは、ステージ3の卵巣がんの患者では、ステージ1および2の患者よりもTMOD3のレベルが高いことが示されました(図1F)。さらに、GSE131978データセットでは、転移のある卵巣がん組織では、転移のない組織よりもTMOD3の発現が有意に高いことも示されました(図1G)。これらの結果は、TMOD3が卵巣がんの進行に影響を与える可能性を示唆しています。
卵巣がんにおけるTMOD3発現に対するプラチナ製剤の影響
化学療法は、卵巣がんの進行に影響を与える重要な因子である33。TMOD3が化学療法に影響を与えることにより卵巣がんの進行に影響を与えるかどうかを調べるために、この研究では最初に、化学療法薬で治療した場合に卵巣がんのTMOD3発現が変化するかどうかを観察しました。GSE47856データセットは、卵巣がんCH1細胞株において、シスプラチンによる治療後にTMOD3の発現レベルが減少することを示しました(図2A)。GSE49577データセットでは、カルボプラチンで治療した卵巣がん異種移植マウスでは、TMOD3 mRNAの発現が未治療のマウスよりも低かったことが示されました(図2B)。さらに、GSE63885データセットでは、プラチナ製剤に対する感受性が高い卵巣がん患者と化学療法を受けていない卵巣がん患者におけるプラチナ製剤ベースの化学療法後、TMOD3の発現が有意に減少したことが示されましたが、プラチナ製剤に対する感受性が中等度の卵巣がん患者では差はありませんでした(図2C)。以上の結果から、TMOD3がプラチナの標的となり得ることが示唆されます。
プラチナ感受性または抵抗性卵巣がんにおけるTMOD3発現
以上の結果から、本研究では、卵巣がんにおけるTMOD3の高発現がプラチナ製剤耐性を調節することにより、卵巣がんの進行に影響を及ぼす可能性があるという仮説を立てました。そこで、本研究ではまず、複数のGEOデータセットを用いて、薬剤耐性細胞株または患者のがん組織におけるTMOD3の発現を調べました。GSE15372データセットとGSE33482データセットの両方で、シスプラチン耐性卵巣がん細胞株a2780のTMOD3発現は、シスプラチン感受性グループのTMOD3発現よりも有意に高かったことが示されました(図3A、B)。GSE45553データセットでは、シスプラチン耐性卵巣がんスフェロイド発現におけるTMOD3発現が、シスプラチン感受性群の発現よりも有意に高かったことが示されました(図3C)。最後に、ROCプロッターを使用したTCGAおよびGEO卵巣がん化学療法患者の包括的な解析により、TMOD3の発現は、プラチナ製剤耐性を持つ卵巣がん患者の方がプラチナ感受性患者よりも有意に高いことが明らかになりました(図3D)。さらに、ROC曲線は、卵巣がんにおけるプラチナ製剤耐性を決定するためのマーカーとしてTMOD3を示しました(図3E)。以上の結果は、TMOD3の高発現が卵巣がんにおけるプラチナ製剤耐性に重要な役割を果たしている可能性を示唆しています。
卵巣がん患者の生存率に対するTMOD3発現の影響
KM-plotterツールによるTCGA卵巣がん患者の予後解析により、TMOD3 mRNAの高発現は、全患者またはプラチナ製剤治療患者において低OSおよびPFSと有意に関連していることが明らかになりました(図4)。興味深いことに、プラチナ製剤による治療を受けた患者のPFSは、全患者よりも有意でした(図4D)。PFSはOSよりも治療転帰の指標として優れているため、予後解析では、卵巣がんに対するプラチナ製剤ベースの化学療法患者におけるTMOD3の重要な役割がさらに実証されています。
卵巣がんにおけるTMOD3のmRNA-miRNA解析
マイクロRNAによって媒介される転写後制御は、遺伝子発現に影響を与える重要なメカニズムです。遺伝子の機能は、それを標的とするマイクロRNAの機能に基づいて予測することができる34。卵巣がんにおけるTMOD3発現上昇の可能なメカニズムを探るために、TargetScanの予測により、TMOD3を標的とする21のマイクロRNAが同定されました。TMOD3との相関は、TCGA卵巣がんサンプルでも検証されました(図5A)。それらのすべては腫瘍の化学療法抵抗性を媒介することが示されており、大多数(17/21)は卵巣癌のシスプラチン耐性と関連していることが示されました35,36,37,38,39,40,41,42,43,44,45,46,47,48(ただし、has-miR-301a-3p、has-miR -301b-3p、has-miR-365a-5p、has-miR-365b-5p を除く)さらに、TCGA卵巣がんサンプルの解析により、has-miR-454-3pとhas-miR-133a-3pの両方がTMOD3発現と最も有意に負の相関があることが明らかになりました(図5A-C)。さらに、リンクドミクス解析により、has-miR-133a-3pはシスプラチン耐性卵巣がんで低発現することがわかりましたが(図5E)、has-miR-454-3pでは有意性がありませんでした(図5D)。したがって、マイクロRNA、特にhas-miR-133a-3pによって媒介される転写後調節が、シスプラチン耐性卵巣癌におけるTMOD3の高発現に関与している可能性があります。
卵巣がんにおけるTMOD3発現と免疫浸潤との関係
免疫療法は、化学療法や手術と比較して、新しく有望な治療戦略です。卵巣がん患者の約50%が自然発生的な多発性免疫細胞浸潤を持っています49,50。さらに、化学療法抵抗性を持つ卵巣癌患者に対する免疫療法は興味深いものです。例えば、プログラム細胞死1リガンド1(PD-L1)阻害剤デュルバルマブは、PARP阻害剤オラパリブと併用して、プラチナ製剤耐性の卵巣癌患者において良好な治療効果を示している51。HPAデータセットは、TMOD3がさまざまな免疫細胞に広く分布していることを示し(図6A、B)、TMOD3が免疫細胞で重要な役割を果たしていることを示唆しています。そこで、本研究では、TIMERを用いてTMOD3と卵巣がんの免疫浸潤との相関関係を調査しました。TMOD3は腫瘍の純度と負の相関がありました(図6C)。このことは、他の多くの細胞が卵巣がん組織に浸潤しており、TMOD3がこれらの浸潤細胞を通じて卵巣がんに影響を与える可能性があることを示唆しています。実際、結果はさらに、TMOD3の発現がBリンパ球、CD8+ T細胞、好中球、および樹状細胞と正の相関を示していましたが、CD4+ T細胞およびマクロファージとは正の相関がないことを示しました(図6D-I)。この研究では、卵巣がんにおけるTMOD3の発現と免疫調節剤またはケモカインとの関係をさらに調査しました。その結果、TMOD3の発現は、Programmed Death 1(PD1)、PD-L1(CD274)、細胞傷害性Tリンパ球抗原4(CTLA4)(図7B-D)などの確立された免疫チェックポイントを含む、さまざまな免疫調節因子(図7A)と有意に相関していることが分かりました。これらの結果は、TMOD3が卵巣がんの免疫浸潤に重要な役割を果たしている可能性を示唆しています。
卵巣がんにおけるTMOD3共発現ネットワーク
次に、この研究では、卵巣がんの関与におけるTMOD3の潜在的なメカニズムを調査しました。まず、本研究では、卵巣がんにおけるTMOD3の共発現ネットワークを構築しました。LinkedOmicsによって明らかになったTCGA卵巣がんサンプルでは、合計4774の遺伝子がTMOD3と有意に関連していました。ヒートマップは、TOP50遺伝子がTMOD3と正または負に関連していることを示しました(図8A、B)。次に、本研究では、STRINGを用いてTMOD3と相互作用する295の遺伝子をスクリーニングしました。TMOD3と有意に関連する4774個の遺伝子とTMOD3と相互作用する295個の遺伝子を重ね合わせた後、76個の遺伝子をスクリーニングしました(図8C)。これらの76個の遺伝子の機能的濃縮分析では、アクチン細胞骨格と焦点接着が最も濃縮されていることが示されました(図8D)。KEGG経路の濃縮解析により、がんのプロテオグリカンが最も濃縮されていることが明らかになりました(図8E)。
低分子治療薬
TMOD3と潜在的な薬物または低分子との相関関係は、CTDデータベースを使用して分析されました。アセトアミノフェン、アリストロキア酸I、ブファリン、ドキソルビシン、葉酸、ハロペリドール、T-2毒素、テトラクロロジベンゾジオキシン(図9B-I)を含む、合計8つの薬物がTMOD3(図9A)に対する潜在的な阻害効果を有することが確認されました。同定された薬物の分子構造は、PubChemデータベースによって決定されました。これらの薬剤は、TMOD3の過剰発現が媒介する卵巣がんの薬剤耐性の過程を克服する手がかりを提供します。
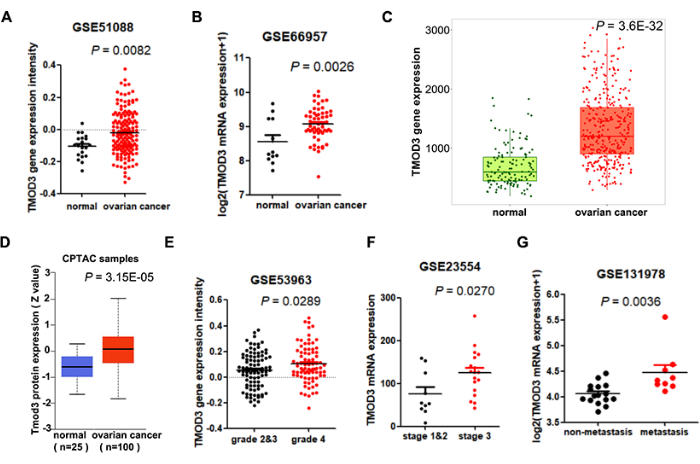
図1:複数の卵巣がんデータセットにおけるTMOD3のmRNAおよびタンパク質発現レベル(A)GSE51088データセットによる正常卵巣組織(n = 20)および卵巣がん(n = 152)におけるTMOD3のmRNA発現の分析。(B)GSE66957データセットによる正常卵巣組織(n = 12)および卵巣癌(n = 57)におけるTMOD3のmRNA発現の解析。(C)TNMプロッターツールによる正常卵巣組織(n = 133)および卵巣癌(n = 374)におけるTMOD3のmRNA発現の解析。(D)UALCANツールによる正常卵巣組織(n = 25)および卵巣癌(n = 100)におけるTMOD3のタンパク質発現のCPTACデータにおける分析。(E)GSE53963データセットによるグレード2および3の卵巣癌(n=94)およびグレード4の卵巣癌(n=80)におけるTMOD3のmRNA発現の解析。(F)ステージ1および2の卵巣がん(n=10)およびステージ3の卵巣がん(n=18)におけるTMOD3 mRNA発現のGSE23554データセットによる解析。ここにテキストを入力します。(G)GSE131978データセットによる卵巣癌における転移の有無にかかわらず、TMOD3 mRNA発現の解析。データはSEM±平均として表されます。この図の拡大版を表示するには、ここをクリックしてください。
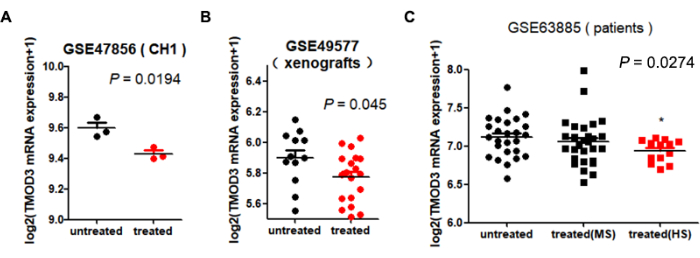
図2:卵巣がん細胞株、移植腫瘍、およびプラチナ製剤治療後の患者におけるTMOD3 mRNA発現レベル。 (A)シスプラチン処理(n = 3)および未治療のCH1(n = 3)卵巣がん細胞株におけるTMOD3 mRNA発現のGSE47856データセットによる解析。(B)シスプラチン処理(n = 12)およびCH1(n = 19)卵巣癌移植における未処理のTMOD3 mRNA発現におけるTMOD3 mRNA発現の解析。(C)シスプラチン治療を受けた卵巣がん患者で、シスプラチンに高感受性(HS、n = 13)および中等度(n = 28)、およびシスプラチン治療を受けていない患者(n = 26)におけるTMOD3 mRNA発現の解析。データはSEM±平均値で表されます*未処理と比較して、 P <0.05です。 この図の拡大版を表示するには、ここをクリックしてください。
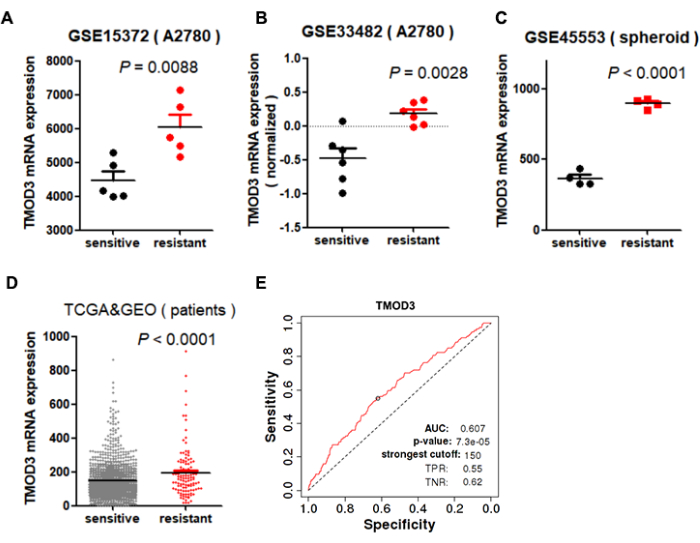
図3:プラチナ感受性およびプラチナ耐性卵巣がん細胞株または患者におけるTMOD3 mRNA発現レベル。 (A,B)シスプラチン感受性およびシスプラチン耐性A2780細胞株におけるTMOD3 mRNA発現レベルを、GSE15372データセット(A)およびGSE33482データセット(B)によって解析しました。(C)シスプラチン感受性およびシスプラチン耐性卵巣がんスフェロイドにおけるTMOD3 mRNA発現レベルをGSE45553データセットにより解析した。(D,E)プラチナ感受性およびプラチナ耐性卵巣がん患者におけるTMOD3 mRNA発現レベルをROCプロッターツール(D)で解析し、ROC曲線(E)でプラチナ耐性を決定するマーカーとしてTMOD3を同定しました。データはSEM±平均として表されます。 この図の拡大版を表示するには、ここをクリックしてください。
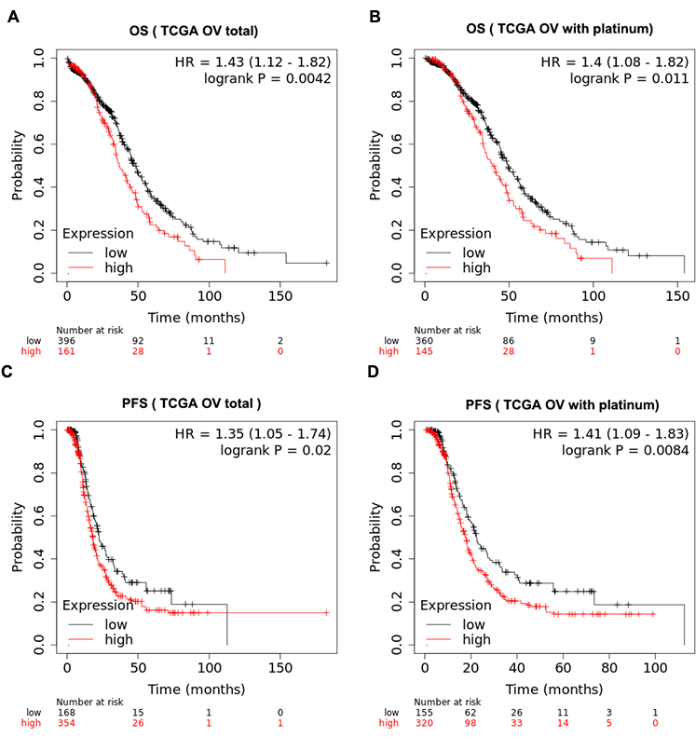
図4:卵巣がん患者のTMOD3 mRNA発現レベルとOSおよびPFSとの相関解析 (A,B) すべてのTCGA卵巣がん患者(A)またはプラチナ製剤ベースの化学療法を受けている患者(B)におけるOSとのTMOD3 mRNA発現レベルの相関解析。(C,D)すべてのTCGA卵巣がん患者(C)またはプラチナベースの化学療法を受けている患者(D)におけるTMOD3 mRNA発現レベルとPFSとの相関分析。 この図の拡大版を表示するには、ここをクリックしてください。
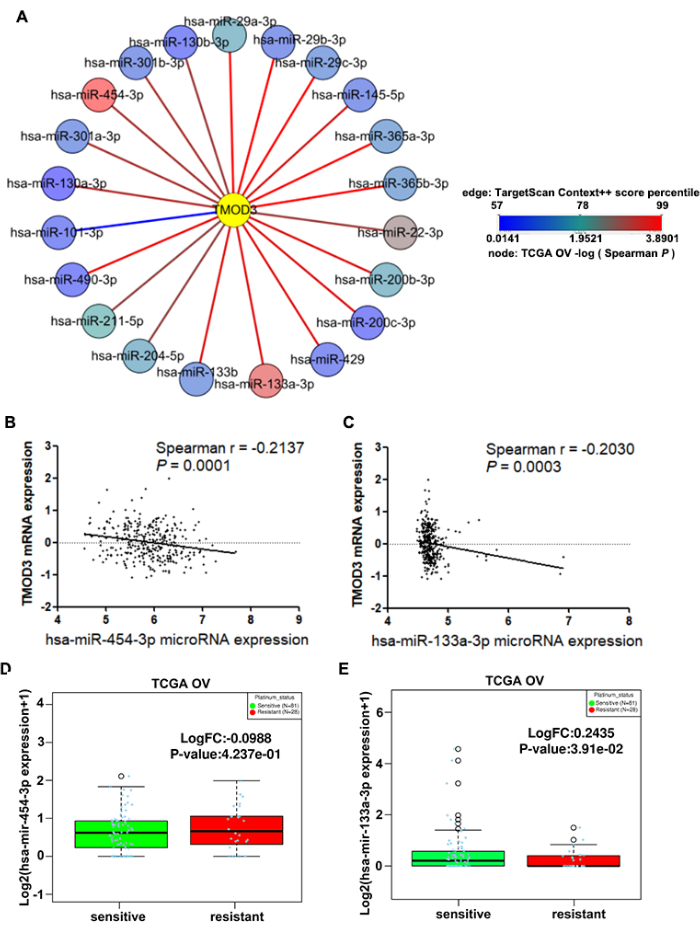
図5:mRNA-microRNA相互作用解析によるTMOD3と薬剤耐性との関係の決定。 (A)TMOD3を標的とするmiRNAの予測。線の色は TargetScan Context++ スコアのパーセンタイルを表し、ノードの色は TCGA 卵巣がんデータセットのこの miRNA と TMOD3 との相関強度を表します。(B,C)TCGA卵巣がん検体におけるTMOD3 mRNA発現レベルとhas-miR454-3p(B)およびhas-miR133a-3p(C)との相関。(D,E)TCGA卵巣がんサンプルにおけるシスプラチン感受性および耐性卵巣がんにおけるhas-miR454-3p(D)およびhas-miR133a-3p(E)の発現。データはSEM±平均として表されます。 この図の拡大版を表示するには、ここをクリックしてください。
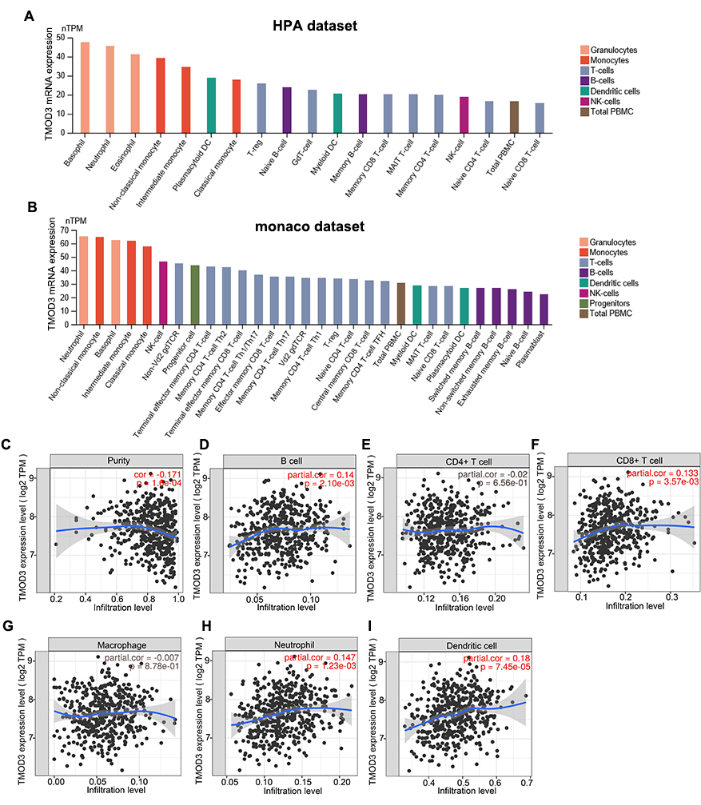
図6:卵巣がんにおけるTMOD3 mRNAの発現レベルと免疫細胞浸潤との相関関係。 (A,B)HPAデータセット(A)およびモナコデータセット(B)における免疫細胞のTMOD3 mRNA発現レベル。(C-I)TCGA卵巣がん(C)、Bリンパ球(D)、CD4+ T細胞(E)、CD8+ T細胞(F)、マクロファージ(G)、好中球(H)、および樹状細胞(I)浸潤におけるTMOD3 mRNA発現レベルと腫瘍純度との相関。この図の拡大版を表示するには、ここをクリックしてください。
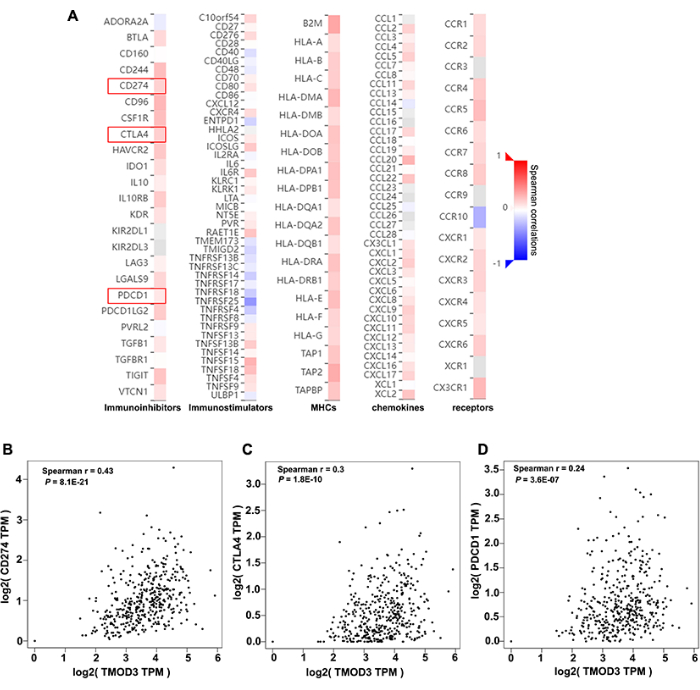
図7:卵巣がん患者におけるTMOD3 mRNA発現レベルと免疫調節因子との相関分析 (A)TCGA卵巣がんにおけるTMOD3 mRNA発現と免疫調節因子(免疫阻害剤、免疫刺激剤、MHC、ケモカイン、受容体など)との相関関係のヒートマップ。(B-D)TCGA卵巣がん検体におけるPD1(B)、PD-L1(CD274)(C)、CTLA4(D)などの免疫チェックポイントとTMOD3 mRNA発現レベルの相関解析。この図の拡大版を表示するには、ここをクリックしてください。
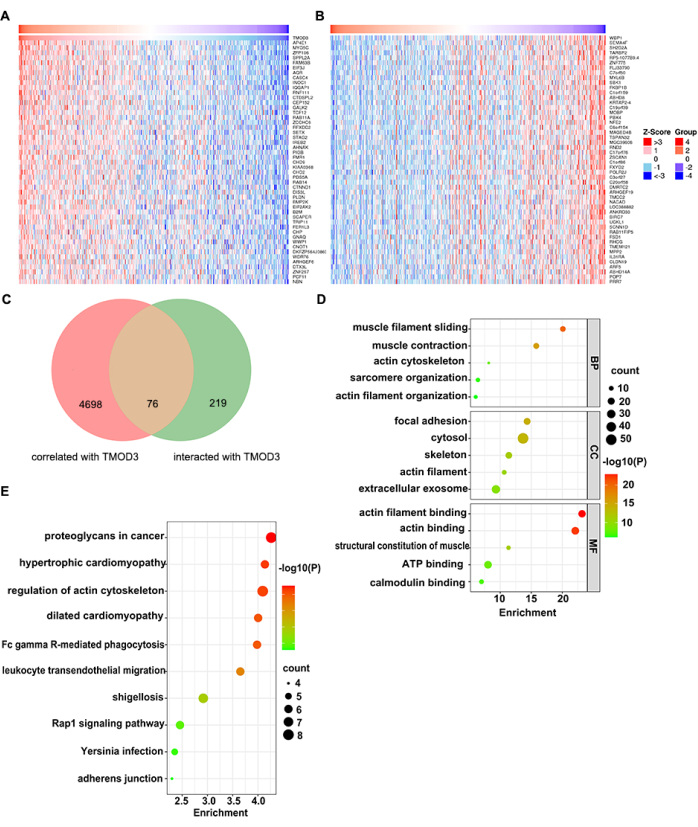
図8:卵巣がんにおけるTMOD3共発現ネットワーク。 (A,B)LinkedOmicsを使用したTCGA卵巣がんデータセットのTMOD3と正の相関(A)と負の50遺伝子(B)を示すヒートマップ。赤と青は、それぞれ正と負の相関を持つ遺伝子を表します。(C)TCGA卵巣癌において、295個の遺伝子がTMOD3と相互作用し、4774個の遺伝子がTMOD3と相関したベン図。(D)重複する76個の遺伝子の機能濃縮解析。バブルプロットは、BP、CC、およびMFが大幅に強化された上位5つの要素を示しました。(E)KEGG経路濃縮分析のTOP10経路。 この図の拡大版を表示するには、ここをクリックしてください。
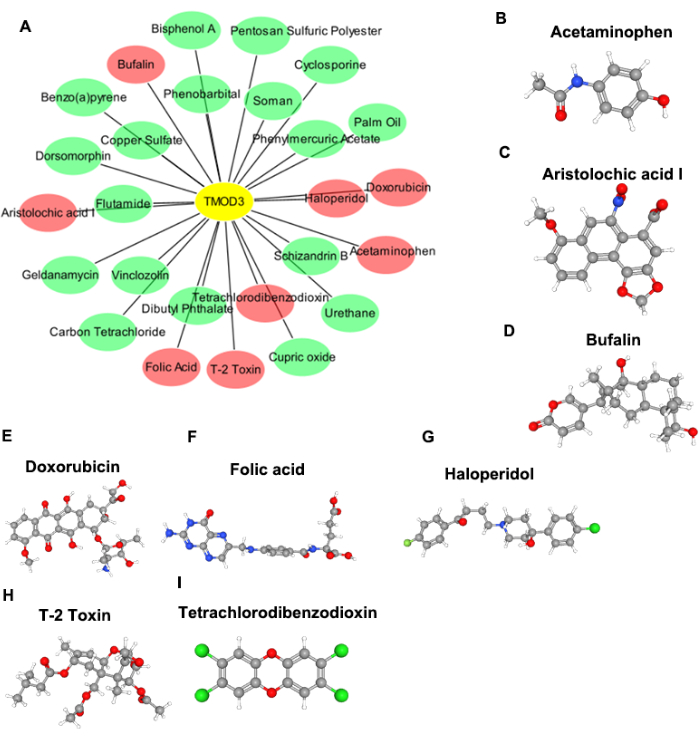
図9:TMOD3を標的とする可能性のある薬剤または低分子の予測 (A)CTDデータベースを使用したTMOD3を標的とする可能性のある薬剤の予測(赤はTMOD3を阻害する可能性のある薬剤)。(B-H)PubChemデータベースは、8つの標的薬の分子構造を明らかにします。(B)アセトアミノフェン、(C)アリストロキア酸I、(D)ブファリン、(E)ドキソルビシン、(F)葉酸、(G)ハロペリドール、(H)T-2毒素。(i)テトラクロロジベンゾジオキシン。この図の拡大版を表示するには、ここをクリックしてください。
補足図1:複数の卵巣がんデータセットにおけるTMOD3のmRNAおよびタンパク質発現レベルの解析方法。 (A) GEOデータベースを用いたTMOD3発現の解析(B)統計およびグラフ作成ソフトウェアを使用して、GEOデータベースから抽出されたデータをさらに分析します。(C) TNMplotを用いたTMOD3発現の解析。(D)UALCANを用いたタンパク質発現の解析。 このファイルをダウンロードするには、ここをクリックしてください。
補足図2:KMプロッターを使用した予後分析。このファイルをダウンロードするには、ここをクリックしてください。
補足図3:ROCプロッターを使用したROC曲線解析。このファイルをダウンロードするには、ここをクリックしてください。
補足図4:mRNA-miRNA分析の方法。 (A)TargetScanを使用したtmod3を標的とするmiRNAの予測。(B) cBioportalを用いたtmod3とmiRNAとの相関解析(C)Cytoscapeを用いた相関解析の可視化(D) LinkedOmicsを用いたmiRNA発現の解析。 このファイルをダウンロードするには、ここをクリックしてください。
補足図5:免疫浸潤分析の方法。 (A)各種免疫細胞におけるTMOD3分布の解析(B)cBioportalを用いたTMOD3と免疫浸潤との相関解析。(C)TISIDBを用いたTMOD3と免疫調節剤との相関解析。 このファイルをダウンロードするには、ここをクリックしてください。
補足図6:STRINGを使用したTMOD3と相互作用する遺伝子の予測。このファイルをダウンロードするには、ここをクリックしてください。
補足図7:DAVIDを使用した機能アノテーション。このファイルをダウンロードするには、ここをクリックしてください。
補足図8:CTDデータベースを用いたTMOD3を標的とする薬剤の予測。このファイルをダウンロードするには、ここをクリックしてください。
補足図9:PubChemデータベースを使用した薬物の分子構造の分析。このファイルをダウンロードするには、ここをクリックしてください。
ディスカッション
細胞骨格は、さまざまな腫瘍の発生と進行、治療、および予後に不可欠であると考えられてきた52。赤血球と心血管系53に限定されるTMOD1、および神経系54に限定されるTMOD2と比較して、TMOD3は遍在する分布を有しており、全身性腫瘍におけるTMOD3の研究をより一般的にしている14,15,16,17,18,19.それにもかかわらず、卵巣がんにおけるTMOD3に関する研究はまだありません。この研究により、卵巣がんにおけるTMOD3の高発現が明らかになり、卵巣がんにおけるプラチナ耐性と腫瘍免疫浸潤におけるその役割をさらに分析しました。
GEOは、世界をリードする完全公開されている遺伝子発現データベースです。GEOデータベースとTCGAデータベースを統合することにより、この研究では、mRNAレベルとタンパク質レベルの両方で複数の独立したデータセットから、卵巣がんでTMOD3が過剰発現していることが実証されました。遺伝子発現の異常は腫瘍発生の重要なメカニズムであり55、この研究ではさらに、TMOD3が卵巣がんの転移、悪性度、病期、および予後と有意に関連していることがわかった。したがって、TMOD3は卵巣がんにおいて重要な役割を果たします。
これまでの研究では、シスプラチン誘発性アポトーシスでは、細胞骨格関連遺伝子は通常、異常に発現し、アクチン細胞骨格は有意に修飾されることが報告されていました7。実際、アクチンフィラメントの増殖が遅い(尖った)末端を覆うタンパク質として、シスプラチンとカルボプラチンの処理後にTMOD3が変化し、GO-term解析とKEGG解析により、アクチン細胞骨格がTMOD3が卵巣がんのプロセスに影響を与える可能性のあるメカニズムである可能性があることも示されました。しかし、細胞骨格は複雑な生物学的プロセスであり、この研究では、TMOD3の発現がプラチナ製剤の影響を受けることが示されたに過ぎません。TMOD3がプラチナ製剤の直接の標的であるかどうか、また他の化学療法薬もTMOD3の発現を変化させるかどうかは、分子生物学的実験によってさらに証明されなければなりません。この研究では、プラチナ製剤に対する中等度の感受性を有する患者におけるTMOD3発現は、プラチナ製剤ベースの化学療法後も有意に変化しなかったが、高感受性患者ではTMOD3が有意に減少した。卵巣癌におけるTMOD3の高発現に基づいて、TMOD3が卵巣癌におけるプラチナ製剤耐性と関連していると推測することは合理的です。この研究では、in vitroの実験データセットと患者データセットを使用して、プラチナ製剤耐性卵巣がん細胞株または患者では、プラチナ製剤感受性細胞株よりもTMOD3発現が有意に高いこともわかりました。疾患の診断の遅れと化学療法抵抗性による疾患の再発は、卵巣癌の高い死亡率の一因となりました1,2。血清中の抗TMOD3b-autoAbは、rAFSステージIからIIの子宮内膜症および超音波陰性子宮内膜症56の診断において、≥80%の感度を有することが示されたことが報告されています。この研究では、TMOD3が白金耐性を決定するための貴重なマーカーであることが示されました。しかし、プラチナ製剤耐性が異なる時期や異なるレベルで現れるすべてのケースにおいて、TMOD3が有用なバイオマーカーであるかどうかを判断するためには、さらなる臨床解析が必要です。
マイクロRNAを介した転写後調節は、化学抵抗性関連遺伝子の異常な発現の重要なメカニズムである34。本研究では、mRNA-miRNA解析により、卵巣がんおよびプラチナ製剤耐性卵巣がんにおけるTMOD3の高発現の考えられる理由が明らかになりました。miR-133aは、UCP-257 の発現をダウンレギュレートすることにより乳がんのドキソルビシンに対する感受性を増加させ、ATP7B58の発現をダウンレギュレーションすることによりヒト喉頭がん細胞株の感受性を増加させることが示されている。この研究では、miR-133a も TMOD3 を標的としていることがわかり、TCGA 卵巣がんサンプルでは TMOD3 と有意に負の相関が見られました。シスプラチン感受性卵巣がん患者におけるmiR-133aの発現も、シスプラチン耐性患者よりも高かった。これは、miR-133aが転写後調節を通じてTMOD3の発現に影響を与えることにより、卵巣がんにおけるシスプラチン耐性を媒介できることを意味します。マイクロRNAは、いくつかの理由から腫瘍診断において貴重な要素であると考えられています。まず、血液、尿、初乳、胸水などの体液中のmiRNAを検出することが可能です。次に、循環するmiRNAは体液中で非常に安定しており、内因性RNaseの影響を受けません。第三に、循環するmiRNAは、さまざまな腫瘍部位または転移部位からの病理学的シグナルを運ぶため、腫瘍の不均一性の問題を克服する59。例えば、血漿miR-133aと組み合わせた免疫組織化学は、結腸直腸癌の早期診断の特異性と感度を有意に改善することができる60。したがって、卵巣がんのプラチナ製剤耐性における miR133a の診断応用は、さらなる研究に値します。
免疫細胞におけるTMOD3の役割に関する研究は限られています。卵巣がんにおけるTMOD3の発現と免疫細胞浸潤との相関解析は、これまで行われていませんでした。本研究では、TMOD3が腫瘍組織におけるCD8+ T細胞や樹状細胞などの浸潤免疫細胞の数と正の相関があることを発見しました。私たちのグループからの以前の報告は、TMOD1が樹状細胞の成熟と免疫機能を促進することを示しました61、これはTMOD3が卵巣癌で同様の役割を果たす可能性があることを示唆しています。さらに、この研究では、TMOD3の発現もPD-L1、PDCD1、およびCTLA4の発現と正の相関がありました。したがって、TMOD3は免疫細胞の腫瘍組織への動員に関与している一方で、腫瘍細胞表面でのPD-L1、PDCD1、およびCTLA4の発現増加にもつながる可能性があり、この遺伝子の高発現が依然として腫瘍免疫応答に抑制効果を持っていることを示しています。そのメカニズムをさらに調査し、TMOD3の発現を阻害することにより、化学療法抵抗性卵巣癌における免疫療法の実施可能性を探る必要があります。
化学療法抵抗性卵巣がんの治療標的としてのTMOD3の可能性をさらに探るために、この研究では、TMOD3と既存の薬剤との相互作用を分析し、いくつかの薬剤がTMOD3の発現を減少させる可能性があることを発見しました。しかし、TMOD3を過剰発現する薬剤耐性卵巣がんの患者がTMOD3阻害の恩恵を受けることができるかどうか、またはTMOD3が有望な治療標的であるかどうかを判断するには、前臨床および前向き臨床研究を含むさらなる実験的支援が必要である。
本研究にはいくつかの限界がある。まず、TMOD3の発現と予後的意義をオンラインの公開データベースを通じて調査し、これらの結果を細胞実験や動物実験でさらに検証するためには、その後の解析が必要である。第二に、 in vitro および in vivo 実験は、TMOD3が卵巣癌のプラチナ耐性を媒介する詳細なメカニズムを解明するために設計されなければなりません。第三に、がん細胞の不均一性を回避するために、シングルセルシーケンシングと組み合わせたTMOD3の役割を調査する方が良いかもしれません。
要約すると、これらの結果から、薬剤耐性卵巣がんにおいて、TMOD3の発現が初めてアップレギュレーションされることが分かりました。また、本研究では、その潜在的なメカニズムと治療標的としての可能性を事前に調査しました。
開示事項
著者らは、利益相反を報告していない。
謝辞
本研究は、中国国家自然科学基金会(31771280年32171143号)および江蘇省教育省自然科学基金会(18KJD360003、21KJD320004)の助成を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| cBioportal | Memorial Sloan Kettering Cancer Center | 相関分析 標的miRNAを持つTMOD3 (https://www.cbioportal.org) | |
| CTDデータベース | North Carolina State University | 化学、遺伝子、表現型、疾患、環境の関係を解析する (https://ctdbase.org/) | |
| Cytoscape | National Institute of General Medical Sciences of the National Institutes of Health | Network Data Integration, Analysis, and Visualization (www.cytoscape.org/) | |
| デビッド | フレデリック国立がん研究所 遺伝子の | 大規模なリストの背後にある生物学的意味を理解するための研究者のための機能的注釈ツールの包括的なセット(https://david.ncifcrf.gov/ GEO | |
| NCBI | 遺伝子発現解析)(https://www.ncbi.nlm.nih.gov/geo/) | ||
| HPA | Knut &アリス・ウォレンバーグ財団 | Human Protein Atlas(HPA)データベースは、さまざまな免疫細胞におけるTMOD3の分布の分析に役立ちました (https://www.proteinatlas.org/) | |
| KM-plotter | Department of Bioinformatics of the Semmelweis University | Prognostic Analysis (https://kmplot.com/analysis/ | |
| LinkedOmics | Baylor College of Medicine | 者や臨床医が腫瘍タイプ内および腫瘍タイプ間でがんマルチオミクスデータにアクセスし、分析し、比較するためのプラットフォーム (http://www.linkedomics.org/) | |
| PubChem database | U.S. National Library of Medicine | ROC | |
| センメルワイス大学バイオインフォマティクス学部 | 予測マーカーとしての関心遺伝子の検証 (http://www.rocplot.org/) | ||
| University | Systematical analysis of immune infilrates across diverse cancer types(https://cistrome.shinyapps.io/timer/ | ||
| TISIDB | The University of Hong Kong | A web portal for tumor and immune system interaction(http://cis.hku.hk/TISIDB/) | |
| TNMplot | Department of Bioinformatics of the Semmelweis University | 遺伝子発現解析(https://www.tnmplot.com/) | |
| UALCAN | アラバマ大学バーミンガム校 | 遺伝子発現解析 (http://ualcan.path.uab.edu) |
参考文献
- Gaona-Luviano, P., Medina-Gaona, L. A., Magaña-Pérez, K. Epidemiology of ovarian cancer. Chin Clin Oncol. 9 (4), 47(2020).
- Ahmed, N., et al. Ovarian cancer, cancer stem cells and current treatment strategies: A potential role of magmas in the current treatment methods. Cells. 9 (3), 719(2020).
- Song, M., Cui, M., Liu, K. Therapeutic strategies to overcome cisplatin resistance in ovarian cancer. Eur J Med Chem. 232, 114205(2022).
- Binju, M., et al. Mechanisms underlying acquired platinum resistance in high grade serous ovarian cancer - A mini review. Biochim Biophys Acta Gen Subj. 1863 (2), 371-378 (2019).
- El Bairi, K., Singh, S., Le Page, C. Revisiting platinum-resistant ovarian cancer: Advances in therapy, molecular biomarkers, and clinical outcomes. Semin Cancer Biol. 77, 1-2 (2021).
- Freimund, A. E., Beach, J. A., Christie, E. L., Bowtell, D. D. L. Mechanisms of drug resistance in high-grade serous ovarian cancer. Hematol Oncol Clin North Am. 32 (6), 983-996 (2018).
- Shimizu, T., Fujii, T., Sakai, H. The relationship between actin cytoskeleton and membrane transporters in cisplatin resistance of cancer cells. Front Cell Dev Biol. 8, 597835(2020).
- Sharma, S., et al. Correlative nanomechanical profiling with super-resolution f-actin imaging reveals novel insights into mechanisms of cisplatin resistance in ovarian cancer cells. Nanomedicine. 8 (5), 757-766 (2012).
- Sharma, S., Santiskulvong, C., Rao, J., Gimzewski, J. K., Dorigo, O. The role of rho GTPase in cell stiffness and cisplatin resistance in ovarian cancer cells. Integr Biol (Camb). 6 (6), 611-617 (2014).
- Rabelo-Fernández, R. J., et al. Reduced RBPMS levels promote cell proliferation and decrease cisplatin sensitivity in ovarian cancer cells. Int J Mol Sci. 23 (1), 535(2022).
- Seo, Y. H., Jo, Y. N., Oh, Y. J., Park, S. Nano-mechanical reinforcement in drug-resistant ovarian cancer cells. Biol Pharm Bull. 38 (3), 389-395 (2015).
- Parreno, J., Fowler, V. M. Multifunctional roles of tropomodulin-3 in regulating actin dynamics. Biophys Rev. 10 (6), 1605-1615 (2018).
- Sui, Z., et al. Regulation of actin polymerization by tropomodulin-3 controls megakaryocyte actin organization and platelet biogenesis. Blood. 126 (4), 520-530 (2015).
- Jin, C., Chen, Z., Shi, W., Lian, Q. Tropomodulin 3 promotes liver cancer progression by activating the MAPK/ERK signaling pathway. Oncol Rep. 41 (5), 3060-3068 (2019).
- Zheng, H., et al. Tropomodulin 3 modulates EGFR-PI3K-AKT signaling to drive hepatocellular carcinoma metastasis. Mol Carcinog. 58 (10), 1897-1907 (2019).
- Wang, H., Yang, G., Yu, Y., Gu, P. Microrna-490-3p suppresses the proliferation and invasion of hepatocellular carcinoma cells via targeting tmod3. Oncol Lett. 20 (4), 95(2020).
- Li, H., et al. Mir-145 modulates the radiosensitivity of non-small cell lung cancer cells by suppression of TMOD3. Carcinogenesis. 43 (3), 288-296 (2021).
- Zhan, X. H., et al. Loxl2 upregulates phosphorylation of ezrin to promote cytoskeletal reorganization and tumor cell invasion. Cancer Res. 79 (19), 4951-4964 (2019).
- Paul, D., et al. Global proteomic profiling identifies etoposide chemoresistance markers in non-small cell lung carcinoma. J Proteomics. 138, 95-105 (2016).
- Bartha, Á, Győrffy, B. TNMplot.Com: A web tool for the comparison of gene expression in normal, tumor and metastatic tissues. Int J Mol Sci. 22 (5), 2622(2021).
- Chandrashekar, D. S., et al. UALCAN: A portal for facilitating tumor subgroup gene expression and survival analyses. Neoplasia. 19 (8), 649-658 (2017).
- Gyorffy, B., Lánczky, A., Szállási, Z. Implementing an online tool for genome-wide validation of survival-associated biomarkers in ovarian cancer using microarray data from 1287 patients. Endocr Relat Cancer. 19 (2), 197-208 (2012).
- Fekete, J. T., et al. Predictive biomarkers of platinum and taxane resistance using the transcriptomic data of 1816 ovarian cancer patients. Gynecol Oncol. 156 (3), 654-661 (2020).
- Mcgeary, S. E., et al. The biochemical basis of microRNA targeting efficacy. Science. 366, 6472(2019).
- Gao, J., et al. Integrative analysis of complex cancer genomics and clinical profiles using the cBioPortal. Sci Signal. 6 (269), pl1(2013).
- Shannon, P., et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Vasaikar, S. V., Straub, P., Wang, J., Zhang, B. Linkedomics: Analyzing multi-omics data within and across 32 cancer types. Nucleic Acids Res. 46 (D1), D956-D963 (2018).
- Li, T., et al. Timer: A web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 77 (21), e108-e110 (2017).
- Ru, B., et al. TISIDB: An integrated repository portal for tumor-immune system interactions. Bioinformatics. 35 (20), 4200-4202 (2019).
- Szklarczyk, D., et al. String v11: Protein-protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 47 (D1), D607-D613 (2019).
- Sherman, B. T., et al. A web server for functional enrichment analysis and functional annotation of gene lists (2021 update). Nucleic Acids Res. 50 (W1), W216-W221 (2022).
- Grondin, C. J., et al. Predicting molecular mechanisms, pathways, and health outcomes induced by Juul e-cigarette aerosol chemicals using the comparative toxicogenomics database. Curr Res Toxicol. 2, 272-281 (2021).
- Wang, X., et al. Hif-1α is a rational target for future ovarian cancer therapies. Front Oncol. 11, 785111(2021).
- Liu, X., et al. Downregulation of nek11 is associated with drug resistance in ovarian cancer. Int J Oncol. 45 (3), 1266-1274 (2014).
- Tang, J., et al. Inhibition of lc3b can increase the chemosensitivity of ovarian cancer cells. Cancer Cell Int. 19, 199(2019).
- Wang, T., et al. Mir-211 facilitates platinum chemosensitivity by blocking the DNA damage response (DDR) in ovarian cancer. Cell Death Dis. 10 (7), 495(2019).
- Tian, J., Xu, Y. Y., Li, L., Hao, Q. Mir-490-3p sensitizes ovarian cancer cells to cisplatin by directly targeting abcc2. Am J Transl Res. 9 (3), 1127-1138 (2017).
- Liu, L., et al. Mir-101 regulates expression of ezh2 and contributes to progression of and cisplatin resistance in epithelial ovarian cancer. Tumour Biol. 35 (12), 12619-12626 (2014).
- Li, Z., et al. Exosomes secreted by chemoresistant ovarian cancer cells promote angiogenesis. J Ovarian Res. 14 (1), 7(2021).
- Xue, B., Li, S., Jin, X., Liu, L. Bioinformatics analysis of mrna and miRNA microarray to identify the key miRNA-mRNA pairs in cisplatin-resistant ovarian cancer. BMC Cancer. 21 (1), 452(2021).
- Zong, C., Wang, J., Shi, T. M. Microrna 130b enhances drug resistance in human ovarian cancer cells. Tumour Biol. 35 (12), 12151-12156 (2014).
- Yu, P. N., et al. Downregulation of mir-29 contributes to cisplatin resistance of ovarian cancer cells. Int J Cancer. 134 (3), 542-551 (2014).
- Sheng, Q., et al. Cisplatin-mediated down-regulation of mir-145 contributes to up-regulation of pd-l1 via the c-myc transcription factor in cisplatin-resistant ovarian carcinoma cells. Clin Exp Immunol. 200 (1), 45-52 (2020).
- Luo, Y., Gui, R. Circulating exosomal circfoxp1 confers cisplatin resistance in epithelial ovarian cancer cells. J Gynecol Oncol. 31 (5), e75(2020).
- Liu, J., et al. Mir-200b and mir-200c co-contribute to the cisplatin sensitivity of ovarian cancer cells by targeting DNA methyltransferases. Oncol Lett. 17 (2), 1453-1460 (2019).
- Li, T., et al. Exosomal transfer of mir-429 confers chemoresistance in epithelial ovarian cancer. Am J Cancer Res. 11 (5), 2124-2141 (2021).
- Chen, S., Jiao, J. W., Sun, K. X., Zong, Z. H., Zhao, Y. Microrna-133b targets glutathione s-transferase π expression to increase ovarian cancer cell sensitivity to chemotherapy drugs. Drug Des Devel Ther. 9, 5225-5235 (2015).
- Zhou, Y., et al. Mir-133a targets yes1 to reduce cisplatin resistance in ovarian cancer by regulating cell autophagy. Cancer Cell Int. 22 (1), 15(2022).
- Marth, C., Wieser, V., Tsibulak, I., Zeimet, A. G. Immunotherapy in ovarian cancer: Fake news or the real deal. Int J Gynecol Cancer. 29 (1), 201-211 (2019).
- Wu, A., et al. Integrated analysis of prognostic and immune-associated integrin family in ovarian cancer. Front Genet. 11, 705(2020).
- Lampert, E. J., et al. Combination of PARP inhibitor Olaparib, and PD-l1 inhibitor Durvalumab, in recurrent ovarian cancer: A proof-of-concept phase II study. Clin Cancer Res. 26 (16), 4268-4279 (2020).
- Fife, C. M., Mccarroll, J. A., Kavallaris, M. Movers and shakers: Cell cytoskeleton in cancer metastasis. Br J Pharmacol. 171 (24), 5507-5523 (2014).
- Yao, W., Chu, X., Sung, L. A. Cell type-restricted expression of erythrocyte tropomodulin isoform41 in exon 1 knockout/lacz knock-in heterozygous mice. Gene Expr Patterns. 17 (1), 45-55 (2015).
- Omotade, O. F., et al. Tropomodulin isoform-specific regulation of dendrite development and synapse formation. J Neurosci. 38 (48), 10271-10285 (2018).
- Zhang, Q., Zhong, C., Duan, S. The tumorigenic function of linc00858 in cancer. Biomed Pharmacother. 143, 112235(2021).
- Greenbaum, H., Galper, B. L., Decter, D. H., Eisenberg, V. H. Endometriosis and autoimmunity: Can autoantibodies be used as a non-invasive early diagnostic tool. Autoimmun Rev. 20 (5), 102795(2021).
- Yuan, Y., Yao, Y. F., Hu, S. N., Gao, J., Zhang, L. L. Mir-133a is functionally involved in doxorubicin-resistance in breast cancer cells mcf-7 via its regulation of the expression of uncoupling protein 2. PLoS One. 10 (6), e0129843(2015).
- Wang, X., Zhu, W., Zhao, X., Wang, P. Mir-133a enhances the sensitivity of hep-2 cells and vincristine-resistant hep-2v cells to cisplatin by downregulating atp7b expression. Int J Mol Med. 37 (6), 1636-1642 (2016).
- Han, Y., Li, H. MiRNAs as biomarkers and for the early detection of non-small cell lung cancer (SCLC). J Thorac Dis. 10 (5), 3119-3131 (2018).
- Luo, X., Wu, Y., Ji, M., Zhang, S. Combined plasma microRNA and fecal occult blood tests in early detection of colorectal cancer. Clin Lab. 65 (5), (2019).
- Liu, X., et al. Tropomodulin1 expression increases upon maturation in dendritic cells and promotes their maturation and immune functions. Front Immunol. 11, 587441(2020).
再版と許可
