このプロトコルは、生細胞中のCRAFキナーゼと14-3-3タンパク質との相互作用を測定するためのBRETベースのアッセイを説明しています。このプロトコルでは、細胞の調製、BRET排出量の読み取り、およびデータ解析の手順を概説しています。また、アッセイ最適化のための適切なコントロールとトラブルシューティングの特定を含む結果の例も示します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
方法論記事
生細胞におけるCRAFと14-3-3タンパク質との相互作用を測定するための生物発光共鳴エネルギー移動(BRET)ベースのアッセイ
この記事について
サマリー
要約
CRAF は RAS GTPase の主要なエフェクターであり、いくつかの KRAS によるがんの腫瘍形成に重要な役割を果たします。さらに、CRAF は生殖細胞変異のホットスポットであり、発達性 RASopathy、ヌーナン症候群を引き起こすことが示されています。すべてのRAFキナーゼには、14-3-3制御タンパク質のリン酸化依存性結合部位が複数含まれています。これらの部位への14-3-3の差次的結合は、シグナル伝達条件下での原形質膜での活性RAF二量体の形成、および静止条件下でのRAF自己阻害の維持において重要な役割を果たします。これらの相互作用がどのように制御され、どのように調節できるかを理解することは、RAF機能を標的とする新しい治療アプローチを特定するために重要です。ここでは、生細胞におけるCRAFと14-3-3タンパク質との相互作用を測定するための生物発光共鳴エネルギー移動(BRET)ベースのアッセイについて説明します。具体的には、このアッセイは、ナノルシフェラーゼドナーに融合したCRAFとHaloタグアクセプターに融合した14-3-3の相互作用を測定し、RAFと14-3-3の相互作用により、ドナーからアクセプターへのエネルギー移動とBRETシグナルの生成がもたらされます。プロトコルはさらに、このシグナルが、その高親和性RAFドッキング部位のそれぞれへの14-3-3結合を防止することを示す突然変異によって中断され得ることを示している。このプロトコールでは、細胞の播種、トランスフェクション、および再プレーティングの手順と、BRET排出量の読み取り、データ解析の実施、およびタンパク質発現レベルの確認に関する詳細な手順について説明します。さらに、アッセイ結果の例と、最適化およびトラブルシューティングの手順を提供します。
概要
RAFキナーゼ(ARAF、BRAF、CRAF)は、RAS GTPアーゼの直接エフェクターであり、増殖促進型/生存促進型のRAF-MEK-ERKキナーゼカスケードの開始メンバーです。最近の研究では、CRAF の発現が、非小細胞肺がんや膵管腺がん 1,2,3,4,5 など、いくつかの KRAS 駆動型がんの腫瘍形成に重要な役割を果たしていることが示されています。さらに、生殖細胞系CRAF変異は、特に重篤なRASopathyであるヌーナン症候群を引き起こします6,7。CRAF制御を理解することは、細胞内でのCRAF機能を標的とする治療アプローチを成功させるために重要です。
全てのRAFキナーゼは、C末端触媒(CAT)ドメインとN末端調節(REG)ドメインの2つの機能ドメインに分けることができ、これはその活性を制御する(図1A)8。REGドメインには、RAS結合ドメイン(RBD)、システインリッチドメイン(CRD)、およびセリン/スレオニンリッチ領域(S/Tリッチ)が含まれます。特に、S/Tリッチ領域にはN'部位が含まれており、N'部位はリン酸化依存的に14-3-3に結合します(CRAFのS259;図1A)8. CATドメインは、キナーゼドメインを包含し、C'サイトと呼ばれる第2の高親和性14-3-3ドッキングサイト(CRAFではS621;図1A)8.二量体14-3-3タンパク質のN'およびC'部位への差長結合は、CRDとともに、RAFの活性化と阻害の両方に重要な役割を果たします9,10,11,12,13。通常のシグナル伝達条件下では、RAFの活性化はRASによる原形質膜への動員によって開始され、活性二量体を形成することができ、その中でBRAF-CRAFヘテロ二量体が主要な活性型である14,15。BRAFおよびCRAFを用いた生化学的アッセイは、二量体BRAFの極低温電子顕微鏡(Cryo-EM)構造とともに、14-3-3二量体が両方のRAFプロトマーのC'部位に同時に結合することにより活性RAF二量体を安定化させることを示している(図1B)9,13,16,17。逆に、研究は、静止条件下で、RAFが細胞質の自己阻害確認を採用し、REGドメインがCATドメインに結合し、その活性を阻害することを示しました12,18,19,20。この閉状態は、REGドメインのCRDおよびN'サイト、およびCATドメインのC'サイトに結合した14-3-3ダイマーによって安定化される(図1B)10,13,21。BRAFでは、このモデルは、自己阻害BRAFモノマーの最近のクライオ電子顕微鏡構造と、以前の生化学的研究10,12,13,21,22によってサポートされています。しかし、14-3-3はCRAF調節において阻害的な役割を果たすことが示されています23が、BRAFのような自己抑制状態はCRAF調節12においてより少ない役割を果たす可能性があります。したがって、14-3-3タンパク質がCRAF活性を制御するメカニズムを明らかにするためには、さらなる研究が必要です。14-3-3を介したRAFキナーゼの調節には、多数のRAFリン酸化および脱リン酸化イベント、さまざまな調節タンパク質への結合、および原形質膜との相互作用が必要です8。したがって、14-3-3-RAF相互作用は、生理学的に関連性のある条件下で、無傷の脂質二重層の存在下で測定することが重要です。
この問題に対処するために、NanoBRET(以下、N-BRETと表記、キットの詳細については表を参照)技術を利用して、生細胞内のCRAFと14-3-3タンパク質との相互作用を測定するための近接ベースのアッセイを開発しました(図1C)。このBRETベースのシステムは、Halo618エネルギーアクセプターリガンド22,24で標識するために、一方のタンパク質にナノルシフェラーゼ(Nano)ドナー、もう一方にHaloタグが付けられた2つの目的タンパク質(POI)の相互作用を測定する。目的のタンパク質の相互作用により、ドナーからアクセプターへのエネルギー移動が起こり、それが次にBRETシグナルを生成します(図1C)。非常に明るいNanoドナータンパク質(発光(em)460 nm)とHalo618リガンド(em 618 nm)は、従来のBRETよりも優れたスペクトル分離と感度を提供し、弱い相互作用を研究し、結合の微妙な変化を検出するための理想的なプラットフォームとなっています24。実際、我々は以前に、BRAF CRDにおけるRASopathy変異のパネルの特性評価に不可欠であったRAF REGおよびCATドメインの自己抑制性相互作用を測定するためのN-BRETベースのアッセイを開発し、自己抑制を維持し、構成的BRAF活性化を防止するためのこのドメインの決定的な重要性を実証した12。
ここで説明するアッセイは、N末端ナノタグに融合したCRAFと、C末端ハロータグに融合した14-3-3のゼータアイソフォーム(14-3-3ζ-Halo; 図1C)。Nano-CRAFと14-3-3ζ-Haloとの相互作用は、強力なBRETシグナルを生成し、14-3-3がN'部位(S259A)および/またはC'部位(S621A)に結合するのを妨げる突然変異によって破壊される可能性があることを示しています。次のプロトコルは、このアッセイの実行、最適化、およびトラブルシューティングの詳細な手順を示しています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
注:このアッセイは293FT細胞で行われます。ヒト胚性腎臓細胞に由来する、十分に特徴付けられ、容易にトランスフェクト可能な上皮系統。これらの細胞の1つのコンフルエント10 cm培養皿は、通常、6ウェル組織培養プレートの20ウェルを播種するのに十分な細胞を提供します。ステップ1〜3は、生物学的安全キャビネット内で滅菌技術を使用して実行する必要があります。
1. 細胞播種(1日目)
注:このステップでは、細胞を組織培養皿から切り離し、カウントし、ステップ2のトランスフェクションのために6ウェル組織培養プレートに播種します(図2)。
- 10cm皿の細胞から培地を吸引します。5 mLのリン酸緩衝生理食塩水(PBS)で細胞を洗浄し、吸引します。
- 1 mLのトリプシン-エチレンジアミン四酢酸(EDTA)を加え、37°Cで3〜5分間インキュベートして、細胞を皿から分離します。
- 9 mLの完全ダルベッコ改変イーグル培地(DMEM)を細胞に加えてトリプシンを中和し、ピペットを上下に繰り返して均質な単一細胞懸濁液を生成します。
- 直ちに20 μLの細胞を1.7 mLのチューブに移し、20 μLのトリパンブルー染色液と混合します。自動セルカウンター(Table of Materials)または血球計算盤を使用して細胞をカウントします。
- 完全なDMEM培地で細胞を2 x 10⁵ 細胞/mLに希釈し、6ウェル組織培養プレート(4 x 105 細胞/ウェル)の各ウェルに2 mLを添加します。細胞を37°Cおよび10%CO2 で一晩インキュベートします。
注:継代が20倍未満の293FTセルを使用することをお勧めします。私たちは以前、継代数の多い細胞を使用すると、BRET比が低下し、ウェル間のシグナルのばらつきが増加する可能性があることを発見しました。
2. 細胞トランスフェクション(2日目)
注:ここでは、細胞にpCMV5-NanoLuc-CRAFおよびpCMV5-14-3-3ζ-Halo発現コンストラクトと、pCDNA3.1エンプティベクターをトランスフェクションします(図2)。
- トランスフェクションの前に、N-BRETプラスミドを5 ng/μLに、pCDNA3.1を100 ng/μLに希釈し、滅菌済みの1.7 mLチューブのセットに番号を付けます。
- 各チューブに100 μLのトランスフェクション培地(詳細は 「材料表 」を参照)を、5 ngのpCMV5-NanoLuc-CRAF、10 ngのpCMV5-14-3-3ζ、および200 ngのPCDNA3.1とともに加えます。
- 2 μLのトランスフェクション試薬(詳細については 、材料表 を参照)を加え、穏やかにボルテックスして混合します。マイクロ遠心分離機でチューブをパルス回転させて、すべての液体がチューブの底に集まることを確認した後、約25°Cで15分間インキュベートします。
- トランスフェクション複合体を細胞に滴下し、37°C/10%CO2 で16〜20時間インキュベートして、Haloタグ付きタンパク質とNanoタグ付きタンパク質を発現させます。
注:エンプティベクター(pCDNA3.1)キャリアDNAの添加は、N-BRET発現コンストラクトの高いトランスフェクション効率を達成するために不可欠です。エンプティベクターを追加しないと、14-3-3ζ-HaloおよびNano-CRAFタンパク質の発現レベルが低下し、前に説明したように、BRET比が弱く一貫性がなくなります22。
3. 細胞再プレーティング(3日目)
注:このステップでは、細胞を384ウェルプレートに移し、Halo 618リガンド(+リガンド; 資料表)または、ステップ4でBRET排出量を読み取るためにDMSO(+vehicle)が追加されます。残りの細胞を新鮮な6ウェル培養プレートに移し、ステップ5でウェスタンブロット分析を行います(図2)。
- 以下の資料を揃え、以下に説明するように作業エリアを準備してください。
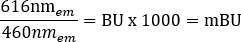
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
このプロトコル(図2)で説明されているように実行すると、Nano-CRAFWT と14-3-3ζ-Haloの相互作用により、50-60 mBUの補正されたBRET比が生成されます(図3A;補足表1)。CRAFには、リン酸化依存性の2つの14-3-3ドッキングサイト、N'サイトとC'サイトが含まれています(図1)8。したがって、CRAF:14-3-3ζ結合を減少させるための適切な制御には、リン酸化を防止するS259AおよびS621Aが含まれ、さらに14-3-3のN'部位およびC'部位へのそれぞれ25の結合が含まれる。 図3Aに示すように、Nano-CRAFS259A はBRET信号を~45%、Nano-CRAFS621A<...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
これまでの研究では、14-3-3タンパク質がRAFキナーゼの活性化と阻害の両方に重要な役割を果たすことが示されています。これらの結合イベントがどのように制御され、これらの相互作用を調節することがRAFシグナル伝達とRAF駆動型発癌に及ぼす影響を理解することで、CRAF機能を標的とする新たな治療上の脆弱性が明らかになるかもしれません。しかし、Rafの活性化サイクルは、多数の関連タンパク質、翻訳後修飾、および細胞内局在の変化によって支えられている8ため、これらの条件を完全に再現するためには、RAFとその調節因子との相互作用を生細胞条件下で測定する必要がある。このプロトコルは、生細胞中の14-3-3ζとCRAFの相互作用を測定するためのナノルシフェラーゼ-Halo N-BRETペアの優れた信号対雑音比とスペクトル分解能を利用する新しい近接ベースのアッセイを説明しています。
このアッセイは、生理学的に適切な条件下での14-3-3とCRAFの複雑な相互作用を研究するために切望されていたプラットフォームを提供しますが、考慮すべきいくつかの制限があ...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
開示するものはありません。
謝辞
このプロジェクトは、プロジェクト番号ZIA BC 010329の下で、国立がん研究所、国立衛生研究所からの連邦資金によって部分的に資金提供されています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| <強い>抗体 | |||
| HaloTag® マウスモノクローナル抗体 | Promega | G9211 | イムノブロットによるHaloTag tagged タンパク質検出用抗体 |
| NanoLuc® マウスモノクローナル抗体 | R&D Systems | MAB10026 | によるナノタグタンパク質検出用抗体 |
| Santa Crus Biotechnology | sc-7267 | イムノブロット | |
| ECL 抗マウス HRP 二次抗体 | Amersham | NA931-1ML | HRP標識マウス二次抗体(ヒツジ由来) |
| Reagents | |||
| X-tremeGENE™ 9 | Roche/Sigma | 6365809001 | |
| NanoBRET™ キット | プロメガ | N1661 | Halo 618リガンドとNanoGlo(ナノルシフェラーゼ)基質を含むNanoBRETキット |
| DPBS、Ca++およびMg++なし | 質の高い生物製剤 | 114-057-101 | |
| トリプシン-EDTA(0.05%)、フェノールレッド | ライフテクノロジー | 25300120 | |
| DMEM細胞培養培地 | ライフテクノロジー | ズ 11995073 | 高グルコース、L-グルタミン、フェノールレッド、ナトリウム ピルビン酸なし、HEPESなし、10%FBS、2 mM L-グルタミン、100Uペニシリン-ストレプトマイシン |
| L-グルタミン(200 mM)を添加した補給培地 | ライフテクノロジー | 25030164 | |
| ペニシリン-ストレプトマイシン (10,000 U/mL) | ライフテクノロジーズ | ||
| Opti-MEM™血清培地を減らしました | Gibco | 31985062 | 細胞トランスフェクション用 |
| Opti-MEMは血清培地を減少させ、フェノールレッドは使用しません | Gibco | 11058021 | 3日目の細胞の再プレーティング用。2 mM L-グルタミンと100Uペニシリン-ストレプトマイシン、および10% FBS(示されている場合)を補給します。 |
| Invitrogen トリパンブルーステイン | サーモサイエンティフィック | T10282 | |
| NP40溶解バッファー | N/ | A N/A | 20 mM トリス (pH 8.0)、137mM NaCl、10% グリセロール、 NP40の代替(Milipore、Cat#492016)。4°Cで保管してください。使用直前に、以下のプロテアーゼとホスファターゼを添加してください:20 µMロイペプチン、0.5 mMオルトバニジン酸ナトリウム、0.15 U/mL、1 mM PMSF。 |
| 5x ゲルサンプルバッファー | N/A | N/A | 240 mM Tris (pH 8.0)、9.5% SDS、30% グリセロール、500 mM DTT、3 mM ブロモフェノールブルー。-20°Cで保管してください。 |
| <ストロング>細胞株 | |||
| 293FT細胞(ヒト) | Thermo Scientific | R70007 | |
| DNAベクター | |||
| pCMV5-Nano-CRAF WTおよび変異体 | N/A | N/A | |
| pCMV5-14-3-3ζ-Halo | 該当なし | 該当なし < | |
| STRONG>Equipment< / strong> | |||
| EnVision2104マルチモードプレート | リーダーPerkinElmer2104 | 2104-0010 | 600LPナノブレット &M460/50 nm NanoBRET放射フィルター ルミネッセンス404ミラー、測定高さ6.5mm、測定時間0.1秒 |
| Invitrogen Countess™II 自動セルカウンター | Thermo Scientific | AMQAX1000 | |
| サーモフィッシャーE1-クリップチップ&貿易; マルチチャンネル ピペッター | サーモサイエンティフィック | 4672070 | |
| Software | |||
| GraphPad Prism (version 10.0.3) | グラフパッド | www.graphpad.com | |
| その他 | |||
| ThermoFisher ClipTip マルチチャンネルピペットチップ | サーモサイエンティフィック | ||
| 試薬リザーバー、25 mL分割、滅菌 | トーマスサイエンティフィック | 1228K16 | |
| パーキンエルマー384井戸CulturPlate&貿易; | パーキンエルマー | 6007680 | ホワイト、ポリスチレン、組織培養処理 |
| Countess Cell Counting Chamber スライド | Thermo Scientific | C10228 |
参考文献
- Blasco, R. B., et al. c-Raf, but not B-Raf, is essential for development of K-Ras oncogene-driven non-small cell lung carcinoma. Cancer Cell. 19, 652-663 (2011).
- Blasco, M. T., et al. Complete regression of advanced pancreatic ductal adenocarcinomas upon combined inhibition of EGFR and C-RAF. Cancer Cell. 35, 573-587 (2019).
- Karreth, F. A., Frese, K. K., DeNicola, G. M., Baccarini, M., Tuveson, D. A. C-Raf is required for the initiation of lung cancer by K-Ras(G12D). Cancer Discov. 1, 128-136 (2011).
- Lito, P., et al. Disruption of CRAF-mediated MEK activation is required for effective MEK inhibition in KRAS mutant tumors. Cancer Cell. 25, 697-710 (2014).
- Sanclemente, M., et al. c-RAF ablation induces regression of advanced Kras/Trp53 mutant lung adenocarcinomas by a mechanism independent of MAPK signaling. Cancer Cell. 33, 217-228 (2018).
- Razzaque, M. A., et al. Germline gain-of-function mutations in RAF1 cause Noonan syndrome. Nat Genet. 39, 1013-1017 (2007).
- Pandit, B., et al. Gain-of-function RAF1 mutations cause Noonan and LEOPARD syndromes with hypertrophic cardiomyopathy. Nat Genet. 39, 1007-1012 (2007).
- Terrell, E. M., Morrison, D. K. Ras-mediated activation of the Raf family kinases. Cold Spring Harb Perspect Med. 9 (1), 033746(2019).
- Kondo, Y., et al. Cryo-EM structure of a dimeric B-Raf:14-3-3 complex reveals asymmetry in the active sites of B-Raf kinases. Science. 366, 109-115 (2019).
- Park, E., et al. Architecture of autoinhibited and active BRAF-MEK1-14-3-3 complexes. Nature. 575 (7783), 545-550 (2019).
- Tzivion, G., Luo, Z., Avruch, J. A dimeric 14-3-3 protein is an essential cofactor for Raf kinase activity. Nature. 394, 88-92 (1998).
- Spencer-Smith, R., et al. RASopathy mutations provide functional insight into the BRAF cysteine-rich domain and reveal the importance of autoinhibition in BRAF regulation. Mol Cell. 82, 4262-4276 (2022).
- Martinez Fiesco, J. A., Durrant, D. E., Morrison, D. K., Zhang, P. Structural insights into the BRAF monomer-to-dimer transition mediated by RAS binding. Nat Commun. 13, 486(2022).
- Freeman, A. K., Ritt, D. A., Morrison, D. K. The importance of Raf dimerization in cell signaling. Small GTPases. 4, 180-185 (2013).
- Freeman, A. K., Ritt, D. A., Morrison, D. K. Effects of Raf dimerization and its inhibition on normal and disease-associated Raf signaling. Mol Cell. 49, 751-758 (2013).
- Rushworth, L. K., Hindley, A. D., O'Neill, E., Kolch, W. Regulation and role of Raf-1/B-Raf heterodimerization. Mol Cell Biol. 26, 2262-2272 (2006).
- Garnett, M. J., Rana, S., Paterson, H., Barford, D., Marais, R. Wild-type and mutant B-RAF activate C-RAF through distinct mechanisms involving heterodimerization. Mol Cell. 20, 963-969 (2005).
- Tran, N. H., Wu, X., Frost, J. A. B-Raf and Raf-1 are regulated by distinct autoregulatory mechanisms. J Biol Chem. 280, 16244-16253 (2005).
- Chong, H., Guan, K. L. Regulation of Raf through phosphorylation and N terminus-C terminus interaction. J Biol Chem. 278, 36269-36276 (2003).
- Cutler, R. E., Stephens, R. M., Saracino, M. R., Morrison, D. K. Autoregulation of the Raf-1 serine/threonine kinase. Proc Natl Acad Sci U S A. 95, 9214-9219 (1998).
- Park, E., et al. Cryo-EM structure of a RAS/RAF recruitment complex. Nat Commun. 14, 4580(2023).
- Spencer-Smith, R., Morrison, D. K. Protocol for measuring BRAF autoinhibition in live cells using a proximity-based NanoBRET assay. STAR Protoc. 4, 102461(2023).
- Clark, G. J., et al. 14-3-3 zeta negatively regulates raf-1 activity by interactions with the Raf-1 cysteine-rich domain. J Biol Chem. 272, 20990-20993 (1997).
- Machleidt, T., et al. NanoBRET--A novel BRET platform for the analysis of protein-protein interactions. ACS Chem Biol. 10, 1797-1804 (2015).
- Hekman, M., et al. Dynamic changes in C-Raf phosphorylation and 14-3-3 protein binding in response to growth factor stimulation: differential roles of 14-3-3 protein binding sites. J Biol Chem. 279, 14074-14086 (2004).
- Hatzivassiliou, G., et al. RAF inhibitors prime wild-type RAF to activate the MAPK pathway and enhance growth. Nature. 464, 431-435 (2010).
- Bondzi, C., Grant, S., Krystal, G. W. A novel assay for the measurement of Raf-1 kinase activity. Oncogene. 19, 5030-5033 (2000).
- Spencer-Smith, R., et al. Inhibition of RAS function through targeting an allosteric regulatory site. Nat Chem Biol. 13 (1), 62-68 (2016).
- Roy, S., et al. 14-3-3 facilitates Ras-dependent Raf-1 activation in vitro and in vivo. Mol Cell Biol. 18, 3947-3955 (1998).
- Durrant, D. E., et al. Development of a high-throughput NanoBRET screening platform to identify modulators of the RAS/RAF interaction. Mol Cancer Ther. 20, 1743-1754 (2021).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
