液体クロマトグラフィー高分解能質量分析と組み合わせた 13C6-グルコース標識の開発された方法は汎用性が高く、薬用植物における二次代謝産物の合成に関与する主要な臓器と経路、およびこれらの二次代謝産物の包括的な利用に関する将来の研究の基礎を築きます。
この記事について
サマリー
要約
この論文は、二次代謝物合成に関与する一次臓器を認証するための新しく効率的な方法を提示します。Parispolyphylla var. yunnanensis(Franch.)の最も重要な二次代謝物として手。-Mzt.(PPY)、パリサポニン(PS)はさまざまな薬理活性を持ち、PPYの需要が高まっています。この研究では、葉、根茎、および幹-血管束 13C6-グルコース摂食および非摂食の 4 つの治療法を確立し、パリサポニン VII (PS VII) 合成に関与する主要な臓器を正確に認定しました。液体クロマトグラフィー-質量分析(LC-MS)を組み合わせることにより、さまざまな処理における葉、根茎、茎、根の13C/12C比を迅速かつ正確に計算し、(M+1)-/M-、(M+2)-/M-、(M+3)-/M-、(M+4)-/M−の4種類のPS同位体イオンピーク(M-)比を見つけました。その結果、茎-血管束と根茎の摂食処理の根茎の13C/12Cの比率は、非摂食治療のそれよりも有意に高いことが示されました。非摂食処理と比較して、葉中のPS VII分子(M + 2)-/ M-の比率は、葉および茎-血管束の供給処理の下で有意に増加しました。同時に、非摂食処理と比較して、根茎処理中の葉のPS VII分子(M + 2)-/ M−の比率は有意差を示さなかった。さらに、茎、根、根茎のPS VII分子(M + 2)-/M−の比率は、4つの処理間で差を示さなかった。非摂食処理と比較して、葉の供給処理を受けた葉のパリサポニンII(PS II)分子(M+2)-/M−の比率は有意差を示さず、PS II分子のPS II分子の(M+3)−/M−の比率は低かった。このデータにより、PS VIIの合成の主要な器官は葉であることが確認されました。これは、薬用植物における二次代謝産物の合成に関与する主要な器官と経路の将来の同定の基礎を築きます。
概要
植物における二次代謝産物の生合成経路は複雑で多様であり、非常に特異的で多様な蓄積器官が関与しています1。現在、多くの薬用植物における二次代謝産物の特異的な合成部位と責任のある器官は明確に定義されていません。この曖昧さは、医薬品の収量と品質の両方を最適化するように設計された栽培方法の戦略的な進歩と実施に大きな障害をもたらします。
分子生物学、生化学的、および同位体標識技術は、薬用植物2,3,4,5の二次代謝産物の合成経路と部位を解明するために広く採用されており、これらの方法論のそれぞれは、効率や精度の違いなど、独自の長所と限界を示しています。例えば、分子生物学的アプローチは、生合成経路内の部位を高い精度で特定することができますが、特に時間がかかります。その有用性は、一般に利用可能なゲノム配列を持たない種にとってさらに制約され、これらの技術はそのような場合には実行可能性が低くなる6。対照的に、3C/12C、2H/1H、および18O/16Oのような同位体比を用いた同位体標識技術は、二次代謝産物の合成、輸送、および貯蔵メカニズムを調査するための迅速でアクセス可能な手段を提供する7,8。それらは、葉中の有機化合物と安定同位体の空間分布を明らかにすることができ、それによって葉がライフサイクル9を通じて経験する環境条件の再構築を可能にします。さらに、13C6-グルコース10や13C6-フェニルアラニン11などの外部同位体標識の適用により、炭素標識二次代謝産物の生成が可能になり、その産生と機能についての理解が深まります。
従来の炭素同位体標識技術は、その生合成経路と輸送メカニズムの種特異的な性質により、二次代謝産物の合成に関与する特定の器官を特定するという課題に直面しています。液体クロマトグラフィー質量分析(LC-MS)は、この分野で極めて重要な分析装置として注目を集めており、薬物の化学合成における外因性同位体を追跡し、吸収、分布、代謝、排泄などのin vivoプロセスを調査するための堅牢な方法を提供しています12。LC-MSの優れた感度、率直性、信頼性は、プラント13における二次代謝産物の産生をモニタリングするための理想的な選択肢となっています。近年、LC-MSは、異なるサンプル間での標識効率の評価を可能にする外部同位体標識技術への応用でますます好まれるようになっています。この方法論は、薬用植物における二次代謝産物の合成に関与する主要な器官に関する重要な洞察を提供し、これらの化合物の合成器官を同定するための生物学的方法14,15を非常に補完する役割を果たします。したがって、このアプローチは、さまざまな標本間の標識効率の比較を容易にするだけでなく、植物の二次代謝産物の生成に関与する主要な器官に光を当て、それによってそれらの生合成の理解を深めます。
私たちは、炭素同位体標識とLC-MS検出を組み合わせて、薬用植物の二次代謝産物の合成に関与する主要な器官を特定する新しい方法を導入しました。パリサポニン(PS)は、抗がん作用、免疫調節作用、抗炎症作用など様々な薬理作用を有し16、PPYの需要は高まっている17。そこで、PPY苗を研究対象とし、LC-MS法に伴う13C6-Glucose標識を用いて、葉がパリサポニンVII(PS VII)(図1B)を合成する主要な器官であることを解読しました。私たちのアプローチには、葉、根茎、および茎-血管束への13C6-グルコースの供給と、非摂食制御を含む4つの異なる治療が含まれていました。13C6-グルコースの選択は、呼吸を介して迅速にアセチル補酵素Aに代謝され、PS合成を促進するため、戦略的です。13Cの自然の存在量を利用して、Gas Chromatography-Stable Isotope Ratio Mass Spectrometer(GC-IRMS)システムを利用して、さまざまな植物器官にわたる13C/12C比を評価し、PS VIIおよびParis saponins II(PS II)(図1B)分子の同位体イオンピーク比を分析しました。当社の方法論は、13種類のC標識植物二次代謝物前駆体と最先端の質量分析技術を活用しており、従来の炭素同位体標識法に代わる、よりシンプルで正確な方法を提供します。この新しいアプローチは、薬用植物の二次代謝産物合成に関与する器官の理解を深めるだけでなく、これらの化合物の生合成経路を将来探求するための強固な基盤を築くものです。
プロトコル
1. 実験の準備
- 植物の成長中、温室の相対湿度が75%、昼/夜の温度が20°C / 10°C、日長が昼12時間と夜12時間で構成され、光強度が100μmol・m-2・s-1であることを確認してください。発光ダイオード(LED)ランプを介して放射照度を提供し、LEDランプと植物のキャノピーとの間に30cmの距離を保ちます。
注:日長と光の強度は、雲南省の成長期間中の日照時間数によるものです。放射照度は、量子センサーによって日常的に測定されます( 材料の表を参照)。薬用植物の特性に応じて、環境パラメータに必要な変更を加えます。これらの環境条件が植物の特性と地域の日光プロファイルに基づいて慎重に較正されたら、実験期間中、これらの環境で一貫性を維持することが重要です。環境パラメータを最初に確立した後に任意に変更を加えると、実験の完全性と結果の信頼性が損なわれる可能性があります。 - 水耕栽培アプローチ18を使用して、実験の精度と特異性を確保します。洗浄した2年前のPPY苗(雲南省文山(東経104度11分、北緯23度04分)から収穫)を1/4標準濃度のホーグランドの栄養溶液に3日間浸して適応させてください。
- 指示に従って、ホーグランドの栄養素( 材料の表を参照)溶液を準備します。1.26 gのホーグランド粉末と0.945 gの硝酸カルシウム粉末を4 Lの精製水に加えます。.標準マニュアルに記載されているように 、13C6-グルコース( 材料の表を参照)溶液を準備します。0.2 gの 13C6-Glucose粉末を100 mLの精製水またはHoaglandの栄養溶液に加えます。.
- 水耕栽培タンクと酸素ポンプを準備します(図2; 材料の表を参照)。
注:水耕栽培のセットアップでは、ラベリングに 13C6-グルコース溶液を利用すると、土壌微生物の影響が回避され、それにより、溶液が薬用植物の二次代謝産物の迅速な合成に直接貢献することが保証されます。植物による 13C6-グルコースの吸収条件を最適化するには、酸素ポンプの流量を4〜8 L / minに調整することが不可欠です。この制御された流量は、苗木が水面上に浮かぶのを防ぐために重要であり、 13C6-グルコースを効果的に吸収する能力を大幅に妨げる可能性があります。苗木を正しい深さに沈めておくことで、標識化合物を効率的に取り込むことができ、水耕栽培システムにおける代謝物合成プロセスの成功を確実にすることができます。
2. カーボンラベリング実験運用
- 4つの処理を設定し、PS VIIおよびPS IIの合成器官と経路をPPYで追跡して、葉がPSを合成するための主要な器官であることを実証します。
- 処理1では、PPY苗は非摂食です。処理2では、PPY苗の葉に0.2%13C6-グルコースをスプレーします。処理3では、PPY苗の根茎に0.2%13C6-グルコースを供給します。処理3では、茎の切開部にあるPPY苗に0.2%13C6-グルコースを供給します(図2A)。
注: 治療 1 は対照群として設定されます。処理2は、葉がPSを合成できることを実証するように設定されています。処理3および4は、根茎が13C6-グルコースを取り込むことができることを実証するように設定されています。 - 処理1と2では、PPYの苗を通常のホーグランドの栄養溶液で培養します。0.2% 13C6-Glucose溶液5 mLを午前、午後、夕方に1回、Treatment 2の葉にスプレーします。
- 処理3および4では、0.2% の13C6-グルコースを含むHoaglandの栄養溶液でPPY苗を培養します。治療4では、メス( 材料表を参照)を使用して、PPY苗の茎を中央から切り取りますが、血管束は付着したままにします。
- 各治療に3日間ラベルを付け、1.5日ごとに栄養溶液を交換します。ランダム化されたブロック設計を使用して実験を行い、各処理を3回繰り返します。
注意: 葉をスプレーするときは、スプレーした葉の後ろに吸収紙を置くことが重要です。これにより、水滴が下の栄養溶液に落ちるのを防ぎ、実験結果に影響を与える可能性があります。茎の切り傷はすべて取り除かれているわけではありませんが、肉眼で見える導管が取り付けられています。
- 処理1では、PPY苗は非摂食です。処理2では、PPY苗の葉に0.2%13C6-グルコースをスプレーします。処理3では、PPY苗の根茎に0.2%13C6-グルコースを供給します。処理3では、茎の切開部にあるPPY苗に0.2%13C6-グルコースを供給します(図2A)。
3. サンプリングと調製方法
- 3日間の 13C6-Glucose実験の終わりに、各処理から葉、茎、根茎、および根を別々に収集します。.集めた植物器官をよく洗って、表面の不純物を取り除きます。
注: 13Cの存在量の欠如は、洗浄液のLC-MS分析によって見つけることができ、これは洗浄がクリーンであることを証明しています19。 - 電気恒温ブラスト乾燥オーブン( 材料の表を参照)を使用して、洗浄した植物器官を乾燥させます。105°Cで30分間開始し、その後、重量が一定になるまで60°Cに設定します。乾燥させた植物の臓器を全自動サンプルラピッドグラインダー( 材料の表を参照)を使用して粉末に粉砕します。
注:この粉末は、さまざまな植物器官のPS VII、II、および 13C/12C比の定量分析に使用されます。 - 電子分析天びん( 材料表を参照)を使用して、各サンプルの粉末30 mgを正確に計量し、2 mLの75% v / vエタノール水に入れます。CNC超音波洗浄機( 材料の表を参照)を使用し、25°Cで20分間(60 kHz)超音波抽出を実行し、2回繰り返します。抽出溶液をマージし、3つの並列サンプルを準備します20。
注:サンプル重量の誤差は最小限に抑える必要があります。 - 窒素を使用して抽出溶液をブロードライし、クロマトグラフィーメタノールに1 mLの容量まで溶解します。注入前に、0.22 μmの有機相フィルター( 材料表を参照)を使用してろ過します(図2B)。
注:窒素ガスでブロー乾燥するときは、抽出物を吹き飛ばさないでください。抽出物は、不純物の干渉が最小限に抑えられるように、微多孔質膜を通過する必要があります。
4. LC-MSのセットアップと操作
- MS設定
- 真空ポンプのスイッチをオンの位置に切り替えて、真空ポンプを作動させます。アルゴンガスボンベのメインバルブを開き、分圧バルブを調整して目標圧力約0.3MPaにします。これに続いて、窒素ガスバルブも開いていることを確認します。
- MS 制御ソフトウェアを起動します( 資料の表を参照)。ソフトウェアパネルで加熱されたエレクトロスプレーイオン化源(HESI Source)をクリックし、 キャピラリー電圧 (ネガティブモードで3.0 kV)、 キャピラリー温度 (350°C)、 シースガス (N2) の流量 (35任意の単位)、 補助ガス (N2) の流量 (15任意の単位)などのパラメータを入力します)、PSの分子量に基づくフルスキャン(m / z 100-1,500で操作)を通じて。 Apply ボタンをクリックして、イオン源をアクティブにします。
注:実験条件に対して十分な真空度を確保するために、少なくとも8時間待ちます。分析前に、アルゴンと窒素のガス圧が十分に高いことを確認してください。
- LCプリラン
- 0.1% ギ酸を水と混合して移動相 A を調製し、移動相 B にはアセトニトリルを使用します( 材料の表を参照)。溶存ガスを除去するために、超音波浴超音波装置で15分間両方の相を脱気します。次に、移動相Aをそれぞれの流体通路に接続し、移動相Bで同じことを行います。最後に、クリーンアウト液に1:9 v / vメタノール-水溶液を混合し、ポンプとインジェクターボトルを手動で充填します。
注: 超音波浴超音波発生器 の周波数は 40kHzです。
- 0.1% ギ酸を水と混合して移動相 A を調製し、移動相 B にはアセトニトリルを使用します( 材料の表を参照)。溶存ガスを除去するために、超音波浴超音波装置で15分間両方の相を脱気します。次に、移動相Aをそれぞれの流体通路に接続し、移動相Bで同じことを行います。最後に、クリーンアウト液に1:9 v / vメタノール-水溶液を混合し、ポンプとインジェクターボトルを手動で充填します。
- LCメソッドの確立
- 「Instrument Setup」ボタンを選択して、メソッド編集ウィンドウにアクセスします。
- 「New」ボタンを押して、新しい LC-MS 装置メソッドの作成を開始します。
- LC メソッドの合計実行時間を設定します。次に、 分析法編集ウィンドウ内で、圧力限界、総流量、流量グラジエント、サンプル温度、カラム温度、および準備温度デルタに必要な値を入力します。
注:LC-MS 装置メソッドの設定は、対象の分析種と使用する液体クロマトグラフィーカラムのタイプに合わせて調整されます。最適な結果を得るには、流速 0.3 mL/分 を使用し、BEH C18 カラムを 40 °C に維持します( 材料表を参照)。グラジエント溶出は、 10% Bから始まり、 8分間で30% Bまで直線的に増加し、 8分から16分までは45% Bまで、 16分から24分までは50% Bまで、 24分から30分までは70% Bまで上昇するように構成されます。この直後に、グラジエントを 0.1分以内に最初の10%B条件に戻し、さらに2.9分間そのままにします。各分析で5 μLのサンプル量を注入します。LC-MS装置メソッドの設定は、分析する特定の物質と使用する液体クロマトグラフィーカラムの種類によって異なります21。
- MS取得
- 「Settings」タブで、MS メソッド設定として「General MS」または「MSn experiment」タイプを選択します。必要な値を入力して、取得時間、極性(正または負)、質量範囲ダイバートバルブ番号、およびダイバートバルブの持続時間を設定します。これらの詳細を入力したら、「保存」ボタンをクリックして、これらの設定を確定し、インストゥルメントメソッドとして保存します。
注:クロマトグラフィーカラムを使用しないデフォルト設定は次のとおりです:取り込み時間、2分。極性、正または負;質量範囲、100〜1,500。
- 「Settings」タブで、MS メソッド設定として「General MS」または「MSn experiment」タイプを選択します。必要な値を入力して、取得時間、極性(正または負)、質量範囲ダイバートバルブ番号、およびダイバートバルブの持続時間を設定します。これらの詳細を入力したら、「保存」ボタンをクリックして、これらの設定を確定し、インストゥルメントメソッドとして保存します。
- 従来の方法に従って多段質量分析を行います。
- 多段質量分析でのデータ収集には、常にデータ依存型取得(DDA)モードを使用します。 DDAモードでは、質量分析計はタンデムMSの第1段階で各スキャン中に最も強度の高い5つのイオンを同定し、その後、タンデム質量分析の第2段階で断片化して検査します。
注:収集されたMSおよびMS/MSデータは、その後の分析やデータベース検索に使用できます。
- 多段質量分析でのデータ収集には、常にデータ依存型取得(DDA)モードを使用します。 DDAモードでは、質量分析計はタンデムMSの第1段階で各スキャン中に最も強度の高い5つのイオンを同定し、その後、タンデム質量分析の第2段階で断片化して検査します。
5. 手動によるデータ取得、解析、計算
- データ集録と解析
- 生のファイルをダブルクリックして、MSからすべての質量スペクトルを開き、イオンと対応するフラグメントイオンとの間のm/z差値を手動で計算します。
- コントロールおよびサンプル処理とブランクの生データファイルを質量分析分析ソフトウェアにインポートし、PSの質量とフラグメントを正確に計算してPSを特定します。
注:PS VIIおよびPS IIは、保持時間および真正標準溶液の共溶出との比較によって識別されます。LC-MSは、分子イオンピークの位置で一連の小さなピークを検出します。同位体イオンピークの各系列の比率は一定です。外因性の13C同位体が与えられると、植物の総存在量13Cが増加し、植物の二次代謝産物の一連の同位体イオンピークの比率が変化します。質量誤差の最大許容誤差は5ppmに設定されています。 - m/z 500-1,500の質量範囲をスキャンして、基本ピークを特定します。標的分子の正確な分子量と保持時間に応じて、小数点以下4桁までの正確な分子量を決定します。直列同位体イオンフローのピーク面積を検索し、M-、(M+1) −、(M+2) −、(M+3) −、(M+4) −の値を導き出します。移動相にギ酸が含まれている場合、マイナスイオンには(M+COOH) -、(M+COOH+1) -、(M+COOH+2) -、(M+COOH+3) - 、(M+COOH+4) -も含まれます。
注:m/z 500-1,500 の質量範囲内のピークを選択すると、PS VII および PS II の分子イオンピークの同定精度が向上します。例えば、PS VII(C51H82O21, 1030.5349)の負イオン質量スペクトルは、主にギ酸-水混合物中のCOOH− イオンとイオン化します。観測された系列同位体イオンは、1029.53-、1030.54-、1031.54-、1032.55-、1033.55-を含み、1079.56-まで伸びています。
- データ計算
- 13Cの自然存在量の影響を減らすには、特に(M + 1)-/ M-、(M + 2)-/ M-、(M + 3)-/ M-、および(M + 4)-/ M-の比率に焦点を当てて、さまざまな処理の下で各臓器の標識イオン電流と非標識イオン電流の比率を計算します。標識された同位体と天然に存在する同位体を区別して13Cの取り込みを正確に評価するには、式(1)を使用してn = 1、2、3、4のこれらの比率を計算します。
レシオ = A (M+2) −/ AM− (1)
PS:(M + 2) − (M + 2 + COOH) − および(M + 2) −を含む。M− には、(M + COOH) - およびM−が含まれます。
注:ここで、M− は、(M + COOH) − およびM −のイオン電流の組み合わせピーク面積を指し、主にギ酸水中でCOOH− でイオン化されます。 A は ピーク面積を表します。たとえば、PS VII比を計算する式は次のように示されています。
比率+1 = (A1030.54+A1076.55)/(A1029.53+A1075.55)
比率+2 = (A1031.54+A1077.55)/(A1029.53+A1075.55)
比率+3 = (A1032.55+A1078.56)/(A1029.53+A1075.55)
比率+4 = (A1033.55+A1079.56)/(A1029.53+A1075.55)
- 13Cの自然存在量の影響を減らすには、特に(M + 1)-/ M-、(M + 2)-/ M-、(M + 3)-/ M-、および(M + 4)-/ M-の比率に焦点を当てて、さまざまな処理の下で各臓器の標識イオン電流と非標識イオン電流の比率を計算します。標識された同位体と天然に存在する同位体を区別して13Cの取り込みを正確に評価するには、式(1)を使用してn = 1、2、3、4のこれらの比率を計算します。
結果
根茎への 13C6-グルコース供給が成功したことを確認するために、根茎における 13C/12C同位体比をさらに分析しました。処理3および4の 13C / 12C同位体比は、処理2の同位体比よりもはるかに高かった(図1A)。その結果、治療3および4の 13C6-グルコースが摂取により根茎に侵入したことが示されました。
(M+1) −/M−、(M+2) −/M−、(M+3) −/M−、(M+4) −/M− などの 13C 同位体ピークの比は、通常、一定のままです。外因的に添加された13Cで標識された化合物は、標識されていない化合物と同じ分子構造、分子量、物理化学的特性、および保持時間を持ちます。しかし、これらの標識化合物を質量分析法で分析すると、同位体イオンピークの比率が変化しました。私たちの研究では、LC-MS を使用して、さまざまな処理で PPY の 4 つの異なる臓器の PS VII と PS II を検出しました(図 3)。治療1と比較して、結果は、外因性13Cで処理されたPPYの葉中のPS VII(M + 2)-/M−の比率の有意な増加を示しました(図3B)。特に、PPY葉に13C6-Glucoseを噴霧した処理2では、2つの13C原子でマークされたPS VIIが合成されました。しかし、処理 4 では、葉中の PS VII 分子 (M+2) -/M- の比率は、根茎処理と非摂食処理との間に有意差はなく、PS VII 分子 (M+1) -/M-、(M+3) -/M-、(M+4) -/M-の比率は、4 つの処理すべてで有意差を示さなかった (図 3A、C,D)。さらに、PS II分子(M+2)−/ M−の比率は、処理2でゆっくりと増加しました(図3F)。処理1と2の間の葉のPS II分子(M + 1)-/M−および(M + 4)-/M−の比率に顕著な違いはありませんでした(図3E、H)一方、PS II分子(M + 3)-/ M−の比率は、処理1(図3G)と比較して処理2の葉の顕著な減少を示しました。これらの知見は、PS VIIの合成が実際に13C6-グルコースで処理された葉で起こり、PSの既知の生合成経路と一致することを示唆しています。
私たちのアプローチは、葉がPPYにおけるPS VII合成の主要な器官であることを示唆しており、PS IIの合成とは対照的です。特に、13C6-グルコースによる葉処理後の根茎には13C標識PS VIIが存在せず、葉から根茎へのPS VIIの輸送が遅いことを示唆しています。対照的に、13個のC標識PS IIは、幹-血管束および根茎標識処理後の根茎で検出され、この段階での根茎合成の可能性を示しており、PS II合成位置のさらなる調査が必要です。葉中のPS VII分子の(M+2)-/M−比の排他的な検出は、13C6-グルコースの代謝運命と一致します。吸収後、解糖系によって代謝され、2つの13°C同位体を持つアセチルCoAが生成されます。PSをイソプレノイド化合物とすると、アセチルCoAからの生合成は、メバロン酸(MVA)または2-C-メチル-D-エリスリトール-4-リン酸(MEP)経路(図4)のいずれかを介して進行し、(M+2)-/M-PS VIIの形成につながります。したがって、私たちの研究では、葉をPPYでのPS VII合成の決定的な器官として描写します。

図1:4つの処理の根茎における13C /12C同位体の比率 (A)処理4および3の根茎中の13C /12C同位体の比は、処理1および2のそれよりもはるかに高く、13C6-グルコースが根の摂食を通じて根茎に有意に侵入したことを示している。各列は、3 つの反復の平均 (± SE) を表します。列の文字は、4つの処理で13C/12C同位体の比率が大きく異なることを意味します(p < 0.05)。略称:PS=パリサポニン。(B)PS VII(C51H82O21, 1030.5349)の高分解能質量分析は、16.83分の保持時間でその負イオンを検出した。13Cの自然な存在量(正確な分子量は13.003、12.000の12Cと比較して)により、PS VII分子イオンピークM−と同じ保持時間に、主に(M+1)−、(M+2)−、(M+3)−、および(M+4)−を含むさまざまな同位体ピークが現れます。これらのピークは、主にギ酸水中のCOOH−イオン化によるものでした。拡大された棒グラフは、これらの同位体ピークを強調しています。(M+1)-/M-、(M+2)-/M-、(M+3)-/M-、(M+4)-/M−のイオン電流比を計算した。これらの比率の変化を解析することで、サポニンの生合成を追跡し、推測することができます。ここで、M−は(M+COOH)-とM−のイオン電流の合計ピーク面積を表しました。図1Bは、Wen et al.24から修正されました。この図の拡大版を表示するには、ここをクリックしてください。

図2:13C6-グルコース標識およびデータ統合ワークフロー。 苗木は、0.2%13C6-グルコースを3日間噴霧して給餌することにより標識した。次に、各臓器からの抽出物をLC/MSおよびGC/IRMSで同位体分析し、ピーク波形解析およびデータと組み合わせてPS合成の臓器特異的解析を行いました。(A)異なる臓器におけるグルコースの供給を示す概略図。処理1〜4は非摂食で、それぞれ葉、茎-血管束、および根茎で給餌しました。(B)乾燥したPPY組織から抽出された液体を粉砕および窒素ブロー装置でLC-MS分析するためのステップ。略語:LC / MS =液体クロマトグラフィー-質量分析;PPY = Parispolyphylla var. yunnanensis (フランス)手。-Mzt.;PS = パリサポニン。この図の拡大版を表示するには、ここをクリックしてください。
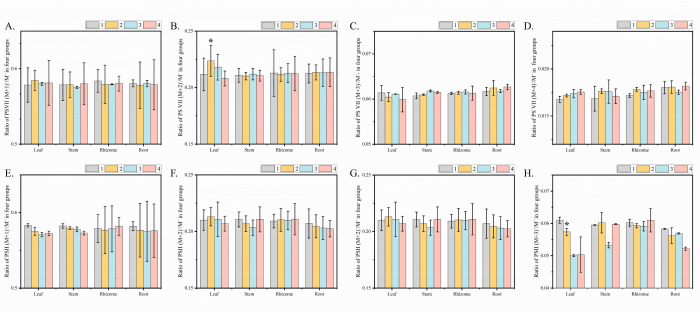
図3:植物器官の13C6-グルコース供給によるパリサポニンVIIおよびパリサポニンII生合成の追跡。 (A-D)4つの処理の各器官におけるPS VII分子(M + 1)-/M-、(M + 2)-/M-、(M + 3)-/M-、(M + 4)-/M−の比率。PS VII分子(M + 2)-/M-の比率は、処理2と処理3の葉で有意に増加しました。茎、根茎、根茎では、PS VII分子(M + 2)-/ M-の比率は、4つの処理間で明らかな違いは示されませんでした。(E-H)4つの処理の各器官におけるPS VII分子(M + 1)-/M-、(M + 2)-/M-、(M + 3)-/M-、(M + 4)-/M−の比率。処理1と比較して、葉のPS II分子(M + 2)-/ M-の比率は、処理2の下で差がありませんでした。処理2では、PS II分子(M + 1)-/M−および(M + 4)-/M-の比率は、処理1と比較して葉に明らかな違いはありません。PS II分子(M + 3)-/M-の比率は、処理1と比較して葉で減少しています。パリサポニンVII、PS VII。各列は、3 つの反復の平均 (± SE) を表します。「*」は非摂食処理との有意差を示しました(p < 0.01でのt検定)。略称:PS=パリサポニン。この図の拡大版を表示するには、ここをクリックしてください。

図4:MVA経路に入る外因性の13C6-グルコースによって生成されたPS VIIの説明。 MVA経路を介してPS VII分子(M + 2)−/M−を生成するための13C6-グルコース標識アセチル補酵素Aの代謝の模式図。ラベル付きのカーボンは赤で示されています。ラベルのないカーボンは灰色です。解糖の作用下で、13C6-グルコースはアセチル補酵素A(M + 2)-の2分子に切断され、次にMVA経路を介してイソペンテニルピロリン酸とジメチルプロペニルピロリン酸を生成し、次にゲラニルゲラニルピロリン酸シンターゼ、ファルネシルピロリン酸シンターゼ、スクアレンシンターゼ、スクアレンエポキシゲナーゼ、シクロアテノールシンターゼシクロアルテノールの触媒生成を介して環状アテノールを生成します。 その後、酸化、脱カルボキシル化、還元およびコレステロールを得るための他の反応、一連のシトクロムP450酵素、グリコシルトランスフェラーゼおよびフロスタノイドサポニン26-O-β-グルコシダーゼを介してコレステロールを得る2つの標識炭素を含むPS VII分子の形成の後期修飾。(M+2)- は、この時点で 2 つの炭素の COOH- がイオン化されており、2 つの炭素のラベルの数は (M+2) −/M- を使用して導き出すことができることを示します。標準プロトコルを使用して、同位体体を個別に同定し、イオン電流を分割して同位体の標識データを取得しました。M− の値は安定しています。略語:PS = パリサポニン;PS VII = パリのサポニン VII;MVA = メバロン酸経路;GPPS = ゲラニルゲラニルピロリン酸シンターゼ;FPPS = ファルネシルピロリン酸シンターゼ;SQS = スクアレン合成酵素;SQE = スクワレン エポキシゲナーゼ;CYPs = シトクロムP450酵素;UGTs = グルクロントランスフェラーゼ;F26G = フロスタノイドサポニン 26-O-β-グルコシダーゼ。この図の拡大版を表示するには、ここをクリックしてください。
ディスカッション
このプロトコルを成功裏に実施できるかどうかは、植物の生理学的特性、組織、器官、および二次代謝産物に関する包括的な研究にかかっています。このプロトコルで概説されている実験デザインアプローチは、植物の二次代謝産物の生合成経路を調査するための強固な基盤を築きます。この実験で重要なのは、(1)多年生の苗の年齢を決定すること、(2)正しい同位体標識検出タイミングを選択することです。薬用植物は多年生植物と一年生植物に分類され、それぞれが二次代謝産物の合成と蓄積のパターンが異なります。本実験は、薬用植物における二次代謝産物の一次合成器官を、これらの代謝産物の合成速度を解析することにより明らかにすることを目的としています。したがって、これらの合成パターンと速度に対応する成長年と成長段階を慎重に選択することが不可欠です。
PPYは多年生の薬用植物で、PSの含有量は年々蓄積されます。しかし、PS合成の速度は多年生植物のPPY22と変わらないことが示されました。同時に、2歳の苗木のサイズが古い苗木に比べて小さいため、水耕栽培が容易になります。そこで、この研究では2年前のPPYの苗木を使用しました。これにより、選択した植物が最も高い二次代謝産物合成率を示すことが保証されます。異なる種間での二次代謝産物の合成および輸送速度の変動を認識することは極めて重要である23。ラベリング検出期間の最適な長さは、これらのレートによって決まります。研究によると、PPY葉中の砂糖とPSの含有量は3日以内に減少することが分かっています24、PSの輸送プロセスは分子量が大きいため、この時間枠内に完了する可能性が低いことを示唆しています。治療期間が数時間未満の場合、標識PS 5,25の合成および検出が不十分になる可能性があります。逆に、治療を3日を超えて延長すると、PSが葉から根茎に移されるリスクがあり、実験結果が歪む可能性があります。したがって、特に葉の噴霧および根茎の標識方法において、臓器の干渉を最小限に抑えるために3日間の中間標識期間が選択され、それによりより正確な実験結果が保証されます。
Nicotiana tabacum 26,27およびBrassica napus28に関する以前の同位体標識研究では、13C 6-グルコースの吸収と植物組織への統合が成功したことが示されていました。私たちの研究では、水耕栽培された2歳のPPY苗に焦点を当て、葉、根茎、茎血管束に対する13C6-Glucose摂食処理と、制御非摂食処理を実施しました。LC-MS 検出を用いたところ、標識後 3 日目までに、幹-血管束および根茎の摂食処理による根茎の 13C/12C 比が、摂食でない対照群よりも有意に高かったことがわかり、効果的な 13C6-グルコースの同化と標識アプローチの成功が確認されました(図 2).本研究では、(M+1) −/M−、(M+2) −/M−、(M+2) −/M−、(M+3) −/M−、(M+4) −/M−の4種類のPS VII分子とPS II分子の同位体イオンピーク比を同時に解析しました。重要なことに、葉の標識処理では、葉のPS VII分子(M + 2)-/M-の比率が非摂食処理よりも著しく高かったことが観察されました。根茎の下の葉と非摂食処理中のPS VII分子(M + 2)-/M−の比率は違いはありません(図3B)。また、非摂食処理と比較して、葉哺育処理中のパリサポニンII(PS II)分子(M+2)−/M−の比率は有意差なく、PS II分子(M+3)−/M−の葉哺育処理中の葉の比率は低かった(図3G)。茎-血管束および根茎標識処理は、非摂食処理と比較して、根茎中のPS II分子(M + 1)-/M−および(M + 4)-/M−の比率に有意差を示しました(図3E、H)。
このアプローチを他の薬用植物に適合させる場合、植物の主要な二次代謝産物の前駆体に合わせたマーカー化合物を選択し、マーカーの特異性を確保することが重要です。標的化合物が主にステム内で合成される場合、標識化合物はステムに効率的に輸送され、ステム内で代謝される能力を備えている必要があります。PS VIIの(M+2) −/M− などの予想される同位体比が存在しない場合は、合成経路を再評価し、標識化合物の適合性を確認します。栄養溶液中の標識化合物の濃度は、目的の臓器内での標的化合物への適切な取り込みと統合を確保するために調整が必要な場合があります。LC-MS 検出パラメーターは、目的の特定の標識代謝物を効果的に検出するために最適化が必要な場合があります。これには、イオン化モードなどの質量分析設定を調整して、調査対象の植物種や臓器に固有の化合物の感度と特異性を高めることが含まれる場合があります。茎-血管束および根茎標識処理により根茎で 13C/12C比が検出されない場合は、Hoagland栄養溶液中の 13C6-グルコースの濃度と標識期間を、検出可能になるまで増加させる必要があります。この研究で確立された 13のC6-Glucoseの供給方法と分析技術は、さまざまな薬用植物の二次代謝産物の合成器官を特定するための結果の分析と解釈を導くはずです。
この実験における葉、根茎、および幹-血管束に対する 13C6-グルコース摂食および非摂食処理は、従来の炭素同位体標識法と比較して、二次代謝産物の合成器官の同定においてより高い特異性を提供します。しかし、課題は残っています。重要な制限の1つは、すべての薬用植物に適した画一的なラベリング検出時間枠がないことです。最適な時間枠を選択することで、ラベリングの有効性が向上します。さらに、比率を使用して結果を解析すると、大きくて複雑な異性体における官能基位置の区別が複雑になります。したがって、この方法論を採用する前に、徹底的な文献レビューと予備実験を行うことをお勧めします。この戦略は、精度と効率性を確保するだけでなく、植物生物学と薬理学にも大きな影響を与えます。この手法を、有機化合物の構造を分析するための主要な技術である核磁気共鳴分光法と統合することで、 13Cの標識位置を正確に特定できます。この方法は、植物の二次代謝産物の生合成経路を探索する道を開き、薬用植物の二次代謝産物の合成における臓器特異性を決定するための詳細かつ効果的なアプローチを提示します。
開示事項
著者は、競合する金銭的利益を宣言しません。
謝辞
この研究は、中国国家自然科学基金会の青少年プログラム(第82304670号)の資金提供を受けました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.1 % ギ酸水 | 成都 Kelong 化学試薬工場 | 44890 | |
| 13C6-グルコース粉末 | MERCK | 110187-42-3 | |
| アセトニトリル | 成都 Kelong 化学試薬工場 | 44890 | |
| オートサンプラー バイアルス | バイオシャープ バイオテクノロジー カンパニー | 44866 | |
| BEH C18コラム | ウォーターズ、ミルフォー、マサチューセッツ | 1.7μm、2.1 * 100 mm | |
| CNC超音波洗浄機 | 昆山超音波機器有限公司 | KQ-600DE | |
| Compound DiscovererTM ソフトウェア | Thermo Scientific, Fremont,CA | 3 | |
| Compound DiscovererTM ソフトウェア | Thermo Scientific、フリーモント、CA | 3 | |
| 電気恒温ブラスト乾燥オーブン | DHG-9146A | ||
| 電子分析天秤 | Sedolis Scientific Instruments Beijing Co.、Ltd | SOP | |
| エタノール | 成都克隆化学試薬工場 | 44955 | |
| 自動サンプル急速グラインダー | 上海Jingxin | テクノロジーTissuelyser-48 | |
| ガスクロマトグラフィー-安定同位体比質量分析計 | サーモフィッシャー | デルタVアドバンテージ | |
| ホーグランドソリューション | シグマ-アルドリッチ | H2295-1L | |
| 水耕タンク | JRD | 1020421 | |
| Isodat ソフトウェア | Thermo Fisher Scientific | 3 | |
| 液体クロマトグラフィー 高分解能質量分析 | Agilent Technology | アジレント 1260 -6120 | |
| 窒素製造装置 | PEAK SCIENTIFIC | Genius SQ 24 | |
| 相フィルター | 津Jinteng実験装置有限公司 | 44890 | |
| 酸素ポンプ | マジックドラゴン | MFL | |
| 量子 | センサーHighpoint | UPRtek | |
| ハンドキット | 11-23 | ||
| プリンクリング缶 | 中紙 | WJ-001 | |
| Xcalibur ソフト | サーモフィッシャーサイエンティフィック | 4.2 |
参考文献
- Erb, M., Kliebenstein, D. J. Plant secondary metabolites as defenses, regulators, and primary metabolites: The blurred functional trichotomy. Plant Physiol. 184 (1), 39-52 (2020).
- Li, Y., Kong, D., Fu, Y., Sussman, M. R., Wu, H. The effect of developmental and environmental factors on secondary metabolites in medicinal plants. Plant Physiol Biochem. 148, 80-89 (2020).
- Liu, S., et al. Genetic and molecular dissection of ginseng (panax ginseng mey.) germplasm using high-density genic snp markers, secondary metabolites, and gene expressions. Front Plant Sci. 14, 1165349(2023).
- Chen, X., Wang, Y., Zhao, H., Fu, X., Fang, S. Localization and dynamic change of saponins in cyclocarya paliurus (batal.) iljinskaja. PloS One. 14 (10), e0223421(2019).
- Yuan, M., et al. Ex vivo and in vivo stable isotope labelling of central carbon metabolism and related pathways with analysis by lc-ms/ms. Nat Protoc. 14 (2), 313-330 (2019).
- Cavalli, F. M. G., Bourgon, R., Vaquerizas, J. M., Luscombe, N. M. Specond: A method to detect condition-specific gene expression. Genome Biol. 12 (10), 101(2011).
- Epron, D., et al. Pulse-labelling trees to study carbon allocation dynamics: A review of methods, current knowledge and future prospects. Tree Physiology. 32 (6), 776-798 (2012).
- Varman, A. M., He, L., You, L., Hollinshead, W., Tang, Y. J. Elucidation of intrinsic biosynthesis yields using 13c-based metabolism analysis. Microb Cell Fact. 13 (1), 42(2014).
- Meng-Meng, G., Zhen-Yu, Z., Yu, Z., Qiu-Lin, Y., Ying, W. Systematic extraction and stable isotope determination of different biomarkers from single leaf of reticulate vein plants. Journal of Shaanxi University of Science & Technology. 41 (01), 72-79 (2023).
- Zhang, H., et al. A convenient lc-ms method for assessment of glucose kinetics in vivo with d-[13c6]glucose as a tracer. Clin Chem. 55 (3), 527-532 (2009).
- Chassy, A. W., Adams, D. O., Waterhouse, A. L. Tracing phenolic metabolism in vitis vinifera berries with 13c6-phenylalanine: Implication of an unidentified intermediate reservoir. J Agric Food Chem. 62 (11), 2321-2326 (2014).
- Lozac'h, F., et al. Evaluation of cams for 14c microtracer adme studies: Opportunities to change the current drug development paradigm. Bioanalysis. 10 (5), 321-339 (2018).
- Sulyok, M., Stadler, D., Steiner, D., Krska, R. Validation of an lc-ms/ms-based dilute-and-shoot approach for the quantification of > 500 mycotoxins and other secondary metabolites in food crops: Challenges and solutions. Anal Bioanal Chem. 412 (11), 2607-2620 (2020).
- Serra, F., et al. Inter-laboratory comparison of elemental analysis and gas chromatography combustion isotope ratio mass spectrometry (gc-c-irms). Part i: Delta13c measurements of selected compounds for the development of an isotopic grob-test. J Mass Spectrom. 42 (3), 361-369 (2007).
- Jung, J. -Y., Oh, M. -K. Isotope labeling pattern study of central carbon metabolites using gc/ms. J Chromatogr B Analyt Technol Biomed Life Sci. 974, 101-108 (2015).
- Ding, Y. G., et al. The traditional uses, phytochemistry, and pharmacological properties of paris l. (liliaceae): A review. J Ethnopharmacol. 278, 114293(2021).
- Cunningham, A. B., et al. Paris in the spring: A review of the trade, conservation and opportunities in the shift from wild harvest to cultivation of paris polyphylla (trilliaceae). J Ethnopharmacol. 222, 208-216 (2018).
- Madikizela, L. M., Ncube, S., Chimuka, L. Uptake of pharmaceuticals by plants grown under hydroponic conditions and natural occurring plant species: A review. Sci Total Environ. 636, 477-486 (2018).
- Tagami, K., Uchida, S. Online stable carbon isotope ratio measurement in formic acid, acetic acid, methanol and ethanol in water by high performance liquid chromatography-isotope ratio mass spectrometry. Anal Chim Acta. 614 (2), 165-172 (2008).
- Li, Y., et al. The combination of red and blue light increases the biomass and steroidal saponin contents of paris polyphylla var. Yunnanensis. Ind Crops Prod. 194, 116311(2023).
- Wang, G., et al. Tissue distribution, metabolism and absorption of rhizoma paridis saponins in the rats. J Ethnopharmacoly. 273, 114038(2021).
- Peng, S., et al. Progress in the study of differences in the types and contents of steroidal saponins in paris. Polyphylla smith var. Chinensis (franch.) hara. Modernization of Traditional Chinese Medicine and Materia Medica-World Science and Technology. 24 (05), 2014-2025 (2022).
- Alami, M. M., et al. The current developments in medicinal plant genomics enabled the diversification of secondary metabolites' biosynthesis. Int J Mol Sci. 23 (24), 15932(2022).
- Wen, F., et al. The synthesis of paris saponin vii mainly occurs in leaves and is promoted by light intensity. Front Plant Sci. 14, 1199215(2023).
- Siadjeu, C., Pucker, B. Medicinal plant genomics. BMC Genomics. 24 (1), 429(2023).
- Tian, C., et al. Top-down phenomics of arabidopsis thaliana: Metabolic profiling by one- and two-dimensional nuclear magnetic resonance spectroscopy and transcriptome analysis of albino mutants. J Biol Chem. 282 (25), 18532-18541 (2007).
- Masakapalli, S. K., et al. Metabolic flux phenotype of tobacco hairy roots engineered for increased geraniol production. Phytochemistry. 99, 73-85 (2014).
- Schwender, J., Ohlrogge, J. B., Shachar-Hill, Y. A flux model of glycolysis and the oxidative pentosephosphate pathway in developing brassica napus embryos. J Biol Chem. 278 (32), 29442-29453 (2003).
再版と許可
タグ
