このプロトコルは、ラパマイシン制御ホスファターゼの設計、作成、および適用について説明しています。この方法は、生細胞におけるホスファターゼ活性化の高特異性と厳密な時間制御を提供します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
チロシンホスファターゼは、重要な生理機能を調節する酵素の重要なファミリーです。それらはしばしば人間の病気で調節不全であり、生物学的研究の主要な標的となっています。ホスファターゼ活性の調節を可能にするツールは、その機能の解剖に役立ちます。構成的に活性なネガティブ変異体やドミナントネガティブ変異体の過剰発現や、siRNAを用いたダウンレギュレーションなどの従来のアプローチは、時間的な制御を欠いています。ホスファターゼ阻害剤は特異性が低いことが多く、研究者はホスファターゼの阻害によってどのプロセスが影響を受けるかを判断することしかできません。
私たちは、ホスファターゼ活性化の厳密な時間的制御を可能にするホスファターゼ触媒ドメインのアロステリック制御を可能にする化学遺伝学的アプローチであるラパマイシン制御(RapR)システムを開発しました。RapRシステムは、ホスファターゼのアロステリック部位に挿入されたiFKBPドメインで構成されています。RapRドメインの固有の構造ダイナミクスは、触媒ドメインを破壊し、酵素の不活性化につながります。ラパマイシンの添加は、iFKBPと共発現したFRBタンパク質との間の複合体の形成を媒介し、これによりiFKBPが安定化し、ホスファターゼの触媒ドメインの活性が回復します。
このシステムは、生細胞におけるホスファターゼ活性化の高特異性と厳密な時間制御を提供します。このシステムのユニークな機能により、一過性の事象の同定や、ホスファターゼの下流の個々のシグナル伝達経路の調査が可能になります。このプロトコルでは、RapR-ホスファターゼの開発、その生化学的特性評価、および細胞の形態動態の下流のシグナル伝達と調節への影響の分析に関するガイドラインについて説明します。また、タンパク質工学戦略、ホスファターゼ活性を解析する in vitro アッセイ、細胞形態の変化を同定する生細胞イメージング実験についても詳しく説明しています。
概要
タンパク質チロシンホスファターゼは、多数の細胞シグナル伝達イベントに関与する重要なタンパク質ファミリーです。それらは、細胞増殖、遊走、およびアポトーシスの調節において重要な役割を果たすことが示されています1,2,3。その結果、タンパク質チロシンホスファターゼの調節不全は、さまざまな衰弱性疾患や障害につながります4,5,6,7。チロシンホスファターゼの生理学的機能とこれらの病状の発症におけるそれらの役割の研究は、ホスファターゼシグナル伝達の複雑さを調査するために必要なツールの欠如によって歴史的に妨げられてきました8。
従来、ホスファターゼは、望ましい特異性を持たない方法、および/またはホスファターゼの活性を時間的に制御しない方法を使用して研究されてきました。利用可能なツールのこれらの重大な制限は、シグナル伝達経路におけるホスファターゼの特定の役割を解剖することを困難にしています。恒常的に活性で優性なネガティブ変異体の過剰発現やホスファターゼの発現のダウンレギュレーションは、特異性をもたらしますが、時間的な制御を欠いており、多くの場合、酵素の真の機能を隠す代償メカニズムを引き起こす可能性があります。
薬理学的阻害剤は、ホスファターゼの時間的調節を可能にします。しかし、多くのホスファターゼ阻害剤は、チロシンホスファターゼ9の活性部位の組成が良好に保存されているため、非特異的であることで有名です。さらに、設計上の制約により、触媒部位を標的とする阻害剤は、細胞膜透過性が不良である10。阻害剤のもう一つの制限は、ホスファターゼ不活性化11の効果を調べることしかできないということである。したがって、ホスファターゼの特異的で時間的に調節可能な活性化を可能にするツールが必要です。これらのツールにより、研究者はホスファターゼ活性化の直接的な影響を特定し、生物学的刺激によってしばしば活性化される複数の並列シグナル伝達カスケードからホスファターゼを分離することができます。重要なことは、活性の厳密な時間的制御により、ホスファターゼによって誘発される一過性の事象の同定が可能になり、急性および長期のホスファターゼ活性の影響を分離することです。時間的調節と突然変異解析を組み合わせることで、ホスファターゼの個々のドメインの特定の役割の詳細な解剖と、その下流のシグナル伝達の調査が可能になります12。
既存のツールに望ましい機能の欠如に対処するために、Karginovグループはラパマイシン制御(RapR)システム13,14,15を開発しました。RapRシステムは、目的タンパク質(POI)のアロステリック制御を可能にする人工スイッチドメインiFKBPを利用しています。POIの触媒部位にアロステリックに結合した位置にiFKBPドメインを挿入すると、ラパマイシンによる調節を受けやすくなります。ラパマイシンが存在しないと、iFKBPはiFKBPの本質的に高い構造ダイナミクスにより触媒部位を破壊し、POIを不活性化します。ラパマイシンを添加すると、iFKBPと共発現タンパク質FRBとの相互作用が誘導されます(図1)。これにより、スイッチドメインが安定化し、その結果、POIの触媒ドメインの構造と機能が回復します。そのため、このツールを使用すると、POIの特定の時間的に調整可能なアクティブ化が可能になります。
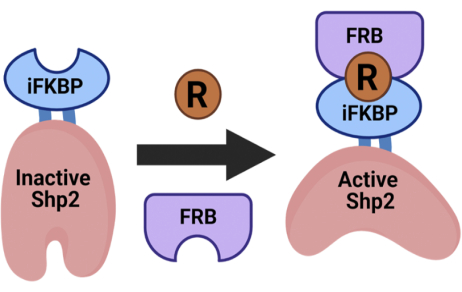
図1:RapR-Shp2ラパマイシン制御システムの概略図。 RapRは、ラパマイシンを添加することで、目的のタンパク質のアロステリック活性化を可能にします。この図は、Fauser et al.12から修正されました。略語:iFKBP =挿入可能なFKBP12;FRB = FKBP-ラパマイシン結合ドメイン;R =ラパマイシン;Shp2 = Srcホモロジー-2ドメイン含有タンパク質チロシンホスファターゼ。 この図の拡大版を表示するには、ここをクリックしてください。
RapRツールは、さまざまなタンパク質ファミリーに適用できます。これは、ホスファターゼ12,14と同様にプロテインキナーゼの調節に用いることができる。このプロトコルでは、Shp2ホスファターゼを制御するためのRapRツールのアプリケーションに焦点を当てます。Shp2は、増殖、遊走、免疫調節、分化などのシグナル伝達プロセスに関与する遍在的に発現するタンパク質チロシンホスファターゼです1,16,17,18。Shp2の調節不全は、多くの固形がん、骨髄性白血病、および発達障害と関連しています5,7。しかし、Shp2は上記と同じツールの欠点の犠牲になっています。これらの制限に対処するために、特異的かつ時間的に調整可能なShp2コンストラクトであるRapR-Shp2が開発され、特徴付けられた12。
RapR-Shp2が開発される前は、Shp2が細胞遊走に関与していることが知られていた19,20,21。しかし、このプロセスに関与するシグナル伝達におけるその具体的な役割は不明でした。また、Shp2がどの時間スケールで細胞の移動を制御し、その活性化の異なる時点でどのような特定の形態力学的変化を誘発するかも不明でした。さらに、Shp2の急性および長期の活性化が異なる影響を引き起こすかどうかは不明でした。RapR-Shp2を用いて、Shp2の急激な活性化が一過性の細胞拡散、突起の増加、細胞分極、遊走を誘導することがわかりました。Shp2の下流で明確な形態力学的変化を調節する特定の経路も同定された12。このプロトコルは、RapR-Shp2の設計と特性評価の詳細を提供し、他のRapRホスファターゼの開発と応用を導くために使用できます。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
1. RapR-ホスファターゼの設計
- 企画
注:RapR-Shp2を例にとると、このプロトコルでは、ラパマイシン制御チロシンホスファターゼを作成するための重要な手順を詳しく説明しています。記載されているプロトコールはShp2に最適化されており、個々のホスファターゼの特定の特性に適合させるために追加の修飾が必要になる場合があります。- Shp2の触媒活性が内因性メカニズムではなく、純粋にラパマイシンによって制御されるようにするには、ホスファターゼに突然変異を導入して、ホスファターゼを恒常的に活性なコンフォメーションに保ちます。Shp2の場合は、D61A変異を導入します。
注:活性化変異が特定のPTPaseに導入されない場合、そのRapRバリアントは、内因性シグナルとラパマイシンによって制御されるAND依存性システムとして機能します。 - ホスファターゼの触媒ドメインにおけるiFKBP挿入部位を同定し、結晶構造を用いて選択をガイドする13。構造が利用できない場合は、Shp2ホスファターゼの触媒ドメインとアミノ酸配列のアラインメントを行い、挿入部位を同定します(図2A)。挿入部位が、触媒ポケットに構造的に結合しているが、iFKBPによる基質結合の立体障害を防ぐために、ポケットから離れた位置にある柔軟なループに配置されていることを確認してください。
注: 挿入の詳細については、ディスカッションで説明します。 - 挿入されたiFKBPドメインと目的のホスファターゼとの間で使用されるリンカー配列の種類を考えてみましょう。最適なリンカー配列を選択することは、RapRツールを成功させるために非常に重要であり、ディスカッションで詳しく説明します(図2B)。
- Shp2の触媒活性が内因性メカニズムではなく、純粋にラパマイシンによって制御されるようにするには、ホスファターゼに突然変異を導入して、ホスファターゼを恒常的に活性なコンフォメーションに保ちます。Shp2の場合は、D61A変異を導入します。
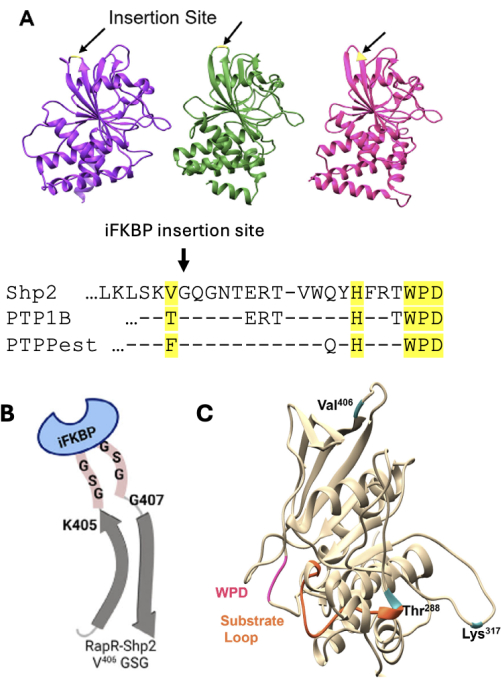
図2:RapR-ホスファターゼを設計する際の考慮事項の概略図。 (A)Shp2(紫)、PTP1B(緑)、PTP-PEST(ピンク)のハイライトされた保存された挿入部位とのアライメント。(B)Shp2とiFKBPの間のリンカー挿入の表現。(C)ベージュ色のShp2のホスファターゼドメインで、挿入部位は青色で示されています。この図は、Fauser et al.12から修正されました。略語:Shp2 = Srcホモロジー-2ドメイン含有タンパク質チロシンホスファターゼ;iFKBP = 挿入可能なFKBP12;PTP =タンパク質チロシンホスファターゼ;RapR = ラパマイシンが制御されています。 この図の拡大版を表示するには、ここをクリックしてください。
2. RapR-ホスファターゼの創製
- 修飾部位特異的突然変異導入による目的ホスファターゼへのiFKBPの挿入
- PCRを介してiFKBPエンコーディングの「メガプライマー」を生成します。
- iFKPBの5'末端または3'末端にアニーリングする20-25ヌクレオチド、iFKPBを目的のホスファターゼに接続するリンカー配列、および挿入部位に対応する28-32ヌクレオチドを含む「メガプライマー」合成用のプライマーを設計します(図3)。得られた生成物に、目的のホスファターゼの挿入部位の前後にアニールされたフラグメントが隣接するiFKPBが含まれていることを確認します。
- 「メガプライマー」を含むiFKBPをPCRで合成します(5倍ポリメラーゼバッファー10 μL、iFKBPを含む50 ng/μLテンプレートDNA1 μL、10 mM dNTP2 μL、各「メガプライマー」プライマーの100 μMストック0.5 μL[フォワードおよびリバース]、35 μLの水、1 μL DNAポリメラーゼ)。このPCR反応を2つの別々の25 μL反応に分割してから、PCRを実行します。DNAポリメラーゼメーカーの推奨に従ってPCRサイクルを実行するか、または次の標準PCRサイクルを実行します:(i)98°Cで2分間、(ii)98°Cで30秒間、(iii)55-70°Cで30秒間、(iv)72°Cで30秒間、(v)ステップii-ivを25回繰り返し、(vi)72°Cで2分間。
- 「メガプライマー」をアガロースゲル電気泳動を用いて精製します。前のステップで得たPCR内容物を1%アガロースゲルにロードし、120 Vを約30分間適用します。ゲル中の400ヌクレオチド長の「メガプライマー」を探し、フラグメントを取り出して、ゲル抽出キットを使用して精製します( 材料の表を参照)。
注:プロトコルはここで一時停止できます。
- 修飾部位特異的突然変異導入
- 目的のホスファターゼの遺伝子をテンプレートとして含むプラスミド(5 μLの5xポリメラーゼバッファー、2 μLの50 ng/μLテンプレート、2 μLの10 mM dNTP、10 μLの抽出された「メガプライマー」、2.5 μLの水、2.5 μLのDMSO、1 μLのDNAポリメラーゼ)を使用して、修飾部位特異的突然変異導入反応を準備します。
注:反応混合物にDMSOを添加すると、アニーリング温度22が低下する。 - 最初の変性ステップを98°Cで3分間、続いて98°Cで30秒間、65°Cで20秒間、60°Cで20秒間、60°Cで20秒間、55°Cで20秒間、50°Cで20秒間、72°Cで18分間のインキュベーションを18サイクル連続してインキュベートします。サイクルを一晩実行します(サイクルタイムは7時間です)。サイクルが完了したら、PCR反応液を4°Cで保存します。
注:プロトコルはここで一時停止できます。 - サイクル終了後、1 μLの DpnI 酵素を加え、37°Cで1時間インキュベートします。
注: DpnI は残留テンプレートを消化し、新しく合成された製品の収量を増加させます。 - 消化された製品を製造元の指示に従ってDH5α コンピテントセルに変換します。LB寒天プレート上の形質転換を、選択に適した抗生物質(pcDNA RapR-Shp2コンストラクト用のカルベニシリン)でプレートします。37°Cで一晩インキュベートします。コロニーが成長したら、LBプレートを4°Cで最大1か月間保存します。
注:プロトコルはここで一時停止できます。
- 目的のホスファターゼの遺伝子をテンプレートとして含むプラスミド(5 μLの5xポリメラーゼバッファー、2 μLの50 ng/μLテンプレート、2 μLの10 mM dNTP、10 μLの抽出された「メガプライマー」、2.5 μLの水、2.5 μLのDMSO、1 μLのDNAポリメラーゼ)を使用して、修飾部位特異的突然変異導入反応を準備します。
- PCRを介してiFKBPエンコーディングの「メガプライマー」を生成します。
- RapR-ホスファターゼを含む目的DNAコンストラクトの単離
- 細菌コロニーのPCRスクリーニング23を行う。LBプレート上で増殖したすべてのコロニーに目的のプラスミドが含まれているわけではないため、プラスミドDNAを単離する前に必ずスクリーニングしてください。
注:テンプレートおよびiFKBP遺伝子にアニーリングするスクリーニング用のプライマーを使用してください。このスクリーニングは、Taqポリメラーゼマスターミックスを使用して行うことができます( 材料表を参照)。 - 陽性コロニーが同定されたら、1つの陽性コロニーを適切な抗生物質を含む3 mLのLBブロスに接種し、インキュベートし、37°Cで一晩振とうします。
- プラスミドDNA抽出キットの製造元の指示に従って、液体培養物からプラスミドDNAを抽出します( 材料の表を参照)。
注: in vitro 評価に進む前に、新しく作成したRapR PTPaseコンストラクトのシーケンシングを行うことをお勧めします。
- 細菌コロニーのPCRスクリーニング23を行う。LBプレート上で増殖したすべてのコロニーに目的のプラスミドが含まれているわけではないため、プラスミドDNAを単離する前に必ずスクリーニングしてください。
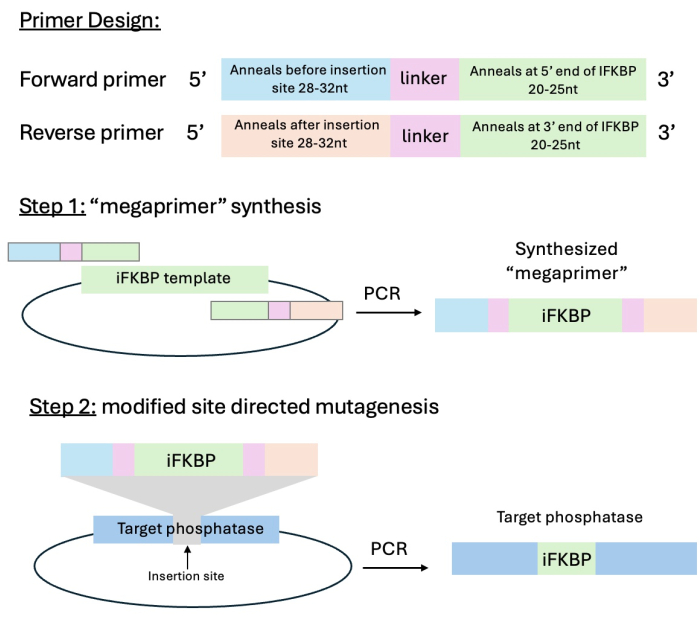
図3:プライマー設計と改変部位特異的突然変異導入クローニング戦略の概略図。 ステップ1は、目的のホスファターゼの挿入部位に「スティッキーエンド」アニーリングを施した「メガプライマー」を含むiFKBPの合成であり、ステップ2は、目的のホスファターゼへの「メガプライマー」の挿入です。この図はKarginov et al.13から修正されました。略称:iFKBP=挿入可能なFKBP12。 この図の拡大版を表示するには、ここをクリックしてください。
3. in vitro活性アッセイによるRapR-PTPaseの評価
注:このプロトコルは、改変されたRapR-PTPaseの活性の調節を評価するために使用されます。以下に、パキシリンのリン酸化N末端フラグメントを基質として用いた免疫沈降Shp2の分析を示します。目的の特定のPTPaseに対して、異なる基質を選択する必要がある場合があります。
- 1日目
- L-グルタミンサプリメント(最終濃度2 mM)および10% FBSを容量で10%添加したDMEM培地の6ウェル組織培養プレートに800,000 HEK293T細胞/ウェルをプレートします。37°Cおよび5%CO2 インキュベーターに一晩置く。
- 2日目
- 細胞が 60 ~ 80% コンフルエントになったら、希望するトランスフェクションリージェントメーカーのプロトコルに従ってトランスフェクションします( 材料の表を参照)。
- トランスフェクションプロトコールの例:プラスミドDNA(pcDNA-mCherry-FRBおよびpcDNA-flag-RapR-Shp2、それぞれ)1 μgを200 μLの無血清DMEMおよび6 μLのトランスフェクション試薬に加え、室温で15分間インキュベートします。細胞のウェルあたり100 μLのトランスフェクション混合物を添加します。恒常的に活性でドミナントなネガティブShp2コンストラクトをトランスフェクションしたサンプルをコントロールとして含めます。37°C、5%CO2 インキュベーターで一晩インキュベートします。
- 細胞が 60 ~ 80% コンフルエントになったら、希望するトランスフェクションリージェントメーカーのプロトコルに従ってトランスフェクションします( 材料の表を参照)。
- 3日目
- Protein-Gセファロースの調製
注意: セファロースを取り扱う前に、カットしたピペットチップを準備してください。カットチップは、セファロースを取り扱うすべてのステップで使用する必要があります。セファロースは、ピペッティングの前にすべてのステップで完全に再懸濁する必要があります。- 再懸濁し、適切な量のProtein-Gセファロースを1.5mLチューブに取ります。.6ウェルプレートの各ウェルに、10 μLのProtein-Gセファロースを使用します。フル6ウェルプレートの場合は、60 μLのセファロースを使用します。
- セファロースを1 mLのLysis Bufferで洗浄します( 材料の表を参照)。2,000 × g で1分間微量遠心分離し、Lysis Bufferを慎重に取り出します。2回繰り返します。
- セファロースを380 μLのLysis Bufferに再懸濁します。BSAを最終濃度1 mg/mLおよび抗体(各IPサンプルにつき0.5 μL、抗フラグ抗体[ 材料表を参照])に加えます。ローテーターを4°Cで1.5時間反転させます。
注:抗体の最適量は、使用する抗体ごとに実験的に決定する必要があります。
- 免疫沈降用の細胞を調製します。
- 最終濃度1 μMまで適量のラパマイシン(エタノール中1 mMストック溶液)を添加するか、サンプルに同量のエタノール(ネガティブコントロール)を添加します。37°Cおよび5%CO2 インキュベーターで1時間インキュベートします。
- 細胞を入れた6ウェルプレートを氷の上に置き、3 mLの冷たいPBSで細胞を穏やかに洗浄します。PBSを吸引し、300 μLのLysis Buffer(活性化ホスファターゼサンプル用の1 μMラパマイシンまたはネガティブコントロールサンプル中の同量のエタノール)を加え、セルスクレーパーで掻き取ります。サンプルを1.5 mLチューブに移し、1,000 × g 、4°Cで10分間微量遠心分離します。
- 上清20μLを新しい1.5 mLチューブに移し、発現レベルを確認します。20 μLの2x Laemmli buffer with 5% β-mercaptoethanolを各チューブに加え、発現のチェックに使用し、95–100°Cで5分間インキュベートします。残りの上清をステップ3.3.3.3の免疫沈降に使用します。
- RapR-Shp2の免疫沈降
- Protein-Gセファロースをステップ3.3.1.3から洗浄します。1 mLのLysis Bufferを添加します。毎回4°Cで2,000 × g で1分間微量遠心分離し、Lysis Bufferを慎重に吸引します。この手順を2回繰り返します。
- カットチップを使用して、セファロースをLysis Bufferに再懸濁します(サンプルあたり50 μL、したがって6ウェルプレートの場合は、300 μLのLysis Bufferに再懸濁します)。懸濁したセファロース混合物50 μLを、サンプルごとに別々の新しい1.5 mLチューブにピペットで移します。
注:セファロースの体積により、残った溶解緩衝液中にセファロースが再懸濁されます。 - ステップ3.3.2.3で調製した細胞から残りの上清をセファロースの各チューブに加えます。4°Cで1.5〜2時間回転させます。
- ホスファターゼ活性アッセイ
注:Shp2基質は、前述のキナーゼ反応プロトコル12に従って、恒常的に活性なSrcキナーゼを使用してパキシリンの精製N末端フラグメントをリン酸化することによって調製する必要があります。- ステップ3.3.3.3の終わりに向かって、ホスホパキシリン溶液を調製します。サンプルごとに、ホスホパキシリン溶液(最終濃度3 μg/mL)を40 μLの全イミダゾールバッファー(材料表を参照)に加えます。活性化RapR-Shp2サンプル用のホスホパキシリン溶液のアリコートに最終濃度1μMのラパマイシンを添加し、非活性化サンプル用の溶液に等量のエタノールを添加します。
- 加熱シェーカーを32°Cに設定します。
注:他のホスファターゼは、最適な活性を得るために異なる温度が必要な場合があります。 - ステップ3.3.3.3のサンプルでセファロースを2回洗浄し、0.5 mLの溶解バッファー(材料の表を参照)で洗浄します。サンプルを0.5 mLのWash Bufferで2回洗浄します。各バッファーは、活性化サンプルの場合は1 μMのラパマイシン、非活性化サンプルの場合は等量のエタノールのいずれかを含む必要があります。最終洗浄後は、できるだけ多くのバッファーを取り除いてください。
注:このステップに達したら、ピペットを使用して最終量のバッファーをゆっくりと慎重に除去し、セファロースが吸引されていないことを確認すると役立つ場合があります。残ったバッファーは、ホスホパキシリンの濃度に影響を与え、不正確な読み出しにつながります。 - 調製したホスホ-パキシリンイミダゾールバッファー混合物を、ラパマイシンの有無にかかわらず、各サンプルに40 μLを加えます(サンプルによって異なります)。非常に穏やかにフリックして混合し、すぐに加熱シェーカーに入れ、32°Cで40分間インキュベートします。 加熱シェーカーを最低1,000rpmに設定して、インキュベーション中にサンプルが完全に攪拌されるようにします。
- 各サンプルに40 μLの2x Laemmli Bufferを添加して反応を停止します。サンプルを95〜100°Cで5分間インキュベートします。サンプルを冷却します。
- 各サンプル(ステップ3.3.2.3のライセートサンプルを含む)15 μLを4〜15%グラジエントSDS-ポリアクリルアミドゲルにロードし、PVDFメンブレンを使用して標準的なウェスタンブロットプロトコルを実行します。
- 抗Flag抗体を使用してRapR-Shp2コンストラクトを検出し、抗mCherryを使用してmCherry-FRBを検出し、抗pY118または抗pY31パキシリンを使用してパキシリンリンのリン酸化を検出します。
注:結果として得られるウェスタンブロットは 、図4のようになります。
- Protein-Gセファロースの調製
4. 生細胞におけるRapR-Shp2活性の解析
注:このプロトコルは、RapR-Shp2が内因性基質を脱リン酸化し、下流のシグナル伝達を誘導する能力を決定するために使用されます。他のRapR-PTPアーゼでは、特定の基質と経路の解析が必要になります。
- 1日目
- 10% FBSおよびL-グルタミン(最終濃度2 mM)を添加したDMEM培地中の6ウェル組織培養プレートに198,000 A431細胞/ウェルをプレート化します。37°Cおよび5%CO2 インキュベーターに一晩置く。
- 2日目
- RapR-Shp2およびFRBを発現するアデノウイルスコンストラクトを細胞に感染させるには、すでにディッシュ中の培地にアデノウイルスを直接添加します。アデノウイルスを37°Cおよび5%CO2 インキュベーターの細胞に一晩放置します。FRBに感染した細胞はネガティブコントロールとしてのみ使用してください。
注:アデノウイルスの量は、力価に応じてケースバイケースで決定する必要があります。
- RapR-Shp2およびFRBを発現するアデノウイルスコンストラクトを細胞に感染させるには、すでにディッシュ中の培地にアデノウイルスを直接添加します。アデノウイルスを37°Cおよび5%CO2 インキュベーターの細胞に一晩放置します。FRBに感染した細胞はネガティブコントロールとしてのみ使用してください。
- 3日目
- 実験前に0.5% FBSとDMEMで4時間インキュベートすることにより、A431細胞を飢餓状態にします。
- ラパマイシンを最終濃度1 μMにするか、同量のエタノール(ネガティブコントロール)を細胞に2〜4時間加えます。
注:インキュベーションは、他のホスファターゼでは異なる場合があります。 - 細胞を入れた6ウェルプレートを氷の上に置き、3 mLの冷たいPBSで細胞を穏やかに洗浄します。PBSを吸引し、300 μLのLysis Buffer( 材料表を参照)を加え、セルスクレーパーで激しく掻き取ります。サンプルを1.5 mLチューブに移し、2,000 × g 、4°Cで5分間微量遠心分離します。
- 各サンプル250μLを新しい1.5mLチューブに移します。250 μLの2x Laemmli bufferと5% β-メルカプトエタノールを加え、95–100°Cで5分間インキュベートします。
- 各サンプルの25 μLを4〜15%グラジエントSDS-PAGEゲルにロードし、PVDFメンブレンを使用して標準的なウェスタンブロットプロトコルを実行します。
- 抗pY992 EGFRおよび抗pY783 PLCγ抗体を用いて、RapR-Shp2を介したEGFRおよびPLCγの脱リン酸化を評価します。pT202/pY204残基に対するMAPキナーゼErk1/2のリン酸化を評価することにより、MAPキナーゼErk1/2の下流活性化を評価します。
注:結果として得られるウェスタンブロットは 、図5のようになります。
5. RapR-Shp2の活性化によるHeLa細胞の形態動態変化の解析
注:このプロトコルは、細胞突起の形成、細胞の拡散、および遊走に対するRapR-Shp2活性化の影響を決定するために使用されます。
- 1日目
- 700,000個のHeLa細胞を35 mmの細胞培養皿にプレート化し、37°Cおよび5%CO2 インキュベーターに置きます。細胞を皿に付着させます(~2〜3時間)。
- 好ましいトランスフェクション試薬メーカーのプロトコールに従って細胞をトランスフェクションします( 材料表を参照)。
- トランスフェクションプロトコルの例:0.5 μgのDNA(pcDNA-mCherry-FRBおよびpcDNA-Venus-RapR-Shp2プラスミド、それぞれ)を100 μLの無血清DMEMおよび6 μLのトランスフェクション試薬に加えます。室温で15分間インキュベートします。トランスフェクション混合物を細胞に加え、37°Cおよび5%CO2 インキュベーターで一晩インキュベートします。pcDNA-mCherry-FRBをトランスフェクションした細胞は、ネガティブコントロールとしてのみ使用してください。
- ライブイメージング#1.5 25 mm丸型ガラスカバースリップにフィブロネクチン(5 mg/L)を塗布し、37°Cで1時間インキュベートします。
- 2日目
- コーティングされたガラスカバースリップをPBSで洗います。
- トランスフェクションしたHeLa細胞を、10% FBSおよびL-グルタミン(最終濃度2 mM)を添加したDMEM培地にコーティングされたガラスカバースリップ上に播種し、イメージングの4時間前に30%のコンフルエンシーを達成します。
- めっきの2時間後、プレート内の培地を温めた無血清のLeibovitz L-15培地に2時間静かに切り替えます。
- CellMask Deep Red 原形質膜染色剤で、メーカーのプロトコルに従って細胞を染色します。
- カバーガラスを清潔なイメージングセルチャンバーに入れます( 材料の表を参照)。予熱したL-15培地1mLを加え、蒸発を防ぐために予熱した鉱油1mLで覆います。イメージングまでチャンバーを37°Cに保ちます。
- 加熱ステージを使用して、37°Cで細胞をイメージングします。
- RapRコンストラクトのイメージングには適切なチャンネルを、落射蛍光イメージングにはCellMaskを選択します。このプロトコルに従うには、参照された40倍対物レンズ( 材料表を参照)と次のフィルターセットを使用します:Venus-RapR-Shp2イメージング用の514/10励起および540/21発光フィルター、mCherry-FRBイメージング用の561/10励起および595/40発光フィルター、CellMask Deep Redイメージング用の640/20励起および655LP発光フィルター。すべての蛍光チャンネルにマルチバンドポリクロイックミラーを使用してください( 材料の表を参照)。
- 2分ごとに4〜4.5時間画像をキャプチャします。
注:形態力学的な変化が速いほど、より頻繁な取得が必要になります。 - 1時間のイメージング後、ラパマイシンを最終濃度1 μMまで添加して、RapR-Shp2を刺激します。
6. 画像解析
注:このプロトコルでは、に基づくセルマスクの作成について説明します。ライブイメージング実験から収集されたTIFスタックファイル。次に、ImageJ でマクロを作成してマスクを分析する方法を説明し、その結果、セル領域のスプレッドシートが作成され、時間の経過に伴う変化が分析されます。最後に、細胞の突出活性と収縮活性をMetamorphを使用して分析します。
- CellGeo ソフトウェア パッケージ24 の MovThresh 関数を使用して、CellMask イメージのバイナリ マスクを生成します。
- MovThresh フォルダーを画像解析フォルダーにコピーします。
- CellMaskまたはその他のメンブレンマーカーチャンネルの画像をMovThreshフォルダにコピーします。
- 複数のセルが 1 つの位置で画像化された場合は、MatLab でマスクを作成する前に、画像をトリミングして 1 つのセルのみを含むファイルを生成します。
- ディレクトリがMatLabのMovThreshフォルダに正しく設定されていることを確認します。
- MovThresh を実行します。
- 画像スタックを一度に1つずつインポートします。
- [Smoothed Curve] を選択し、[Rethreshold] を実行します。
- 「 Masks」という ラベルの付いた新しいフォルダに「Mask_Image Number」という名前で保存 します。
- すべての画像スタックがマスクに変換されたら、ImageJソフトウェアで画像スタックを開きます25.
- ImageJでの細胞領域解析
- ImageJ ですべてのマスク画像スタックを開きます。
- [測定値の設定] を [面積] に調整します。
- [プラグイン] |マクロ |記録。
- [プロセス] |バイナリ |バイナリを作成します。
- デフォルトのオプションを選択します。
注意: マクロの記録中は、余分なものをクリックしないでください。追加の手順が含まれている場合は、手順 6.9.1.3 からやり直すことをお勧めします。
- デフォルトのオプションを選択します。
- [分析] |パーティクルを解析します。
- [概要] 以外のすべてのボックスをオフにします。
- 記録を終了し、[ マクロの作成 ] をクリックします。
- 画像スタックを選択し た後、各 画像スタックの実行をクリックし、各画像スタックの結果テーブルを保存します。デフォルトのオプションでは、csvファイルとして保存されます。
- マクロを保存し、将来の分析に再利用します(オプション)。
- スプレッドシートでのエリアデータの処理
- 解析した各細胞について、ラパマイシンによる活性化前に撮影された画像から細胞の面積を平均化します。
- すべての面積値を、ラパマイシン添加に先行する細胞の平均面積で除算します。
- 画像化されたすべてのセルの各時点の平均値を計算し、90% 信頼区間を決定します。データをプロットします。
- 細胞突出活性解析
- ProActiveフォルダを画像解析フォルダにコピーします。
- マスクされた画像スタックを MovThresh から新しく作成した ProActive フォルダーにコピーします。
- MatLabを開き、ディレクトリをProActiveフォルダに設定します。
- ProActiveを実行します。
- マスクされたセルのイメージスタックファイルをProActive GUIにインポートします。
- アクティビティのタイプを定義します。突出活動分析は 、得られた領域 データを生成します。リトラクタクティブアクティビティ分析は 、エリア損失 データを生成します。また、合計アクティビティは 、全体的なエリア変化 データ (損失と増加の両方) を生成します。
- 領域を Define Normalization に設定します。
- 推奨されるしきい値を使用するか、平均を使用して各時点のしきい値を再調整する曲線を滑らかにします。これにより、特定のウィンドウでしきい値が平均化され、時点間のしきい値の不整合が最小限に抑えられます。
- [ファイル] |名前を付けて保存 |結果 (.mat)
- 3 種類のエリア アクティビティをすべて処理する場合は、処理するデータ ファイルに ProResultData #、RetResultData #、または ResultData # という名前を付けます。
注: 番号の前にスペースを含め、 データを 1 から始まる番号を付けます。
- 3 種類のエリア アクティビティをすべて処理する場合は、処理するデータ ファイルに ProResultData #、RetResultData #、または ResultData # という名前を付けます。
- 手順 6.9.3.6 から繰り返します。インポートされたすべてのマスクされた画像スタック。
- すべてのセルが処理されたら、ProActive GUI を閉じます。
- Matlab エディターで DataToFileTotalArea を開き、アクティビティの合計 "ResultData" ファイルを処理します。
- 生成された結果ファイルの数と一致するようにセルの数を変更します。ステップ 6.9.3.5 から 6.9.3.10 で 7 つのセルが処理された場合は、スクリプトの最初の 3 行が次のとおりであることを確認します。
filename='結果データ ';
セル=1:7;
ラグ=1; - [ Run ] をクリックし、DataToFileProtArea と DataToFileRetArea でこれを繰り返して、それぞれ突起データとリトラクティブ データを処理します。この分析では、「AllCells.txt」、「AllCellsPro.txt」、「AllCellsRet.txt」の 3 つのテキスト ファイルが生成されます
- スプレッドシートで.txtファイルを開き、セクション6.9.2のように正規化します。画像化されたすべてのセルの各時点の平均値を計算し、90%信頼区間を決定します。データをプロットします。
注:上記の手順から得られるプロットは、 図6のようになります。
- ImageJでの細胞領域解析
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
図4は、パキシリンベースのホスファターゼ活性アッセイから期待できる結果を示しています。この実験では、ホスホパキシリンを読み取り値として使用して、恒常的に活性でドミナントな負のShp2ホスファターゼ活性を、活性および不活性のRapR-Shp2活性および不活性RapR-Shp2の活性活性と比較しました。Shp2コンストラクトを免疫沈降させ、プロトコールに記載されたように活性アッセイに供した。恒常的に活性なShp2と活性なRapR-Shp2のリン酸化パキシリンの読み出しは類似しており、活性なRapR-Shp2はRapRドメインの導入によって悪影響を受けず、活性化されると完全な活性を保持したことを示しています。ドミナントネガティブShp2と非アクティブなRapR-Shp2も類似しており、非アクティブなときにRapR-Shp2コンストラクトが活性を持たないことを示しています。これは、RapR-ホスファターゼの設計が成功したことを示しています。このアッセイに使用されるリン酸化基質は、目的のホスファターゼによって異なる場合があります。
...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
このプロトコールは、化学遺伝学的に制御されたホスファターゼの開発、特性評価、および適用のための詳細なステップを提供します。RapR-Shp2ツールは、Shp2触媒ドメインに挿入されたラパマイシン制御スイッチに依存しています。このツールの強みは、ホスファターゼ活性の特異性と厳密な時間制御です。このツールは他のホスファターゼに適用可能であり、前述のRapR-TAP技術と組み合わせることで、個々のダウンストリームシグナル伝達経路の再構築を可能にする26。RapRアプローチのユニークな機能により、研究者はShp2の活性化によって誘発される一過性のイベントを特定し、個々の形態力学的プロセスを調節する特定の下流シグナル伝達経路を解剖することができました。
RapRホスファターゼの設計には、いくつかの重要な要素が影響します。目的のホスファターゼの触媒ドメインの十分に分解された結晶構造は、iFKBPの挿入部位の選択を導くのに非常に役立ちます。しかし、チロシンホスファターゼ間の構造的...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者には、開示すべき利益相反はありません。
謝辞
著者らは、Jordan Fauser博士がRapR-Shp2および関連プロトコルの開発に貢献したことに感謝します。この研究は、NIGMSの5R35GM145318賞、NCIのR33CA258012賞、NHLBIのP01HL151327賞によって支援されました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| #1.5 ガラス カバースリップ 25 mm 丸型 | Warner Instruments | 64-0715 | |
| 1.5 mL チューブ | USA Scientific | cc7682-3394 | |
| 2x Laemmli バッファー | 500 mL 用: 5.18 g Tris-HCL、131.5 mL グリセロール、52.5 mL 20% SDS、0.5 g ブロモフェノール ブルー、最終 pH 6.8 | ||
| 4-20% ミニプロティアン TGX プレキャスト ゲル | Biorad | 4561096 | |
| 5x Phusion Plus バッファー | Thermo Scientific | F538L | |
| A431 細胞 | ATCC | CRL-1555 | |
| アガルソース | GoldBiotech | A-201 | |
| Attofluor セルチャンバー | invitrogen | A7816 | |
| ベンチマーク ウシ胎児血清 (FBS) | ジェミニ バイオ製品 | 100-106 | 熱不活性化トリプル 0.1 & マイクロ;m 滅菌ろ過 |
| Brig 35,30 w/v % | Acros | 329581000 | |
| BSA | GoldBiotech | A-420 | |
| CellGeo | N/ | A N/A | Published in 10.1083/jcb.201306067 |
| CellMask Deep Red plasma membrane dye | invitrogen | c10046 | |
| Colony Screen MasterMix | Genesee | 42-138 | |
| DH5a competent細胞 | NEB | C2987H | |
| DMEM | コーニング | 15-013-CV | |
| DMSO | サーモサイエンティフィック | F-515 | |
| DNAラダー | GoldBio | D010-500 | |
| dNTPs | NEB | N04475 | |
| DpnI 酵素 | NEB | R01765 | |
| DTT | GoldBio | DTT10 | DL-ジチオスレイトール、Cleland's Reagents |
| EGTA | Acros | 409910250 | |
| Fibronectin from usvine plasma | Sigma | F1141 | |
| FuGENE(R) 6 Transfection Reagent | Promega | E2692 | transfection reagent |
| Gel extraction Kit | Thermo Scientific | K0692 | GeneJET Gel Extraction Kit |
| Gel Green Nucleic Acid Stain | GoldBio | G-740-500 | |
| ゲルローディング染料 パープル 6x | NEB | B7024A | |
| Glutamax | Gibco | 35050-061 | GlutaMAX-l (100x) 100 mL |
| HEK 293T 細胞 | ATCC | CRL-11268 | |
| HeLa 細胞 | ATCC | CRM-CCL-2 | |
| HEPES | Fischer | BP310-500 | |
| ImageJ 処理ソフトウェア | N/A | N/A | |
| Igepal CA-630 (NP40) | Sigma | I3021 | |
| イミダゾール緩衝液 | 25 mM イミダゾール pH 7.2、2.5 mM EDTA、50 mM NaCl、5 mM DTT | ||
| KCl | Σ | P-4504 | |
| L-15 1x | Corning | 10-045-CV | |
| LB 寒天 | 培 | Fisher BP1425-2 | |
| 溶解緩衝液 | 20 mM Hepes-KOH, pH 7.8, 50 mM KCl, 1 mM EGTA, 1% NP40 | ||
| MATLAB | MathWorks | N/A | R 2022b アップデートは、CellGeo 関数の実行に使用されました |
| Metamorph Microscopy Automation and Image Analysis Software | N/A | /A | |
| MgCl2 | Fisher Chemical | M33-500 | |
| Mineral Oil | Sigma | M5310 | |
| MiniPrep Kit | Gene選択肢 | 96-308 | |
| ミニプロティアン TGX プレキャストゲル 12 ウェル | バイオ・ラッド | 4561085 | |
| 分子生物学グレード 水 | コーニング | 46-000-CV | |
| マルチバンド ポリクロイック ミラー | クロマ テクノロジー | 89903BS | |
| NaCl | フィッシャー ケミカル | S271-3 | |
| オリンパス UPlanSAPO 40x 対物レンズ | オリンパス | N/A | |
| PBS w/o Ca and Mg | Corning | 21-031-CV | |
| PCR Tubes | labForce | 1149Z65 | 0.2 mL 8-Strip Tubes and Caps, Rigid Strip Individually Attached Dome Caps |
| Phusion Plus DNA | Polymerase Thermo Scientific | F630S | |
| Primers | IDT | ||
| Protein-G Sepharose | Millipore | 16-266 | |
| PVDF メンブレン | BioRad | 1620219 | 免疫ブロット PVDF/フィルターペーパーサンドイッチ |
| ラパマイシン | フィッシャー | AAJ62473MF | |
| 0.25% トリプシン、2.21 mM EDTA、1x [-] コー | ニング | 25-053-CI | |
| トリス-アセテート-EDTA (TAE) 50x | フィッシャー | BP1332-1 | 電気泳動用 |
| 洗浄バッファー | 20 mM Hepes-KOH、pH 7.8、50 mM KCl、100 mM NaCl、1 mM EGTA、1% NP40 | ||
| &β;-メルカプトエタノール | フィッシャーケミカル | O3446I-100 | |
| 抗体 | |||
| Anti-EGFR 抗体 | 細胞シグナル | 2232 | |
| アンチエルク 1/2 抗体 | 細胞シグナル | 9102 | |
| アンチフラッグ抗体 | ミリポアシグマ | F3165 | |
| 抗GAPDH抗体 | invitrogen | AM4300 | |
| 抗GFP抗体 | Clontech | 632380 | |
| 抗mCherry抗体 | invitrogen | M11217 | |
| 抗パキシリン抗体 | サーモフィッシャー | BDB612405 | |
| 抗リン酸化EGFR Y992 | 細胞シグナル伝達 | 2235 | |
| 抗リン酸化エルk 1/2 T202/Y204抗体 | 細胞シグナル伝達 | 9101 | |
| 抗リン酸化パキシリン Y31 抗体 | ミリポアシグマ | 05-1143 | |
| 抗リン酸化PLC&γ;Y783抗体 | 細胞シグナル伝達 | 14008 | |
| 抗PLC&γ;抗体 | 細胞シグナル伝達 | 5690 |
参考文献
- Amin, A. R. M. R., et al. SHP-2 tyrosine phosphatase inhibits p73-dependent apoptosis and expression of a subset of p53 target genes induced by EGCG. Proc Natl Acad Sci U S A. 104 (13), 5419-5424 (2007).
- Niogret, C., et al. Shp-2 is critical for ERK and metabolic engagement downstream of IL-15 receptor in NK cells. Nat Commun. 10, 1-14 (2019).
- Wang, Y. -C., et al. Helicobacter pylori infection activates Src homology-2 domain-containing phosphatase 2 to suppress IFN-γ signaling. J Immunol. 193 (8), 4149-4158 (2014).
- Yu, M., et al. The tyrosine phosphatase SHP2 promotes proliferation and oxaliplatin resistance of colon cancer cells through AKT and ERK. Biochem Biophys Res Commun. 563, 1-7 (2021).
- Lauriol, J., et al. Developmental SHP2 dysfunction underlies cardiac hypertrophy in Noonan syndrome with multiple lentigines. J Clin Invest. 126 (8), 2989-3005 (2016).
- Tartaglia, M., et al. Mutations in PTPN11, encoding the protein tyrosine phosphatase SHP-2, cause Noonan syndrome. Nat Genet. 29, 465-468 (2001).
- Xu, R., et al. Overexpression of Shp2 tyrosine phosphatase is implicated in leukemogenesis in adult human leukemia. Blood. 106 (9), 3142-3149 (2005).
- Mustelin, T., et al. Protein tyrosine phosphatases. Front Biosci. 7 (4), d85-d142 (2002).
- Stanford, S. M., Bottini, N. Targeting tyrosine phosphatases: time to end the stigma. Trends Pharmacol Sci. 38 (6), 524-540 (2017).
- Guo, M., et al. Targeting phosphatases: From molecule design to clinical trials. Eur J Med Chem. 264, 116031(2024).
- Weiser, D. C., Shenolikar, S. Use of protein phosphatase inhibitors. Curr Protoc Mol Biol. 62, 1-18 (2003).
- Fauser, J., et al. Dissecting protein tyrosine phosphatase signaling by engineered chemogenetic control of its activity. J Cell Biol. 221 (8), e202111066(2022).
- Karginov, A. V., Hahn, K. M. Allosteric activation of kinases: design and application of RapR kinases. Curr Protoc Cell Biol. , Chapter 14, Unit 14.13 (2011).
- Karginov, A. V., Ding, F., Kota, P., Dokholyan, N. V., Hahn, K. M. Engineered allosteric activation of kinases in living cells. Nat Biotechnol. 28, 743-747 (2010).
- Dagliyan, O., Dokholyan, N. V., Hahn, K. M. Engineering proteins for allosteric control by light or ligands. Nat Protoc. 14, 1863-1883 (2019).
- Wang, Y., et al. Targeting the SHP2 phosphatase promotes vascular damage and inhibition of tumor growth. EMBO Mol Med. 13, e14089(2021).
- Wang, L., et al. SHP2 regulates the development of intestinal epithelium by modifying OSTERIX+ crypt stem cell self-renewal and proliferation. FASEB J. 35, e21106(2021).
- Zhang, E. E., Chapeau, E., Hagihara, K., Feng, G. -S. Neuronal Shp2 tyrosine phosphatase controls energy balance and metabolism. Proc Natl Acad Sci U S A. 101 (45), 16064-16069 (2004).
- Song, Y., Zhao, M., Zhang, H., Yu, B. Double-edged roles of protein tyrosine phosphatase SHP2 in cancer and its inhibitors in clinical trials. Pharmacol Ther. 230, 107966(2022).
- Hartman, Z. R., Schaller, M. D., Agazie, Y. M. The tyrosine phosphatase SHP2 regulates focal adhesion kinase to promote EGF-induced lamellipodia persistence and cell migration. Mol Cancer Res. 11 (6), 651-664 (2013).
- Yu, D. H., Qu, C. K., Henegariu, O., Lu, X., Feng, G. S. Protein-tyrosine phosphatase Shp-2 regulates cell spreading, migration, and focal adhesion. J Biol Chem. 273 (33), 21125-21131 (1998).
- Kramer, M. F., Coen, D. M. Enzymatic amplification of DNA by PCR: standard procedures and optimization. Curr Protoc Cell Biol. 10, 1-14 (2001).
- Sandhu, G. S., Precup, J. W., Kline, B. C. Rapid one-step characterization of recombinant vectors by direct analysis of transformed Escherichia coli colonies. Biotechniques. 7, 689-690 (1989).
- Tsygankov, D., et al. CellGeo: A computational platform for the analysis of shape changes in cells with complex geometries. J Cell Biol. 204 (3), 443-460 (2014).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9, 671-675 (2012).
- Ray, A. -M., Klomp, J. E., Collins, K. B., Karginov, A. V. Dissecting kinase effector signaling using the RapRTAP methodology. Kinase Signaling Networks. Tan, A. -C., Huang, P. H. , Springer. New York, NY. 21-33 (2017).
- Mercan, F., Bennett, A. M. Analysis of protein tyrosine phosphatases and substrates. Curr Protoc Mol Biol. 18, Unit 18.16 (2010).
- Karginov, A. V., et al. Light regulation of protein dimerization and kinase activity in living cells using photocaged rapamycin and engineered FKBP. J Am Chem Soc. 133 (3), 420-423 (2011).
- Karginov, A. V., Hahn, K. M., Deiters, A. Optochemical activation of kinase function in live cells. Methods Mol Biol. 1148, 31-43 (2014).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
