このプロトコルは、マイコバクテリアでZn2+限定リボソームを生産するためのZn2+限定培地、成長容器、および種子培養物の調製を詳述しています。微量のZn2+はZn2+制限的な増殖を引き起こし、モデル細菌であるMycobacterium smegmatisとヒト病原体M. tuberculosisにおけるin vitroでのZn2+制限を検証するための生体指標として使用される形態形成の特徴について説明します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
方法論記事
マイコバクテリウム・スメグマティスをマイコバクテリアの亜鉛制限増殖条件のバイオインジケーターとして使用
* These authors contributed equally
この記事について
サマリー
要約
多くの細菌は、Zn2+結合リボソームタンパク質をZn2+非依存のパラログに置き換えることにより、Zn2+制限成長条件で代替リボソームを構築します。これらの代替リボソームを研究するためのシステムを定義することは、実験室でのZn2+汚染が一般的であるため、困難であることが証明されています。この問題に対処するために、成長培地にキレート剤を添加することがありますが、このアプローチは、Zn2+の段階的な制限に対する生物学的応答を複雑化させ、リボソームの冬眠と関連しています。ここでは、キレート剤を添加せずにZn2+限定増殖のための培地および播種培養物を調製するための詳細な手順を概説します。この方法により、モデル細菌であるMycobacterium smegmatisは、代替のリボソームに依存する形態形成を経ます。形態形成は扱いやすく、Zn2+制限条件でのみ発生するため、M. smegmatisは生物学的に関連する成長条件を確認するためのバイオインジケーターとして使用できます。野生型におけるZn2+の制限を示す3つのバイオインジケーター表現型(細胞密度、細胞長、および補酵素F420蛍光)が説明され、代替リボソームを構築できない欠失変異体に対するこれらのバイオインジケーターの変化が概説されています。微量Zn2+コンタミネーションは、培地の各バッチごとに制御するのが難しく、各培地調製中のZn2+の正確な定量は過度に負担となるため、このバイオインジケーター表現型に従うことは、Zn2+限定増殖培地の調製を検証するためのアクセス可能な方法です。Zn2+制限増殖と代替リボソーム産生の適切な条件を特定するために、Zn2+で汚染された、または重度のZn2+が枯渇したZn2+制限培地の調製物についても、バイオインジケーターの表現型の変化をプロファイリングしました。結核菌におけるZn2+制限増殖および代替リボソーム産生を達成するためのさらなる詳細が、関連するバイオインジケーター表現型とともに提示されます。全体として、ここで説明する詳細な指示とバイオインジケーターの表現型は、マイコバクテリアにおける翻訳活性な代替リボソームの産生を標準化するのに役立ちます。
概要
亜鉛イオン(Zn2 +)は必須微量栄養素であり、微生物培地の標準成分です。しかし、多くの細菌は、Zn2+の制限条件が広まっているため、環境中でのZn2+の制限に耐えます。soil1、marine2、およびホスト内のニッチ3は、多くの場合、Zn2+に制限されています。そのため、ほとんどの細菌は、Zn2+の制限を克服し、細胞機能を維持するためのメカニズムを進化させてきました4。Zn2+の恒常性の維持に関与するシステムは、厳密な転写制御下にあります5 そして、高親和性Zn2+インポートシステムを使用したZn2+の清掃、細胞のZn2+埋蔵量の動員、および特定のZn2+結合タンパク質の代替Zn2+非依存性パラログ6への置換に関与しています。後者の例は、Zn2+非依存性リボソームタンパク質(RP)パラログであり、これはバクテリアのZn2+応答性レギュロンの一般的な特徴4です。これらの非常に分岐したZn2+非依存性RPは、Zn2+結合CXXCモチーフ7の破壊によって、Zn2+結合パラローグと区別されます。配列決定された原核生物のゲノムの半分以上には、重複したRPの少なくとも1つのペアが含まれており、それらの多くでは、1つのRPがZn2+に結合しますが、そのパラログは8に結合しません。C+/C- 表記 (システインに富む Zn2+ 結合モチーフの有無を示す) は、これらのパラロガス RP ペア7 を参照する際に一般的に使用されますが、Zn2+ 非依存 RP は、AltRP が Zn2+ のリボソーム生合成の代替 RP として機能するため、プライマリ (Prim)、Zn2+ 結合 RP パラログの代替 (Alt) バージョンとしても記載されています-一部の細菌では条件が限られており、検索性に優れたキーワードです9,10,11.
AltRPの発現はZn2+によって厳密に制御されているため、Zn2+の制限に直面しても、AltRPの発現がZn2+依存性のリボソームタンパク質に機能的な冗長性を提供すると考えるのは論理的です。実際、AltRPのこの特徴は、モデル土壌細菌Bacillus subtilisで実証されており、Zn2+制限中に表面のPrimRP L31の解放とAltRP L3112,13に置き換えることで成長が促進されます。ただし、一部のAltRPはコアPrimRPと並行しており、たとえばS14は、リボソーム生合成中にそれらの組み込みが必要であることを意味します12,13。AltRPによるリボソームの再構築は、エネルギーを大量に消費する献身的なプログラムです。これらのコアAltRPは、リボソームからZn2+を遊離させるのに役立つかもしれませんが、一部のAltRPがZn2+に制限された環境で追加の機能を進化させた可能性もあります。これは、AltRPがパラロガストPrimRPから分岐しているという観察結果によって裏付けられています。AltRP遺伝子の配列相同性は、同じ種内のZn2+結合PrimRP遺伝子配列よりも、異なる種の相同体間で高いことがよくあります7,10。高度に分岐したAltRPをコードする遺伝子はZn2+依存性の転写制御下にあるため、厳密に制御され高度に保存されたリボソームスーパーオペロン14にかかる選択圧から排除されます。リボソーム機構とAltRPをコードする遺伝情報に対する分離された選択圧は、これらのRPを相同のPrimRPとは異なる進化の軌跡にさらし、異なる細菌10,15で同じAltRPの系統特異的な進化を可能にする可能性があります。細菌内にAltRPが広く存在し、これらのユニークなRPの分離された遺伝的調節は、AltRPの細菌リボソームへの取り込みがAltRP含有リボソーム(Alt-リボソーム)に特別な特性を付与するかどうかについて興味深い問題を提起します。
マイコバクテリアは、アルトリボソームのメカニズム特性を調査するのに理想的なバクテリアのグループです。まず、マイコバクテリアは、AltRPをコードする4つの遺伝子(S14-2、S18-2、L28-2、L33-2)を含む高度に保存されたaltRPオペロンを持っています。8,9。マイコバクテリアのAltRPは、PrimRPパラログとは大きく異なります。4つのPrimRP/AltRPペアすべてにおいて、特定のAltRP遺伝子は、同じ種のPrimRP遺伝子よりもすべてのマイコバクテリア種で類似しています10。結核菌とM. bovisのAltRPs18-2およびL28-2が証明するように、AltRPの系統特異的な進化はマイコバクテリア内でも明らかであり、これらは他のマイコバクテリア10には存在しないC末端のユニークな配列を含んでいます。第二に、この高度に関連性の高い細菌のグループには、土壌(M.smegmatisなど)から無数の宿主(ヒト(M.結核など)、ウシ(M.bovisなど)、水生生物(M.marinumなど)、鳥類(M.aviumなど)まで、さまざまな環境に存在する非病原性および病原性のメンバーが含まれています。マイコバクテリアにおけるaltRPオペロンの高度に保存された性質、特定のAltRP遺伝子の系統特異的な進化、およびこのグループのメンバーが存在する環境が大きく異なることは、Alt-リボソームのAltRP機能と機構的特性の保存的および系統特異的な進化を解析するユニークな機会を提供します。原核生物のゲノムにはAltRPが豊富に存在するにもかかわらず、AltRPとAlt-リボソームの役割は、ごく一部の細菌でしか調査されていません9,10,11,12,13,16,17,18,19.マイコバクテリアのZn2+制限増殖条件を検証するための特定の指標を持つ標準化されたシステムを確立することで、実験結果が改善され、リボソーム研究の分野におけるAlt-リボソームの理解が進むでしょう。
Zn2+は微量栄養素であるため、化学物質や水中のZn2+を微量に汚染すると、培地調製から除外された場合でも、Zn2+のバイオアベイラビリティに寄与します。水や化学薬品中に存在する微量のZn2+は、実験室によって大幅に異なるため、Zn2+制限成長の結果に影響を与えます。培地の各独立した調製物中の[Zn2+]を経験的に定量することは、ルーチンの増殖アッセイを実施するほとんどの研究室にとって過度に負担がかかりますが、成長培地中のZn2+汚染の可能性を排除するメカニズムは本質的に価値があります。この目的のために、ここでは、M. smegmatisおよびM. tuberculosisにおけるZn2+制限増殖およびAlt-リボソーム産生のための化学的に定義されたZn2+限定培地(ZLM)、成長容器、および種子培養物を調製するための詳細な方法を紹介します。ZLMでの増殖後の主要な形態形成特性(OD600で測定された細胞密度、細胞長、およびコエンザイムF420の蛍光)を使用して、Zn2+の制限が達成されたことを確認します。コエンザイムF420は、メタン生成菌およびマイコバクテリアの異化作用および酸化ストレスに対する防御に重要な役割を果たすデアザフラビン補因子です20,21.重要なことに、マイコバクテリアは、この補因子22が豊富に存在するため、420nmで励起されると自己蛍光性を示します。[Zn2+]とF420蛍光との間の分子結合は未解決のままですが、培養物中のF420蛍光を追跡することは、扱いやすく信頼性の高い生体指標です。
M. smegmatis では、バイオインジケーターの表現型は野生型細菌で発生しますが、altRP オペロンを欠く欠失変異体は同じ形態形成プログラムを受けず、鑑別バイオインジケーターとして使用できます10. M. tuberculosis は Zn2+ 制限中に M. smegmatis と同じ形態形成プログラムに従いませんが、M. tuberculosis は Zn に対して強固で全体的な応答を示します2+制限とこの方法に続く主要なバイオインジケーター表現型23。したがって、ここで定義されるシステムは、プリムリボソームとアルトリボソームを同じ増殖条件(すなわち、Zn2+制限)で生成することを可能にし、アルトリボソームの機能とその細菌生理学の形成におけるその役割の機構的解剖を容易にする。この増殖法は、活性なアルトリボソームの構造を分解し、野生型M. smegmatis24におけるそれらの翻訳活性を示すために使用されました。 さらに、この増殖方法とバイオインジケーターの表現型が、Zn2+制限中のAltRPの生物学的機能性を強調していることを裏付けるように、AltRPの発現はZn2+依存性の形態形成に必要であり、Zn2+制限されたM. smegmatis10,25のトランスクリプトームとプロテオームに大きな影響を与えます。 接種量とインキュベーション時間をわずかに変更した同じ方法を使用して、結核菌のZn2+限定培養物を生成します9,23。ここでは、M. smegmatis と M. tuberculosis の両方で Zn2+ 制限増殖を達成するためのプロトコルとバイオインジケーター表現型が詳細に説明されていますが、この細菌は培地中の Zn2+ 汚染に対してより敏感であり、成長の遅い病原体よりも広くアクセスしやすいため、M. smegmatis に焦点を当てています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
注:本研究で使用した菌株は、野生型 M. smegmatis mc2 155(ボストン子供病院のRobert Husson博士より提供)およびΔaltRP欠損株(Prisic研究室に由来10)である。これらは、地域のバイオセーフティ規定および利用可能なリソースに応じて、バイオセーフティレベル1(BSL1)またはBSL2研究室で培養可能である。ここでは、BSL2研究室向けにプロトコルを記載している。BSL1研究室で実施する場合は、バイオセーフティキャビネットの代わりにブンゼンバーナーを用いた無菌操作を用いることができる。また、他の菌株や条件を含めたい研究者は、アッセイを行う総培養数に応じて必要な培地量を算出する必要がある。病原性 M. tuberculosis H37Rv (Mtb-H37Rv; ボストン子供病院のRobert Husson博士より提供) を扱う場合は、呼吸用保護具(PAPRやN95など)を着用し、BSL3研究室で操作すること。Mtb-H37Rvなどの強毒性マイコバクテリアを培養する際は、フラスコを再利用しないこと。栄養要求性 M. tuberculosis mc26206 (Mtb-Aux) は減毒されており、BSL2研究室で操作可能である(アルバート・アインシュタイン医科大学のWilliam R. Jacobs Jr.博士より提供)。
1. フラスコの準備
注:Zn2+制限的な増殖条件は、再利用可能な(オートクレーブ可能な)ポリカーボネート製250 mL三角フラスコで達成されます。Zn2+制限的な増殖にガラス製フラスコを使用しないでください。また、本プロトコル19で提示した結果と、厳格な酸洗浄手順を比較・検討しないでください。新品のフラスコでZn2+制限的な増殖条件を達成するには十分ですが、実験において新品と中古のフラスコを混在させてはいけません。弱点(通常は継ぎ目)が見られるフラスコや、20回以上使用したフラスコは廃棄してください。キャップフィルターに劣化がないか定期的に確認し、破損している場合は廃棄してください。フィルターを覆うキャップの上のネジ式蓋がある場合は、これを廃棄してください。本手法では、フラスコを洗浄し、再利用に向けて準備するための注意事項について概説します。
- フラスコに永続的なラベルを貼り、同一のセットがZn2+制限条件下でのみ使用されるようにします。別のフラスコセットには、Zn2+十分条件下での増殖用としてラベルを貼ります。フラスコの混同を防ぐために、異なる色でラベル付けすることが有用です。
- フラスコ内で培養残渣を乾燥させないでください。フラスコから培養液をデカンテーションした後、すぐに水(例:100 mL)を加えてください。増殖終了時に培養物を回収しない場合は、本プロトコルに従ってバイオインジケーターの表現型を記録した後、全培養液を最終濃度10%の漂白剤を含む液体廃棄物回収容器に注いでフラスコを空にしてください。
- フラスコに水を入れたまま蓋を閉め、液体サイクル(121 °C以上、15 psi)で20分間オートクレーブ滅菌します。
- オートクレーブ後、非イオン性の低泡性洗剤でフラスコを洗浄し、柔らかいスクラバーブラシで十分にこすり洗います。Zn2+制限増殖に使用したフラスコの洗浄専用のブラシを用意してください。フラスコに汚れや残渣がないことを確認します。キャップ類はこすったり石鹸を使用したりせず、脱イオン水で穏やかにすすいでください。
- フラスコを水道水で十分にすすぎ、次に脱イオン水(タイプIIまたはIII)で3回、さらに超純水(タイプI、25 °Cで18.2 MΩ-cm、総有機炭素5 ppb以下)で少なくとも1回すすぎます。
- 底に水が溜まらないよう、フラスコを垂直に逆さまに置きます。標準的な壁掛け式の実験室用乾燥ラックは、フラスコが傾いた状態で保持されるため少量の水が溜まりやすく、使用しないでください。標準的な食器ラックで十分です。フラスコと蓋を完全に乾燥させます。
- 乾燥後、フラスコにキャップを締め、蓋をアルミホイルで覆います。滅菌状態を示すため、またキャップフィルターを埃から保護するために、ホイルにオートクレーブインジケーターテープを貼ります。
- 洗浄済みのフラスコを(121 °C以上、15 psiで)20分間オートクレーブ滅菌し、その後(オートクレーブにその機能が備わっている場合は)サイクル後の真空乾燥を行います。フラスコは乾燥した状態で、埃が入らないように保管してください。
2. Zn2+制限培地(ZLM)の調製
注意:培地の調製には、プラスチック製のビーカー、メスシリンダー、およびその他の消耗品のみを使用してください。Zn2+制限培地の調製専用の器具セットを指定してください。使用前後に、すべての器具を超純水(タイプI)で十分に洗浄してください。高純度の化学薬品を使用し、可能な限り同一のサプライヤーから購入してください。
- スターラーバーを入れた1 Lのプラスチックビーカー内で、以下の化学物質を約950 mLの超純水と混ぜ合わせ、Zn2+塩を添加しないZn2+制限Sauton培地26を調製する:
0.5 g KH2PO4 (0.05%; MW: 136.09)
0.5 g MgSO4 x 7H2O (0.05%; MW: 246.48)
2 g クエン酸無水物 (0.2%; MW: 192.12)
4 g L-アスパラギン, 99% (0.4%; MW: 132.12)
60 mL グリセロール (6%)
189 µL 1 M クエン酸鉄アンモニウム (0.005%; MW: 265)- 使い捨てのプラスチック製50 mLセロロジカルピペットを用いてグリセロールを添加する。ピペット内にグリセロールが残らなくなるまで、培地の中で10回ほどピペッティングして十分に洗い流す。
注:グリセロールは粘度が高く、正確な計量が困難である。代替法として、グリセロールをメスシリンダーに入れ、約30 mLの超純水で数回すすぎ、その洗浄液を培地に加えることも可能である。この方法を採る場合は、グリセロールとメスシリンダーからの洗浄液を加えた後の最終容量が約950 mLを超えないよう、最初は少なめの量(約600 mL)から開始すること。
- 使い捨てのプラスチック製50 mLセロロジカルピペットを用いてグリセロールを添加する。ピペット内にグリセロールが残らなくなるまで、培地の中で10回ほどピペッティングして十分に洗い流す。
- 培地の容量を約950 mLまで調整し、よく混ぜる。L-アスパラギンが溶解するまで数分かかるため、白い凝集塊がなくなるまで待ってから次へ進む。
注:クエン酸鉄アンモニウム溶液により、培地は淡黄色になる。 - プラスチック容器(15 mLコニカルチューブなど)を用いて、超純水で新鮮なNaOH溶液(約10% w/v)を15 mL調製する。
- 使用前にpHメーターを超純水で十分にすすぎ、電極のバルブ部分のみを培地に浸す。緩やかに攪拌しながらpHメーターを培地に浸したままpHを調整する。使い捨てのプラスチック製転送ピペットを用いて、調製したばかりのNaOHを加え、最終pHを7.4に調整する。
注:培地の初期pHは非常に酸性である。pHを中性域まで上げるには大量のNaOH溶液が必要となる。まず最初に4-6 mLのNaOH溶液を加え、pHが6.5付近に達したら、NaOH溶液を滴下して調整する。目標pHの7.4を超えないように注意すること。もし超えてしまった場合は、HClや他の酸で再調整しようとせず、その培地は廃棄すること。プローブの汚染を防ぐため、ZLM調製専用のpHメーターを用意し、他の培地や緩衝液のpH測定に使用しないことが望ましい。 - 培地をメスシリンダーに移し、超純水を用いて最終容量を1 Lに合わせる。0.2 µmの使い捨てフィルターフラスコを用いて、培地をフィルター滅菌する。
- フィルター滅菌した20% Tween-80溶液 2.5 mL(最終濃度0.05%)を無菌的に添加する。遮光し、4 °Cで最大6ヶ月間保存する。
3. M. smegmatisにおけるZn2+制限下での増殖
注:ZLMに含まれるZn2+の量にはバッチ間の変動があるため、1つの実験におけるすべての培養には、同一バッチの培地を使用するか、十分に混合した複数の培地を使用することが不可欠です。培養のセットアップに必要な培地に加え、種株の洗浄および定量的調整用に約100 mLの余分な培地が必要です。
- すべての操作をバイオセーフティキャビネット内で行ってください。増殖実験を開始する18時間前に種株培養液を調製します。過増殖した種株培養液や、凝集が起きているものは使用しないでください。種株培養液は1株につき1つで十分です。
- 無菌的に、50 mLのバイオリアクターチューブに7H9-ADC培地(0.05% Tween 80および10% ADC濃縮液[最終濃度:0.5%牛血清アルブミン、0.2%デキストロース、0.085% NaCl、および任意で0.0003%カタラーゼ]を含むMiddlebrook 7H9ブロス)を5 mL加える。
- 無菌的に添加する 10 µL 解凍したグリセロールストック細胞(~に従って調製された)26) を培地へ直接加えます。チューブに蓋をねじ込みます。
- チューブをシェイキングインキュベーター内にしっかりと固定し、約... 45° 振り混ぜながら、液体がチューブの半分ほどまで上がるように角度を調整します。
- チューブを〜でインキュベートする 37 °C 120 rpmで約18時間振盪する。
- 一晩培養した種菌培養液を確認し、培養液が均一に濁っており、顕著な凝集が起きていないことを確認する。600 nmにおける吸光度(OD600のオーバーナイト培養物のOD値は、理想的には0.5~0.8程度である。
- overnight培養に使用したバイオリアクターチューブ内の overnight培養物を、3,000 x g で遠心分離してペレット化します。 g 室温で5分間。
- 上清をデカントまたは吸引して除去し、5 mLのZLMで再懸濁する。遠心分離と再懸濁の手順をさらに2回繰り返し、計3回の洗浄を行う。
- 遠心分離の工程の間、キュベットに70%エタノールを溢れるまで満たして滅菌する。エタノールを満たしたキュベットをバイオセーフティキャビネット内で10分間静置し、その後ピペットを用いてZLMで3回十分に洗浄する。
注:細胞のノーマライゼーション(濃度調整)プロセスを効率的に行うには、時間と習熟が必要です。エタノール滅菌済みのキュベット内で直接細胞をノーマライゼーションすることで、このプロセスを大幅に短縮できます。 - 研究に含まれる菌株数分だけのキュベットを用意してください。例えば、本プロトコルでは、野生型用とΔ用で、滅菌済みキュベットが2本必要となります。altRP 変異体
- 遠心分離の工程の間、キュベットに70%エタノールを溢れるまで満たして滅菌する。エタノールを満たしたキュベットをバイオセーフティキャビネット内で10分間静置し、その後ピペットを用いてZLMで3回十分に洗浄する。
- ZLMで3回洗浄した後、各細胞ペレットを2 mLのZLMに再懸濁する。
- 分光光度計を〜でブランク調整する 600 µL キュベットにZLMを入れます。キュベットを滅菌する必要はありません。このキュベットを脇に置いておき、各培養液(すなわち菌株)を標準化する前に分光光度計のブランク測定に使用してください。
- 一度に1株ずつ操作し、移送する 600 µL ステップ3.5で洗浄した細胞を、ステップ3.4.1で準備した滅菌済みキュベットに移し、初期OD値を測定する。600OD値が600 1を超える場合は、ステップ3.8に進んでください。ODが600 1未満の場合は、サブステップ3.7.1および3.7.2に従ってください。
- 開始時のOD(光学的密度)が600 ステップ3.7の測定値が1未満である場合は、キュベット内のすべての培養液を回収し、遠心管に残っている洗浄済みのシード細胞に加えて、ステップ3.3と同様に再度遠心分離を行う。より高い細胞密度を得るために、ステップ3.5で使用した量よりも少ない容量(例:1 mL)で培養液を再懸濁し、ステップ3.7を繰り返す。
- OD値が600 ステップ 3.7.1 後の値が依然として 1 未満である場合、培養密度が不十分です。ステップ 3.1 から手順をやり直してください。オーバーナイト培養における最終的な培養密度が OD 1 前後になるよう、培養時間を長くするか、またはオーバーナイト培養の開始時の接種量を増やしてください。600 = 0.5-0.8(ステップ3.2に記載)。
- 〜に添加するZLMの量を算出します。 600 µL キュベット内の洗浄済み細胞のODを測定する600 以下の式とODを用いて1の算出を行い、600 ステップ3.7で測定した:
ZLMの量(μL) = (開始時OD600 - 1) × 600 μL - ステップ3.8で算出した量のZLMを、ステップ3.7で準備したキュベットに加え、ピぺッティングを5〜10回行い十分に混合した後、ODを再測定する。600.
- OD値を調整する600 ODの5%以内に600 以下のサブステップに従い、1に合わせます。調整ごとに大量のチップを消費することを避けるため、ピペットを2本使用し、そのうち1本(P1000サイズ)を培養液の混合専用にします。
- OD(光学的密度)が600 1を超える場合は、ZLMを滴下して加え(~50 µL (一度に1検体ずつ)、ピペッティングで5~10回十分に混合し、OD値を測定する。600培養液のOD値が目標値の5%以内になるまで、必要に応じてこの工程を繰り返します。600 = 1.
- OD値が600 正規化中に1を下回った場合は、洗浄済み細胞をさらに追加し(~20 µL (開始するには)ステップ3.5から、ピペッティングで5~10回十分に混合し、OD値を測定してください。600必要に応じてこの工程を繰り返します(または、OD値が[原文欠落]の場合、ステップ3.10.1で説明した通りにZLMを追加してください)。600 1) の手順を、ODが目標値の5%以内に達するまで繰り返します。600 = 1.
- 分光光度計内での培地の漏出を防ぐため、細胞のノーマライゼーション中はキュベット内の液量が約1.5 mLを超えないようにしてください。必要に応じて、希釈時にキュベットから培地を取り出してください。また、OD値を正確に測定するために必要な最小液量を下回らないようにしてください。600 分光光度計に使用します。ほとんどの分光光度計では、少なくとも 600 µL.
- 本研究に含まれるすべての株および条件について、細胞のノーマライゼーション手順(3.6~3.10)を繰り返します。
- ステップ1に従って準備した250 mLプラスチック製三角フラスコに、ZLM 50 mLを無菌的に分注し、実験に必要な総数のフラスコを準備する。
- 無菌的に添加してフラスコに接種する 50 µL ODの600 =キュベットから直接、最終ODが1となるように調整した培養液600 0.001(標準化した接種源の1:1000希釈液)
- 亜鉛(Zn)を添加せずに培養した培養物について2+ 制限(すなわち、Zn2+-補充培地(ZRM)を添加し、 30 µL 滅菌済み10 mM ZnSO4の4 (1M滅菌ストック溶液から調製した新鮮な溶液を)培養フラスコに直接添加し、最終濃度を次の通りにする: 6 µM 硫酸亜鉛4.
- フラスコを以下の条件でインキュベートする: 37 °C 100 rpmで3日間振盪培養し、定常相に到達させる(接種日を0日目とする)。
- 培養の各日に、モノクロメーターまたはフィルターベースのマイクロプレートリーダーを用いて、以下の増殖指標を測定します。 200 µL 96ウェル平底マイクロプレートで培養し、細胞が沈降しないよう、分注直後にプレートの測定を行う。
注:絶対蛍光値よりも比率や蛍光スキャンの方が有用であること、また、測定される液量が少ないためプレートのセットアップ中に速やかに室温と平衡に達することから、プレートリーダーの予熱は不要である。蓋への結露が問題となる場合は、プレートの上部または下部から蛍光を測定することができるが、下部から読み取った場合は全体的に蛍光強度値が低くなる。- 細胞密度(すなわち、OD600):OD値を報告する600 マイクロプレートリーダーから得られたデータを用いて、一定の容量(例: 200 µL標準的な1 cmの光路長に。
- コファクターFの蛍光420 (励起 420 nm/蛍光 475 nm):フィルターベースのマイクロプレートリーダーを使用する場合は、最も近いフィルターセット(例:励起 430 nm/蛍光 488 nm)と黒色の96ウェルマイクロプレートを使用してください。
- 375 nmにおける背景蛍光を測定する(励起 375 nm/蛍光 475 nm)
- モノクロメーターを使用する場合は、励起波長を230~440 nm(5 nm刻み)、蛍光波長を475 nmに固定して、蛍光強度スキャンを実施してください。
- モノクロメーターを使用する場合は、以下の式を用いて、375 nmにおける蛍光強度の420 nmに対する割合(%)を算出してください。
F375/420 (%) = (F375/F420) x 100
4. 細胞長の記録および測定
- 3日目に、細胞の長さを可視化して記録します。ガラススライドとカバーガラスを糸くずの出ないワイプで清浄にします。培養液を10 µLピペットでスライド上に滴下し、培養液の上に直接カバーガラスを載せます。カバーガラスを軽く押し、培養液を広げてカバーガラスの下の全領域をほぼ満たすようにします。乾燥を防ぐため、スライドを準備したらすぐに可視化してください。
注:培養液が容易に広がらない場合、デブリが良好な接触を妨げ、水の動きによって細胞にピントを合わせることが困難になります。その場合は、新しいスライドを準備してください。 - 100倍油浸対物レンズと10倍接眼レンズ(総合倍率1000倍)を備えた複合顕微鏡(または後述のDIC顕微鏡)とカメラアタッチメントを用いて、準備したスライドを観察します。
注:微分干渉(DIC)顕微鏡10のコントラストを用いると、細胞が格段に見やすくなります。可能であれば、高品質な画像を得るためにこのタイプの顕微鏡を使用してください。日常的な解析やZn2+制限増殖状態の確認であれば、標準的な複合光学顕微鏡で十分です。 - ピントが合っており、同一平面上にあり(すなわち、細胞の全長が見えている)、かつ動いていない複数の細胞があるスライド上の領域を撮影します。少なくとも100個の細胞を測定できるよう、スライド上の異なる領域(または同一培養液の複数のスライド)にわたって十分な数の写真を記録してください。
- 同じ顕微鏡と対物レンズを使用して、キャリブレーション用スライドを撮影します。
- Fiji27で、直線ツールを使用してキャリブレーション用スライドの長さに沿って線を引きます。Analyze > Set scaleを選択し、スケールバーの既知の距離と単位を入力します。Globalを選択して、今後のすべての画像と測定にこのスケールを適用します。
- 顕微鏡写真を開きます。直線ツールを使用して細胞の長さに沿って線を引いてから、キーボードのMキーを押して細胞の長さを測定します。各培養液について、少なくとも100個の細胞を測定してください。
- Fijiのポップアップウィンドウに生成された長さのデータを、表計算ソフトにコピーするか、統計解析のためにカンマ区切り値(.csv)ファイルとして保存します。
5. Zn2+制限下でのM. tuberculosis (Mtb) 培養のための改変
注記:Mtb-H37Rvとは対照的に、Mtb-AuxはL-leucineおよびD-pantothenateを合成できないため、これらのサプリメントを培地に追加します28。Mtb-Auxへのサプリメント添加はZn2+制限に影響を与えず、両株ともZLMにおいて同様の表現型を示します23。本プロトコルは既報のプロトコル23から変更されており、主な相違点は、凝集を減少させ、マクロファージ感染などの下流工程に必要な単一細胞の濃縮を可能にするために、培養期間を10日間から8日間に短縮したことです。その他の軽微な相違点については、原著論文23をご参照ください。接種方法は、M. tuberculosisの増殖を開始させるにははるかに高い接種量が必要であるため、M. smegmatisとは異なります。
- Mtb-Auxには、さらに以下の補完剤を添加してください。 50 µg/mL L-ロイシンおよび 48 µg/mL すべての培地にD-パントテン酸を添加する。50 mg/mLのL-ロイシンおよび48 mg/mLのD-パントテン酸カルシウムの1000倍ストック溶液を、フィルターを用いて滅菌し、 0.2 µm ろ過し、滅菌済み培地に追加する。
- 無菌的に、融解させたグリセロールストック細胞1 mLを、14 mLラウンドボトムスナップキャップチューブ(Mtb-Auxの場合)または50 mLバイオリアクターチューブ(Mtb-H37Rvの場合)に入れた4 mLの7H9-ADCに加える。
- 〜でインキュベートする 37 °C 培養液のODが~に達するまで振盪せずに600 1. この操作には約1週間かかります。バイオセーフティキャビネット内でチューブを開け、数回ピペッティングして培養液を混ぜ合わせることで、1日1回、培養物を曝気してください。
- 250 mLのベント付きプラスチックフラスコに入れた50 mLの7H9-ADCに、定常培養液1 mLを接種する。7H9-ADCを用いた50 mLの培養液1本で、菌株および条件ごと(例:ZLMおよびZRMにおける野生型)に生物学的3反復分を十分に賄うことができる。大きな凝集塊(細胞の大きな凝集)を避けるため、接種前に培養液を5~10分間静置して凝集塊をチューブの底に沈殿させ、上澄み部分から培養液を採取するように注意すること。
注:大きな凝集塊を用いて接種すると、培養物も凝集しやすくなり、培養の標準化および再現性に影響を及ぼします。 - ~でインキュベートする 37 °C 培養液のODが到達するまで、100 rpmで振盪しながら培養し、600 0.5-0.8(対数増殖期中期)。これには3~5日かかります。
- 培養液を50 mLコニカルチューブに移し、3,000 x gで遠心分離して細胞をペレット化する。 g 室温で10分間放置する。セロロジカルピペットで40 mLを吸引し、残りの上清をP1000マイクロピペットで取り除くことで、上清を廃棄する。
注:このステップはZnを低減させるために極めて重要です。2+ 7H9-ADC培地からのキャリーオーバー。 - ペレットを5 mLのZLMで再懸濁し、コニカルチューブ内でZLMを用いて全培養液量を50 mLまで調整する。
- 3,000 x gで遠心分離を繰り返す。 g 室温で10分間遠心分離し、細胞をペレット化させる。上清を捨てる。ステップ5.7に従い、細胞ペレットを最終容量50 mLになるように再懸濁する。
- ODを測定する600 洗浄した種細胞のODを測定し、開始時のODを得るために必要な液量を算出する600 以下の式を用いて、50 mL中に0.05(Mtb-H37Rv)または0.08(Mtb-Aux)の量を:
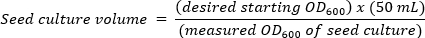
注:開始時ODによるMtb-Auxの増殖600 0.05では不整合であるため、より高いOD値(吸光度)を600 安定した増殖を得るために、0.08を使用します。 - ステップ5.9で算出した量の種株培養液を新しい50 mLコニカルチューブに分注し、ZLMで50 mLまでメスアップする。洗浄および規格化を行った培養液をコニカルチューブから、ステップ1で説明した通りに準備したプラスチック製エルレンマイヤーフラスコにデカントする。各株および各条件のすべての生物学的レプリケートについて、同一のコニカルチューブを用いてこの操作を繰り返す。
- Zn不含条件下で培養した菌株について2+ 制限(すなわち、Zn2+-充足培地(ZRM)を添加し、 30 µL 滅菌済み10 mM ZnSO4の4 培養フラスコに直接添加し、最終濃度を~にする 6 µM ZnSO₄4.
- 培養フラスコを~でインキュベートする 37 °C 100 rpmで振盪しながら8日間培養し、ODを測定する。600 およびF420 ステップ3に記載されている通り、増殖期間を通じて蛍光を確認する。増殖開始から数日以内に凝集が見られる場合は、培養物を廃棄すること(すなわち、培養液が混濁しておらず、液全体に凝集塊が存在する場合)。
注:理想的には、培養開始後の数日間は、培養液が主にプランクトン状態(すなわち、肉眼で見える大きな凝集塊がない状態)である必要があります。Mtb培養液、特にZLM培養液は、増殖に伴い次第に凝集しやすくなり、対数増殖期後期には、培地表面にフレーク状の凝集塊が浮遊することが予想されます。23.
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
~の生物指標表現型 M. smegmatis
野生型 M. smegmatis Znレベルに達したZLMで培養された培養物2+Zn制限条件下で生育させた細胞をZn添加条件下で生育させた細胞と比較すると、主に3つのバイオインジケーター表現型が認められる。2+-十分添加条件:[1] ODの低下600、[2] 細胞の伸長、および [3] 420 nmにおけるピーク蛍光強度の低下。AltRPsを欠損した変異体(ΔaltRP)は同じZnを持たない2+野生型としての-依存的な形態形成10, およびZnにおけるその独自の表現型2+制限培地を分化バイオインジケーターとして利用できる。したがって、まずZRMおよびZLMで培養した野生型を用いて、3つのバイオインジケーター指標すべてを評価する必要がある。もし期待されるZn2+限定的...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
アルトリボソームの機構的基盤に関する知識のギャップへの主な寄与は、in vitroでZn2+制限条件を達成することの難しさです。実験室環境での微量のZn2+汚染は一般的です。したがって、再現性のあるZn2+限定成長条件を達成することは困難です。Zn2+ 汚染は複数の発生源から発生する可能性がありますが、汚染と変動の最も重要で一般的な原因は、実験器具のすすぎや培地の製造に使用される超純水です。超純水システムは適切にメンテナンスする必要があり、実験器具をすすぐか培地に水を使用する前に 1 分間洗い流す必要があります。超純水で十分に洗浄またはすすぎないフラスコは、Zn2+汚染を引き起こす可能性があり、これは、ZLMの同じバッチからの特定のフラスコのセル密度の増加によって明らかになりますが、他のフラスコでは明らかではありません。新品のフラスコを使用して、Zn2+ 汚染源が再利用されたフラスコまたは培地によるものであるかどうかを評価できます。ZLMのZn2+汚染は、培地の製造に...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者には利益相反はありません。
謝辞
この研究は、全米科学財団(NSF)のCAREER Award 1844854、American Lung Association Innovation Award IA -937538、および国立衛生研究所(NIH)NIAID R21 AI109293からS.P.に資金提供されました。Allexa D. Burgerの現在の住所は、ハワイ州ホノルルのハワイ大学マノア校のPacific Biosciences Research Centerです。 米国。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1000 mL真空ろ過システム、標準ライン | VWR | 10040-440 | |
| 125 mL 三角シェイカーフラスコ | Greiner Bio-One | 679501 | |
| 14 mL培養チューブ、プラスチック、デュアルポジションキャップ付き | VWR | 60818-725 | |
| 250 mL 三角三角シェイカーフラスコ | Greiner Bio-One | 679502 | |
| 40X-1000X ラボ双眼生物学的化合物顕微鏡 | Omax | M82EZ | |
| 50 mL 生体反応チューブ、滅菌済み | VWR | 76211-286 | |
| 50 mL 高性能遠心分離チューブ、フラッグキャップ付き | VWR | 89039-656 | |
| Alcojet 低発泡粉末洗剤 | Alconox | 1404 | |
| クエン酸鉄アンモニウム (III)、茶色 | Thermo Scientific | AAA1119930 | MW:265 g/mol、1M 溶液の場合、5 mL の超純水に 1.325 g を加え、4 °C で光から保護して保存してください。 |
| ウシ血清アルブミン | Thermo Scientific | J10857-A1 | |
| カルシウム D-パントテン酸 | Thermo Scientific | AC243300050 | |
| カタラーゼ | Sigma-Aldrich | C1345-10G | |
| クエン酸無水、結晶性 | フィッシャーサイエンティフィック | BP339-500 | |
| デキストロース無水 | フィッシャーサイエンティフィック | D14-500 | |
| Difco Middlebrook 7H9 Broth | BD Diagnostics | 271310 | |
| DiluPhotometer OD600 for the Determination of Cell Density and Bradford Assays | Implen | OD600-10 | |
| GENios FL Microplate Reader | Tecan | Discontinued | |
| Glycerol | Fisher Scientific | G33-4 | |
| Infinite M200 PRO Multimode Microplate Reader | Tecan | LGE140213-20BL | |
| L-アスパラギン | サーモサイエンティフィック | AAB2147336 | |
| L-ロイシン | サーモサイエンティフィック | A1231122 | |
| マクロファイア SP CCDカメラ | オプトロニクス | オリンパスの顕微鏡用 | |
| 硫酸マグネシウム七水和物 | VWR | 97062-134 | |
| ミリQ ダイレクト8 純水製造システム | ミリポア | C85358 | |
| モティカム X3 | モティック | 製造中止、Moticam X5 Plusに置き換えられました。複合顕微鏡で使用するため | |
| オレイン酸 | サーモサイエンティフィック | 031997-14 | |
| オリンパス BX51 直立顕微鏡 | オリンパス | 製造中止、BX53M | |
| リン酸カリウム、モノベーシック | フィッシャーサイエンティフィック | BP362-500 | |
| セミマイクロ両面使い捨てプラスチックキュベット | VWR | 97000-590 | |
| 塩化ナトリウム、クリスタル | VWR | VW1494-01 | |
| 酸化ナトリウム | フィッシャーサイエンティフィック | S318-500 | |
| Tween 80 | MP Biomedicals | 103170 | |
| 硫化亜鉛七水和物、結晶/ ACS | MP Biomedicals | 219145290 |
参考文献
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
