ここでは、神経疾患のマイクロRNA(miRNA)バイオマーカーの供給源として、最小限の新鮮凍結脳組織切片と利用可能な高速遠心分離法、およびサイズ排除クロマトグラフィーを組み合わせたプロトコルを確立します。
この記事について
サマリー
要約
細胞外小胞(sEV)は、細胞間コミュニケーションの重要なメディエーターであり、タンパク質、脂質、核酸(マイクロRNA、mRNA、DNA)などの多様なカーゴを輸送します。マイクロRNAのsEVカーゴは、生物学的障壁(血液脳関門など)を通過し、さまざまな体液を通じてアクセスできるようになる能力があるため、強力な非侵襲的疾患バイオマーカーとして有用性が期待されています。体液中のsEVバイオマーカーに関する数多くの研究にもかかわらず、特に脳から組織または細胞特異的なsEV亜集団を特定することは依然として困難です。私たちの研究では、サイズ排除クロマトグラフィー(SEC)を使用して、凍結したヒト脳切片の最小量からsEVを分離する既存の方法を適応させることで、この課題に対処します。
倫理的承認後、約250 μgの新鮮凍結ヒト脳組織(Manchester Brain Bank[英国]から取得)を3つのドナー組織からスライスし、コラゲナーゼ3型/Hibernate-E溶液でインキュベートし、中間攪拌を行い、その後、遠心分離とろ過ステップを連続して行いました。次に、SEC法を用いてsEVを分離し、MISEVガイドラインに従って特徴付けました。これらのsEV内からRNAを単離する前に、溶液をProteinase-KおよびRNase-Aで処理して、非sEV細胞外RNAを除去しました。RNAの量と質は、qPCRおよびsmall RNAシーケンシング実験のためにさらにチェックされ、処理されます。
sEVの存在は、蛍光ナノ粒子追跡分析(fNTA)および表面マーカー(CD9、CD63、CD81)のウェスタンブロットによって確認されました。サイズ分布(50-200 nm)は、NTAおよび電子顕微鏡法により確認されました。溶解したsEV内の総RNA濃度は3〜9 ng/μLの範囲であり、選択した候補microRNAのqPCRによる定量に成功しました。MiSeqでのsmall RNAシーケンシングは、サンプルあたり140万〜500万リードの高品質データ(Q >32)を提供しました。
この方法は、最小限の脳組織容積からsEVを効率的に分離し、特性評価することを可能にし、非侵襲的なバイオマーカー研究を促進し、公平な疾患バイオマーカー研究を有望視し、神経変性疾患やその他の障害に関する洞察を提供します。
概要
細胞外小胞(EV)は、すべての多細胞生物における細胞間コミュニケーションの主要なプレーヤーの1つです1。EVは、タンパク質、脂質、核酸などのさまざまなカーゴロードのレシピエント細胞への移動を促進できる細胞由来の脂質二重膜粒子です。小型EV(sEV)は、平均直径サイズが<200nmの脂質結合小胞と定義され、血液脳関門を通過する能力を持っています。したがって、彼らは、神経変性疾患やアルツハイマー病(AD)、前頭側頭型認知症(FTD)、パーキンソン病(PD)、癌などの他の状態のプリオン様の広がりと悪化に関与しています2,3。さらに、sEVは血液、脳脊髄液(CSF)、唾液、さらには尿など、さまざまな生体液に見られるため、バイオマーカーや非侵襲的診断の分野にも有効活用できます。例えば、ADの研究では、タウ/Aβ、さらにはAβ42/Aβ404などの生体流体病原性タンパク質比の使用が指摘されている場合があります。
sEVの既知のカーゴの1つはマイクロRNA(miRNA)であり、これは長さが約22ヌクレオチドの小さなノンコーディングRNA分子のグループで、mRNAの3'-UTR領域に結合し、通常はタンパク質発現を負に調節します。miRNAは、多くの細胞の役割に関与しており、がんや神経変性疾患など、さまざまな疾患の病因にも関与しています。Chengらは、AD患者からの血清由来sEV miRNA発現シグネチャーのハイスループットシーケンシング解析を実施しました5。神経画像記録と年齢、性別、APOE ε4対立遺伝子の提示の既知の危険因子と組み合わせると、結果は87%の感度と77%の特異度でADを予測することがわかりました。さらに、研究により、初期段階の PD6 を診断できる可能性のある 2 つのアップレギュレーションされた CSF miRNA(miR-151a-3p、let-7f-5p)と 3 つのダウンレギュレーションされた miRNA(miR-27a-3p、miR-125a-5p、miR-423-5p)が特定されました。病理学的疾患では、病理学的状態が疾患の特定の特徴的な症状に先行する可能性がありますが、神経変性では、病理学的特徴の蓄積は認知機能低下よりもはるかに早く発生します。
マイクロRNAは、その多様な機能と高次のエピジェネティックな制御により、タンパク質よりも効果的なバイオマーカーとなる可能性があります。脳組織を用いることで、研究者は疾患とそのサブタイプに対する特定の脳由来sEV(BDsEV)miRNAシグネチャーを特定できる可能性があります。例えば、ニューロンマーカーとグリアマーカーを持つsEVは、異なるmiRNAカーゴを示す可能性があり、その分析により、より正確な疾患検出方法が可能となります。さらに、BDsEVは神経病原性タンパク質のトランスシナプス拡散に大きな役割を果たしていることが示唆されている7。以前の報告では、新鮮凍結脳組織からsEVを得るための免疫沈降および密度勾配(ショ糖勾配)超遠心分離が提案されている8,9。ただし、これらのアプローチでは、高品質のsEVサンプルを取得するために、超遠心分離機およびダウンストリーム精製方法を備えた特定のインフラストラクチャが必要です10。より最近の報告では、アプローチ11,12,13に対するいくつかの変更と改善が提案されています。しかし、それにもかかわらず、ヒト組織からのsEV由来マイクロRNAの単離と研究はまだ広く適用されていません。このプロトコルで説明されているアプローチは、この技術へのアクセス性を高めるために、脳由来の sEV 研究のための洗練された段階的なプロトコルを提供することを目的としています。最小限の脳組織を用いてプロトコルを確立し、サイズ排除クロマトグラフィーを用いて純粋なsEVを単離し、これらのsEVのマイクロRNAカーゴから高品質な次世代シーケンシングデータを示しました。
プロトコル
この研究は、マンチェスター・ブレイン・バンク(REC reference 09/H0906/52)およびサルフォード大学の倫理委員会(アプリケーションID:3408)によって倫理的に承認されています。
1. コラゲナーゼを用いた凍結脳組織切片上の細胞内マトリックスの解析
- 凍結脳組織250 mg(厚さ約0.4 mmの断片)を滅菌メスでコールドプレートに薄くスライスし、75 U/mLコラゲナーゼIII型/冬眠E溶液2 mLを加えます。
- 各サンプルを37°Cのウォーターバスで20分間インキュベートします。5分ポイントで、各サンプルを2回反転させて混合します。10分経過時に、10 mLのプラスチック製ディスポーザブルストリケットを使用して、各サンプルを3回穏やかにピペットで撒きます。
- 各サンプルを氷上に置き、1x Protease inhibitorカクテルと1x phosphatase inhibitorを加えます。これにより酵素反応が停止し、コラゲナーゼIII型を用いた消化の終点となります。
- 各脳組織サンプルを300x g で4°Cで10分間遠心分離します。 各上清を回収し、さらに2000 x g で4°Cで15分間遠心分離します。
- 各上清を再度収集し、0.22 μmフィルターでろ過します。各濾液を10,000 x g で48分間、4°Cで遠心分離します。
- 上清を採取し、各サンプルに2:1の比率で沈殿バッファーを添加します。4°Cで一晩インキュベートします。
- 各サンプルを10,000 x g で96分間、4°Cで遠心分離し、ペレットを100 μLの細胞外小胞(EV)遊離PBSに再懸濁します。
2. サイズ排除クロマトグラフィーカラムの調製
- 使用前に、あらかじめ調製したSECカラムを室温(RT)で15分間平衡化します。
注意: ネジキャップの前にボトムキャップを取り外す必要があります。 - 平衡化後、カラムの上部から保存剤バッファーを取り出し、250 μL の EV フリー PBS を使用してカラムを 2 回洗浄します。各PBS洗浄は、重力によってカラムに入るように放置されます。
3. サイズ排除クロマトグラフィーを用いた小さな細胞外小胞の単離
- 再懸濁したペレットをSECカラムの上部に加え、カラムを50 x g で30秒間遠心分離します。フロースルーを破棄します。
- 180 μL の EV フリー PBS を SEC カラムの上部に加え、カラムを 50 x g で 1 分間遠心分離して、脳由来の sEV をカラムから溶出させます。
注:上記のプロトコルの一部を 図1にまとめます。
4. ウェスタンブロッティングによる微小細胞外小胞マーカーの確認
- ウェスタンブロット解析の前にsEVを溶解するには(すべての膜および細胞質カーゴが解析されるようにするため)、単離したsEVサンプルを溶解および抽出バッファー(1xプロテアーゼ阻害剤および1xホスファターゼ阻害剤)で1:1に希釈します。
- サンプルを4°Cで30分間撹拌します。
- サンプルを14,000 x g で15分間遠心分離します。
- タンパク質上清を採取し、タンパク質アッセイキットを使用してタンパク質濃度を測定します。
- サンプルを4x Laemmli bufferと混合し、20 μgのタンパク質を事前に染色したタンパク質ラダーに対して各ウェルにロードします。
- 分離したら、タンパク質を0.45 μmのニトロセルロースメンブレンに移します。転写後、メンブレンを5%BSAで2時間ブロッキングします。
- メンブレンを一次抗体(表1)と一晩インキュベートします。
- メンブレンを洗浄バッファー(PBS中の1% Tween20)で3回洗浄し、抗マウス二次抗体を用いて染色します。その後、洗浄バッファー(PBS中の1% Tween20)で3回洗浄します。
- ドロットをイメージングする前に、原稿の上記の手順に従ってください。
- 西洋わさびペルオキシダーゼ(HRP)基質を使用した画像。
5. ナノ粒子トラッキング解析(NTA)による細胞外微小小胞の確認
- NTAを実行して、サンプル内のすべての粒子の濃度とサイズを分析します。これを行うには、各サンプルをPBSで1:1000の希釈係数で希釈します。
- サンプルをNTA装置に注入し、550nmの波長でサンプルを読み取ります。この段階では、MISEVガイドラインで推奨されているように、粒子量を使用して、粒子あたりのタンパク質の量(通常はフェムトグラムで表されます)を測定します。
- 次に、蛍光NTAの場合、PBS中のセルマスクオレンジ(CMO)(サンプル中のすべての生体粒子を染色)を1:1000の希釈係数で希釈します。これから、sEVサンプルを使用してCMO色素を1:10の希釈係数で希釈します - この希釈ステップを暗所で4°Cで30分間インキュベートします。
- PBSを使用して2回目のCMO希釈を1:1000の希釈係数で希釈します。
注:CMO色素の最終希釈率は1:10 000 000でなければなりません。 - NTA装置を使用して、波長550nmで各sEVサンプルのCMOを読み取ります。
- テトラスパニン蛍光抗体( 材料表を参照)については、まず、PBS中の各抗体を1:10の希釈係数で希釈します。これから、sEVサンプルを使用して各色素を1:10の希釈係数で希釈します - 希釈ステップを暗所で4°Cで2時間インキュベートします。
- PBSを使用して2回目の抗体希釈を1:1000の希釈係数で希釈します。
注:各テトラスパニン抗体の最終希釈率は1:100 000でなければなりません。 - NTA装置を使用して、波長550 nmのsEVサンプルの蛍光抗体測定値を読み取ります。
6. 透過型電子顕微鏡(TEM)による細胞外微小小胞の確認
注:このプロトコルは、リバプール大学の生物医学顕微鏡施設によって実施されました。
- まず、グルタルアルデヒドを用いてsEV試料を固定し、酢酸ウラニルを用いて染色します。
- 等級付けされた一連のアルコールを通じて、TEMの準備が整ったサンプルを脱水します。
- 適切な透過型電子顕微鏡を使用した画像サンプル。
7. プロテイナーゼKおよびRNase A治療
- 単離された脳由来のEV50 μLに、20 μg/μLのプロテイナーゼKを1 μL加え、37°Cで30分間インキュベートします。
- 1x プロテイナーゼ阻害剤カクテルを添加して各反応を停止し、氷上で10分間インキュベートします。
- インキュベーション後、10 μg/μL RNase Aを1 μLずつ各サンプルに加え、さらに37°Cで30分間インキュベートします。
注:すぐにセクション8に進んでください。
8. 細胞外小胞からのトータルRNAの単離
- トータルRNAを単離するには、700 μLの高品質RNA回収溶解試薬を50 μLの脳由来EV(BDsEV)サンプルに加えます。各サンプルを1時間撹拌します。
- 140 μLのクロロホルムを加え、各サンプルを20秒間激しく振とうし、室温で3分間インキュベートします。
- サンプルを12,000 x g で4°Cで15分間遠心分離し、サンプルから間相を収集します。100%エタノールの1.5倍容量を追加します。
- 700 μLの相間/エタノール混合物RNA単離カラムを添加し、≥8000 x g でRTで15秒間遠心分離します。
注:すべての相間/エタノールサンプルを使用してこの手順を繰り返します。 - カラムに700 μLの洗浄バッファーを加え、≥8000 x g で15秒間遠心分離します。フロースルーを破棄します。
- 500 μL のバッファー RPE を添加し、再度 ≥8000 x g で 15 秒間遠心分離します。フロースルーを破棄します。
- 80%エタノール500μLを加え、≥8000 x g で2分間遠心分離します。フロースルーを破棄します。
- この時点で、蓋を開けた状態でカラムを全速力(>8000 x g)で5分間遠心分離し、カラムメンブレンを乾燥させます。
- カラムを新しいコレクションチューブに移し、14 μL の RNase フリー水を直接カラムメンブレンに加え、≥8000 x g で 1 分間遠心分離して、BDsEV からトータル RNA を溶出します。
- miRNA 定量アッセイキットを使用して、サンプルを含む全 microRNA を定量し、サンプルを定量蛍光光度計で測定し、miRNA アッセイタイプを選択します。
9. small RNAシーケンシング
- サンプル中のmiRNAを定量した後、Small RNA-Seq Library Prep Kitを使用してcDNAライブラリーを合成します。
注:このプロトコルを使用して、ライブラリ生成には、3'アダプターライゲーション、精製、5'アダプターライゲーション、および逆転写(最終的にRNA/cDNAライブラリが形成される)の4つのステップが含まれていました。ライブラリ生成後、インデックスプライマーを添加してエンドポイントPCR増幅を行い(マルチプレックス化に使用)、その後、サンプルを精製します。 - RNAの品質をテストするには、各調製物のサイズとピーク強度を詳述した品質管理アプリケーションアッセイを使用します。
- DNA濃度を試験するには、定量蛍光光度計でDNA定量を測定し、dsDNAアッセイタイプを選択します。
- 試薬キットを使用してSmall RNA Seq用のサンプルを調製し、その後、サンプルをフローセルにロードします。
結果
BDsEVの存在を確認するために、ウェスタンブロッティング、NTA、TEMの3つの手法を利用しました(図3)。ウェスタンブロットの結果(図3A および 補足ファイル1)は、5つの陽性マーカー(CD9、CD63、CD81、Flot-1、およびTSG101)すべての存在と、sEVにおけるカルネキシンの不在(ネガティブコントロールとして使用)を示しており、細胞内容物による汚染がないことを確認しています。予想通り、脳のホモジネート(BH)は、試験したマーカーのsEVで観察されたよりも多くのタンパク質を示しています。TEM画像は、BDsEVの形態とサンプル内のそれらの相対的なサイズを確認し(図3B)、これはナノ粒子追跡分析によってさらに確認されました(図3C)。
図3C (上パネル)は、50〜200nmの単離粒子サイズを示しています。国税庁のデータから、散乱結果を表された粒子の100%とすると、CMOは脂質二重膜を持つ粒子の約52.35%を表しています(図3C、下パネル)。これらのCMO染色粒子のうち、34.66%がCD9を含有し、15.49%がCD63を含有し、12.01%がCD81を含有していました。NTA制御データについては、 補足ファイル2 を参照してください。
単離されたRNAの定量データ(表2)は、3.24〜8.76(ng/μL)の範囲のレベルを示しており、これはcDNAライブラリの生成時に正規化された値です。TapeStationアッセイの結果(図4)は、約120〜160 bpの主要なピークを示し、これより小さいピークは約50 bp、その他の小さなピークは約484 bpです。
次世代シーケンシングデータの品質チェックでは、アダプタートリミング後に非常に高品質な読み取りが示されています(図5A)。すべての配列位置は>30のPhredスコアを示しており、エラー率が1000ヌクレオチドに1未満であることを示しています。 図5B は、最も多くの配列が約21-22 bpであり、マイクロRNAの予想されるサイズ範囲と一致することを示しています。さらにダウンストリームマッピング(BowTie2を使用)により、Samtoolsのflagstat解析バイオツールを使用し、1,304,100の整列配列のうち、1,116,264(85%)がヒトゲノムのマイクロRNA領域にマッピングされました(build hg38; 表3)。
全 miRNA のうち、808 個の miRNA が 3 つのサンプルすべてで発現し、3 つのサンプルすべてで 344 個の miRNA が共有され(~43%)、5 個がコントロール 1 とコントロール 2 で共有され、183 個がコントロール 1 とコントロール 3 で共有され、16 個がコントロール 2 とコントロール 3 で共有されました(図 6)。このデータから、3つのBDsEVすべてで最も高い発現miRNAは、has-let-7b-5p、has-miR-143-3p、has-miR-30a-5p、has-miR-221-3p、has-let7i-5pです。同様に、BDsEVsのサンプル(リード>10)で最も発現差が少ないmiRNAの上位5つは、has-miR-128-2-5p、has-miR-182-5p、has-miR-193b-5p、has-miR-448、has-miR-505-3pです。すべての未処理の読み取りカウントと正規化された読み取りカウントは、 補足ファイル 3 に記載されています。
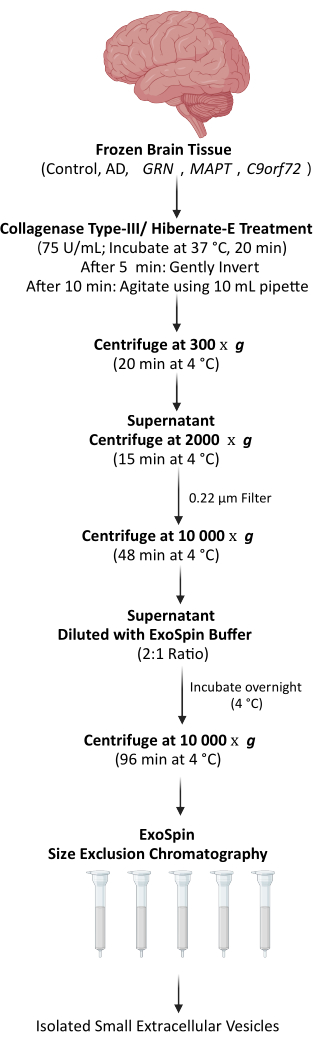
図1:組織処理ワークフロー。 この図は、サイズ排除クロマトグラフィーを使用して、新鮮凍結脳切片から脳由来sEV(BDsEV)を単離するための段階的なプロセスを示しています。 この図の拡大版を表示するには、ここをクリックしてください。
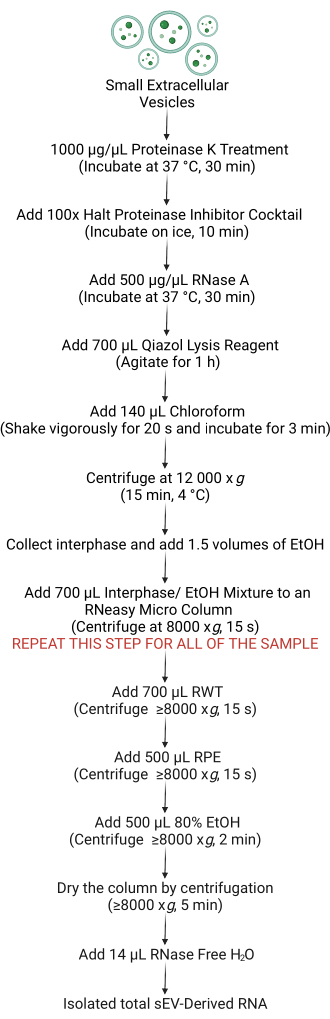
図2:BDsEVからのRNA単離ワークフロー。 この図は、プロテイナーゼKおよびRNアーゼAを使用して任意の細胞外RNAを除去する前処理ステップを含む、BDsEVから全RNAを単離する段階的なプロセスを示しています 。
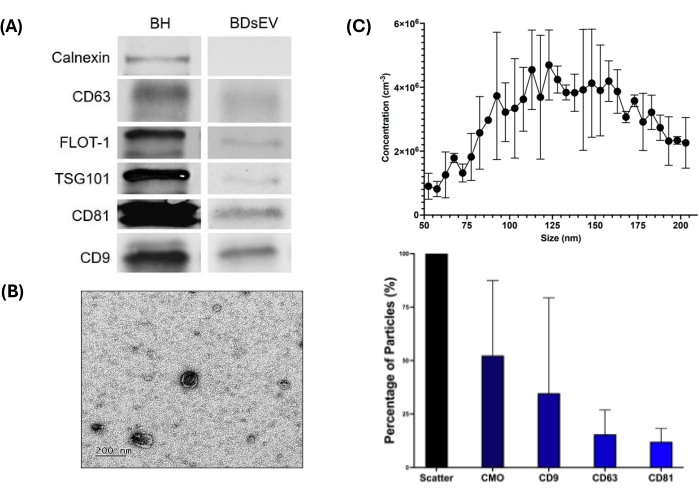
図3:BDsEVの特性評価ワークフロー。 この図は、BDsEVを特徴付けるさまざまな方法を示しています。(A)sEV特異的タンパク質マーカーを検出するためのウェスタンブロット。BHブレインホモジネート。カルネキシンはsEVのネガティブコントロールであり、sEVに存在しないこととBHに存在することで、sEVサンプルの純度が確認されます。他のマーカーについては、予想通り、タンパク質量は sEV サンプルよりも BH で多くなっています (ウェルあたり 20 μg のタンパク質をロード)。(B)脂質二重膜膜によるBDsEVの代表的な透過型電子顕微鏡(TEM)像(200μMスケール)。(C)すべての粒子のナノ粒子追跡分析(NTA)のサイズ分布プロット(上パネル)。各データポイントは、3回の反復間の変動を表します。生体粒子(sEV)の正規化された比率と特定の表面マーカーの相対比率(下パネル)(データはトリプリケートウェルの平均±SEM(n = 3)として示されています)。 この図の拡大版を表示するには、ここをクリックしてください。
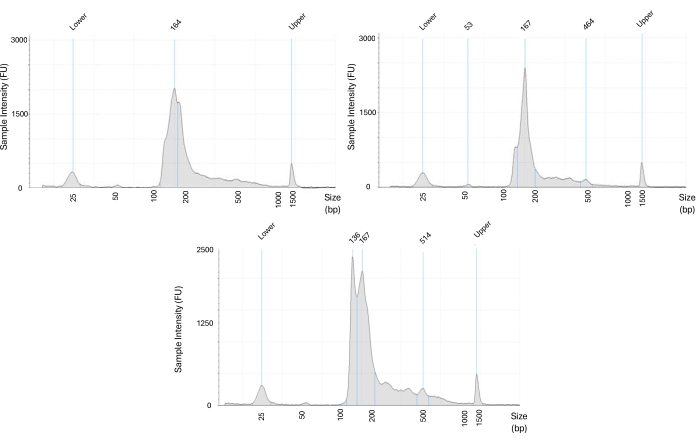
図4:cDNAライブラリー調製の品質チェック。 cDNAライブラリ調製後の個々のサンプルのテーピング解析。各グラフに表示されるピークは、各調製物のサイズ(横軸、bp単位)と各ピークのそれぞれの強度(縦軸、FU)を示しています。図に示すように、予想されるsmall RNAライブラリーのピークは約120-160 bpです。 この図の拡大版を表示するには、ここをクリックしてください。
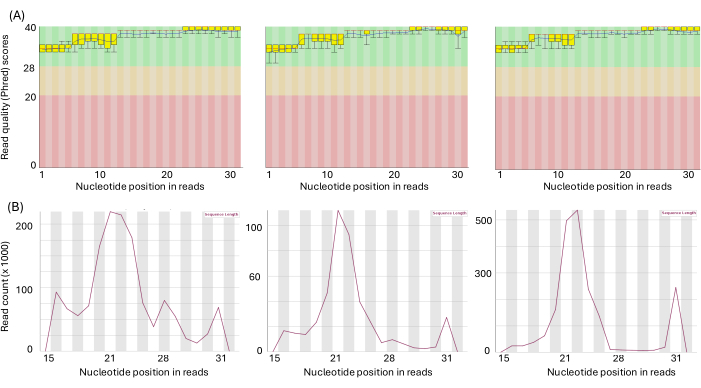
図5:miRnomeシーケンシングの品質チェック。 (A)アダプタートリミング後の個々のサンプルの読み取り品質に関するFASTQCプロット。横軸はヌクレオチド位置、縦軸はPhredスコアです。各位置の箱ひげ図は、各位置のすべての読み取りにわたる Phred スコアの分布を示しています。グリーンゾーン内のすべての分布は、高品質のサンプル調製に関連する非常に高品質のデータ(>Q30)を確認しています。(B)各サンプルの配列長分布は、3つのサンプルすべてについて、リードの大部分が約21-22ヌクレオチド(microRNAの予想されるサイズ範囲)であったことを示しています。 この図の拡大版を表示するには、ここをクリックしてください。
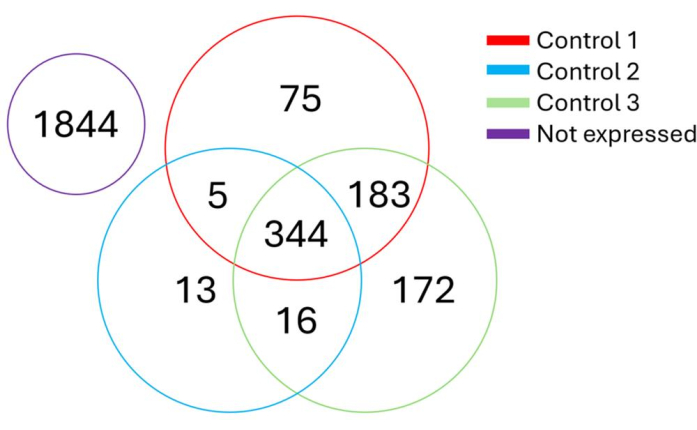
図6:すべてのサンプルにおけるMicroRNA発現のオーバーラップ。 各サンプルから検出されたmiRNAの数(リード数≥10)と、複数のサンプルで共有されている特定のmicroRNAがベン図に示されています。すべての生の読み取りと正規化された読み取りは、 補足ファイル 3 に表示されます。 この図の拡大版を表示するには、ここをクリックしてください。
| 抗体エピトープ | 抗体の希釈係数 |
| マウスアンチCD9 | 1:2000 |
| マウスアンチCD63 | 1:2000 |
| マウスアンチCD81 | 1:2000 |
| マウス抗フロチリン1 | 1:2000 |
| マウスアンチTSG101 | 1:1000 |
| マウス抗カルネキシン | 1:10 000 |
| 抗マウス二次抗体 | 1:3000 |
表1:BDsEVの特性評価に用いた抗体エピトープと、それぞれの希釈係数。
| 見本 | miRNA濃度(ng/μL) |
| 1 | 8.76 |
| 2 | 3.24 |
| 3 | 5.33 |
表2:単離されたRNAの定量データ。
| 見本 | アラインメントされたシーケンス | マッピングされた miRNA | パーセンテージ (%) |
| コントロールサンプル1 | 1 444 665 | 1 133 437 | 78.46 |
| コントロールサンプル 2 | 442 808 | 381 631 | 86.18 |
| コントロールサンプル3 | 2 024 828 | 1 983 726 | 97.97 |
| 平均 | 1 304 100.33 | 1 166 264.67 | 89.43 |
表 3:アラインメントされ、正常にマッピングされた miRNA 配列の量。
補足ファイル1:ウェスタンブロット解析の補足データ。このファイルをダウンロードするには、ここをクリックしてください。
補足ファイル2:補足NTA制御データ。このファイルをダウンロードするには、ここをクリックしてください。
補足ファイル3:miRNA発現解析の生および正規化されたリードカウント。このファイルをダウンロードするには、ここをクリックしてください。
補足ファイル4:補足タンパク質濃度データ。このファイルをダウンロードするには、ここをクリックしてください。
ディスカッション
脳由来の小さな細胞外小胞とそのマイクロRNAカーゴを単離するためのこの改良および改良されたプロトコルは、下流の製品の品質と量を損なうことなく、最小限の組織を使用することの実現可能性を示しています。バイオマーカー探索の分野では、細胞や組織の種類に特異的な分子識別子を同定することで、体液を用いた非侵襲的な診断検査をより身近な手段にすることができます。さらに、ここで説明するアプローチは、さまざまな細胞タイプ(ニューロンとグリア)、組織タイプ(海馬組織と前頭前野組織)、および生体液内の特定のsEV亜集団を同定するためのフレームワークを提供し、貨物積載の特徴、病態生理学、および疾患の程度についてより深い理解を提供します。以前にVella et al.で概説したように、BDsEVの単離には450 mgから1 gを使用し、密度勾配超遠心分離(最大180,000 x gの速度を使用)を組み合わせるべきであることが提案されました8。この方法論では、新鮮凍結脳組織サンプル(250〜450 mg)の少量(>50%削減)を使用して、sEVの分離に成功しました。sEVの分離に使用される脳組織の量が減少することは、コストと消耗品の削減につながります。同様に、このプロトコルは、超遠心分離(180,000 x g)の代わりに高速遠心分離(10,000 x g)と組み合わせたSECの適用により、よりアクセスしやすくなりました。
fNTAとTEMを使用して、sEVのサイズ範囲プロファイルがMISEVガイドライン13,14で推奨されている特性30-200nmのサイズ範囲内に収まることを確立し、TEMは得られたsEVの形態学的確認を提供します。図3Cおよび補足ファイル4に示すように、粒子の>87%が<250 nmのサイズ範囲であり、サンプルは平均して10.56 fgタンパク質/BDsEVを示しています。小さな細胞外小胞の特定の種は、サイズと形状が異なり、エクソソームなどの特徴的に小さな亜集団は、生合成の性質のために不規則な構造を持つと言われる微小胞と比較して、均一な形態を持つことが観察されます15。fNTAでは、散乱測定値(520 nm)を作成してサンプル中の全粒子を分析し、サイズプロファイルと濃度の詳細を提供しました。測定値は、粒子の50%以上が生物学的(CMOの染色による)であり、sEVのサイズ範囲内にある生物学的粒子の集団はテトラスパニンマーカーを示し、CD9は対照サンプルで最も優勢であることを示しています(34.66%)。一方、ウェスタンブロッティングでは、特徴的な膜と細胞質タンパク質のカーゴの存在がsEVの存在の証拠となり、カルネキシンが存在しないことでBDsEVが細胞汚染を受けていないことが確認されました。ダウンストリームプロセシングに利用可能なmiRNAがsEVカーゴの一部であり、他の細胞外RNAではないことをさらに確認するために、sEVをプロテイナーゼKおよびRNase A酵素で処理してから、sEV膜を破壊してBDsEVの外側の細胞外空間に外部に存在するタンパク質およびRNAを分解しました16。
全RNAをsEVから抽出し、qRT-PCRや次世代シーケンシング(small RNA用)などのダウンストリームアプリケーション用に調製しました。品質管理アッセイを用いた標準的なチェックでは、シーケンシングの準備ができている高品質のサンプルとcDNAライブラリが示されました。cDNAライブラリーのピークは約120-160 bpで、これはmiRNA由来のcDNAピークに起因し、さまざまな長さのアダプター配列があり、これより小さいピークはアダプター二量体を表している可能性があります。
FASTQCとCutAdaptを用いた次世代シーケンシングデータの解析では、BDsEVのmiRNAから高品質な結果が得られました。 図5に示すように、読み取られた各ポジションのQスコアは30(Q30)を超えており、エラー確率は0.001〜0.0001(1000〜10,000に1)を示しています。さらに、配列長分布解析(図 6)では、miRNA の特性範囲(19-25 bp)に主要なピークが収まっていることが示されており、得られたデータの質と特異性が高いことが示唆されています。
この方法は、組織サンプルの量を減らすだけでなく、試薬のコストも節約することでコストとリソースを節約するとともに、アクセシビリティの向上により、今後の多くの研究で恩恵を受けるでしょう。必要な組織量の減少(>50%)により、この方法はより倫理的になります。プレシジョンヘルスにおける世界的な取り組みと歩調を合わせ、ここで詳述する改善されたワークフローは、BDsEVとその貨物を使用した非侵襲的(または低侵襲的)ルートを介して正確な細胞型特異的バイオマーカーに着手するための比較的手頃な価格のツールを提供します。これは、幅広い神経疾患に使用できます。この方法の考えられる制限は、研究者がsEV分離のために人間の脳以外の組織を使用したい場合、プロトコルを調整する必要があることです。長期的には、この改良された方法により、非侵襲的な組織特異的バイオマーカーの発見と検証が世界中でより公平でアクセス可能になります。
開示事項
著者のいずれにも利益相反はありません。
謝辞
この研究は、英国アルツハイマー病協会のジョセフ・モーガン博士課程(助成金番号549/SERA-52)とサルフォード大学のイノベーション戦略基金(助成金SEFA-39)によって資金提供されました。脳組織は、Brains for Dementia NetworkのManchester Brain bank(REC Reference 09/H0906/52)から入手しました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| ウシ血清アルブミン | メルク | A9418-100G | |
| セルマスク オレンジ 原形質膜染色 | サーモフィッシャーサイエンティフィック | C10045 | |
| コラゲナーゼIII型 | StemCell Technologies | 07422 | |
| ExoSpin Columns and Buffer | Cell Guidance Systems Ltd. | EX01-50 | このキットには、この実験で使用したSECカラム、沈殿バッファ、EVフリーPBSが含まれています。 |
| Halt Protease Inhibitor Cocktail (100x) | ThermoFisher Scientific | 78429 | |
| Hibernate-E Medium | ThermoFisher Scientific | A1247601 | |
| Laemmli Sample Buffer (4x) | BioRad | 1610747 | |
| Lexogen Small RNA-Seq Library Prep Kit | Lexogen | 052.24 | このキットには、i7 Index プライマープレート付きの Small RNA 調製試薬ボックスが含まれています。 |
| miRNeasy Micro Kit (50) | Qiagen | 217084 | このキットには、高品質のRNA回収溶解試薬(Qiazol)、RNA分離カラム、分離バッファー(RWT、RPE)、RNaseフリーウォーターが含まれています。 |
| MiSeq 試薬キット v3 | Illumina | MS-102-3001 | これは Illumina 調製キット |
| ニトロセルロース メンブレン、0.45 μm | サーモフィッシャーサイエンティフィック | 88018 | |
| PE/Dazzle 594 抗ヒト CD63 抗体 | BioLegend | 143914 | fNTA分析に使用 |
| PE/Dazzle 594 抗ヒト CD81 抗体 | BioLegend | 349520 | fNTA分析に使用 |
| PE/Dazzle 594 抗ヒト CD9 抗体 | BioLegend | 312118 | fNTA分析に使用 |
| PhosSTOP | メルク | ||
| Pierce BCA Protein Assay Kit | ThermoFisher Scientific | 23225 | |
| Proteinase K | ThermoFisher Scientific | 25530049 | |
| Qubit microRNA Assay Kit | ThermoFisher Scientific | Q32880 | |
| Qubit 1X dsDNA HS assay kit | ThermoFisher Scientific | Q33230 | |
| Qubit 3.0 Fluorometer | ThermoFisherScientific | Q33216 | |
| RIPA Lysis and Extraction Buffer | ThermoFisher Scientific | 89901 | |
| RNase A | ThermoFisher Scientific | EN0531 | |
| SuperSignal West Femto Maximum Sensitivity Substrate | ThermoFisher Scientific | 34094 |
参考文献
- Jia, Y., et al. Small extracellular vesicles isolation and separation: Current techniques, pending questions and clinical applications. Theranostics. 12 (15), 6548-6575 (2022).
- Fornari, S., Schäfer, A., Jucker, M., Goriely, A., Kuhl, E. Prion-like spreading of Alzheimer's disease within the brain's connectome. J R Soc Interface. 16 (159), 20190356(2019).
- Zhang, P., et al. Tumor-derived small extracellular vesicles in cancer invasion and metastasis: molecular mechanisms, and clinical significance. Mol Cancer. 23 (1), 18(2024).
- Constantinides, V., et al. CSF Aβ42 and Aβ42/ Aβ40 ratio in Alzheimer's disease and frontotemporal dementia. Diagnostics. 13 (4), 783(2023).
- Cheng, L., et al. Prognostic serum miRNA biomarkers associated with Alzheimer's disease shows concordance with neuropsychological and neuroimaging assessment. Mol Psychiatry. 20 (10), 1188-1196 (2015).
- Roser, A. E., Caldi Gomes, L., Schünemann, J., Maass, F., Lingor, P. Circulating miRNAs as diagnostic biomarkers for Parkinson's disease. Front Neurosci. 12, 625(2018).
- Jackson, N., Guerrero-Muñoz, M. J., Castillo-Carranza, D. L. The prion-like transmission of tau oligomers via exosomes. Front Aging Neurosci. 14, 974414(2022).
- Vella, L., et al. A rigorous method to enrich for exosomes from brain tissue. J Extracell Vesicles. 6 (1), 1348885(2017).
- Yousif, G., Qadri, S., Parray, A., Akhthar, N., Shuaib, A., Haik, Y. Exosomes derived neuronal markers: Immunoaffinity isolation and characterization. Neuromolecular Med. 24 (3), 339-351 (2022).
- Kumar, K., et al. Recent advances in microfluidic approaches for the isolation and detection of exosomes. TRAC-Trend Anal Chem. 159, 116912(2023).
- Ransom, L., et al. Human brain small extracellular vesicles contain selectively packaged, full-length mRNA. Cell Rep. 43 (4), 114061(2024).
- Gomes, P., et al. A novel isolation method for spontaneously released extracellular vesicles from brain tissue and its implication for stress-driven brain pathology. Cell Commun Signal. 21 (1), 35(2023).
- Welsh, J., et al. Minimal information for studies of extracellular vesicles (MISEV 2023): From basic to advanced approaches. J Extracell Vesicles. 13 (2), e12404(2023).
- Théry, C., et al. Minimal information for studies of extracellular vesicles 2018 (MISEV2018): a position statement of the International Society for Extracellular Vesicles and update of the MISEV2014 guidelines. J Extracell Vesicles. 7 (1), 1535750(2018).
- Pirisinu, M. The long journey of extracellular vesicles towards global scientific acclamation. Adv Pharm Bull. 13 (3), 489-501 (2023).
- Bender, A., Sullivan, B. P., Lillis, L., Posner, J. D. Enzymatic and chemical-based methods to inactivate endogenous blood ribonucleases for nucleic acid diagnostics. J Mol Diagn. 22 (8), 1030-1040 (2020).
再版と許可
