この記事では、マウスとラットの身体拘束ストレスを使用してストレス応答を誘発する手順について説明します。げっ歯類モデルで拘束応力を選択して使用する際に注意すべき追加の考慮事項について説明します。
この記事について
サマリー
要約
すべての動物種において、ストレスの多い状況にさらされると、ストレス反応が誘発されます。げっ歯類モデルを使用して応力の影響を研究する方法の 1 つは、拘束応力手順です。拘束ストレスは、生理学、遺伝学、神経生物学、免疫学、およびストレスの影響を受けるその他のシステムの変化を調査するために何十年にもわたって使用されてきました。手順の実行の容易さ、低コスト、およびストレス曝露の強度と期間のスケールに対する多数の変更により、膨大な研究文献がマウスとラットの拘束ストレスを使用しています。一例として、この研究では、トランスジェニックマウスの拘束ストレスが血漿コルチコステロンレベルと光遺伝学的に誘導されたノルエピネフリン放出に与える影響を示す以前に発表されたデータを示しています。急性拘束ストレスは血漿コルチコステロンレベルを増加させましたが、この効果は、拘束ストレスを繰り返すマウスでは鈍化しました。.しかし、終末線条の床核におけるノルエピネフリン放出の刺激は、反復拘束ストレス群でのみ増加した。これらのデータは、従属的な測定に対する拘束パラメータの重要な考慮事項を強調しています。比較のために、ラットの拘束ストレスに関する追加の説明も含まれています。最後に、拘束のパラメータ(例えば、急性と慢性)および動物被験者の特性(系統、性別、年齢)の影響について議論する。
概要
ストレスの普遍的な経験のために、ストレス曝露後の反応の変化のメカニズムの調査は、数十年にわたって一貫した研究分野でした1。これらの調査は、多くの場合、反復的および/または予測不可能なストレッサーへの長期の曝露に起因する、生理学的および行動的機能の不適応な変化を誘発するストレス経験から、急性ストレッサーへの適応性と応答性を高めるのに有益である可能性のあるストレスの側面を解析し始めています。ストレッサーに対するこれらの反応の多くは、脳機能、視床下部-下垂体-副腎(HPA)軸、自律神経系の交感神経および副交感神経枝、および免疫系に影響を与えます。ストレッサーへの曝露は、副腎皮質刺激ホルモン(ACTH)および霊長類や他の多くの哺乳類のコルチゾール、げっ歯類のコルチコステロンなどの副腎皮質刺激ホルモン(ACTH)およびグルココルチコイドホルモンを増加させるためのコルチコトロピン放出因子(CRF)の放出の増加を開始します2。さらに、エピネフリンとノルエピネフリンは、交感神経系の反応3の一部として、末梢と脳全体に放出されます。これらの化学シグナルは、免疫機能、代謝、生殖、神経反応性など、多くの生理学的システムと相互作用します4。
ストレスの多い経験は、不安やうつ病の増加、学習や記憶の変化、意思決定や実行機能の障害、物質使用障害への感受性など、無数の症状と関連しています。これらの影響はそれぞれ、ストレッサーのパラメータとストレスを経験している個人の特性の両方に依存します4。ストレッサーの性質は、急性または慢性、制御可能または予測不可能など、観察される結果を大幅に変化させます。ストレスのこれらの側面は、人間の経験と動物モデルの間で一貫しているように見えます。したがって、動物実験でストレスをモデル化するには、種、性別、および条件に適したストレス曝露のパラメーターを選択するために、慎重に検討する必要があります。
げっ歯類を用いた研究には、多くのストレッサーが利用可能ですが (社会的孤立ストレスや社会的敗北などの心理社会的ストレッサー、コルチゾールやヨヒンビン投与などの薬理学的ストレッサー、フットショックや拘束などの身体的ストレッサー、条件を組み合わせるか、条件を交互に組み合わせるマルチモーダル ストレッサーを含む)、この原稿の焦点は、マウスとラットの拘束ストレスの使用にあります。拘束ストレスは、実行が容易で、安価で、さまざまなサイズのげっ歯類に合わせて調整でき、急性期と長期期の両方に拡張可能であり、被験者に害を及ぼすことはめったにないため、他のストレッサーよりも選択される可能性があります5。この原稿は、拘束ストレス曝露によって引き起こされる持続的な変化に焦点を当てていますが、一部の研究では、ネズミの拘束を使用して、ストレッサー6,7,8,9の回避に関与する積極的な対処行動を含む、拘束中に発生するメカニズムと行動を調べています。この原稿の目的は、マウスまたはラットの被験者に対する拘束ストレスの影響を評価するための方法論的考察を提供することです。
プロトコル
実験とプロトコルは、ノースカロライナ大学チャペルヒル校(マウス)とフェアフィールド大学(ラット)の動物管理・使用委員会(IACUC)によって承認されており、NIH10のガイドラインに従っています。
1. マウスの拘束ストレス
注:マウスは、ストレスが生理学や神経系に及ぼす影響を研究する際に多くの利点を提供します。トランスジェニックマウス系統の普及により、遺伝子とストレス曝露との間の相互作用の機構的研究は容易に実現可能です。トランスジェニックマウスと野生型マウスのいずれを使用する場合でも、バックグラウンド株を考慮することをお勧めします。さらに、そのサイズと公営住宅により、マウスは他の種よりもスペース利用に利点があります。
- 拘束応力曝露
- マウスをホームケージ制御、急性拘束ストレス、または慢性拘束ストレスグループにランダムに割り当てます。
- ストレスにさらされる長さを決定します。急性ストレッサーの場合は、拘束装置に閉じ込められた状態で5分間から12時間続く単一のセッションを使用します。慢性的なストレッサーの場合は、セッションが急性ストレッサーの長さと一致するようにしてください。ただし、最短で3日間、最長で21日間、毎日繰り返されます。
注:拘束状態ではマウスは餌や水にアクセスできないため、ホームケージ制御動物も餌や水にアクセスできないようにすべきかどうかを検討してください。 - 50 mLのコニカルチューブを変更して、通気孔を追加します。
- 1/8インチビット付きの電動ドリルを使用して、各円錐形チューブの周囲に穴を均等に空け、チューブのすべての領域に空気の流れを確保します。
- これらの穴を配置して、マウスがチューブ内でどの方向を向いているかに関係なく、マウスが空気にアクセスできるようにします。変更後に鋭いエッジが残っていないことを確認してください。
注:これらの修飾コニカルチューブは、ほとんどの成体マウス(~20-40 g)に効果的であるはずですが、小型/若いマウスや大型のマウスを拘束することはできません。
- 動物の飼育や行動試験とは別の試験室で、拘束された動物を改造された円錐形のチューブに入れ、キャップを取り付けてマウスを指定された拘束時間チューブ内に閉じ込めます。
注:試験室の設計の詳細は、施設で利用可能なスペースによって異なる場合があります。部屋には、ヒュームフードやその他の実験装置、および/または実験台/ベンチが含まれる場合もあれば、空の処置室である場合もあります。ただし、部屋の設定に関係なく、拘束室の環境は、ストレス応答11の状況に起因する変化を避けるために、繰り返しの拘束曝露にわたって一貫している必要があります。 - 拘束チューブを平らな面に水平に置きます。必要に応じて、チューブを実験用テープまたはピペット洗面器/試薬リザーバーで固定し、マウスが入ったまま転がらないようにします。
注:ストレス条件下では、マウスは超音波発声を発します。研究デザインが他の拘束された被験者からの音の遮断を必要とするかどうかを検討します12。コルチコステロンやその他のストレス反応のマーカーは、概日リズムに従います。そのため、ストレッサーの照明条件と時間に関する考慮事項を考慮する必要があります。ストレスグループ全体で、拘束は一貫した時間帯、できれば光サイクル13,14,15の早い段階で行われるべきです。ここで紹介する研究では、マウスをライト点灯後約3時間拘束しました。 - 拘束ストレスの間、少なくとも20分ごとに各動物を監視します。動物が異常な反応(遅い呼吸、動きの欠如)を示しているかどうかを視覚的に判断します。観察された場合は、マウスを拘束チューブから取り外し、獣医師に連絡し、マウスを研究から除外します。
- マウスをホームケージに戻し、餌と水へのアクセスを提供します。
2. ラットの拘束ストレス
注:より大きなげっ歯類として、ラットはストレスの影響を調査する際に考慮すべき利点があります。マウスと同様に、ラットはストレス曝露に対する反応が異なるさまざまな系統を持っています16,17。さらに、ラットのサイズが大きくなると、ラットは特定の行動手段、例えば、薬物自己投与で使いやすくなります。
- 拘束応力曝露
- ラットをホームケージ制御、急性拘束ストレス、または慢性拘束ストレスグループにランダムに割り当てます。
- ストレスにさらされる長さを決定します。急性ストレッサーの場合は、拘束装置に閉じ込められた状態で5分間から12時間続く単一のセッションを使用します。慢性的なストレッサーの場合は、セッションが急性ストレッサーの長さと一致するようにしてください。ただし、最短で3日間、最長で21日間、毎日繰り返されます。
注:ネズミは拘束状態にある間、餌と水にアクセスできないため、ホームケージ制御動物も餌と水にアクセスできないようにすべきかどうかを検討してください。 - 市販の拘束チューブの場合は、以下に説明する手順に従ってください。
注:ラット用の市販の拘束チューブが利用可能です。これらのデバイスには、金属線、容器、丸みを帯びた平底のオプションを備えたプラスチック/プレキシガラス管など、さまざまな設計があります。各オプションは簡単に使用できます。- ネズミをデバイスに挿入し、被験者のサイズに合わせて調整されたプラグを追加して、所定の位置にロックします。拘束チューブに入れるときは、ラットがぴったりと閉じ込められて、頭から尾への回転を防ぎ、呼吸が楽であることを確認してください。
注:これらのデバイスはラットを拘束するために設計されており、呼吸のために変更する必要はありません。この研究では、デバイスを固定するためのチューブの下のプラットフォームに吸盤を含むテールベイナー拘束具 (Table of Materials) を使用します。この装置のさらなる利点は、尾部が装置の外側からアクセス可能であり、挿入中の被験者の制御およびチューブからの除去または拘束中の尾静脈採血中であることである。
- ネズミをデバイスに挿入し、被験者のサイズに合わせて調整されたプラグを追加して、所定の位置にロックします。拘束チューブに入れるときは、ラットがぴったりと閉じ込められて、頭から尾への回転を防ぎ、呼吸が楽であることを確認してください。
- 動物の飼育や行動試験とは別の試験室で、拘束されたアニマを指定された拘束時間だけ拘束チューブに入れます。拘束チューブを平らな面に水平に置きます。
注:ストレス条件下では、ラットは超音波発声も生成します。研究デザインが他の拘束された被験者からの遮音を必要とするかどうかを検討します。 - 拘束ストレスの間、少なくとも20分ごとに各動物を監視します。動物が異常な反応(遅い呼吸、動きの欠如)を示しているかどうかを視覚的に判断します。観察された場合は、ラットを拘束チューブから取り外し、獣医師に連絡し、ラットを研究から除外します。.
- ラットを家のケージに戻し、餌と水へのアクセスを提供します。
3. ストレスの評価
- HPA活性化の測定
- 適切であれば、拘束ストレスへの曝露またはホームケージからの移動後、被験者を迅速に首を切って体幹の血液をヘパリンチューブに採取します。
- 遠心分離により血漿を単離し、血漿サンプルを-80°Cで保存します。 酵素結合免疫吸着アッセイ(ELISA)キットを使用して血中コルチコステロンを分析します。
注:コルチコステロンは、ストレス曝露、特に急性ストレスの重症度の読み取り値としてよく使用されますが、コルチコステロンレベルは必ずしもストレス誘発性行動の変化と相関するわけではありません6。さらに、コルチコステロン放出を調節するHPA軸応答は、同じストレッサー18への繰り返しの曝露で慣れます。あるいは、副腎皮質刺激ホルモン(ACTH)は、急性ストレッサーの強度のより信頼性の高い尺度である可能性があります4。ストレッサーへの曝露が停止してから約1時間は上昇したままですが、重度で長期(約>2時間)のストレスはその産生を疲労させる可能性があります。
- 行動への影響
- 必要に応じて、拘束ストレスへの曝露またはホームケージからの移動に続いて、適切な行動課題でげっ歯類の行動パフォーマンスを評価します。
注:さまざまな行動モデルに対する拘束の影響に関する詳細な情報は、ディスカッションセクションにあります。
- 必要に応じて、拘束ストレスへの曝露またはホームケージからの移動に続いて、適切な行動課題でげっ歯類の行動パフォーマンスを評価します。
- 神経 生物 学
- あるいは、または追加的に、拘束ストレスへの曝露または制御後の神経生物学的機能を評価します。幅広いアッセイにより、細胞、シナプス、および回路に対する拘束ストレスの影響を調査できます。アッセイに応じて、in vivo測定デバイスを埋め込むか、脳組織を採取して選択した分析を行います。
注:タンパク質合成およびエピジェネティックな修飾における細胞型特異的な変化に対するストレスの影響は、McEwenらによって徹底的にレビューされている1。これらの遺伝的およびタンパク質修飾は、シナプス結合および回路を変化させる可塑性を誘導します。これらの研究を行うためには、ストレス曝露後の脳組織を採取し、ゲノム解析、プロテオミクス解析、生体外生理学などの解析を行います。あるいは、マイクロダイアリシス、高速スキャンサイクリックボルタンメトリー(FSCV)、ファイバー測光などのin vivo測定を通じて神経生物学的変化を評価します。これらのアプローチは、拘束ストレス曝露後2,19と拘束中8,9,20の両方で、神経化学的放出とニューロンの活性化を記録します。拘束ストレスの影響の根底にある神経生物学的メカニズムを評価するためのツールボックスは急速に拡大しており、ストレスの複雑さに対する新たな洞察を可能にしています。
- あるいは、または追加的に、拘束ストレスへの曝露または制御後の神経生物学的機能を評価します。幅広いアッセイにより、細胞、シナプス、および回路に対する拘束ストレスの影響を調査できます。アッセイに応じて、in vivo測定デバイスを埋め込むか、脳組織を採取して選択した分析を行います。
結果
以前に発表された研究21 では、この原稿に記載されている拘束ストレス手順を使用して、コルチゾールとノルエピネフリンの調節に対する拘束ストレスの影響を評価し、プロトコル 3.3 で言及されたストレスによって誘発される神経生物学の変化の広範な可能性に該当します。本研究では、マウスの拘束について上記のプロトコルを利用しました。本稿の拘束焦点の範囲を超えているその他の詳細、例えば、脳領域、光遺伝学的刺激パラメータ、またはFSCVの理論的根拠は、参照された原稿で見つけることができる。
ノルアドレナリン作動性ニューロンでチャネルロドプシンを選択的に発現するトランスジェニックマウス(DBH:Cre+/-::Ai32+/-)を雄と雌のトランスジェニックマウス(DBH:Cre+/-::Ai32+/-)を使用し、ex vivo FSCV21を用いて末脈の床核におけるノルエピネフリン放出の刺激を測定した。マウスは、プロトコル1に記載されているように、急性(2時間)および慢性(2時間/日、5日間)または自宅ケージ制御で拘束されました。曝露後、プロトコル3.1に記載されているように、コルチコステロン分析のために一部の被験者から血液が採取されました。急性拘束ストレスの直後、マウスはコルチコステロンレベルの上昇を示しましたが、ストレスを繰り返すと反応は鈍くなりました(図1を参照)。追加のマウスを使用して、ノルエピネフリン放出に対する拘束ストレスの影響を評価しました。最終的なストレス曝露から24時間後、脳組織を急速に採取し、スライスしてBNSTでノルエピネフリン放出を記録しました。興味深いことに、急性拘束は刺激されたノルエピネフリン放出に影響を与えませんでしたが、繰り返しのストレス曝露により、刺激パラメーター全体で刺激されたノルエピネフリン放出が大幅に増加しました(図2を参照)。これらの結果は、プロトコル217,22に記載されているアプローチを使用して、ラットのノルエピネフリン放出に対する拘束ストレスの影響に関する以前の調査と収束します。

図1:ホームケージコントロール(ナイーブ)および急性(単一)および慢性(反復)拘束ストレス後の血漿中のコルチコステロン。急性拘束ストレスの 2 時間のセッションを 1 回行った後、血漿コルチコステロン レベルは、ナイーブ ストレス被験者と反復ストレス被験者の両方と比較して上昇しました。結果は平均 ±SEM として表されます。 N=5-6匹のマウス/群。**p < 0.05、***p < 0.005。この図は、Schmidt et al.21の許可を得て修正されています。 この図の拡大版を表示するには、ここをクリックしてください。
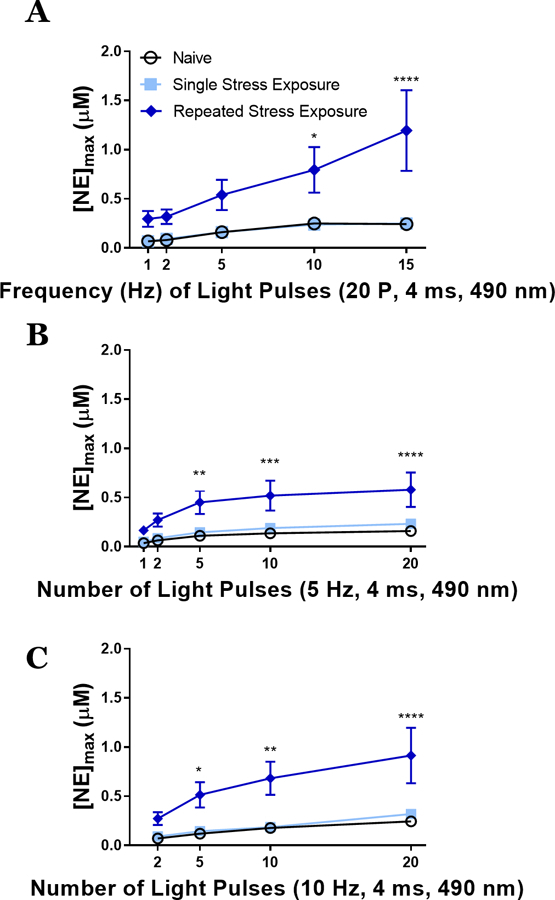
図2:光遺伝学的に刺激されたノルエピネフリン放出は、慢性的な(反復的な)拘束ストレスの後に増加します。 最終ストレス曝露の翌日、ex vivo高速スキャンサイクリックボルタンメトリーを実施して、マウスの末端線条の床核における光遺伝学的に刺激されたノルエピネフリン放出を測定しました。(A)20パルス(20P)刺激の周波数(Hz)の変動は、反復ストレス群でより多くのノルエピネフリンを放出した。(B、 C)5Hz(B)または10Hz(C)の刺激周波数でのパルス数(2-20)の変動は、反復ストレス群でより多くのノルエピネフリン放出を示した。SEM±平均。n = 5-6マウス/グループで7-8スライス/グループを提供します。*p < 0.05、**p < 0.05、***p < 0.005、および ****p < 0.0001。この図は、Schmidt et al.21の許可を得て修正されています。 この図の拡大版を表示するには、ここをクリックしてください。
ディスカッション
げっ歯類モデルの生理学的、神経生物学的、および行動機能に対するストレスの影響を調査するには、げっ歯類にストレスを生じさせる条件を使用する必要があります。これらの考慮事項の中には、被験者にストレス反応を引き起こす条件があります。拘束は、げっ歯類の生理学的および行動的反応を人間のストレス効果と一致するように生成するための検証済みの手順です。このプロトコルと同様の方法論を使用して、拘束は、不安、うつ病、痛み、および物質使用障害1,19を含む精神障害のモデルに関連する多くの分子、細胞、内分泌、および生理学的反応を評価するために使用されてきました。ここでは、ある発表された研究のデータをげっ歯類の拘束の例として提示していますが、拘束の影響は、この特定の例を超えて、従属的な測定の広大な範囲にまで及びます。拘束は、マウスやラットで簡単に実行でき、確立するのに安価で、使用するパラメーターに応じてさまざまなレベルのストレス反応を誘発する適応性があるため、ストレッサーとして使用するために選択される場合があります。
他のストレス誘発アプローチと比較すると、研究デザイン中に考慮すべき拘束にはいくつかの制限があります4,23。特に、拘束ストレスは、断続的なフットショック24のような他の身体的ストレッサーで観察される行動変化を常に引き起こすとは限らない。これらの不整合は、さまざまな環境で発生する可能性があるという拘束の利点の結果である可能性がありますが、フットショックはショックグリッドフロアを備えた試験チャンバーに限定されます。ストレスの状況は、結果として生じる影響に大きく影響します11。さらに、従来の拘束チューブまたは装置内に閉じ込めることは、拘束中の被験者へのアクセスを制限するため、不利です。この制限を克服し、拘束セッション8、9、20中の神経生物学的データ収集のためのテザリングを可能にするために、より新しい拘束装置、例えば「REcording Signal TRansients ACCessible IN a Tube (RESTRAINT)」が開発されている。この障害に対処するための別のアプローチは、拘束と同様の技術として固定化ストレスを使用します-多くの場合、固定化と拘束は同義語として使用されますが、重要な違いがあります25。固定ストレスには、動物の腕、脚、頭を表面に固定することが含まれますが、拘束には制限装置内に配置することが含まれます。このように、固定化ストレスは、血液、脳脊髄液、瞳孔反応、またはストレス研究に関心のある可能性のある他の生理学的影響を収集するための被験者へのアクセスを提供しながら、動きを制限します。げっ歯類にストレスを誘発するために使用されてきた追加のストレッサーには、環境寒冷ストレス、コルチコステロンやヨヒンビンなどの薬理学的薬剤の投与、社会的敗北や捕食者の臭いへの曝露の病理学的に関連する経験、および慢性予測不能ストレス(CUS)などのマルチモーダルストレスが含まれます。これらの代替応力モダリティは、応力の特定の側面をモデル化する利点があるため、使用するために選択されます。例えば、拘束がマウスおよびラットのCUSモデルの側面であるにもかかわらず26、CUSの効果は、慢性的な拘束ストレス27,28への同等の曝露によって生じるものとは異なることができる。反復拘束の予測可能性は、将来の拘束エピソードに対する反応を低下させ、ホモタイプ拘束ストレスの有効性を制限する。別の方法として、CUSおよびその他の異型ストレスモデルは、ストレッサーまたはコンテキストを回転させて、慣れを最小限に抑えます11,18。これらの予測不可能なストレスモデルは、人間の精神医学的状態の側面をより適切にモデル化して、制御と期待の喪失を完全にカプセル化する可能性があります。他のストレスモダリティが対処するのが優れている抑制の別の欠点は、ストレス感受性とストレス緩衝性への社会的貢献です29,30,31。げっ歯類と人間は、同種の関係と階層を持つ社会的な動物です。拘束ストレスは社会化を組み込んでいませんが、社会的敗北ストレスなどの心理社会的ストレッサーは、げっ歯類32,33,34に病理学的に関連するストレッサーを提供します。
拘束ストレスの使用内では、投与の強度と反復は操作できるパラメーターです5。より堅牢な拘束応力を作成するために、スタディデザインでは、拘束装置でより長い時間が必要になる場合があります。最短で 5 分、最長で 12 時間は、急性または長期の拘束セッションのいずれかに可能なパラメーターであり、それぞれ35,36 です。一旦、拘束曝露の長さが決定されると、ストレッサーの反復もまた、様々なレベルのストレス35,37を誘発する要因となり得る。なお、拘束ストレスを繰り返すことで、必ずしも観察される効果が増加するわけではない。多くの場合、繰り返される拘束ストレスは、ストレス反応を習慣化または減少させます18。ここで提示したデータでは、反復的な拘束ストレスに対するコルチコステロン反応の慣れを観察したが、同時に、反復ストレス曝露群でのみ、刺激されたノルエピネフリン放出の違いを測定した。したがって、慣れ効果35を決定する前に、反復的な拘束の影響を注意深く調査しなければならない。
さらに、拘束ストレスを使用した研究で使用された住居条件の影響を考慮する必要があります。ストレスを受けた同種との相互作用は、げっ歯類のストレス応答に影響を与えます30,38,39。したがって、実験グループ間で一貫した反応を維持するためには、被験者は個別に収容されるか、またはすべてのケージメイトが同じストレス状態を経験しているグループとして収容されるべきである37。重要なことに、このすべての被験者の社会的孤立アプローチの欠点は、社会的孤立住宅もストレス要因であることです40,41。しかし、住宅の状態に関係なく、ストレスへの曝露は、可能であれば、ストレスの社会的緩衝が結果測定に影響を与えるのを防ぐために、単独で発生すべきである30。これらの住宅条件に加えて、環境光サイクルに関連する応力曝露のタイミングを考慮する必要があります14,15。いくつかの研究が指摘しているように、コルチコステロイドのレベルは概日リズムに従うため、光サイクルの異なる時間にストレッサーを投与すると、一貫性のない効果が生じる可能性があります。したがって、拘束の開始時間を統一し、維持することが不可欠です。例えば、運動負荷がコルチコステロンの概日制御に及ぼす影響を調べたある論文では、対照マウスではコルチコステロンが光サイクルの後半にピークに達するが、ストレスを受けたマウスでは、コルチコステロンは安定したピークを持たずに上昇したままであることが示されている13。これらの知見に照らして、光サイクルの早い段階でげっ歯類にストレスを与えることが、最大の効果を生み出すために推奨される。
拘束条件のパラメータを超えて、動物の被験者の特性も、拘束ストレッサーを使用した研究で考慮することが重要でした。例えば、多くの研究で、拘束ストレスを用いた性差が報告されている12,35,37,42,43,44。これらの違いの根底にあるメカニズムを理解することは調査に値し、人々がストレスを経験したときに公平な治療のためのより良い結果につながる可能性があります。おそらく、女性と男性ではストレッサーの経験と処理が異なるため、女性の不安とうつ病の増加につながります44。例えば、拘束ストレスは男性の学習能力を低下させるが、女性の学習能力を向上させる45。歴史的に、げっ歯類の拘束ストレス研究は被験者をオスに限定してきましたが、今後は男女両方を含む実験を設計する必要があります。マウスまたはラット種のいずれかで拘束(およびその他の)ストレッサーを使用して実験を設計する際に考慮すべき別の主題特性は、ひずみ46,47,48,49,50,51です。ひずみの影響は多くのパラダイムで観察されており、一部のひずみは拘束ストレスに対して悪化した反応を示しています。最後に、拘束ストレスを利用する際には、被験者の年齢を考慮する必要があります。妊娠中の母親を拘束することによる出生前のストレスへの曝露から、高齢者の拘束まで、拘束ストレスは任意の時点に適応できます。応力応答の違いは、寿命45,52,53,54,55,56にわたって示されています。加齢に伴う体のサイズの変化に対応するためにさまざまな拘束装置が必要になることに加えて、拘束ストレッサーを使用する際には、加齢に伴うストレスの経験を考慮する必要があります。
適切な結果測定の選択は、3.2で説明されている行動課題であろうと3.3に記載されている神経生物学的変数であろうと、考慮が必要です。一つには、急性の軽度のストレス曝露は、一部の学習課題のパフォーマンスを向上させることが示されていますが、強烈または慢性的なストレス曝露は、学習課題と記憶課題57のパフォーマンスを損なうことが示されています。このような認知能力の変化は、前頭前野、扁桃体、海馬の間の回路調節不全によって調節されていると考えられています。しかし、認知の柔軟性に対する拘束ストレスの影響は、一貫性のない所見とより複雑であり、拘束のさまざまなパラメータが逆転学習またはセットシフトをどのように変えるかについての明確な全体像を妨げている58。薬物の行動への影響に関しては、拘束ストレスは、他のストレッサーと同様に、多くの薬物クラス59で物質使用障害に関連する行動を増加させることが示されています。しかし、これらの効果は、抑制ストレスが再発のオペラント条件付けモデルで薬物探索を促進するとは報告されていないが、復職を含む条件付けされた場所選好課題によって測定される薬物効果の連想学習を増加させるという点で、やや選択的である60。この不一致は、拘束装置がオペラント条件付けチャンバーとは別の状況を作成するのに対し、オペラント環境では足ショックストレスが発生する可能性があるために発生すると考えられています。この制限を克服するために、ストレス曝露とオペラント自己投与セッション中に提示できる手がかりを組み合わせることにより、ストレスによる薬物摂取と薬物探索の増加が実証されている61。薬物関連の行動に対する慢性的な拘束の影響は、あまり特徴付けられていません。不安やうつ病などの情動障害のモデルを考えると、人間と動物の両方のモデルで、ストレスへの曝露は不安の尺度を増加させます。げっ歯類では、不安の拘束ストレス評価には、オープンフィールド装置でのチグモタキシクス反応が含まれ、アリーナの壁に沿って動物の自発運動反応を中心と比較して追跡することによって測定されます。拘束後に不安のような行動を示す動物は、側面の近くでより多くの時間を過ごし、中央を交差する時間が少なくなります。不安を測定する別のアプローチは、高架プラス迷路です。このタスクでは、床から約 3 フィートの高さにある十字架の形をした装置を使用します。装置の2つのアームには、壁の障壁が含まれています。2本のアームは側面が開いています。不安のような行動を示す動物は、開いた腕よりも閉じた腕の中でより多くの時間を過ごす62,63。うつ病のような行動は、げっ歯類を水の円柱に入れ、浮遊反応と比較して苦労反応を測定する強制水泳課題を通じて評価される64。逃げようともがくのをやめることが本当にうつ病のような行動を表しているのかどうかが疑問視されている65が、それでもこの課題は抗うつ薬のスクリーニングとしての有用性を示している。うつ病のような行動は、ストレスによるショ糖選好の減少を通じても評価できる66。甘い液体の消費におけるこれらの変化は、臨床的うつ病の無快感症の側面の評価として取られます。
要約すると、マウスとラットの拘束は、生理学、遺伝学、免疫学、および神経科学の研究において、ストレスと不安反応を引き起こすための検証済みの手順です。他のストレス誘発アプローチと比較して、拘束は安価で、実行が容易で、不安、うつ病、物質使用障害、心的外傷後ストレス障害などの人間の障害の側面をモデル化するのに有用であり、幅広いパラメーターで適応できます。これらの理由から、拘束ストレスは、げっ歯類のストレスの影響を判断するための有用な方法であり続けています。
開示事項
報告する利益相反はありません。
謝辞
Holly Rahurahu と Sam Shaffer から提供された編集フィードバックに感謝します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 50 mL汎用スクリューキャップコニカルチューブ | グローブサイエンティフィック | 6288 | |
| ポーザブルピペットベイスン | フィッシャーサイエンティフィック | 13-681-500 | |
| コルチコステロン用ELISAキット | アーバーアッセイ | K014-H | |
| テールベイナーレストレインチューブ | ブレインツリーサイエンティフィック | RTV |
参考文献
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
再版と許可
