本稿では、光ピンセットを用いたハイブリッドスフェロイド製造のプロトコールを提案する。この方法により、他の方法では達成できないスフェロイド形成プロセスの初期段階を正確に制御することができます。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
二次元(2D)細胞培養は、前臨床がん研究において依然として最も一般的に使用されているモデルの一つです。しかし、3次元(3D) in vitro モデルは、より関連性の高い構造形態、微小環境、薬物に対する応答など、 in vivo 環境をより正確に評価しているようです。
光トラッピングは、1つ以上の集束レーザービームを使用して、ナノスケールおよびマイクロスケールで構造の位置、運動、相互作用、およびダイナミクスを非侵襲的に操作します。光ピンセット(OT)は、細胞生物学において数多くの用途が見出されています。しかし、がん研究におけるその可能性はまだ過小評価されています。この論文では、光ピンセットを使用したリンパ腫-間質細胞スフェロイド形成の非侵襲的プロトコルを推奨します。この方法は、ハイブリッドスフェロイド をde novo で構築するだけでなく、付着細胞の数や接着形成の時間を制御することも可能であり、組織工学の重要な情報源を提供します。さらに、OTは、標準的なバルク技術では達成できないハイブリッドスフェロイド形成の初期段階の研究を可能にします。重要なことに、記載されているモデルは、抗がん剤によって誘発される接着の最小限の変化を研究するために使用できます。このプロトコールは、他の細胞タイプにも簡単に適用できます。
概要
3次元(3D)細胞モデルは、いくつかの機能的および構造的特性において腫瘍組織により似ているため、がん研究を加速させています。これらには、とりわけ、細胞外マトリックスの産生、細胞間の相互作用、栄養素と酸素の勾配の維持、および治療に対する同様の応答が含まれます1,2,3,4。最近、in vivo条件をよりよく反映するために、様々な細胞タイプを含む高度な不均一3Dモデルが開発された5,6,7。
B細胞非ホジキンリンパ腫(B-NHL)は、免疫系の不可欠な構成要素であるBリンパ球に由来する不均一な悪性腫瘍のグループです8。B-NHLは、多様な臨床症状と組織学的特徴を特徴とするもので、臨床経過が長引く緩慢な形態から、急速に進行する攻撃的な変異体まで、さまざまな疾患を網羅しています9,10。B-NHLおよびその他の血液悪性腫瘍の病因は、しばしば腫瘍微小環境の影響に関連しています11,12。例えば、リンパ腫細胞はしばしば骨髄に拡がり、生命を脅かす合併症を引き起こす可能性があります13。骨髄ニッチの主要構成要素である間葉系間質細胞(MSC)は、主に直接的な細胞間相互作用を通じて腫瘍の成長と進行に影響を与えることが認識されています14、15、16、17;したがって、そのような相互作用を研究することを可能にするモデルを開発することが急務です。我々は、MSCをアガロースハイドロゲル上でリンパ腫細胞と共培養すると、自己凝集して多細胞スフェロイドになり、間質細胞がコアを形成し、リンパ腫細胞に均一に囲まれることを以前に確立しました18。この論文では、光ピンセットを使用したハイブリッドリンパ腫-間質細胞3Dモデルの作成のためのプロトコルを紹介します。
35年以上前、アシュキンは、集束レーザービーム19によるウイルスやバクテリアの非侵襲的な光捕捉の現象を最初に報告しました。今日、光ピンセット(OT)は、細胞生物学研究20,21,22,23を含む生物医学分野で動的に増大する影響力を持っています。OTは、個々の細胞の物理機械的特性を研究することを可能にした24,25,26だけでなく、単一細胞レベルでの直接的な細胞間相互作用、さらに2Dおよび3Dの細胞配置と構造化を研究することもできた27,28,29。光トラッピング技術は、電磁放射(光子)として発揮される数ピコニュートンのオーダーの光学力に基づいており、物質と相互作用するときにその運動量を変化させます30。その結果、1つ以上のレーザービームを使用することにより、オペレータは、マイクロスケールおよびナノスケール20の物体の位置、運動、およびダイナミクスを選択的に操作することができる。実際には、光トラッピング技術は、生細胞の選択的かつ非破壊的な捕捉を可能にし、それらを他の細胞または分子の表面と接触させ、接着プロセスの開始を誘発する31。以上の機能を利用して、まず、リンパ腫細胞を単層の間質細胞上に光学的に配置して、その接着特性を調べることを試みました。次に、光ピンセットがリアルタイムモードで多細胞スフェロイドを物理的に再現する能力の評価を進めました33。これを達成するために、個々のリンパ腫細胞を1つずつトラップし、事前に準備した3D間質スフェロイドに付着させました。光トラッピングの別の適用性は、最小細胞間接着時間を測定し、抗癌治療34,35に起因する接着の微小な変化を評価することであった。3Dモデルはがん研究で広く使用されていますが、スフェロイド形成の初期段階を研究することは依然として困難です。これは主に、ミクロの世界に高精度で触れると同時に、低侵襲の衝撃を与えることができる方法が限られているためです。逆に、OTの潜在能力は、3Dでの細胞配置と構造の範囲内ではまだ完全には達成されていません。したがって、この論文では、標準的な3D技術と光ピンセットの操作を使用して3Dリンパ腫コンストラクトを生成するための組み合わせワークフローを段階的に説明します。重要なことに、このプロトコールは、血液病理学的悪性腫瘍において重要な他の細胞型との使用に容易に適合させることができる。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
1. アガロースゲル系マイクロモールドの作製
注:すべての細胞培養を取り扱う際には、適切な無菌技術が不可欠です。このプロトコールで使用されるすべての試薬は、 材料表に記載されています。 図1Aに示すように、1回の実験でMSCを含む3つのゲルを調製します。
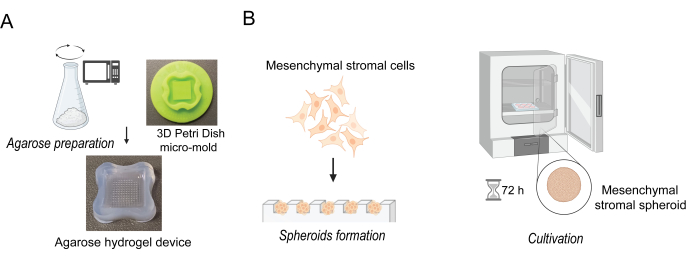
図1:間葉系間質細胞(MSC)スフェロイドの調製。 (A)アガロースマイクロモールドを調製するステップを描いたイラスト。(B)間葉系間質細胞(MSC)の播種、および間葉系スフェロイドの培養。 この図の拡大版を表示するには、ここをクリックしてください。
- まず、アガロースマイクロモールドを準備します。マイクロモールド3Dシャーレ( 材料の表を参照)を脱イオン水(3x)ですすぎ、UVランプの下に30分間置いて滅菌します。
- まず、2%アガロース溶液を調製します。高品質の純粋な滅菌アガロース粉末1g( 材料の表を参照)を測定し、滅菌50mLのコニカルチューブに入れます。50 mLの滅菌0.9%塩化ナトリウム溶液( 材料の表を参照)をアガロースに加え、よく混合します。.円錐形チューブのカバーを、固定されているがまだ緩むまでねじ込みます。
- 電子レンジを使用して沸騰させ、アガロース粉末を完全に溶かします。10秒ごとに電子レンジを止め、円錐形のチューブを慎重に回転させて、アガロースが溶解することを確認します。アガロースの混合またはピペッティング中に気泡を作らないようにしてください。アガロースを約70°Cに冷却します。
注意: 半透明の未溶解粉末の残りがないことを確認してください。
注意: 溶融アガロースは非常に高温で、重度の皮膚火傷を引き起こす可能性があります。 - 無菌技術を使用して層流キャビネットで作業します。ヒドロゲルを調製するには、滅菌済みのマイクロモールドに500 μLのアガロースを充填します。マイクロモールドの小さな特徴に閉じ込められている可能性のある気泡をピペットで吸引します。
- 室温で15分間インキュベートした後、アガロースが固まったら、マイクロモールドからゲルを慎重に取り出し、滅菌済みの6ウェルプレートに移します。ゲル構造を傷つけないでください。次のステップに進む前に、顕微鏡でマイクロモールドが正しく準備されているかどうかを確認し、エッジが損傷していないことを確認してください。媒体が漏れる可能性のある隙間がないか確認してください。
- マイクロモールドを完全に覆うのに十分な1xリン酸緩衝生理食塩水(PBS)を加えてから、プレートをUVランプの下に30分間置いて滅菌します。
注:アガロースマイクロモールドは、使用前に、冷蔵庫の条件(4°C)で1x PBSで覆われた円錐形のチューブに最大2週間保存できます。 - マイクロモールドを使用してスフェロイドを作製する前に、RPMI培地(6ウェルプレートの場合は4.0 mL/ウェル)でゲルを完全に覆って平衡化し、最低15分間インキュベートします。
2. 間葉系間質細胞(MSC)スフェロイドの調製
- ヒト間葉系間質細胞株であるHS-5細胞株( 材料表を参照)を、10%熱不活化ウシ胎児血清(FBS)および1%ペニシリン-ストレプトマイシン( 材料表を参照)を標準状態で補充したRPMI 1640培養培地で培養し、48時間ごとに培地を交換するようにします。
- HS-5細胞が約90%コンフルエントになったら、以下のように細胞継代を行います。
- 血清学的ピペットを使用して培地を取り出します。
- 1x PBSを添加し、渦巻き状に吸引して細胞を洗浄し、残っている培地を除去します。
- 培養フラスコの底部から細胞を剥離するには、2 mLのトリプシン-EDTA溶液( 材料表を参照)を細胞培養フラスコに加え、37°Cでインキュベートして細胞の剥離を促進します。
- トリプシン化を停止し、2 mLの完全培地を加えます。
- 5 mLピペットを使用して、細胞を静かに懸濁し、15 mLのコニカルチューブに移します。
- 細胞懸濁液を300 x g で7分間遠心分離します。上清を取り除き、細胞を1 mLの新鮮な培地に再懸濁します。
- 細胞ペレット10μLを取り出し、0.5mLのチューブに移します。次に、0.4% トリパンブルー溶液 10 μL を添加し ( 材料表を参照)、自動セルカウンター (材料表を参照) で細胞をカウントします ( 材料表を参照)。
- 上記で得られた細胞密度に基づいて、細胞を2 x 10⁵ 細胞/mLの培地に希釈します。
- アガロースマイクロモールドから細胞培養培地を取り出します。
- 上記の細胞懸濁液190μL(ステップ2.2.8)をアガロースマイクロモールドの細胞播種チャンバーに慎重に播種します。1つのウェルには約150個の細胞(38.000細胞/ゲル)が含まれます。
- アガロースマイクロモールド内のインキュベーター(5% CO2、37°C、湿潤雰囲気)で細胞がゲルの底に沈殿するまで30分間インキュベートします。30分後、マイクロモールドを含むプレートをインキュベーターから取り出し、ゲルの外側に追加の培地をゆっくりと加え、ゲルを完全に覆います(例:6ウェルプレートの場合は4.0 mL/ウェル)。
注:培地をゲルアガロースマイクロモールドに直接加えるのではなく、培養皿に添加して、新しく形成されたスフェロイドを傷つけないようにしてください。 - ゲルを37°Cのインキュベーターに5%CO2 の湿潤雰囲気で72時間、均一なスフェロイドが形成されるまで置きます。(図 1B)。
注:スフェロイド形成を倒立顕微鏡下で次の3日間観察することをお勧めします。一般に、間葉系間質細胞は24時間以内にスフェロイドを形成し始めますが、このプロセスは、細胞の継代や密度が異なると速くなったり遅くなったりします。アガロースマイクロモールド上で72時間のインキュベーションを行った後、間葉系間質細胞は比較的均一なスフェロイドを形成します。ただし、同じ条件でインキュベートされているにもかかわらず、サイズと形状が異なる場合があることに注意してください。メディウムが紫赤から黄色に変わったら交換する必要があります。
3. リンパ腫細胞の培養と光トラップの調製
注:リンパ腫細胞を含む血液学的細胞株は、培養プレートや容器に付着することなく、懸濁培養用に設計されたフラスコ内で培地中で浮遊して増殖します。最適な細胞特性を維持するために、光ピンセットを使用してハイブリッドスフェロイドを組み立てる手順の30分前までにサンプルの準備を開始することをお勧めします。重要なことに、このセクションで概説されているプロトコルはRi-1ヒトリンパ腫細胞株用ですが、同様のプロトコルが他の血液がん細胞株にも適用されます。
- 10% FBS と 1% ペニシリン/ストレプトマイシンを添加した RPMI 1640 培地で Ri-1 リンパ腫細胞株 ( 材料表を参照) を培養します。
- リンパ腫細胞をインキュベーター内に保管し、37°Cおよび5%CO2を含む加湿空気を含む標準的な培養条件下で保管します。2〜3日ごとに継代することにより、対数期で3〜5 x 10⁵ 細胞/ mLの培養を維持します。
- 細胞を採取し、懸濁液を15mLのポリスチレンチューブに移します。細胞を300 x g で室温で7分間遠心分離し、細胞ペレットを得ます。上清を取り除き、10 mLの新鮮な培地を加え、均質な懸濁液が得られるまで静かにピペットで洗います。
- 10 μLの細胞懸濁液を新しい遠心チューブに吸引し、10 μLのトリパンブルーを加えます。懸濁液を十分にピペットで動かしてから、10 μLを計数チャンバーに移し、細胞密度と生存率(通常は95%以上)を測定します。
- 細胞懸濁液を希釈して、最終密度が1 x 10⁴ 細胞/mLになるようにします。光学的操作が行われるまで、リンパ腫細胞を37°Cに保ちます。
4.光ピンセットシステムのセットアップ
注意: 以下のプロトコルは、カスタムメイドの光ピンセット36 (図2A)専用に開発されました。ただし、このアッセイは、他の市販のトラッピングシステムと一緒に使用できます。利用可能な機器の種類に関係なく、システム調製の基本的な手順(レーザーとコンピューターソフトウェアの起動、サンプルのマウント、光トラップでのセルの移動可能性のテストなど)は同じです。すべての実験は室温、つまり25°Cで行われました。
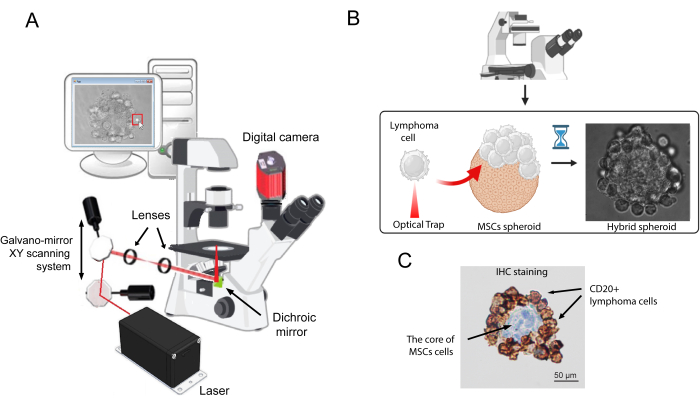
図2:光ピンセットによるハイブリッドスフェロイド生成の働き機構を示す概略図(A)カスタム設計の光ピンセットのセットアップ。(B)個々のリンパ腫細胞をMSCスフェロイドの表面に付着させるプロセス。単一のリンパ腫細胞を光学的に捕捉し、安定した結合が形成されるまで間質スフェロイドの表面に付着させました。このプロセスは、間質スフェロイドの表面全体がリンパ腫細胞で覆われるまで続きました。(C)CD20に対するモノクローナルマウス抗CD20抗体を用いて、ハイブリッドスフェロイド切片の免疫組織化学的染色の代表画像を得た。免疫染色は、CD20に対するモノクローナルマウス抗ヒト抗体を自己染色器(材料表を参照)で使用し、製造元の指示に従って行いました。この図の拡大版を表示するには、ここをクリックしてください。
- 顕微鏡の光源をオンにします。
- レーザーセーフ保護ガラスを着用してください。
- レーザーをオンにし、光ピンセットシステムで約50 pN /μmのトラップ剛性を得るための出力を設定します。先に進む前に、レーザービームが安定するまで10分待ちます。
注:カスタムビルドシステムでは、顕微鏡対物レンズの入口で3μmのポリスチレンビーズを測定したレーザー出力100mWに対してトラップ剛性が達成されます。リンパ腫細胞に対するその最小限の侵襲性は、生きた細胞を操作する能力を維持しながら、以前に確認されました32,33。 - その間に、コンピューターソフトウェアを起動します。ソフトウェアウィンドウに、顕微鏡サンプルの画像が表示されます。画面に表示されるマーカーを使用して、オプティカルトラップを目的の方向に動かします。
- システムの準備ができたら、底部の対物レンズの中央に30 μLの脱イオン水を加えます。
注:カスタムビルドシステムは、水浸対物レンズを使用します。ただし、イマージョンメディアは、ユーザーの設定によって異なる場合があります。 - 35 mmの細胞培養ディッシュ( 材料表を参照)をガラス底にして顕微鏡ステージに置きます。ホルダーで皿を安定させます。
- マイクロメトリック顕微鏡のネジを使用して、水のビーズが皿のガラス底に触れるまで対物レンズを持ち上げます。
- マイクロメータネジを使用して、レーザービームが画面上の単一の明るい点に鋭く集束するまで、マイクロステージをゆっくりと調整します。顕微鏡サンプルの画像がソフトウェアウィンドウに表示されます。画面に表示されるマーカーを使用して、オプティカルトラップを任意の方向に動かします。
- あらかじめ調製したリンパ腫細胞懸濁液100μL(ポイント3.5参照)をガラス底皿の中央に加えます。それらを皿の底に約5分間沈めます。
- 顕微鏡のステージの動きを使用して、浮遊リンパ腫細胞を見つけます。オプティカルトラップがサンプルに当たるようにするには、画面上のトラップカーソルをクリックします。セルを目的の場所に移動してみてください。セルが操作に役立つためには、与えられた方向に容易に移動できる必要があります。
注:私たちの観察によると、ガラス皿に追加されたリンパ腫細胞の5〜10%は、潜伏期間後に底に永久に付着します。このパーセンテージは、操作の時間とともに増加し、60分後に30%に達する可能性があります。しかし、これらの損失にもかかわらず、最初にディッシュに加えられる細胞の数により、効果的なシステムキャリブレーションとリンパ腫細胞によるスフェロイドのカバレッジの両方が可能になります。
5. 光ピンセットを用いたハイブリッドスフェロイドの生成
- アガロースモールドのウェルからピペットチップ(100〜1000μL)で1つの間質スフェロイドを慎重に取り出し、35 mm顕微鏡ガラス底皿に置きます。
- 2 mLのRPMI培地を加え、標準条件下で37°Cで10分間インキュベートします。この間、回転楕円体はガラスに優しくくっつき、操作中の動きを防ぎます。
- スフェロイドの入ったディッシュを顕微鏡ステージに置き、ホルダーで顕微鏡ステージ上でディッシュを安定させます。
- 100 μLのリンパ腫細胞溶液を、最終密度1 x 10⁴ 細胞/mLで慎重に加えます(ステップ3.5)。それらを皿の底に約5分間沈めます。
- 顕微鏡ステージの動きを利用して、浮遊リンパ腫細胞を見つけます。オプティカルトラップが選択したセルにヒットするようにするには、画面上のトラップカーソルをクリックします。細胞がトラップされて移動可能になったら、顕微鏡ステージを動かして細胞を間質スフェロイド表面に接触させます。
- まず、リンパ腫細胞を間質スフェロイドの表面に10秒間接着します。次に、光ピンセットを使用してリンパ腫細胞を剥離することを3回繰り返し試みて、細胞が永続的に付着しているかどうかを確認します。
- 細胞の接触が切断された場合は、光学トラップを使用してリンパ腫細胞をスフェロイド表面に再度取り付けます。ただし、今回は約 20 秒という長い期間です。
注:各細胞株について、シングルセルトラッピングの特定の時間間隔を個別に決定することが不可欠です。予備的な操作で、Ri-1細胞株のリンパ腫細胞は、間質スフェロイドに対して強い接着特性を示し、主にその表面に10〜20秒で付着することが確立されました。したがって、単一のRi-1細胞トラッピングの特異的接触時間間隔は、10秒、20秒、および30秒でした。この処置には時間がかかるため、光ピンセットによるスフェロイド形成には、最小接着時間が30秒以下の細胞株を使用することが推奨されます。 - 間質スフェロイドの表面全体がリンパ腫細胞で覆われるまで、後続のリンパ腫細胞で手順を繰り返します。
- 間質スフェロイドの利用可能な表面をリンパ腫細胞で均一に覆うためには、顕微鏡サンプルの体積における光学トラップの位置を変更する必要がある。マイクロメトリック顕微鏡のネジを使用してイメージング平面を変更することにより、光学トラップの位置を変更でき、サンプル内のトラップされた物体をより深く動かすことができます。
- 自発的に形成されたスフェロイドをよりよく表すには、間質細胞のコアをリンパ腫細胞の2〜3層で覆います。
- スフェロイドを含むガラス底皿をインキュベーターに移し、標準条件下で1時間のインキュベーションを行います。
注:ハイブリッドスフェロイドは、20 μLのRPMI培地で吊り下げ液中で長期間培養できます。
6. スフェロイド生存率の判定
- 細胞スフェロイドの生存率を、生/死染色キットを用いて評価します( 材料表を参照)。培地を静かに取り出し、1x PBSの100 μLで直接スフェロイドを洗浄します。
- スフェロイドを、1 μMのcalcein-AMと2 μMのethidium homodimer-1を含む1x PBS溶液100 μLで37°Cで20分間インキュベートします。
- 蛍光顕微鏡を使用してスフェロイドを観察し( 材料の表を参照)、画像をキャプチャします( 材料の表を参照)。
注:染色後にスフェロイドを洗浄する必要はありません。このアッセイでは、色素が細胞と相互作用する前に実質的に非蛍光であるため、バックグラウンド蛍光レベルは本質的に低くなります。 - ImageJプログラム( Table of Materialsを参照)を使用して、緑色に染色された領域(生細胞)と赤色(死細胞)と緑色に染色された総面積の比を計算して、スフェロイドの生存率を判断します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
これまでの結果から、リンパ腫細胞と培養した間葉系間質細胞が、がん細胞が均一に付着する均質な間質コアを構成していることが示された18。本研究では、特注の光ピンセットを用いて、間葉系間質細胞とリンパ腫細胞からなるヒトハイブリッドスフェロイドの改変に成功しました。 図2B は、光ピンセットシステムの重要な部分である明視野顕微鏡の代表的な回転楕円体を示しています。次に、 図2C は、抗CD20抗体37を用いたハイブリッドスフェロイドの免疫組織化学的染色を示す。CD20はB細胞の一般的なマーカーであり、これらの細胞の大部分に存在します。ハイブリッドスフェロイドの構築に使用されたリンパ腫細胞はすべてCD20抗原を発現し、茶色に染色されていますが、間質細胞はCD20陰性です。
ハイブリッドスフェロイドを作成する最初のステップは、上記の詳細なプロトコルを使用して間葉系間質スフェロイドを...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
この研究では、間葉系間質コア細胞とリンパ腫細胞のハイブリッドスフェロイドを、光ピンセットを使用してリアルタイムで操作しました。トラッピングシステムを含む新しいレーザーベースの技術は、現在市販されており、ますます人気が高まっています。しかし、今日まで、光ピンセットの大部分はカスタムメイドの機器であり続けています。したがって、較正、操作手順、および実験形状は、実験室間で異なる可能性がある38,39。このプロトコルは、ハイブリッドスフェロイドをリアルタイムで製造するために、商用およびカスタマイズされた光ピンセットシステムを設定するために必要な基本情報を記述しています。光ピンセットは、訓練を受けたスタッフがいる先進的な研究室での実験に必要な柔軟性を備えていますが、この方法の大きな可能性、つまり非侵襲的に生細胞に「触れる」能力に注目し、がん研究の分野に普及させたいと考えました。特に、OTは、標準的なバルク3D技術では達成できないハイブリッドスフェロイド形成の初期段...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者は、利益相反を宣言しません。
謝辞
著者は、慎重な編集により研究の明瞭さが大幅に向上したニコラス・チャルニクに心から感謝します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| µ-ディッシュ35 mm、高ガラス底 | IBIDI | 81158 | |
| 12-256 mico-mold 3D PetriDish | Microtissues Inc.、ロードアイランド州、米国 | 12-256TR | |
| 3 & マイクロ;m ポリスチレン微小球 | Polysciences | 17134-15 | |
| anti CD20 antibody (clone L26) | Dako | IS604 | |
| Automated Cell Counter, EVE | NanoEntek | EVE/ EVE-MC | |
| Autostainer Link 48 | Dako | D09634 | |
| Camera | オリンパス | U-TV0.63XC | |
| セルカルチャー CO2インキュベーター | エスコテクノロジーズ(株) | CCL | |
| 細胞計数スライド、EVE | NanoEntek | NE-EVS | |
| 細胞株HS-5 | ATCC | CRL-3611 | |
| 株Ri-1 | DSMZ | ACC 585 | |
| ウシ胎児血清 | Gibco | A5256701 | |
| 蛍光顕微鏡 | オリンパス | BX43 | |
| ImageJ program | 米国国立衛生 | ||
| 倒立顕微鏡 | オリンパス | IX73 | |
| Live/Dead 試薬キット | サーモフィッシャーサイエンティフィック | L3224 | |
| ペニシリン-ストレプトマイシン (10,000 U/mL) | Gibco | 15140122 | |
| リン酸緩衝生理食塩水、pH 7.4 | Gibco | 10010023 | |
| RPMI 1640 培地 | Gibco | 11875093 | |
| 塩化ナトリウム溶液 | Sigma-Aldrich | 7647-14-5 | |
| 塩化ナトリウム溶液 0.9%、滅菌済み | ITW ReITW試薬、S.R.L.エージェント、S.R.L. | A1671 | |
| トリパンブルー溶液、0.4% | Gibco 15250061 | ||
| TrypLE Express Enzyme (1X)、フェノールレッド不 | Gibco | 12604013 | |
| Trypsin-EDTA (0.05%)、フェノールレッド | Gibco | 25300096 | |
| UltraPure Agarose Invitrogen | |||
| 光学ピンセット セットアップ | |||
| ダイクロイックミラー | Thorlabs | DMSP805R | |
| デジタルカメラ | Mikrotron GmbH | MC1362 | |
| ガルバノミラーXYスキャンシステム | Thorlabs | GVS002 | |
| 倒立顕微鏡 | オリンパス | IX71 | |
| レンズ 1 | Thorlabs | AC254-050-B-ML | |
| レンズ 2 | Thorlabs | AC508-200-B-ML | |
| Nd:YAG 1064 nm | レーザー Quantum | Ventus |
参考文献
- Brancato, V., Oliveira, J. M., Correlo, V. M., Reis, R. L., Kundu, S. C. Could 3D models of cancer enhance drug screening. Biomaterials. 232, 119744(2020).
- Fontoura, J. C., et al. Comparison of 2D and 3D cell culture models for cell growth, gene expression and drug resistance. Mater Sci Eng. C. 107, 110264(2020).
- Kapałczyńska, M., et al. 2D and 3D cell cultures - a comparison of different types of cancer cell cultures. Arch Med Sci. 14 (4), 910-919 (2018).
- Duval, K., et al. Modeling physiological events in 2D vs. 3D cell culture. Physiology (Bethesda). 32 (4), 266-277 (2017).
- Barbosa, M. A. G., Xavier, C. P. R., Pereira, R. F., Petrikaitė, V., Vasconcelos, M. H. 3D cell culture models as recapitulators of the tumor microenvironment for the screening of anti-cancer drugs. Cancers (Basel). 14 (1), 190(2021).
- Jubelin, C., et al. Three-dimensional in vitro culture models in oncology research. Cell Biosci. 12, 155(2022).
- Pape, J., Emberton, M., Cheema, U. 3D cancer models: the need for a complex stroma, compartmentalization and stiffness. Front Bioeng Biotechnol. 9, 660502(2021).
- Singh, R., et al. Non-Hodgkin's lymphoma: A review. J Family Med Prim Care. 9 (4), 1834-1840 (2020).
- Campo, E., et al. The International consensus classification of mature lymphoid neoplasms: a report from the clinical advisory committee. Blood. 140 (11), Erratum in: Blood. 141 (4), 437 (2023). 1229-1253 (2022).
- Swerdlow, S. H., et al. The 2016 revision of the World Health Organization classification of lymphoid neoplasms. Blood. 127 (20), 2375-2390 (2016).
- Ng, W. L., Ansell, S. M., Mondello, P. Insights into the tumor microenvironment of B cell lymphoma. J Exp Clin Cancer Res. 41, 362(2022).
- Mancini, S. J. C., et al. Deciphering tumor niches: lessons from solid and hematological malignancies. Front Immunol. 12, 766275(2021).
- Zhang, Q. Y., Foucar, K. marrow involvement by Hodgkin and non-Hodgkin lymphomas. Hematol. Oncol Clin North Am. 23 (4), 873-902 (2009).
- Gao, Q., et al. marrow mesenchymal stromal cells: Identification, classification, and differentiation. Front Cell Dev Biol. 9, 787118(2022).
- Lwin, T., et al. Lymphoma cell adhesion-induced expression of B cell-activating factor of the TNF family in bone marrow stromal cells protects non-Hodgkin's B lymphoma cells from apoptosis. Leukemia. 23 (1), 170-177 (2009).
- Kumar, A., Bhattacharyya, J., Jaganathan, B. G. Adhesion to stromal cells mediates imatinib resistance in chronic myeloid leukemia through ERK and BMP signaling pathways. Sci Rep. 7 (1), 9535(2017).
- Cuiffo, B. G., Karnoub, A. E. Mesenchymal stem cells in tumor development: emerging roles and concepts. Cell Adh Migr. 6 (3), 220-230 (2012).
- Duś-Szachniewicz, K., Gdesz-Birula, K., Rymkiewicz, G. Development and characterization of 3D hybrid spheroids for the investigation of the crosstalk between B-Cell non-Hodgkin lymphomas and mesenchymal stromal cells. OncoTargets Ther. 15, 683-697 (2022).
- Ashkin, A., Dziedzic, J. M. Optical trapping and manipulation of viruses and bacteria. Science. 235, 1517-1520 (1987).
- Spyratou, E. Advanced biophotonics techniques: The role of optical tweezers for cells and molecules manipulation associated with cancer. Front Phys. 10, 247-285 (2022).
- Choudhary, D., Mossa, A., Jadhav, M., Cecconi, C. Bio-molecular applications of recent developments in optical tweezers. Biomolecules. 9 (1), 23(2019).
- Nussenzveig, H. M. Cell membrane biophysics with optical tweezers. Eur Biophys J. 47 (5), 499-514 (2018).
- Zhang, X., Ma, L., Zhang, Y. High-resolution optical tweezers for single-molecule manipulation. Yale J Biol Med. 86 (3), 367-383 (2013).
- Li, X., et al. Optical tweezers study of membrane fluidity in small cell lung cancer cells. Opt Express. 29 (8), 11976-11986 (2021).
- Wullkopf, L., et al. Cancer cell's ability to mechanically adjust to extracellular matrix stiffness correlates with their invasive potential. Mol Biol Cell. 29, 2378-2385 (2018).
- Yousafzai, M. S., et al. Effect of neighboring cells on cell stiffness measured by optical tweezers indentation. J Biomed Opt. 21 (5), 57004(2016).
- Gupta, S. K., et al. Quantification of cell-matrix interaction in 3D using optical tweezers. Multi-Scale Extracellular Matrix Mechanics and Mechanobiology. Studies in Mechanobiology, Tissue Engineering and Biomaterials. Zhang, Y. , Springer. Berlin/Heidelberg, Germany. 283-310 (2020).
- Ma, Z., et al. Laser patterning for the study of MSC cardiogenic differentiation at the single-cell level. Light Sci Appl. 2, 68(2013).
- Kirkham, G. R., et al. Precision assembly of complex cellular microenvironments using holographic optical tweezers. Sci Rep. 5, 8577(2015).
- Pesce, G., et al. Optical tweezers: theory and practice. Eur Phys J Plus. 135, 949(2020).
- Avsievicha, T., Zhua, R., Popovb, A., Bykova, A., Meglinski, I. The advancement of blood cell research by optical tweezers. Rev Phys. 5, 100043(2020).
- Duś-Szachniewicz, K., et al. Physiological hypoxia (physioxia) impairs the early adhesion of single lymphoma cell to marrow stromal cell and extracellular matrix. Optical tweezers study. Int J Mol Sci. 19, 1880(2018).
- Duś-Szachniewicz, K., Gdesz-Birula, K., Nowosielska, E., Ziółkowski, P., Drobczyński, S. Formation of lymphoma hybrid spheroids and drug testing in real time with the use of fluorescence optical tweezers. Cells. 11 (13), 2113(2022).
- Hu, S., Gou, X., Han, H., Leung, A. Y., Sun, D. Manipulating cell adhesions with optical tweezers for study of cell-to-cell interactions. J Biomed Nanotechnol. 9 (2), 281-285 (2013).
- Johansen, P., Fenaroli, F., Evensen, L., Griffiths, G., Koster, G. Optical micromanipulation of nanoparticles and cells inside living zebrafish. Nat Commun. 7, 10974(2016).
- Drobczyński, S., Duś-Szachniewicz, K. Real-time force measurement in double wavelength optical tweezers. J Opt Soc AmB. 34, 38-43 (2017).
- Pavlasova, G., Mraz, M. The regulation and function of CD20: an "enigma" of B-cell biology and targeted therapy. Haematologica. 105 (6), 1494-1506 (2020).
- Gieseler, J., et al. Optical tweezers- from calibration to applications: a tutorial. Adv Opt Mater. 13, 74-241 (2021).
- Bustamante, C. J., Chemla, Y. R., Liu, S., Wang, M. D. Optical tweezers in single-molecule biophysics. Nat Rev Methods Primers. 1, 25(2021).
- Mitrakas, A. G., et al. Applications and advances of multicellular tumor spheroids: Challenges in their development and analysis. Int J Mol Sci. 24 (8), 6949(2023).
- Malm, M., et al. Evolution from adherent to suspension: systems biology of HEK293 cell line development. Sci Rep. 10, 18996(2020).
- Ling, Y., et al. A cell-laden microfluidic hydrogel. Lab on a Chip. 7 (6), 756-762 (2007).
- Azizipour, N., Avazpour, R., Sawan, M., Ajji, A., Rosenzweig, H. Surface optimization and design adaptation toward spheroid formation on-chip. Sensors. 22 (9), 3191(2022).
- Ryu, N. E., Lee, S. H., Park, H. Spheroid culture system methods and applications for mesenchymal stem cells. Cells. 8 (12), 1620(2019).
- Han, S. J., Kwon, S., Kim, K. S. Challenges of applying multicellular tumor spheroids in preclinical phase. Cancer Cell Int. 21, 152(2021).
- Feng, Q., Li, D., Li, Q., Cao, X., Dong, H. Microgel assembly: Fabrication, characteristics, and application in tissue engineering and regenerative medicine. Bioact Mater. 9, 105-119 (2021).
- Volpe, G., et al. Roadmap for optical tweezers. J Phys Photonics. 5, 022501(2023).
- Pradhan, M., Pathak, S., Mathur, D., Ladiwala, U. Optically trapping tumor cells to assess differentiation and prognosis of cancers. Biomed Opt Express. 7, 943(2016).
- Duś-Szachniewicz, K., et al. Differentiation of single lymphoma primary cells and normal B-cells based on their adhesion to mesenchymal stromal cells in optical tweezers. Sci Rep. 9, 9885(2019).
- Gdesz-Birula, K., Drobczyński, S., Sarat, K., Duś-Szachniewicz, K. Sonidegib Inhibits the adhesion of acute myeloid leukemia to the bone marrow in hypoxia: An optical tweezer study. Biomedicines. 13, 578(2025).
- Matheson, A. B., et al. Optical tweezers with integrated multiplane microscopy (OpTIMuM): A new tool for 3D microrheology. Sci Rep. 11, 5614(2021).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
