アルコールの誤用は、ミトコンドリア呼吸の抑制と生体エネルギー学により、肺胞マクロファージ(AM)免疫を損ないます。私たちは最近、エタノール(EtOH)への曝露がAMのミトコンドリア呼吸に対するグルタミン依存性を増加させることを示しました。本明細書では、細胞外フラックスバイオアナライザーを用いて、EtOH処理AMにおけるミトコンドリア呼吸に対するグルタミンの使用を決定する方法が提供される。
方法論記事
細胞外フラックスバイオアナライザーを用いた慢性エタノール曝露による肺胞マクロファージの燃料源としてのグルタミンの評価
この記事について
サマリー
要約
肺胞マクロファージ(AM)は、病原体に対する下気道の細胞防御の最前線です。しかし、慢性的で過剰なアルコール摂取は、AMが肺胞腔から病原体を食作用させ、除去する能力を損ないます。これは、部分的には燃料代謝の調節不全と生体エネルギー学によるものです。私たちの以前の研究では、慢性的なエタノール(EtOH)の消費がミトコンドリアの生体エネルギーを損ない、AMの乳酸レベルを増加させることが示されています。さらに、最近、EtOHがグルタミン依存性とグルタミン依存性の最大呼吸を増加させる一方で、柔軟性を低下させ、ピルビン酸依存性呼吸からグルタミン依存性呼吸に移行することを実証しました。グルタミン分解は、ピルビン酸が乳酸産生に使用される場合、または他の燃料源が不十分な場合のミトコンドリア呼吸の重要な代償経路です。マウスAM細胞株MH-S細胞をEtOHなしまたはEtOHなし(0.08%)に72時間曝露し、細胞外フラックスバイオアナライザーを用いて、ミトコンドリア呼吸と生体エネルギーの燃料源としてのグルタミンへの依存性を決定しました。グルタミナーゼ 1 の阻害剤であるビス-2-(5-フェニルアセタミド-1,3,4-チアジアゾール-2-イル) エチルサルフィド (BPTES) に応答して、メディアビヒクルまたはビヒクルのみに応答して、ミトコンドリアストレスをテストした後、リアルタイムの測定が行われました。ここで提供される段階的なプロトコルは、グルタミン依存性の基礎ミトコンドリア呼吸、ミトコンドリアATP関連呼吸、最大ミトコンドリア呼吸、および複数の生物学的および実験的反復にわたるミトコンドリア予備呼吸能力の平均レベルを分析するための方法と計算を説明しています。
概要
アルコール使用障害(AUD)は、米国で2,800万人以上が罹患しています1。AUDの人は、呼吸器感染症を発症する可能性が2〜4倍高く2,3、早期の罹患率と死亡のリスクが高くなります3,4,5。アルコールの乱用は、肺の免疫機能を抑制することで、呼吸器感染症にかかりやすくなります。肺胞マクロファージ(AM)は、下肺の病原体に対する細胞防御の最前線であり、そこで吸い込んだ微生物を食作用させて除去します。しかし、慢性的なアルコール摂取は、AMが病原体を飲み込んで殺す能力を損ないます6,7。
食作用などのAMの免疫機能は、高アデノシン三リン酸(ATP)の生成に必要な代謝活性経路を必要とするエネルギーを必要とするプロセスです。ミトコンドリアの酸化的リン酸化は、ATPを産生するための最も効率的な細胞プロセスですが、慢性的なエタノール(EtOH)曝露はミトコンドリア由来の酸化ストレスを増加させ、AM8、9、10のミトコンドリア機能障害を引き起こす可能性があります。細胞内酸素消費率(OCR)を用いて測定されたミトコンドリア呼吸は、細胞外フラックスバイオアナライザーを用いてリアルタイムで定量化することができます。オリゴマイシン(ATP合成酵素阻害剤)、カルボニルシアン化物-p-トリフルオロメトキシフェニルヒドラゾン(FCCP、プロトンアンカプラー)、およびロテノン/アンチマイシンA(R/A、ミトコンドリア複合体IおよびIII阻害剤)に反応して評価されたミトコンドリア呼吸プロファイルは、ミトコンドリアの生体エネルギーを決定するために使用されます。慢性EtOHは、ミトコンドリア基礎呼吸の減少、ATP関連呼吸、最大呼吸、および予備呼吸能力10によって証明されるように、AMのミトコンドリア生体エネルギーを減少させます。
細胞は、ATP産生のために、ピルビン酸、グルタミン、脂肪酸などの燃料源にさまざまなレベルで依存しています。また、細胞の生体エネルギーを制御するために燃料の使用を切り替えることができる柔軟性も備えています。グルタミン分解は、特にピルビン酸が乳酸産生に向かう場合や脂肪酸が不十分な場合に、ミトコンドリア呼吸の重要な経路です。私たちの最近の研究では、慢性的なEtOH曝露は、グルタミンへのAM依存を増加させ、ミトコンドリア呼吸にグルタミンや他の燃料源を使用するAMの柔軟性を低下させることを示しました11。これらの結果は、ピルビン酸酸化阻害剤UK5099によるEtOHばく露MH-S細胞の処理が、UK5099で処理した培地対照ばく露MH-S細胞と比較してミトコンドリア生体エネルギーを変化させなかったことを示すデータとともに、EtOH MH-S細胞におけるピルビン酸依存性呼吸からグルタミン依存性呼吸への移行を示唆しました。しかし、このシフトはAMの生体エネルギー要求を満たすには不十分である11。ここでは、細胞外フラックスバイオアナライザーを使用して、慢性EtOH曝露AMのミトコンドリア呼吸の燃料源としてのグルタミンを評価する方法について説明します。このプロトコールは、96ウェル(11.04 mm2 面積)のフォーマット用に作成および最適化されており、より大きな細胞培養ウェルサイズに合わせて調整する必要があります。ミトコンドリアの生体エネルギー学に対するグルタミン依存性は、ビス-2-(5-フェニルアセタミド-1,3,4-チアジアゾール-2-イル)エチルサルフィド(BPTES、グルタミナーゼ1の阻害剤)を使用して決定され、グルタミンのグルタミン酸への酵素的変換を選択的に阻害します。この研究で提示されたデータは、Crotty et al.11に掲載された、未処理のコントロールおよび慢性のEtOH曝露マウスAM細胞株MH-S細胞の培地対照およびBPTES処理実験群の追加の生物学的複製です。
プロトコル
1. in vitroでの慢性的なEtOH曝露
- RPMI-1640を10%ウシ胎児血清、1%ペニシリン/ストレプトマイシン、11.9 mM重炭酸ナトリウム、40 mg/mLゲンタマイシン、および50 μM 2-メルカプトエタノールを含む完全培地で、加湿インキュベーター内でマウス肺胞マクロファージ細胞株であるMH-S細胞を37°C、5%CO2 で培養します。
- EtOH(0.8 mg/mLまたは0.08%)の有無にかかわらず、培養MH-S細胞を72時間処理します。EtOHは24時間ごとに交換する必要があります。EtOH処理したMH-S細胞を5% CO2 で37°Cでインキュベートし、インキュベーター水中に0.08%のEtOHを含む別の加湿インキュベーターでインキュベートします。
2. 細胞外フラックスバイオアナライザーを用いた燃料源としてのグルタミン評価のためのMH-S細胞のプレーティング
- 未処理のコントロール(Con)および慢性のEtOH処理MH-S細胞をT-75フラスコで少なくとも50%のコンフルエント度(70%-90%のコンフルエントが理想的)まで増殖させ、96ウェルの細胞外フラックスマイクロカルチャープレートに転写するようにしてください。ConおよびEtOH実験条件の生物学的複製ごとに5〜6回のテクニカルレプリケートのプレートマップを準備し、それぞれの培地コントロールをBPTES注射と比較します(生物学的n = 1の場合は合計4グループ)。
- 培地またはリン酸緩衝生理食塩水で細胞をすすぎます。
- 6 mLの血清含有培地をフラスコに加えます。.
- セルが剥がれてプレートの底が透明になるまで、セルをこすり落とします。トリプシンはMH-S細胞の剥離には必要ありませんが、他の細胞種では役立つ可能性があります。
- 血清学的ピペットまたは1mLピペットを使用して細胞を分離します。
- 懸濁した細胞を15 mLのコニカルチューブに移し、200 x g で6分間遠心分離します。
- 上清を吸引します。
- 1 mLの培地を加え、細胞を完全に再懸濁します。
- 10 μLを微量遠心チューブに移し、10 μLのトリパンブルーを加えます。よく混ぜます。
- セル/トリパンブルー混合物10 μLを血球計算盤またはセルカウンターの片側に移します。
- 光学顕微鏡またはセルカウンターを使用して細胞の数をカウントします。
- 細胞密度をミリリットルあたりの平均生細胞数として計算します。
- 必要な希釈率を計算します。
必要なウェルの数 x 10000-15000 細胞 = 必要な細胞の総数。
必要なウェル数 x 80 μL = 必要な再懸濁細胞の総量。 - 80 μLの細胞を96ウェル細胞外フラックスマイクロカルチャープレートの必要なウェルにアプスします。
- コーナーウェルには、細胞や培地がまったくないままにします。これらの井戸は、バックグラウンド測定に使用されます。
- 37°C加湿インキュベーターで細胞を5% CO2 と一晩インキュベートし、細胞外フラックスマイクロカルチャープレート内で細胞が接着して平衡化させます。
- ステップ1を使用して、96ウェル細胞外フラックスマイクロカルチャープレートでMH-S細胞を72時間処理します。
- 細胞外フラックスバイオアナライザー実験を実行する少なくとも4時間前から最大24時間前に、96ウェルの細胞外フラックスパックカートリッジを水和します。
- 細胞外フラックスパックの上部を取り外し、フラックスパックのプローブ部分を上向きにしてベンチに置きます。200 μLの細胞外フラックスキャリブラント溶液を、細胞外フラックスパックカートリッジの底部の各ウェルに適用します。
- 切片をまとめ、細胞外フラックスパックカートリッジをパラフィルムで包みます。37°Cの非CO2 加湿インキュベーターまたは37°Cビーズバスに入れます。
- アッセイデザインを含むコンピュータの電源を入れ、細胞外フラックスバイオアナライザー装置に付属しているランニング/解析ソフトウェアを開き、実験を行う少なくとも4時間前にウォームアップします。
3. 細胞外フラックスバイオアナライザーを用いて、MH-S細胞のミトコンドリア呼吸の燃料源としてのグルタミンの評価
メモ: この手順の一般的な概要を 図 1 に示します。
- Con-およびEtOH処理した培養MH-S細胞を光学顕微鏡で確認し、細胞が健康で単層のウェルに付着していることを確認します。アッセイを確実に実施するためには、細胞が少なくとも70%のコンフルエント(90%のコンフルエントが理想的)であることを確認してください。
- 細胞外フラックスベース培地を以下のサプリメントで調製します。
- 35 mLの細胞外フラックスベース培地を50 mLチューブに分注します。
- 100 mMピルビン酸ナトリウム(最終濃度1 mM)、D-グルコース350 μL(最終濃度10 mM)、およびL-グルタミン(最終濃度2 mM)と比較して保存安定性の高いGlutaMAXを350 μL追加します。
注:新鮮なL-グルタミンも同じ濃度で使用できます。 - 溶液を37°Cに温め、pHが37°Cで7.4±0.05であることを確認します。
- 細胞外マイクロカルチャープレートから増殖培地を穏やかに吸引します。細胞を下から吸引せずに、できるだけ培地を残さないでください。細胞外フラックスを添加したベースメディウムを最大50 μLで1回洗浄します。
- 細胞外フラックスを添加したベース培地180 μLを各ウェルに加え、細胞外マイクロカルチャープレートを37°Cの非CO2 加湿インキュベーターで30分から1時間インキュベートして平衡化させます。
- グルタミン酸化試験試薬を溶解します。
- BPTESチューブに、細胞外フラックスを添加したベース培地700 μLを加えて、120 mMのストック溶液を調製します。ピペットで10回上下させて、化合物を適切に可溶化します。
注意: BPTESは皮膚や目の炎症を引き起こし、呼吸器の炎症を引き起こす可能性があります。取り扱うときは、保護手袋、目の保護具、顔の保護具を着用してください。内容物と容器は、承認された廃棄物処理施設に廃棄してください。 - オリゴマイシンチューブに、630 μLの細胞外フラックス添加ベース培地を加えて、100 mMのストック溶液を調製します。ピペットで10回上下させて、化合物を適切に可溶化します。
- FCCPチューブに、720 μLの細胞外フラックス添加塩基培地を加えて、100 mMストック溶液を調製します。ピペットで10回上下させて、化合物を適切に可溶化します。
注意: FCCPは、飲み込むと有害であり、重度の皮膚火傷や眼の損傷を引き起こし、アレルギー性皮膚反応を引き起こし、水生生物に長期にわたる有害な影響を与える可能性があります。取り扱うときは、保護手袋、保護服、目の保護具、顔の保護具を着用してください。内容物と容器は、承認された廃棄物処理施設に廃棄してください。 - R/Aチューブに、細胞外フラックスを添加したベース培地540 μLを加えて、50 mMのストック溶液を調製します。ピペットで10回上下させて、化合物を適切に可溶化します。
注意:ロテノンは、飲み込んだり吸い込んだりすると致命的であり、皮膚の炎症を引き起こし、深刻な眼の炎症を引き起こし、呼吸器の炎症を引き起こす可能性があり、水生生物に非常に有毒で、長期的な影響があります。保護手袋、目の保護具、顔の保護具、呼吸保護具を着用してください。内容物と容器は、承認された廃棄物処理施設に廃棄してください。アンチマイシンAは飲み込むと致命的であり、水生生物に非常に毒性があり、その影響は長期にわたって持続します。内容物と容器は、承認された廃棄物処理施設に廃棄してください。
- BPTESチューブに、細胞外フラックスを添加したベース培地700 μLを加えて、120 mMのストック溶液を調製します。ピペットで10回上下させて、化合物を適切に可溶化します。
- 基質酸化およびミトコンドリアストレステスト試薬の使用濃度を調製します。
- BPTESの場合、1,500 μLの細胞外フラックス添加ベース培地と500 μLの120 mM BPTESストック溶液を混合して、30 μM BPTESワーキング溶液を調製します。
- オリゴマイシンの場合は、2,520 μLの細胞外フラックス添加塩基培地と480 μLの100 mMオリゴマイシンを混合して、16 mMオリゴマイシンワーキング溶液を調製します。
- FCCP の場合、2,865 μL の細胞外フラックス添加塩基培地と 135 μL の 100 mM FCCP を混合して、4.5 mM FCCP ワーキング溶液を調製します。
- R/Aでは、2,700 μLの細胞外フラックス添加ベース培地と300 μLの50 mM R/Aを混合して、5 mM R/Aワーキング溶液を調製します。
- 細胞外フラックスパックカートリッジの上部のポートに、以下のものをロードします。
- バックグラウンドウェルとメディアコントロールウェルに、20 μL の細胞外フラックス添加塩基培地をポート A に、22 μL のオリゴマイシンをポート B に、25 μL の FCCP をポート C に、27 μL の R/A をポート D にロードします。
- 20 μL の培地コントロールまたは BPTES を充填した細胞含有ウェルをポート A (BPTES の最終濃度 3 μM) に、22 μL のオリゴマイシンをポート B (オリゴマイシンの最終濃度 2 μM) に、25 μL の FCCP をポート C (FCCP の最終濃度 0.5 μM) に、27 μL の R/A (R/A の最終濃度 0.5 μM) をポート D にロードします。
- 細胞外フラックスバイオアナライザー実験は、装置に付属しているアッセイ設計および解析用のコンピュータソフトウェアプログラムを使用して、以下のタイミングと注入方法を用いて実施します。
- BPTESのポートAを使用した注入の場合、測定回数を6に設定します。混合時間を 3 分に設定し、待機時間を 0 分、測定時間を 3 分に設定します。
- オリゴマイシンのポート B を使用した注入では、測定回数を 3 に設定します。混合時間を 3 分に設定し、待機時間を 0 分、測定時間を 3 分に設定します。
- FCCP のポート C を使用した注入では、測定回数を 3 に設定します。混合時間を3分に設定し、待ち時間を6分、測定時間を3分に設定します。
- R/AのポートDを使用したインジェクションの場合、測定回数を3に設定します。混合時間を 3 分に設定し、待機時間を 0 分、測定時間を 3 分に設定します。
- すべてのセット背景、メディアコントロール、および実験グループウェルを確認します。アッセイを保存して実行します。まず、細胞外フラックスパックにA-D注入液をロードします。キャリブレーションは、セルプレートをロードする準備ができるまで行われます。
- アッセイの最後にすぐに細胞プレートを取り外してください。結果を保存して、後で別のデバイスで分析します。
- 細胞がまだ接着しているかどうかを光学顕微鏡で確認します。リン酸緩衝生理食塩水で1x洗浄し、お好みの細胞溶解緩衝液で細胞を溶解します。-80°Cで保存するか、タンパク質濃度についてすぐにアッセイしてください。
4. MH-S細胞におけるミトコンドリア呼吸の燃料源としてのグルタミン評価結果の解析
- 各ウェルの細胞からタンパク質を抽出し、酸素消費率(OCR)データをタンパク質に正規化します。
- ウェルあたりのタンパク質の濃度(ナノグラム/マイクロリットル[ng/μL])を計算します。
- 細胞外フラックスマイクロカルチャープレート全体の平均タンパク質濃度(ng/μL)を計算します。
- 各ウェルのタンパク質濃度を平均プレートのタンパク質濃度で割って、正規化係数を求めます。
- アッセイの設計と分析のためのコンピュータソフトウェアプログラムを使用して、目的のデータファイルに正規化係数を適用します。
- すべてのバックグラウンドウェルのOCR値が0に近いことを確認します。
- ベースラインでOCRが10<セルウェルの選択を解除します。データは削除されませんが、ハイライト表示されたウェルはエクスポートされたデータファイルに表示されます。
- アッセイの設計と分析のために、コンピューターソフトウェアプログラムからデータをコンピュータースプレッドシートプログラムにエクスポートします。
- コンピューターのスプレッドシートプログラムでファイルを開き、OCRの値を減らしてすべてのデータを並べ替えます。バックグラウンドウェル、以前に選択解除された(および削除されていなかった)ウェル、細胞生存率が低いウェル、細胞の密度が低いウェル、完全な注入戦略が完了していないウェル、タンパク質濃度の読み取りが不正確なウェル、ベースラインOCRが<10のウェル、およびその他の所定の基準を削除します。
- 残りのすべてのデータを測定値、グループ、OCRの順に並べ替えます。
- 各生物学的Nの技術的平均は、測定によって独立して複製されます。技術的な反復を平均した後、生物学的Nごとに実験グループごとに最低18の異なる値(ベースライン3、培地/ BPTES後3、オリゴマイシン後3、FCCP後3、ロテノン/アンチマイシンA後6)があることを確認します。これを生物学的Nごとに個別に行うと、分析されたデータに対して平均の標準偏差または標準誤差を後で計算できます。
- すべての平均値を新しいスプレッドシートにコピーし、実験グループごとに分けます。
- 各実験グループの注入戦略ごとにOCR値を平均化します。
- 酸素消費量に基づいてミトコンドリア生体エネルギー学のパラメータを計算します。
- 基礎呼吸を計算します。
- ミトコンドリアの基礎呼吸を次のように計算します。
基礎ミトコンドリア呼吸 (pmol O2 消費) = ([AVG OCR 測定値 #1, 2, 3 - AVG OCR 測定値 #16, 17, 18] x [時間 #3 - 時間 #1])
注:基礎呼吸は、阻害剤が注射される前であるため、培地コントロール群とBPTES群の間で類似している必要があります。. - グルタミンに依存しないミトコンドリアの基礎呼吸を次のように計算します。
グルタミンに依存しない基礎ミトコンドリア呼吸 (pmol O2 消費) = ([AVG OCR 測定値 #4, 5, 6, 7, 8, 9 - AVG OCR 測定値 #16, 17, 18] x [時間 #9 - 時間 #4])
注:グルタミンに依存しない基礎ミトコンドリア呼吸は、細胞がグルタミンに大きく依存していない限り、基礎ミトコンドリア呼吸よりも少なくする必要があります。 - グルタミンに依存する基礎ミトコンドリア呼吸を次のように計算します。
グルタミンに依存する基底ミトコンドリア呼吸 (pmol O2 消費) = ([AVG OCR 測定値 #1, 2, 3 - AVG OCR 測定値 #4, 5, 6, 7, 8, 9] x [時間 #9 - 時間 #4])
注:ミトコンドリア基礎呼吸総数をミトコンドリア基礎呼吸から差し引くべきではなく、これらは異なる時点で計算されるため、グルタミンに依存するべきではありません。
- ミトコンドリアの基礎呼吸を次のように計算します。
- ATP関連呼吸を次のように計算します。
- 次のように、すべての燃料からのミトコンドリアATP関連呼吸の合計を計算します。
すべての燃料からのミトコンドリアATP関連呼吸総数(pmol O2 消費)=([AVG OCR測定値#1、2、3 - AVG OCR測定値#10、11、12] x [時間#12 - 時間#10])
注:オリゴマイシンはATP合成酵素を強く阻害し、1つの燃料経路を阻害してもATP関連呼吸の総数は変化しないため、測定値#10、11、および12の平均OCRは、培地対照群とBPTES群の間で類似しているはずです。 - グルタミンに依存しないATP結合ミトコンドリア呼吸を次のように計算します。
グルタミンに依存しないATP結合ミトコンドリア呼吸(pmol O2 消費)=([AVG OCR測定値#4、5、6、7、8、9-AVG OCR測定値#10、11、12] x [時間#12-時間#10])
注:グルタミンに依存しないATP結合ミトコンドリア呼吸は、細胞がグルタミンに大きく依存していない限り、ATP結合ミトコンドリア呼吸よりも少なくする必要があります。 - グルタミンに依存するATP結合ミトコンドリア呼吸を次のように計算します。
グルタミンに依存するATP結合ミトコンドリア呼吸(pmol O2 消費)=すべての燃料からの総ATP結合ミトコンドリア呼吸-グルタミンに依存しないATP結合ミトコンドリア呼吸
- 次のように、すべての燃料からのミトコンドリアATP関連呼吸の合計を計算します。
- 次のように最大呼吸数を計算します。
- ミトコンドリアの最大呼吸総数を次のように計算します。
ミトコンドリアの最大呼吸総数 (pmol O2 消費) = ([AVG OCR 測定値 #13, 14, 15 - AVG OCR 測定値 #16, 17, 18] x [時間 #15 - 時間 #13]) - グルタミンに依存しないミトコンドリアの最大呼吸を次のように計算します。
グルタミンに依存しない最大ミトコンドリア呼吸 (pmol O2 消費) = ([BPTES グループの AVG OCR 測定値 #13、14、15 - BPTES グループの AVG OCR 測定値 #16、17、18] x [時間 #15 - #Time 13]) - グルタミンに依存するミトコンドリアの最大呼吸を次のように計算します。
グルタミンに依存する最大ミトコンドリア呼吸(pmol O2 消費)=すべての燃料からの総最大ミトコンドリア呼吸 -グルタミンに依存しない最大ミトコンドリア呼吸
注:この計算は、他の燃料と比較したグルタミンの予備容量の細胞依存性を決定するために使用できます。ミトコンドリアの最大呼吸数が大きければ大きいほど、グルタミンへの依存度が高くなり、これはBPTESグループ(最大ミトコンドリア呼吸の減少を示す対照群)または全呼吸数の割合として表すことができます。
- ミトコンドリアの最大呼吸総数を次のように計算します。
- 次のように予備の呼吸容量を計算します。
- 予備の総呼吸容量を次のように計算します。
総予備呼吸能力 (pmol O2 の消費) = ([AVG OCR 測定値 #13, 14, 15 - AVG OCR 測定値 #1, 2, 3] x [時間 #15 - 時間 #13]) - グルタミンに依存しない予備の呼吸能力を次のように計算します。
グルタミンに依存しない予備の呼吸能力 (pmol O2 の消費) = ([BPTES グループの AVG OCR 測定値 #13、14、15 - BPTES グループの AVG OCR 測定値 #1、2、3] x [時間 #15 - 時間 #13]) - グルタミンに依存する予備の呼吸容量を次のように計算します。
グルタミンに依存する予備呼吸能力(pmol O2 消費)=すべての燃料からの合計予備呼吸能力-グルタミンに依存しない予備呼吸能力
注:この計算は、グルタミンに依存する細胞の柔軟性と、必要に応じてグルタミンなしでより大きな呼吸を達成できるかどうかを表しています。
- 予備の総呼吸容量を次のように計算します。
- 基礎呼吸を計算します。
- 阻害剤群ごとに培地コントロールを差し引き、必要に応じて、コントロール群に対して消費されるpmol O2 を正規化します。
- OCR生体エネルギープロファイル(pmol O2/min)、基礎呼吸(pmol O2)、ATP連動呼吸(pmol O2)、最大呼吸数(pmol O2)、およびグルタミンに依存する予備呼吸能力(pmol O2)のグラフを作成します。
- ミトコンドリアの生体エネルギーエンドポイント値を棒グラフで表すか、培地制御群に対する阻害剤群の手段として表現します。各生物学的Nが別々に計算される場合は、すべての生物学的Nにわたる分析データの平均の標準偏差または標準誤差を計算します。
5. 統計分析
- 適切なデータ分析ソフトウェアを使用して、すべての統計分析を実行します。
- OCR生体エネルギープロファイルの線形点については、二元配置ANOVAを実行し、その後にテューキーの事後分析を行い、これら4つの実験グループからのデータを2つの因子(治療および注射戦略)と比較します:Con +培地、Con + BPTES、EtOH +培地、およびEtOH + BPTES。
- 基礎呼吸、ATP関連呼吸、最大呼吸、およびグルタミンに依存する予備呼吸容量の棒グラフについては、スチューデントの t検定分析を実施して、Con + BPTESおよびEtOH + BPTESの2つの実験グループのデータを比較します。
- データを平均の平均±標準誤差 (SEM) として表示します。 p < 0.05 を統計的に有意であると考えます。
結果
慢性的なEtOH曝露は、MH-S細胞のグルタミン依存性を低下させます。
グルタミン分解はミトコンドリア呼吸の重要な経路であり、グルタミンを細胞の生体エネルギー学の重要な燃料源として支えています。EtOHへの慢性的な曝露が、ミトコンドリア呼吸の燃料源としてのグルタミンに対するMH-S細胞の依存性を変化させるかどうかを判断するために、MH-S細胞をEtOH制御(Con)またはEtOHなしで処理し、ミトコンドリア呼吸に関連する試薬の連続注射に応答してOCRを経時的に測定した。オリゴマイシン(ATP合成酵素阻害剤)、FCCP(プロトンアンカプラー)、およびR / A(それぞれミトコンドリア複合体Iおよび複合体III阻害剤)の連続注射に応答するOCR生体エネルギープロファイルを使用して、ATP関連呼吸、最大呼吸、予備呼吸能力など、ミトコンドリア生体エネルギーの他のパラメーターを計算します。示されているすべてのデータは、Crotty et al.11に掲載されたCon +培地、Con + BPTES、およびEtOH+培地、EtOH+BPTES MH-S細胞実験グループの追加の生物学的複製です。図2Aに示すように、オリゴマイシンは複合体Vの阻害によりOCRを減少させ、FCCPは膜電位とミトコンドリア依存性ATP第12世代とのミトコンドリアの共役解除によりOCRを増加させ、R/Aはミトコンドリア依存性OCRを効果的にシャットダウンしました。これらのOCR生体エネルギー反応のプロファイルは、細胞外フラックスバイオアナライザー13,14を使用してミトコンドリアストレスを評価するためのユーザーガイドと一致しています。
ConおよびEtOH処理されたMH-S細胞で基礎OCRを測定した後、グルタミナーゼ1の阻害剤である培地コントロールまたはBPTESの注射をロードしました。Con + mediaとCon + BPTES MH-S細胞、およびEtOH +mediaとEtOH + BPTES MH-S細胞では、OCR生体エネルギープロファイルに差は示されませんでした(図2A)。EtOH + BPTES MH-S細胞は、Con + BPTESと比較してグルタミン依存性基礎呼吸の減少を示しました( 図2A および 図2Bの測定値#3と比較した測定値#4)。EtOH + BPTES MH-S細胞は、Con + BPTESと比較して、グルタミン依存性-ATP結合ミトコンドリア呼吸の喪失を示しました(図2C)。EtOH + BPTES MH-S細胞は、Con + BPTESと比較してグルタミン依存性最大呼吸の鈍的損失を示しましたが(図2D)、EtOH + BPTES MH-S細胞は、Con + BPTESと比較してグルタミン依存性予備呼吸能力の減少を示しました(図2E)。これらの結果は、EtOH MH-S細胞がFCCPでストレスを受けた場合と同様に、呼吸のためにグルタミンにより依存する能力を持っているが、グルタミン需要の増加がグルタミンバイオアベイラビリティの低下を上回っているため、それができない可能性があることを示唆しています。
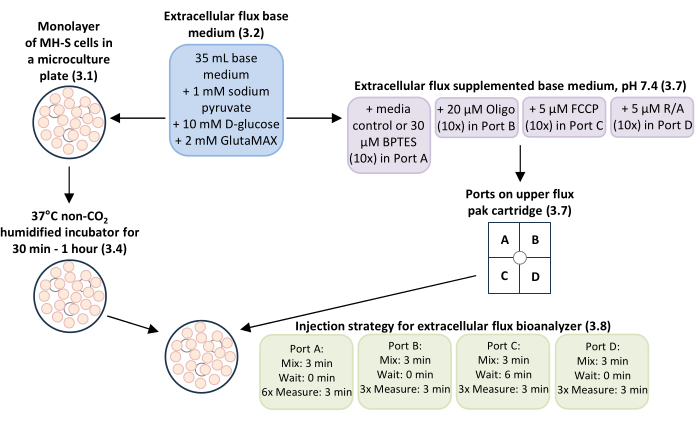
図1:マウス肺胞マクロファージ細胞株であるMH-S細胞におけるグルタミン依存性ミトコンドリア呼吸と生体エネルギー測定のワークフローの一般的な概要。 細胞外フラックスマイクロカルチャープレートウェルで培養したMH-S細胞の単層(ステップ3.1)を、サプリメントを添加した細胞外フラックスベース培地(ステップ3.2)とともに、非CO2 加湿インキュベーターで37°Cで30分間〜1時間インキュベートしました(ステップ3.4)。サプリメントを添加した細胞外フラックスベース培地(ステップ3.2)を培地コントロールとして使用し、グルタミン酸化阻害剤BPTESの使用濃度を最終濃度3 μMに、ミトコンドリア複合体V阻害剤オリゴマイシン(オリゴ)を最終濃度0.5 μMに、ミトコンドリアアンカプラーカルボニルシアン化物-p-トリフルオロメトキシフェニルヒドラゾン(FCCP)を最終濃度0.5 μMに希釈し、ミトコンドリア複合体Iおよび複合体III阻害剤ロテノン/アンチマイシンA(R / A)を0.5 μMに希釈しました上部細胞外フラックスパックカートリッジにポートA-Dをローディングするための最終濃度(ステップ3.7)。細胞外フラックスバイオアナライザーを使用した実験実行の混合、待機、および測定時間の注入戦略は、ポートA(培地制御またはBPTES)の3分間の混合時間、0分の待ち時間、および3分間の測定時間の6回の測定でした。ポートB(オリゴ)の3分間の混合時間、0分の待ち時間、および3分間の測定時間の3つの測定。ポートC(FCCP)の3分の混合時間、6分の待ち時間、および3分の測定時間の3回の測定。ポートD(R / A)の3分間の混合時間、0分の待ち時間、および3分間の測定時間の3つの測定。 この図の拡大版を表示するには、ここをクリックしてください。
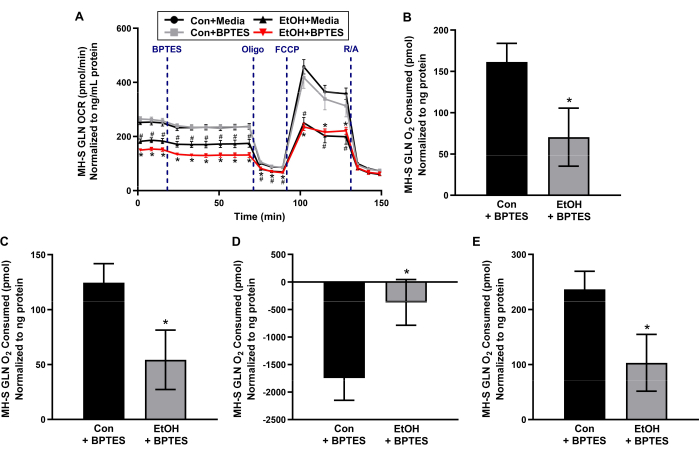
図2:慢性エタノール(EtOH)は、マウス肺胞マクロファージ細胞株であるMH-S細胞のグルタミン依存性ミトコンドリア呼吸を減少させます。 MH-S細胞を未処理(Con)またはEtOHで処理(0.08%、72時間)し、経時的な酸素消費率(OCR)を細胞外フラックスバイオアナライザーを使用して測定しました 培地コントロールまたはグルタミン(GLN)酸化阻害剤(3μMのBPTES)を注射した後、ミトコンドリア複合体V阻害剤(0.5μMのオリゴマイシン、 オリゴ)、ミトコンドリアアンカプラー(0.5 μMのカルボニルシアン化物-p-トリフルオロメトキシフェニルヒドラゾン、FCCP)、およびミトコンドリア複合体Iおよび複合体III阻害剤(0.5 μMのロテノン/0.5 μMのアンチマイシンA、R / A)。(A)OCR生体エネルギープロファイルを使用して、グルタミン依存性、(B)基礎呼吸、(C)ATP関連呼吸、(D)最大呼吸、および(E)予備呼吸能力を計算しました。線形点は SEM ±平均を表します (n = 4、 #p < 0.05 対 Con + media、*p < 0.05 対 Con + BPTES、テューキーのポストホックによる一元配置 ANOVA)。バーは平均±SEMを表します(n = 4、*p < 0.05対Con + BPTES、スチューデントの t検定)。提示されているデータは、未処理の対照および慢性のEtOH曝露MH-S細胞の培地対照およびBPTES処理実験群の追加の生物学的複製であり、これらはCrottyら11に掲載されています。 この図の拡大版を表示するには、ここをクリックしてください。
ディスカッション
本明細書に提示するデータは、培地コントロールまたはBPTESで処理された未処理および慢性のEtOH曝露MH−S細胞に対する追加の生物学的複製であり、これはCrottyら11に掲載される。記載されているプロトコルは、細胞外フラックスバイオアナライザーを使用して、ミトコンドリア呼吸および生体エネルギー学の燃料源としてのグルタミンに対するEtOH曝露MH-S細胞の依存性を評価するために使用されます。プロトコルにはいくつかの重要なステップがあります。まず、MH-S細胞の形成と密度が重要です。MH-S細胞は、最初に低密度の細胞外フラックスマイクロカルチャーウェルで培養され、最終密度が90%の単層にある細胞で使用されます。MH-S細胞のEtOH曝露は72時間であったため、細胞外フラックスバイオアナライザーでの実験実行前に90%の最終的なコンフルエンシーが達成されました。これは、これらの実験を実行する前の細胞単層形成および90%〜100%のコンフルエンシーに関する他の報告と一致している15,16,17。次に、各サンプルのミトコンドリア呼吸値をタンパク質に正規化することが重要です。いくつかの研究では、ミトコンドリアの生体エネルギー学を細胞番号18,19,20に正常化しています。しかし、このアッセイのシリアルインジェクション戦略は、ミトコンドリアに逐次的にストレスを与えることを目的としています。AMなど、主に酸化的リン酸化に依存する細胞では、細胞外フラックスバイオアナライザーでの実験中に細胞死につながる可能性があります。したがって、細胞数は実験の開始から実験の実行終了まで一貫していない可能性があり、ミトコンドリア呼吸値のタンパク質への正常化が最適である21,22。ここでは、より正確な細胞特異的OCRプロファイルを報告するために、すべてのウェルで平均タンパク質を使用したタンパク質標準化因子が提案されています。第三に、生物学的複製全体の結果の解析が重要です。時々、ミトコンドリアの生体エネルギープロファイルの代表的な画像が、複数の生物学的複製10,11,24にわたる平均ミトコンドリア呼吸ではなく、22,23提示される。ただし、これらの代表的な画像では、実験間の変動の全体像は示されていません。各生物学的複製を個別に計算することにより、平均の標準誤差は、すべての生物学的複製にわたる平均ミトコンドリア呼吸値の変動を示し、ミトコンドリアの生体エネルギープロファイル間の統計的差を計算するために使用できます。
細胞外フラックスバイオアナライザーでアッセイを実行する前に、各ウェルで細胞の単層を達成するために、細胞外フラックスマイクロカルチャープレートで培養するためのMH-S細胞の最適な細胞密度を決定する必要がありました。MH-S細胞のオリゴとFCCPの適切な濃度を確立する必要もあったため、オリゴとFCCPの段階希釈によるさまざまなMH-S細胞密度の試験が実施されました21,25。10,000〜15,000個のMH-S細胞の初期培養により、EtOH10の有無にかかわらず72時間の曝露後に90%の密度で細胞の単層が得られました。これらの最適化実験に基づいて、2 μM のオリゴと 0.5 μM の FCCP が、ミトコンドリア呼吸の変化を引き起こすこれらの試薬の最小濃度であると決定されました10。
ベースライン時およびBPTESによる治療後のミトコンドリア呼吸のリアルタイム測定、グルタミンの酵素的グルタミン酸への変換を防ぐグルタミナーゼ1の阻害剤は、ConおよびEtOHに曝露されたMH-S細胞における基礎呼吸のグルタミン依存性を決定するために使用されます。この研究で提示されたデータの限界は、EtOHに曝露されたMH-S細胞のグルタミンに加えて、ミトコンドリア呼吸および生体エネルギー学の燃料源としての短鎖および中鎖脂肪酸の役割が調査されていないことです。Crottyらによる以前の研究の結果11 は、EtOH MH-S細胞がピルビン酸依存性呼吸からグルタミン依存性呼吸へのシフトを示し、ミトコンドリア全呼吸の喪失を完全に補償しないことを示唆しました。さらに、UK5099(ピルビン酸酸化阻害剤)とエトモキシル(長鎖脂肪酸酸化阻害剤)の併用注射で同じ実験を行うことにより、ピルビン酸と脂肪酸の両方がミトコンドリア呼吸の燃料源として存在しない場合のグルタミンの寄与を、EtOHに曝露されたMH-S細胞で決定することができました。
ミトコンドリア呼吸は、ほぼ70年間、クラーク電極を用いて測定されてきた26、また、ミトコンドリア呼吸を測定するためのプレートベースの蛍光アッセイも存在する27。しかし、これらの方法は、細胞外フラックスバイオアナライザーで達成できる測定の感度が不足しているため、大幅に時間がかかり、および/または測定の感度が不足しています。細胞外フラックスバイオアナライザーを使用して、ミトコンドリア呼吸と生体エネルギー学の燃料源としてのグルタミンを評価する利点は、複数の生物学的複製を用いた実験を同時に実施できることです。さらに、細胞外フラックスバイオアナライザーは、単離されたミトコンドリアまたは無傷の細胞で実験する柔軟性を可能にします。肺動脈平滑筋細胞など、ミトコンドリアの濃度が高くない細胞の場合、限られたサンプルから十分なミトコンドリアを分離することは困難です。細胞外フラックスバイオアナライザーを使用すると、無傷の肺動脈平滑筋細胞28または初代マウスAMs10,11でミトコンドリア呼吸を測定することができます。この研究で利用されたプロトコルは、ミトコンドリア呼吸の燃料源としてのグルタミンや、主要なヒトAMなど、サンプルサイズが限られている他のサンプルの生体エネルギーを評価するために使用できます。我々は以前に、MH-S細胞におけるEtOH誘導性ミトコンドリア由来の酸化ストレスおよび混乱が、初代マウスAMおよびヒトAMにおいて同様のミトコンドリア調節不全のプロファイルを示すことを示しました6,7,11,28,29,30。全体として、ミトコンドリア由来の酸化ストレスを特徴とする病的状態のAMにおけるミトコンドリア呼吸およびAMの生体エネルギー源としてグルタミンを評価するこの方法の使用を支持する研究が行われています。
開示事項
すべての著者は、報告するべき関連する金銭的利益相反を持っていません。
謝辞
私たちは、Sarah S. Chang, BSの、初期の細胞培養と実験のためのMH-S細胞の調製への貢献に感謝します。本研究は、NIAAA R01-AA026086 to SMY (ORCID: 0000-0001-9309-0233)、NIAAA F31-F31AA029938 to KMC、NIGMS T32-GM008602 to Randy Hall, Pharmacology and Chemical Biology, Emory Universityの支援を受けました。本報告書の内容は、退役軍人省または米国政府の見解を表すものではありません。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 15mLコニカルチューブ | VWRインターナショナル株式会社 | 21008-670 | ミトコンドリア関連試薬のストック濃度の調製に使用されます。 |
| 2-メルカプトエタノール | シグマ・アルドリッチ(株) | M6250 | MH-S細胞の培養に使用。 |
| セルスクレーパー | Dot Scientific, Inc. | 70-1180 | T-75フラスコからMH-S細胞を掻き取るために使用されます。 |
| Countess 3 FL Instrument: セルカウンター | フィッシャー・サイエンティフィック・カンパニー | AMQAF2000 | 実験のためにプレートするMH-S細胞の数を数えるために使用されます。 |
| D-グルコース | シグマ・アルドリッチ(株) | G8270 | 細胞外フラックスベース培地に使用されます。 |
| エタノール | フィッシャーサイエンティフィックカンパニー | 4355720 | MH-S細胞の実験的治療。 |
| ウシ胎児血清 | Sciencell Research Laboratories | 500 | MH-S細胞の培養に使用。 |
| ゲンタマイシン | シグマアルドリッチ(株) | G1397 | MH-S細胞の培養に使用。 |
| GlutaMAX | サーモフィッシャーサイエンティフィック | 35050061 | 細胞外フラックスベース培地に使用されます。 |
| GraphPad Prism 10.2.3 | GraphPadソフトウェア | N/A | 統計解析用ソフトウェア。購入後、https://www.graphpad.com/features でダウンロード可能。 |
| MH-S細胞 | American Type Culture Collection | CRL-2019 | マウス肺胞マクロファージ細胞株。 |
| 微量遠心チューブ | USAサイエンティフィック社 | 4036-3212 | ミトコンドリア関連試薬の使用濃度の調製に使用されます。 |
| Microsoft 365 Excel:データ | Microsoft | N / A | ソフトウェア。購入後、https://www.microsoft.com/en-us/microsoft-365/excel でダウンロード可能。 |
| ペニシリン/ストレプトマイシン | フィッシャー・サイエンティフィック・カンパニー | 15140122 | MH-S細胞の培養に使用されます。 |
| リン酸塩緩衝生理食塩水 | VWRインターナショナル株式会社 | 45000-446 | MH-S細胞の洗浄に使用されます。 |
| RPMI-1640 | VWRインターナショナル株式会社 | 45000-396 | MH-S細胞の培養に使用。 |
| Agilent Technologies, Inc. | アッセイ設計および分析用コンピュータソフトウェアプログラム | 該当なし | コンピュータはSeahorse XF Pro Analyzer機器に接続されています。ダウンロード可能 https://www.agilent.com/en/product/cell-analysis/real-time-cell-metabolic-analysis/xf-software/software-download-for-seahorse-wave-pro-software?productURL=https%3A%2F%2Fwww.agilent.com%2Fen%2Fproduct%2Fcell-analysis%2Freal-time-cell-metabolic-analysis%2Fxf-software%2Fseahorse-wave-pro-software-2007523。 |
| タツノオトシゴ XF ベースメディウム:細胞外フラックスベースメディウム、pH 7.4 | アジレント・テクノロジーズ | 103334-100 | ミトコンドリア関連試薬のストックおよび作業濃度の調製、および実験実行前のMH-S細胞の培養に使用されます。 |
| タツノオトシゴXFグルタミン酸化ストレステストキット | アジレント・テクノロジーズ社 | 103674-100 | ストック BPTES、オリゴマイシン、FCCP、およびロテノン/アンチマイシン A が含まれています。 |
| Seahorse XF Pro Analyzer:細胞外フラックスバイオアナライザー | Agilent Technologies, Inc. | N/A | 細胞外フラックスバイオアナライザー。 |
| Seahorse XFe96 FluxPak:96ウェル細胞外フラックスパックカートリッジ、96ウェル細胞外フラックスマイクロカルチャープレート、およびキャリブレーションソリューション | Agilent Technologies, Inc. | 102416-100 | 細胞外フラックスバイオアナライザーを使用したアッセイ用のMH-S細胞の調製に使用されます。 |
| 血清ピペット | サンタクルスバイオテクノロジー株式会社 | sc-550678 | MH-S細胞から培地を除去するために使用されます。 |
| 重曹 | Sigma Aldrich Co. | S6014 | MH-S細胞の培養に使用。 |
| ピルビン酸ナトリウム | シグマ・アルドリッチ(株) | P4562 | 細胞外フラックスベース培地に使用。 |
| T-75フラスコサンタ | クルスバイオテクノロジー社 | sc-200263 | MH-S細胞の培養に使用。 |
参考文献
- 2021 National Survey on Drug Use and Health (NSDUH). Table 5.6A - Alcohol Use Disorder in Past Year: Among People Aged 12 or Older; by Age Group and Demographic Characteristics, Numbers in Thousands, 2021. , Substance Abuse and Mental Health Services Administration (SAMHSA). At https://www.samhsa.gov/data/sites/default/files/reports/rpt39441/NSDUHDetailedTabs2021/NSDUHDetailedTabs2021/NSDUHDetTabsSect5pe2021.htm (2021).
- Everts, R. J., et al. Nosocomial pneumonia in adult general medical and surgical patients at Christchurch Hospital. N Z Med J. 113 (1111), 221-224 (2000).
- de Roux, A., et al. Impact of alcohol abuse in the etiology and severity of community-acquired pneumonia. Chest. 129 (5), 1219-1225 (2006).
- Moss, M. Epidemiology of sepsis: race, sex, and chronic alcohol abuse. Clin Infect Dis. 41 (Suppl 7), S490-S497 (2005).
- Fernandez-Sola, J., et al. High alcohol intake as a risk and prognostic factor for community-acquired pneumonia. Arch Intern Med. 155 (15), 1649-1654 (1995).
- Yeligar, S. M., Harris, F. L., Hart, C. M., Brown, L. A. Glutathione attenuates ethanol-induced alveolar macrophage oxidative stress and dysfunction by downregulating NADPH oxidases. Am J Physiol Lung Cell Mol Physiol. 306 (5), L429-L441 (2014).
- Yeligar, S. M., Mehta, A. J., Harris, F. L., Brown, L. A., Hart, C. M. Peroxisome proliferator-activated receptor gamma regulates chronic alcohol-induced alveolar macrophage dysfunction. Am J Respir Cell Mol Biol. 55 (1), 35-46 (2016).
- Liang, Y., Harris, F. L., Brown, L. A. Alcohol induced mitochondrial oxidative stress and alveolar macrophage dysfunction. Biomed Res Int. 2014, 371593(2014).
- Liang, Y., Harris, F. L., Jones, D. P., Brown, L. A. Alcohol induces mitochondrial redox imbalance in alveolar macrophages. Free Radic Biol Med. 65, 1427-1434 (2013).
- Morris, N. L., Harris, F. L., Brown, L. A. S., Yeligar, S. M. Alcohol induces mitochondrial derangements in alveolar macrophages by upregulating NADPH oxidase 4. Alcohol. 90, 27-38 (2021).
- Crotty, K. M., Kabir, S. A., Chang, S. S., Mehta, A. J., Yeligar, S. M. Pioglitazone reverses alcohol-induced alterations in alveolar macrophage mitochondrial phenotype. Alcohol Clin Exp Res (Hoboken). 48 (5), 810-826 (2024).
- Demine, S., Renard, P., Arnould, T. Mitochondrial uncoupling: A key controller of biological processes in physiology and diseases. Cells. 8 (8), 795(2019).
- Hill, B. G., et al. Integration of cellular bioenergetics with mitochondrial quality control and autophagy. Biol Chem. 393 (12), 1485-1512 (2012).
- Chacko, B. K., et al. The Bioenergetic Health Index: a new concept in mitochondrial translational research. Clin Sci (Lond). 127 (6), 367-373 (2014).
- Fan, Y., et al. Analyzing mitochondrial respiration of human induced pluripotent stem cell-derived myeloid progenitors using Seahorse technology. STAR Protoc. 4 (1), 102073(2023).
- Gu, X., Ma, Y., Liu, Y., Wan, Q. Measurement of mitochondrial respiration in adherent cells by Seahorse XF96 Cell Mito Stress Test. STAR Protoc. 2 (1), 100245(2021).
- Plitzko, B., Loesgen, S. Measurement of oxygen consumption rate (OCR) and extracellular acidification rate (ECAR) in culture cells for assessment of the energy metabolism. Bio Protoc. 8 (10), e2850(2018).
- Winnica, D., et al. Bioenergetic differences in the airway epithelium of lean versus obese asthmatics are driven by nitric oxide and reflected in circulating platelets. Antioxid Redox Signal. 31 (10), 673-686 (2019).
- Nickens, K. P., Wikstrom, J. D., Shirihai, O. S., Patierno, S. R., Ceryak, S. A bioenergetic profile of non-transformed fibroblasts uncovers a link between death-resistance and enhanced spare respiratory capacity. Mitochondrion. 13 (6), 662-667 (2013).
- Mdaki, K. S., Larsen, T. D., Weaver, L. J., Baack, M. L. Age related bioenergetics profiles in isolated rat cardiomyocytes using extracellular flux analyses. PLoS One. 11 (2), e0149002(2016).
- Dranka, B. P., et al. Assessing bioenergetic function in response to oxidative stress by metabolic profiling. Free Radic Biol Med. 51 (9), 1621-1635 (2011).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Tyrrell, D. J., Bharadwaj, M. S., Jorgensen, M. J., Register, T. C., Molina, A. J. Blood cell respirometry is associated with skeletal and cardiac muscle bioenergetics: Implications for a minimally invasive biomarker of mitochondrial health. Redox Biol. 10, 65-77 (2016).
- Shah-Simpson, S., Pereira, C. F., Dumoulin, P. C., Caradonna, K. L., Burleigh, B. A. Bioenergetic profiling of Trypanosoma cruzi life stages using Seahorse extracellular flux technology. Mol Biochem Parasitol. 208 (2), 91-95 (2016).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. 46, e2511(2010).
- Chance, B., Williams, G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem. 217 (1), 383-393 (1955).
- Gerencser, A. A., et al. Quantitative microplate-based respirometry with correction for oxygen diffusion. Anal Chem. 81 (16), 6868-6878 (2009).
- Yeligar, S. M., et al. PPARgamma regulates mitochondrial structure and function and human pulmonary artery smooth muscle cell proliferation. Am J Respir Cell Mol Biol. 58 (5), 648-657 (2018).
- Yeligar, S., Tsukamoto, H., Kalra, V. K. Ethanol-induced expression of ET-1 and ET-BR in liver sinusoidal endothelial cells and human endothelial cells involves hypoxia-inducible factor-1alpha and microrNA-199. J Immunol. 183 (8), 5232-5243 (2009).
- Yeligar, S. M., Harris, F. L., Brown, L. A. S., Hart, C. M. Pharmacological reversal of post-transcriptional alterations implicated in alcohol-induced alveolar macrophage dysfunction. Alcohol. 106, 30-43 (2023).
再版と許可
