このプロトコルは、高純度のヒト母乳からの細胞外小胞の効果的な単離を促進し、可能にするように設計されています。
この記事について
サマリー
要約
細胞外小胞 (EV) は、サイズが約 20-1000 nm のナノサイズの粒子であり、その治療の可能性が急速に注目を集めています。具体的には、ヒト母乳由来の細胞外小胞 (HBMDEV) は、主に未熟児に影響を与える腸疾患である壊死性腸炎の実験モデルで保護を与えることが示されており、その結果、死亡率は 50% にもなります。ただし、分画超遠心分離、サイズ排除クロマトグラフィーなどの従来の細胞外小胞単離技術は、時間がかかるか、特殊な機器を必要とし、どちらも臨床現場では実用的ではありません。したがって、患者への HBMDEV の迅速な反応性投与を可能にする簡単な単離方法が必要です。ここで提案されているのは、脂肪と細胞破片を除去するためのヒト母乳の遠心分離と、高収率で機能的な細胞外小胞を生成する残りのスキムミルクの迅速な限外ろ過の組み合わせです。この技術を使用すると、臨床現場での実用的な治療オプションとして HBMDEV を使用できるようになる可能性があります。
概要
細胞外小胞(EV)は、エンドソーム経路(微小胞体が原形質膜と融合し、細胞外空間への細胞貨物の放出を促進する場合)または原形質膜経路(すなわち、出芽)のいずれかを介して、サイズが約20〜1000 nmのユビキタスなナノ粒子です。EVには、脂質、タンパク質、核酸、さまざまな代謝産物、およびその供給源に応じてその他の内容物などの宿主細胞貨物が含まれています。さらに、EVは、細胞間コミュニケーション、血管新生、免疫抑制、腫瘍微小環境のリモデリング、がんの進行などにおいて重要です1,2,3,4。特に、母乳 (HBM) は EV が豊富で、授乳中の母親から簡単に入手できます5。最近、ヒト母乳由来EV(HBMDEV)が疾患治療の治療ベクターとして注目を集めています1,2。未熟児または低出生体重児は、壊死性腸炎を含むいくつかの感染症にかかりやすいです。回腸または結腸の壊死を特徴とする壊死性腸炎は、軽度の腸の炎症から多系統臓器不全まで多岐にわたり、乳児死亡率は 50% にも達します 6。母乳由来のEVによる前処理は、NECの実験モデルで腸の炎症から保護するのに十分です in vitro および in vivo 2,7。したがって、HBMDEV の利用は、臨床現場での NEC 治療のための実行可能な選択肢となる可能性があります。
HBMDEV の治療の可能性にもかかわらず、現在の分離技術を使用すると、時間がかかるか特殊な機器が必要であり、どちらも臨床現場で普遍的に実用的ではないという点で既知の限界があります。EV分離の「ゴールドスタンダード」には、数回の分画超遠心分離が含まれており、EVの満足のいく収率が得られますが、その構造的完全性と機能に影響を与える可能性があります8,9。さらに、超遠心分離時間は最低でも 2 時間であり、臨床現場ではコストのかかるリソースとなります9。アイソレーションキットは、時間の節約と費用対効果の両方が証明されています。ただし、このような方法を使用した分離では、歩留まりが低くなり、スケーラビリティが低下します。したがって、EVの歩留まりを犠牲にすることなく、時間を節約し、コスト効率の高いHBMDEV分離技術が必要です。
このプロトコルは、既存の臨床的に利用可能な FDA 承認ツールを使用して、HBM から EV を迅速に分離する段階的な方法の概要を説明することを目的としています。これを達成するために、標準的な遠心分離と臨床グレードのフィルター拡張システムを利用して、EVをHBMから分離しました。これらの小胞は予想されるサイズ範囲内にあり、既知のEVと一致する形態を示し、EVマーカーが豊富であり、従来の超遠心分離分離技術を使用して単離されたEVと機能的に類似しています。したがって、この HBM EV 分離プロトコルにより、臨床現場で HBM から分離された EV の実用的かつ迅速な分離と適用が可能になる可能性があります。
プロトコル
母乳はアラバマ大学バーミンガム校 (UAB) 地域集中治療室で採取されました。患者が使用するために母乳を解凍した後、収集したサンプルが収集されましたが、患者は授乳全体を摂取することができませんでした。これらの餌は通常廃棄されますが、研究目的で収集されました。サンプルは匿名化された個体から採取され、実験時まで-80°Cで保存されました。このコレクションは、UAB 内部審査委員会プロトコル N160203002によって承認されました。使用する試薬と機器は 、材料表に記載されています。
1.細胞外小胞単離(分画超遠心分離)
- バイオセーフティキャビネットで、15 mLのコニカルチューブ内の滅菌PBSで母乳を1:10に希釈します。
- 母乳を300 x g で4°Cで10分間遠心分離します。 遠心分離後、乳脂肪(最上層)、ホエイミルクまたはスキムミルク(中間水層)、細胞やその他の破片(下部でペレット状)の3つの異なる層があるはずです。バイオセーフティキャビネットでは、ペレットを乱さずに70μmのフィルター(脂肪の除去を容易にします)で乳脂肪とホエイの層をろ過します。フロースルーを新しいチューブに移します。
- サンプルを2600 x g で4°Cで10分間遠心分離します。 このステップでは、残留乳脂肪、細胞、破片が除去されます。バイオセーフティキャビネットで、上清を70μmフィルターでろ過します。上清を超遠心チューブに移します。超遠心分離の前に、チューブ内に少なくとも10 mLの液体があることを確認します。
- サンプルを20,000 x g で4°Cで45分間超遠心分離します。 超遠心分離後、ステップ1.2と同様の3つの層(乳脂肪、ホエイまたはスキムミルク、細胞およびその他の破片)が存在する場合があります。バイオセーフティキャビネットでは、ペレットを乱すことなく、乳脂肪とホエイの層を70μmのフィルターでろ過します。上清を15 mLのコニカルチューブに移します。
- バイオセーフティキャビネットでは、シリンジで0.22μmのフィルターで母乳をろ過します。上清を新しい超遠心チューブに移します。超遠心分離の前に、チューブ内に少なくとも10 mLの液体があることを確認します。
- サンプルを110,000 x g で4°Cで70分間超遠心分離します。 上清を吸引し、ペレットを10 mLの滅菌PBSに再懸濁します。
- サンプルを再び110,00 x g で4°Cで70分間超遠心分離します。
- バイオセーフティキャビネットで、ペレットを150〜200 μLの滅菌PBSに再懸濁します。
2.細胞外小胞単離(急速ろ過法)
- バイオセーフティキャビネットで、母乳を滅菌PBSで希釈(1:10)します。
- 母乳を300 x g で4°Cで10分間遠心分離します。 遠心分離後、乳脂肪(最上層)、ホエイミルクまたはスキムミルク(中間水層)、細胞およびその他の破片(下部にペレット状)の3つの異なる層があるはずです。バイオセーフティキャビネットでは、ペレットを乱さずに70μmのフィルター(脂肪の除去を容易にします)で乳脂肪とホエイの層をろ過します。フロースルーを新しいチューブに移します。
- サンプルを2600 x g で4°Cで10分間遠心分離します。 このステップでは、残留乳脂肪、細胞、破片が除去されます。バイオセーフティキャビネットでは、70μmフィルターで上清をろ過します。上清を15mLチューブに移します。
- バイオセーフティキャビネットで、0.22 μm、16インチのフィルターエクステンションセットを5.4 mL PBSでプライミングします。
- プライムシステムには、シリンジに5.4 mLの滅菌PBSを取り、PBSがチューブのもう一方の端からなくなるまでシステムを洗い流します。
- シリンジは、0.22 μm、16インチのフィルターエクステンションセットを通して母乳をろ過します。このステップでは、残留乳脂肪、細胞、破片が除去されます。
注:サンプル中に存在する破片の量に応じて、複数のフィルター拡張セットが必要になる場合があります。 - フロースルーを15 mLのコニカルチューブに集めます。
3. ナノサイトトラッキング解析
- サンプルを滅菌PBSで希釈(1:1000)します。ラピッドフィルター処理されたサンプルは、希釈せずに使用できます。
- サンプルを短時間渦状にします。1 mLのサンプルをツベルクリンシリンジにロードします。
- 注射器を注射装置に取り付け、注射器を固定します。
- インジェクションポンプを50に設定します。カメラの電源を入れて、表示されるパーティクルが多すぎたり少なすぎたりしないようにします。粒子の流れが一定で、サンプルの流れにスキップや突然のジャンプがないことを確認してください。
- インジェクションポンプを100に設定します。プロトコルを実行します。
メモ:ソフトウェアは、1分に1回、合計5回の読み取りが行われるように設定されています。 - サンプルを読んでください。
- PBSでサンプル間のナノサイトをフラッシュします。
注:ナノ粒子追跡分析システムを使用して、ミリリットルあたりの粒子サイズと粒子濃度を測定しました。超遠心分離サンプルの平均濃度は 3.30 e+08 +/- 4.08 e+06 粒子/mL でしたが、急速ろ過法は 5.50e+08 +/- 1.16e+08 粒子/mL でした。
4. 細胞外小胞の陰性染色と透過型電子顕微鏡
注:エクソソーム濃度が108 の範囲のサンプルを透過型電子顕微鏡(TEM)に使用しました。
- 放電装置を使用して、20 mAで25秒間のグロー放電フォームバー/カーボンフィルムコーティングメッシュ銅EMグリッド。
- 7 μLのEV懸濁液をグリッドにロードし、1分間インキュベートします。
- Whatmanろ紙で、グリッドの下から吸い上げて、サンプルをグリッドから遠ざけるのではなく、グリッドに向かって「引っ張る」ことで、余分なものを吸い取ります。
- ピペットでEMグリッドの表面に7 μLのろ過された1%酢酸ウラニル(UA)溶液でサンプルをすぐに染色します。
- 15秒後、グリッドの端をろ紙で接触させることにより、余分なUA溶液をグリッドから除去しました。80 kvのTEMですぐに(24時間以内に)サンプルを表示します。
5. タンパク質濃度
- アセトンは、250 μLの精製EV(1:4)を-20°Cで1時間沈殿させます。
注:超遠心分離法には100 μLの精製エクソソームを使用します。 - サンプルを16,000 x g で30分間遠心分離します。
- ペレットを自然乾燥させ、続いて100 μLのRIPAバッファーに再懸濁します。
- BCAタンパク質アッセイキットのプロトコルに従って、タンパク質濃度を測定します。吸光度は、マイクロプレートリーダーを使用して562 nmで測定されました。
注:通常、1 mLの母乳は、超遠心分離を使用して約1.3 μg / mLのタンパク質を生成し、急速ろ過を使用して約0.2〜1 μg / mLのタンパク質を生成します。
6.ウェスタンブロット
- 1容量のタンパク質サンプルを4容量のレーンマーカーでインキュベートし、サンプルバッファーを減らし、90°Cで7分間沸騰させます。
- 10 μgのタンパク質をSDS 10%ゲルに70 Vで15分間ロードして実行します。その後、電圧を100Vに上げ、さらに90分間運転します。
- セミドライ装置を使用して、ゲルをニトロセルロース膜に15Vで30分間移します。
- メンブレンをTBS-0.1%トゥイーン(TBS-T)でそれぞれ10分間3回洗浄します。
- 高速ブロッキング緩衝液(1倍に希釈)を使用してメンブレンを30分間ブロックします。
- 一次抗体(Hsp70-1:1000;CD63-1:1000およびCD9-1:1000)を1x緩衝液中で、ロッカー10、11、12上で4°Cで一晩。
- メンブレンをTBS-Tでそれぞれ10分間3回洗浄します。
- (H + L)HRP複合体抗マウス二次抗体を、TBS-T中の2%ミルクに1:1000の希釈で、2%ミルクに添加し、室温でロッカー上で2時間インキュベートします。
- メンブレンをTBS-Tでそれぞれ10分間3回洗浄します。
- ECL(1:1)を使用して現像し、現像液を使用してフィルムを撮影します。
7. IEC-6細胞のin vitro 培養
- 1.0 x 10⁶ 細胞をT-25フラスコに5mLの完全RPMI培地に播種します。細胞を一晩付着させます。
- 完全な培地を取り除き、1〜2 mLのPBSで洗浄します。
- PBSを吸引し、EVフリーの完全RPMIを5mL加えます。
- ウェルあたり400 μM H2O2 の最終濃度と10 μg/mLのEVを一晩細胞に同時に添加します。
- 培地を取り出し、1〜2 mLのPBSで細胞を洗浄します。
- PBSを吸引し、1mLのトリプシンを加えます。
- 細胞を37°Cのインキュベーターに5分間置きます。
- 完全なRPMIの2倍の量を追加することにより、トリプシンを不活性化します。細胞を15 mLチューブに移し、125 x g で5分間遠心分離します。
- 上清を吸引し、ペレットを1mLのPBSに再懸濁します。
- セルカウンターを使用して細胞をカウントします。
結果
超遠心分離と急速分離によるEVの分離
断固として、HBMからのEV単離には、乳脂肪やその他の大きな粒子を除去するための遠心分離、その後のろ過、数回の超遠心分離、およびPBS中のEV濃縮サンプルの再懸濁が含まれます。急速ろ過法では、遠心分離を利用して乳脂肪と細胞破片を除去し、その後、0.22 μmのフィルターエクステンションフィルター を介して 濾過し、さらに残留破片を除去し、従来の超遠心分離に匹敵するEV濃縮サンプルを生成します(図1)。
フィルターエクステンション急速ろ過システムからのHBMDEVの特性評価
ナノサイト追跡分析により、超遠心分離(図2A)と高速フィルター分離HBMDEV(図2B)の間で同等の粒子サイズが明らかになりました。どちらの方法も、単離されたEVの平均サイズが約100nmであることを示しています。EVは、宿主細胞からさまざまな標的に分泌するためのさまざまな貨物(タンパク質、脂質、miRNAなど)を運びます。したがって、最初に調べられた標的タンパク質は、EVを介して輸送されることが知られているタンパク質である熱ショックタンパク質70(Hsp70)13でした。ウェスタンブロット分析は、急速ろ過を使用して単離されたEVが、超遠心分離を使用して単離されたEVと同等のHsp70の発現を示したことを示しています(図3Aおよび補足図1A)。さらに、EVは、CD9やCD63などのテトラスパニンの表面発現によって同定できます14。ウェスタンブロット分析により、急速ろ過によって単離されたEVは、実際にCD9(図3Bおよび補足図2B)およびCD63(図3Cおよび補足図3C)を発現することが明らかになりました。最後に、透過型電子顕微鏡によるHBMDEVの形態学的分析により、2つの単離技術間で同様の小胞形態が明らかになりました(図4A-D)。
いくつかの研究室は、EVが細胞ストレス中の細胞生存を促進する保護特性を与えることを示しました2,3,7。以前に発表された報告と同様に、急速ろ過法を使用して単離されたEVは、腸上皮細胞(IEC-6)を過酸化水素誘発性細胞死から保護することができます2(図5A、B)。これらのデータは、急速ろ過法を使用して単離された HBMDEV が、分画超遠心分離を使用して単離された HBMDEV と同等の品質を有するだけでなく、機能的にも類似していることを示唆しています。
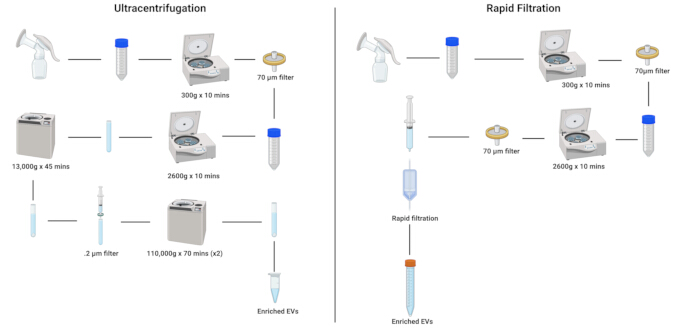
図1:ヒト母乳から分離したEVの超遠心分離法と急速ろ過法の違いを概略図で示した図。 この図の拡大版を表示するには、ここをクリックしてください。
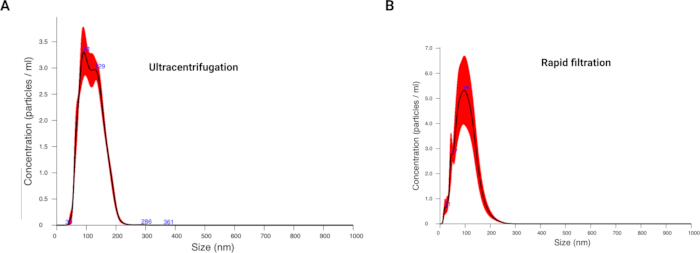
図2:超遠心分離および急速ろ過法を使用したヒト母乳から単離されたEVのナノサイトトラッキング分析。 (A)超遠心分離法を使用して単離されたヒト母乳EV(1x PBSで1:1000に希釈)のNTA。示されているデータは、3〜4件の独立した試験を1回表したものです。(B)急速ろ過を使用して単離されたヒト母乳EVのNTA。 示されているデータは、3〜4件の独立した試験を1回表したものです。 この図の拡大版を表示するには、ここをクリックしてください。
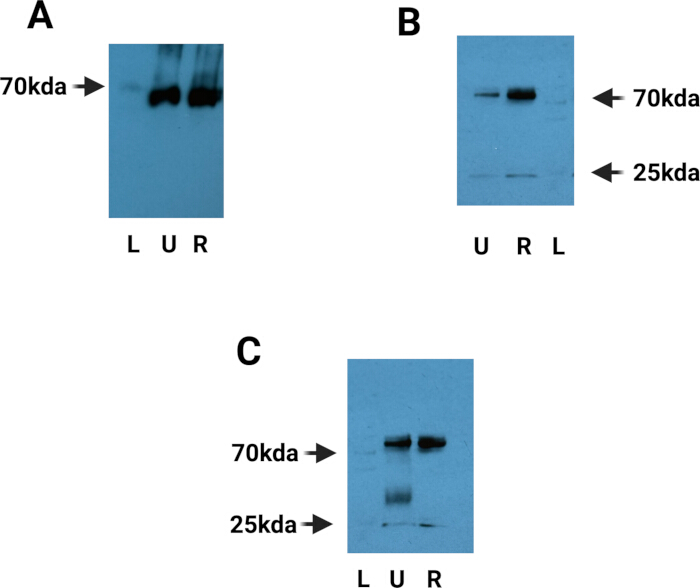
図3:超遠心分離と急速ろ過を使用して単離されたEVのウェスタンブロット分析。 (A)10μgの熱ショックタンパク質70(Hsp70)の1秒間曝露。「L」ははしご、「U」は超遠心分離、「R」は急速ろ過を表します。急速ろ過によって得られたサンプルは、110,000 × g で 70 分間遠心分離することによってさらに濃縮され、2 回実行されました。示されている画像は、4つの独立した試験のうちの1つを表しています。(B)10μgのCD9の22回目の曝露。「L」ははしご、「U」は超遠心分離、「R」は急速ろ過を表します。急速ろ過サンプルを110,000 × gで70分間遠心分離し、2回濃縮しました。示されている画像は、4つの独立した試験のうちの1つを表しています。(C)10μgのCD63の22秒間曝露。「L」ははしご、「U」は超遠心分離、「R」は急速ろ過を表します。急速ろ過サンプルを110,000 × gで70分間遠心分離し、2回濃縮しました。示されている画像は、4つの独立した試験のうちの1つを表しています。 この図の拡大版を表示するには、ここをクリックしてください。
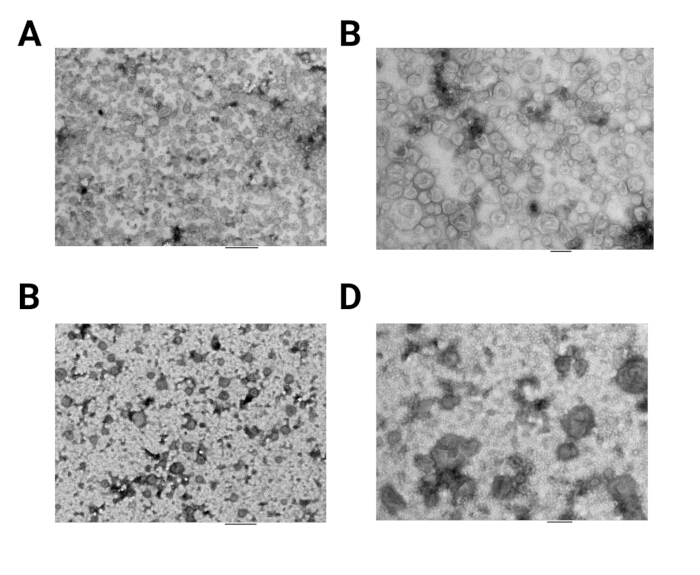
図4:超遠心分離と急速ろ過を使用して単離されたEVの透過型電子顕微鏡分析。 (A)8,000倍率の超遠心分離を使用して単離されたEVの電子顕微鏡写真×。スケールバー = 800 nm。示されている画像は、3つの独立した試験のうちの1つを表しています。(B)20,000×倍率の超遠心分離を使用して単離されたEVの電子顕微鏡写真。スケールバー = 200 nm。示されている画像は、3つの独立した試験のうちの1つを表しています。(C)8,000×倍率の急速ろ過を使用して単離されたEVの電子顕微鏡写真。スケールバー = 800 nm。EVを110,000 × g で70分間遠心分離し、2回濃縮しました。示されている画像は、3つの独立した試験のうちの1つを表しています。(D)20,000×倍率の急速ろ過を使用して単離されたEVの電子顕微鏡写真。スケールバー = 200 nm。EVは、110,000 × g で70分間遠心分離し、2回濃縮しました。示されている画像は、3つの独立した試験のうちの1つを表しています。 この図の拡大版を表示するには、ここをクリックしてください。
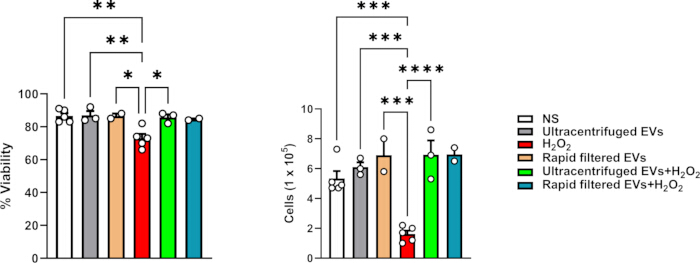
図5:超遠心分離と急速ろ過を使用して単離されたEVの機能分析。 (A)EVフリーの完全RPMI-1640培地で培養したIEC-6細胞の細胞生存率。細胞を400 μM H2O2 および10 μg/mLのEVで同時に一晩処理しました。示されているデータは、2つの独立した試験のうちの1つを表しています。(B)EVフリー完全RPMI-1640培地で培養したIEC-6細胞の細胞数。細胞を400 μM H2O2 および10 μg/mLのEVで同時に一晩処理しました。示されているデータは、2つの独立した試験のうちの1つを表しています。 この図の拡大版を表示するには、ここをクリックしてください。
補足図1:超遠心分離および急速ろ過を使用して単離されたEV中のHsp70のウェスタンブロット特性評価。 10μgの熱ショックタンパク質70(Hsp70)の1秒間曝露。「L」ははしご、「U」は超遠心分離、「R」は急速ろ過を表します。急速ろ過サンプルを110,000 × gで70分間遠心分離し、2回濃縮しました。各サンプルは、単一の生物学的複製を表します。 このファイルをダウンロードするには、ここをクリックしてください。
補足図2:超遠心分離および急速ろ過を使用して単離されたEVにおけるCD9のウェスタンブロット特性評価。 10 μg の CD9 を 5 分間露光します。「L」ははしご、「U」は超遠心分離、「R」は急速ろ過を表します。急速ろ過サンプルを110,000 × g で70分間遠心分離して濃縮し、2回行った。各サンプルは、単一の生物学的複製を表します。 このファイルをダウンロードするには、ここをクリックしてください。
補足図3:超遠心分離および急速ろ過を使用して単離されたEV中のCD63のウェスタンブロット特性評価。 10 μg の CD63 を 10 分間露光します。「L」ははしご、「U」は超遠心分離、「R」は急速ろ過を表します。急速ろ過サンプルを110,000 × g で70分間遠心分離して濃縮し、2回行った。各サンプルは、単一の生物学的複製を表します。 このファイルをダウンロードするには、ここをクリックしてください。
ディスカッション
EV は、さまざまな炎症メカニズムを調節し、保護効果をもたらす可能性があることが文献で示唆されているため、注目を集めています 2,7。ただし、臨床現場でのEVの実用化の限界は、EVを分離して十分な収量を抽出するのに必要な時間です8,15。ここでは、FDA 承認のろ過システムを使用して HBM から EV を迅速かつ効率的に分離するための段階的なプロトコルの概要が説明されています。この方法の有用性により、歩留まりを犠牲にすることなく、従来のEV絶縁方法を半分に削減できます。したがって、このプロトコルは、近い将来に EV 療法が承認された場合、臨床現場でのヒト母乳由来の EV の実用的な治療応用を可能にする可能性があります。
既存のEV分離プロトコルは、ソース流体からのEVの一貫した効果的な収量を実証しています。ただし、ゴールドスタンダード、分画超遠心分離、市販キットの使用など、従来の分離手段には限界がないわけではありません。分画超遠心分離によるEVの単離は効果的ではありますが、最低~3時間の複合スピン時間を含むプロトコルでは時間がかかります2,8,15。EV 数を適切に定量化するためのプロトコルと分離時間を組み合わせると、臨床現場での時間的制約の下での使用が困難になります。さらに、市販のキットは効果的ではありますが、高価です。さらに、これらのキットのコストが高いことを考えると、キットごとに処理できるサンプルの数は少ないです 8,15。
このプロトコルは、EV の歩留まりや純度を犠牲にすることなく時間とコストを節約する、これらの制限に対するソリューションを提供します。このプロトコルが効果的であるためには、プロトコルを実行する際に従わなければならない重要な手順があります。母乳サンプルから細胞外破片や乳脂肪を除去するには、母乳の希釈と初期遠心分離が必要です。この破片を除去することは、フィルター延長システムの目詰まりを防ぐために重要であり、1つのサンプルに複数のフィルターを使用する必要がなくなります。さらに、フィルター拡張システムをPBSでフラッシングすることは、サンプルの準備のためにフィルターをプライミングするため、重要です。プライミングは、プライミングプロセス中にサンプルが失われないようにするのに役立ちます。母乳サンプルの含有量によっては、ろ過前のサンプルの希釈と遠心分離に関係なく、複数のフィルターエクステンションセットが必要になる場合があることに注意してください。これが発生した場合は、複数のフィルターが使用される可能性があります。ただし、新しいフィルターエクステンションセットは、サンプルのろ過前にプライミングする必要があります。
このプロトコルは、ヒトの母乳からEVを分離するのに効果的かつ一貫性がありますが、考慮すべきいくつかの制限があります。サンプルをろ過する前の遠心分離ステップ(両方のスピン間の合計時間~20分)が必要です。遠心分離せずに希釈したサンプルをろ過しようとすると、フィルター延長システムの目詰まりが繰り返され、サンプルが失われ、EV分離プロトコルに時間がかかります。さらに、NTAおよびTEM分析によって証明されているように、サンプルは純粋ではありませんでした。ろ過前に遠心分離されていないサンプルを使用しようとすると、サンプルに不要な汚染物質が混入する可能性があり、分離されたEVの将来の下流への適用によっては、オフターゲット効果が生じる可能性があります。さらに、このプロトコルは、人間の母乳からの EV の分離に関してのみ実装されています。したがって、EV を他の液体から分離する際のこのプロトコルの有効性は調査されていません。すべての体液の水性を考えると、このプロトコルを使用して EV を他の供給源から分離した場合、EV の純度と収量に違いはないと予想されます。
また、このプロトコルは、小さな細胞外小胞(sEV)の単離に効率的であることにも注意する必要があります。NTAによると、HBM由来のEVのサイズは~100 nmであり、より大きなEVがサンプルに存在しなかったことを示唆しています。その理由は、主にエクソソームやその他の小さなEVの単離に使用される0.22μmのフィルターを使用してサンプルをろ過したためであり、この研究の時点で研究室の主な焦点でした。理論的には、より大きな孔径のフィルターを利用することで、より大きなEVを分離できる可能性があります。ただし、これらの質問は本研究の範囲を超えています。
ヒト母乳由来の EV は、臨床使用に容易にアクセスできる天然の治療源です。EV の作業を臨床現場に導入する際の制限の 1 つは、どの施設でも使用できる実用的な方法で EV を分離することです。このプロトコルは、その制限を克服するように設計されており、病院環境で簡単に適用でき、市販されている既存の病院グレードのFDA承認ろ過システムを使用して実装するか、標準の超遠心分離機よりもはるかに安く購入できます。この方法は費用対効果が高く、臨床現場ですでに使用されているろ過システムからEVが豊富で純粋なサンプルを生成します。
開示事項
著者は、この記事の研究、著者、および/または出版に関して潜在的な利益相反を宣言していません。
謝辞
画像と図は biorender.com を使用して生成されました。この出版物で報告された研究は、UAB High Resolution Imaging Facilityによってサポートされました。この研究は、NIH/NICHD 5R21HD104481 によってサポートされました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| (H+L)HRP共役アンチマウス | バイオ・ラッド | 1721011 | |
| (H+L)HRP共役反ウサギ | バイオ・ラッド | 1706515 | |
| 0.20シリンジフィルター | フィッシャーブランド | 09-719C | |
| 0.70 μmのセルストレーナー | コーニング | 431751 | |
| 150万人 トリスHCL | 社内制作 | ||
| 15 mLチューブ | ファルコン | 352096 | |
| 16インチフィルターエクステンションセット | B-ブラウン | FE2012F | |
| 1M トリスHCL | テクノヴァ | T1068 | |
| 1倍PBS | ギブコ | 10010-031 | |
| 50 mLチューブ | ファルコン | 353070 | |
| 5倍還元サンプルバッファ | サーモ・サイエンティフィック | 39000 | |
| アシルアミド | フィッシャー・サイエンティフc | BP1410-1 | |
| アンフォテリシンB | ギブコ | 15290-018 | |
| AMT NanoSprint43 Mark-II カメラ | AMT | ||
| アンチ・アンチ | ギブコ | 15240-062 | |
| アンチCD63 | ノヴスビオ | NBP2-32830 | |
| アンチCD9 | インビトロジェン | 10626D | |
| APS | サーモ・サイエンティフィック | 17874 | |
| BCAタンパク質アッセイキット | ピアース | 23227 | |
| ベックマン管 | ベックマンはcoulter | 344059 | |
| ブライトスター ECL ケミルミネッセンセント | アルカリ・サイエンティフィック | XR92 | |
| エクソソーム枯渇FBS | フィッシャー・サイエンティフィック | NC0464480 | |
| 高速ブロッキングバッファ | ピアース | 37575 | |
| 胎児用牛血清 | ライフ・テクノロジーズ | 10082147 | |
| HSP70 | インビトロジェン | MA3-006 | |
| ヒトインスリン | シグマ・オルドリッチ | I9278-5ML | |
| 過酸化水素 | フィッシャー・サイエンティフィック | H325-500 | |
| IEC-6 | ATCC | CRL-1592 | |
| JEOL 1400 フラッシュ・テム | JEOL USA Inc | ||
| レーンマーカー減少サンプルバッファー | サーモ・サイエンティフィック | 39000 | |
| 粉ミルク | バイオワールド | 30620074-1 | |
| ナノサイト NS 300 | マルバーン・インスツルメンツ社 | ||
| ニトロセルロース膜 | 生命技術 | 88018 | |
| PELCOイージーグロー放電装置 | テッド・ペラ | ||
| プロテアーゼ阻害剤ミニ錠剤 | ピアース | A32955 | |
| RIPAバッファ | ピアース | 89901 | |
| RPMI 1640 | フィッシャー・サイエンティフc | 11875119 | |
| SDS | フィッシャー・サイエンティフc | BP2436-200 | |
| T-25フラスコ | サーモ・サイエンティフィック | 156367 | |
| TBS | 社内制作 | ||
| テメッド | バイオ・ラッド | 161-0801 | |
| トリプシンEDTA | ギブソ | 25200-056 | |
| トゥイーン20 | サーモ・サイエンティフィック | J20605-AP |
参考文献
- Galley, J. D., Besner, G. E. The therapeutic potential of breast milk-derived extracellular vesicles. Nutrients. 12 (3), 745(2020).
- Martin, C., et al. Human breast milk-derived exosomes attenuate cell death in intestinal epithelial cells. Innate Immun. 24 (5), 278-284 (2018).
- Hock, A., et al. Breast milk-derived exosomes promote intestinal epithelial cell growth. J Pediatr Surg. 52 (5), 755-759 (2017).
- Alexander, M., et al. Exosome-delivered microRNAs modulate the inflammatory response to endotoxin. Nat Commun. 6, 7321(2015).
- Lasser, C., et al. Human saliva, plasma, and breast milk exosomes contain RNA: Uptake by macrophages. J Transl Med. 9, 9(2011).
- Chan, C. C., et al. Type I interferon sensing unlocks dormant adipocyte inflammatory potential. Nat Commun. 11 (1), 2745(2020).
- Miyake, H., et al. Human breast milk exosomes attenuate intestinal damage. Pediatr Surg Int. 36 (2), 155-163 (2020).
- Gao, J., et al. Recent developments in isolating methods for exosomes. Front Bioeng Biotechnol. 10, 1100892(2022).
- Patel, G. K., et al. Comparative analysis of exosome isolation methods using culture supernatant for optimum yield, purity and downstream applications. Sci Rep. 9 (1), 5335(2019).
- Gandhi, J., Naik, M. N., Mishra, D. K., Joseph, J. Proteomic profiling of Aspergillus flavus endophthalmitis-derived extracellular vesicles in an in vivo murine model. Med Mycol. 60 (9), myac064(2022).
- Palinski, W., et al. Lysosome purinergic receptor p2x4 regulates neoangiogenesis induced by microvesicles from sarcoma patients. Cell Death Dis. 12 (9), 797(2021).
- Tantengco, O. aG., Radnaa, E., Shahin, H., Kechichian, T., Menon, R. Cross talk: Trafficking and functional impact of maternal exosomes at the feto-maternal interface under normal and pathologic statesdagger. Biol Reprod. 105 (6), 15621576(2021).
- Caruso Bavisotto, C., et al. Exosomal hsp60: A potentially useful biomarker for diagnosis, assessing prognosis, and monitoring response to treatment. Expert Rev Mol Diagn. 17 (9), 815-822 (2017).
- Feng, X., et al. Latest trend of milk-derived exosomes: Cargos, functions, and applications. Front Nutr. 8, 747294(2021).
- Li, P., Kaslan, M., Lee, S. H., Yao, J., Gao, Z. Progress in exosome isolation techniques. Theranostics. 7 (3), 789-804 (2017).
再版と許可
