細胞株は、宿主細胞の外部で培養できない細胞内生物の研究に有用です。 ボルバキアに感染した系統は多くの発見を可能にしてきましたが、これらの系統内の不均一性は、実験結果にばらつきをもたらす可能性があります。 ボルバキアに感染したJW18細胞からシングルセルクローンと連続培養を作製するためのプロトコールを紹介します。
この記事について
サマリー
要約
細胞株は、生物学研究で広く使用されているモデルです。これらは、宿主生物の外部で効率的に増殖できない細胞内細菌の研究に特に有用です。 ボルバキアは、多くの無脊椎動物の細胞内共生生物であり、その昆虫宿主に強力な生殖および抗ウイルス効果を誘導します。 ボルバキアに感染した昆虫細胞は、 ボルバキア の表現型を研究するために広く使用されてきました。しかし、これらの細胞株は、多くの場合、実験的治療に対する表現型や反応が異なる可能性のある細胞の混合集団で構成されています。特に、 ボルバキア を有する細胞株は、ある継代から次の継代まで、増殖速度や ボルバキア 感染の有病率にばらつきがあることが報告されています。これを改善するために、 ボルバキアに感染した ショウジョウバエmelanogaster由来のJW18細胞株からモノクローナル細胞株を作製しました。これらのクローン株は異なる時点で確立され、異なる ボルバキア 感染状態を示しています。このばらつきは、親のJW18集団に適用される治療が、培養全体の生理機能に影響を与えるのではなく、亜集団の選択につながる可能性があることを示唆しています。ここでは、 ボルバキアに感染した昆虫細胞からシングルセルクローンと連続クローン培養を作製し、より制御された再現性のある実験を可能にするプロトコールを紹介します。
概要
ショウジョウバエのメラノガスター細胞は、遺伝学、疾患研究、およびハイスループット薬物スクリーニングのプラットフォームとして広く使用されています1。また、地球上で最も蔓延している細胞内微生物の1つであるボルバキアの研究にも役立ちます。ボルバキアは、昆虫種の40〜70%に見られるグラム陰性偏性細胞内細菌です2,3,4、母性に広がり、生殖操作を誘発します5,6,7,8。ボルバキアはまた、感染した宿主に抗ウイルス防御を提供することができ、9,10,11,12,13,14,15は、生殖操作とともに、蚊からヒトへのアルボウイルス感染を制御するために利用されている16,17。様々なシステムにおいて、ボルバキアはアポトーシスを制御し18、必須栄養素を供給し19、遺伝子およびタンパク質の発現を変化させることが示されている20,21,22,23,24,25。
ボルバキアを研究するためのモデルとして登場した細胞株は、その単純な生物学的特性、利便性、および大量に増殖する能力から明らかになりました。細胞株は、ボルバキアを新規宿主との共生に事前適応させ、ボルバキアが突然変異を蓄積できるようにするのに有用であることが証明されています27,28。これらは、抗ボルバキア化合物のスクリーニングに使用され、これはフィラリア疾患の治療29およびボルバキアと宿主の翻訳相互作用の研究30に役立つ可能性があります。ボルバキア共生29,30,31の研究には細胞株が不可欠ですが、ほとんどのボルバキア表現型の根底にあるメカニズムは不明のままです。このことは、細胞培養モデルシステムがまだ改善の余地があることを示唆しています。
ボルバキアに感染した昆虫細胞株は、昆虫の胚と幼虫に由来します。Aa23は、ネッタイシマカの胚に由来し、最初の安定したボルバキア感染系統32であり、その後、ボルバキア共生に関する多くの研究に使用された33,34,35。JW18細胞株は、D. melanogasterから生成された最初のボルバキア感染株の1つでした29,36。この系統は、wMelに感染したハエの1時間から15時間の胚に由来し、他のショウジョウバエ細胞株(1182-4HおよびS2R+37)のボルバキアの供給源としても機能しています。胚は多能性細胞の割合が高いため、プラスチックでの成長に適応することで、個々の細胞系統ごとに異なる新しい特性を獲得することができます。これは、これらの細胞で観察される細胞形態とボルバキア感染頻度の不均一性を説明するかもしれない29。
Aag2などの蚊細胞株に関する研究では、モノクローナル細胞株と親細胞株が細胞特性の変動により治療に対して異なる反応を示す可能性があることが示されているため、JW18培養内の細胞多様性は懸念を提起する38。その結果、混合細胞集団に治療を施すと、誤解を招く結果が生じる可能性があります。処理に対する均質な細胞集団の応答を研究するため(個々の細胞タイプによる選択ではない)、親のJW18細胞株からモノクローナル培養物を作製しました。これらの細胞からモノクローナル培養物を作製する試みはこれまで行われていませんでした。このプロトコールでは、親のJW18細胞株から単一細胞を単離し、その後、それらを維持してフラスコに移し、連続的なクローン培養を確立します。個々の系統の ボルバキア 感染状況を確認したところ、この重要な特徴が異なることが示されました。均質な細胞培養は、将来の実験の精度と再現性を確保するために重要です。
プロトコル
注:生細胞とその培地を扱うすべての作業は、汚染を避けるために生物学的安全キャビネットで行う必要があります。
1. 培地の準備
- Shield and Sang Insect培地に10%ウシ胎児血清(FBS)を添加して、新鮮な培地を調製します。
- 使用済みメディアとコンディショニングメディア
- 新鮮なShieldとSang Insect培地を添加し、10% FBSを添加した25 cm2 フラスコでJW18細胞を増殖させます(25°C)。 細胞がコンフルエントに達するまでインキュベートします(~1週間)。
- 細胞の増殖に使用した1週間前の使用済み細胞培養培地をろ過し、 ボルバキア、細胞残骸、およびその他の汚染物質を除去します:5 μmの滅菌フィルターを使用し、次に50 mLのシリンジに取り付けた0.2 μmの滅菌フィルターを使用します。
- 使用済み培地の20%を新鮮な培地に添加することにより、コンディショニング培地を調製します。1 つの 96 ウェルプレート (~30 mL) に十分なコンディショニング培地を準備します。血清ピペットを使用して、ろ過した使用済み培地6 mLを、10% FBSを添加した新鮮なShieldおよびSang Insect培地24 mLと混合します。
2. 96ウェルプレートの調製
- JW18細胞懸濁液の調製
- 細胞スクレーパーを使用して、1週間前のコンフルエントなフラスコから細胞を掻き取り、血清ピペットを使用して細胞を再懸濁します。
- ノイバウアーチャンバーを使用して細胞をカウントし、馴化培地で希釈して、最終濃度2 x 10³ 細胞/mLを達成します。
- プレートにコンディショニングメディウムを追加する
- 調製した馴化培地を試薬リザーバーに移します。
- マルチチャンネルピペットを使用して、96ウェルプレートの各ウェル(ウェルA1を除く)に100 μLのコンディショニング培地を加えます。
- 細胞懸濁液の段階希釈
- 200 μLの細胞懸濁液をウェルA1に加えます。
- シングルチャンネルピペットを使用して、100 μLをウェルA1からウェルB1に移し、 図1Aのように穏やかに混合します(気泡を避けます)。
- カラム1で段階希釈を繰り返し、最後のウェルから最後の100μLを廃棄します。
- プレート全体での希釈
- 1列目の各ウェルに100 μLのコンディショニング培地を加え、総容量を200 μLにします。
- マルチチャンネルピペットを使用して、100 μLを1列目から2列目に移します。やさしく混ぜます。
- プレート全体のすべての列(1〜12)についてこのプロセスを繰り返します(図1A)。
- 再懸濁後、最後のカラムから100 μLを廃棄します。この時点で、各ウェルには100μLの細胞懸濁液が含まれています。
- すべてのウェルに100 μLの培地を追加で追加し、各ウェルの最終容量を200 μLにします。
3. 単一細胞の同定
- プレートを覆い、パラフィルムで密封し、適切にラベルを付けます。
- プレートを顕微鏡で観察し、各ウェルに単一細胞がないか注意深くチェックします(図1B)。ウェルとエッジを徹底的にスキャンして、1つのセルのみが存在することを確認してください。
注:これは、プロトコルで最も重要なステップの1つです。 - シングルセルのウェル数を96ウェルプレートマップ(紙)に記録します。
注:単一細胞は、プレートの右側と下部のウェルに見つかる可能性が高くなります。 - 単一細胞が同定され、標識されたら、プレートを25°Cのインキュベーターに保管します。 細胞を2日ごとに監視します。
4. 細胞の維持・移設
- 細胞モニタリング
注:JW18細胞は通常、単一の細胞から分裂を開始するまでに3日かかり、クローン集団は異なる速度で増加する可能性があります(図2)。- 2〜3日ごとにウェルを監視して細菌汚染がないか確認し、培地が乾燥していないことを確認します。ウェルが乾燥しているように見える場合は、必要に応じて新しい培地を補充します。
- 細胞増殖
- 細胞が96ウェルプレートでコンフルエントに達したら、細胞を24ウェルプレートに移します(図1D)。
- その後、細胞を6ウェルプレートに移し、最後にフラスコに移します(図1E、F)。
注:この段階的な拡大により、連続クローン細胞株を確立する可能性が高まります。
- 細胞の凍結
- クローン培養が確立されたら、将来の使用のために細胞の一部を凍結します。
- 細胞スクレーパーを使用してフラスコから細胞を掻き取り、15 mLの遠心チューブに移します。250 x g で4°Cで5分間遠心分離します。
- 2倍凍結培地(シールドとサングインセクトメディウムに20%のFBSと10%のDMSOを補充)を準備します。
- 遠心分離後、上清の一部を廃棄し、最終的な所望の量の半分を残します。残りの上清に同量の2倍凍結培地を加え、ピペットを使用してペレットを穏やかに再懸濁します。
- 懸濁液1 mLを各1.5 mLクライオバイアルに分注し、バイアルを氷上に置きます。バイアルを-80°Cで一晩保存し、翌日液体窒素タンクに移して長期保存します。
- クローン培養が確立されたら、将来の使用のために細胞の一部を凍結します。
5. ボルバキア の状態を確認するためのPCR
- モノクローナル培養サンプルからフェノール-クロロホルム法39を用いてDNAを抽出する。
- コンフルエントに掻き取り再懸濁した細胞1 mLを培地に入れ、1.5 mLの微量遠心チューブに入れ、細胞を290 x g で4°Cで5分間遠心分離します。 上清(細胞培養液)を捨て、チューブを氷の上に置きます。
- 0.1 M Tris HCl(pH 9.0)、0.1 M EDTA、および1% SDSからなる溶液Aを250 μL加えます。細胞を再懸濁し、70°Cで30分間加熱ブロック内でインキュベートします。
- インキュベーション後、8 M酢酸カリウム35 μLを加え、チューブを静かに振って(ボルテックスを避け)、氷上でさらに30分間インキュベートします。
- 13,000 rpmで4°Cで15分間遠心し、上清を新しいチューブに移し、等量のフェノール-クロロホルムを加えます。よく振って再度回転させ、この手順を一度繰り返します。
- 上清を新しいチューブに移し、150 μLのイソプロパノールを加えて振とうし、10,000 rpmで5分間回転させます。上清を慎重に取り除き、ペレットを70%エタノール1mLで洗浄し、13,000rpmで回転させます。
- ペレットを室温で10分間乾燥させた後、100 μLのTEバッファーに再懸濁します。DNAを定量し、-20°Cで保存します。
- モノクローナル培養サンプルから抽出したDNAを用いて従来のPCRを行い、DreamTaq Green PCRマスターミックスを用いてボルバキアを検出します。ボルバキアにはwsp 81Fおよびwsp 691Rプライマー40を使用し、DNA品質管理にはショウジョウバエrpl32プライマー41を使用してください。
- 7.5 μLのマスターミックス、各プライマー0.5 μL、10 μM、1:50に希釈したDNA1 μL、および5.5 μLの分子グレードの水を加えて、15 μLの反応混合物を得ます。
- 次のPCRプログラムを使用します:94°Cで4分間、30サイクルx(94°Cで40秒、55°Cで40秒、72°Cで30秒)、72°Cで10分間。PCR後、サンプルを4°Cで保存します。
- 得られたPCR産物を用いて、TAEバッファー中の2%アガロースゲルで90Vのアガロースゲル電気泳動を行い、バンドを可視化します。DNAラダーを横に追加して、 wsp (632 bp)と rpl32 (194 bp)のバンドを特定します。
6. 細胞株における ボルバキア 感染を可視化するためのFISH染色
- 接着細胞のStellaris FISHプロトコルに記載されているように、蛍光 in situ ハイブリダイゼーション(FISH)を実施し、Quasar 670タグ付き16s rRNA FISHプローブセットで ボルバキア を染色します。Hoechst 33342で核酸を染色します。
注:このプローブセットは、wMel 16S rDNA配列に基づいて設計されており、Schneider et al.42(補足表S1を参照)で発表されたプローブセットと一致します。- 試薬(固定緩衝液、ハイブリダイゼーション緩衝液、洗浄緩衝液AおよびB、再構成カスタムプローブセット)を製造元の指示に従って調製します43。
- 70%エタノール滅菌した18 mm丸型カバーガラスの24ウェル培養プレートで接着細胞を増殖させます。細胞が目的のコンフルエントに達したら、増殖培地を吸引し、1x PBS1 mLで洗浄します。1 mLの固定緩衝液を加え、室温で10分間インキュベートします。1x PBSの1mLで細胞を2回洗浄します。
- カバーガラスを細胞とともに1mLの70%エタノールに浸して透過処理し、4°Cで一晩インキュベートします。ハイブリダイゼーションの前に、サンプルをこの温度で最大1週間エタノールで保存します。エタノールを吸引し、1 mLのWash Buffer Aを加えます。室温で2〜5分間インキュベートします。
- 150mmの培養皿に水で飽和したペーパータオルとパラフィルムの層を置いて、加湿チャンバーを準備します。1 μL の 12.5 μM プローブストックを含む 100 μL のハイブリダイゼーションバッファーを Parafilm にピペットで移します。カバーガラスを静かに反転させ、細胞を下にしてハイブリダイゼーションバッファーの滴下に置きます。チャンバーをParafilmで覆って密封し、37°Cの暗所で少なくとも4時間(必要に応じて最大16時間)インキュベートします。
- ハイブリダイゼーション後、カバーガラス細胞を上にして、1 mLのWash Buffer Aを含む新鮮なウェルに慎重に移し、37°Cで30分間インキュベートします。バッファーを吸引し、0.5 μL の 20 mM Hoechst ストックを 700 μL の Wash Buffer A に加えます。暗所で37°Cで30分間インキュベートします。
- Hoechst溶液を取り出し、1 mLのWash Buffer Bを加えます。室温で2〜5分間インキュベートします。最後に、顕微鏡スライド上に少量の液滴(10 μL)を封入剤を置き、カバーガラスセルを下にして液滴にマウントします。余分な封入用剤をやさしく吸い取り、透明なマニキュアでカバーガラスの周囲を密封します。
- スライドを4°Cで保存し、できるだけ早くイメージングに進みます。
- ImageJ44 を使用して画像を処理します。必要に応じてチャンネルを分割し、カラーパレットを変更します。
結果
モノクローナル培養物の樹立過程を光学顕微鏡で可視化し、シングルセル懸濁液とプレーティングを調製した日(0日目)から連続細胞株の樹立(45日目または77日目、 図2)までを可視化しました。細胞分裂の最初の兆候は、ウェルごとにすでに4つの細胞が存在する3日目(0日目にプレーティングが行われたので、プレーティングの4日後)に観察されました(図2)。14日目に、クローンは単層(JW18-B9、C7、およびE5)または球体(JW18-G4)として成長し、通過中に破壊されました。28日目には、細胞株間の増殖の違いが最も明白でした。JW18-C7の培養は45日目にコンフルエントでしたが、残りのクローン培養は77日目にのみ確立されました。また、細胞形態の違いを捉えるために、樹立後30継代の4つの異なる培養物を視覚化しました(図3)。
モノクローナル培養物の ボルバキア 感染状態を調べるために、PCR(図4)とFISH(図5)を実施しました。その結果、1つのクローン(JW18-C7)を除くすべてのクローンが wsp 遺伝子のバンドを産生し、 ボルバキア 感染を示していることが観察されました。FISHはPCR結果を裏付けました:クローンJW18-B9、JW18-E5、およびJW18-G4は ボルバキア 感染を保持しましたが、クローンJW18-C7は ボルバキアを持っていませんでした。全体として、混合JW18細胞集団から、4つのクローン培養を確立することができ、そのうち3つは元の ボルバキア 感染を保持していました。生データにはFigshareでアクセスできます:https://figshare.com/s/15fde47ca7338f31dda9。
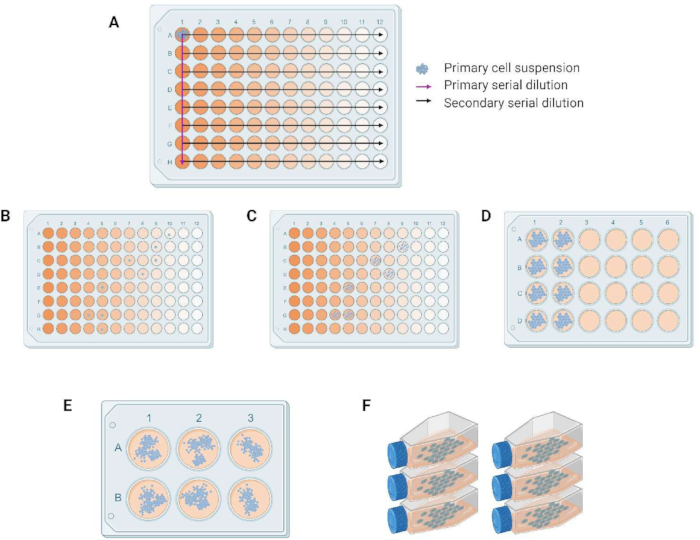
図1:モノクローナル培養作製のためのワークフロー (A)96ウェルプレート中の一次希釈液および二次希釈液。(B)単細胞は、段階希釈後。(C-E)細胞の増殖の進行と、それぞれ96ウェルプレートから24ウェルプレートおよび6ウェルプレートへの移し替え。(F)25 cm2 細胞培養フラスコでの連続培養。 この図の拡大版を表示するには、ここをクリックしてください。
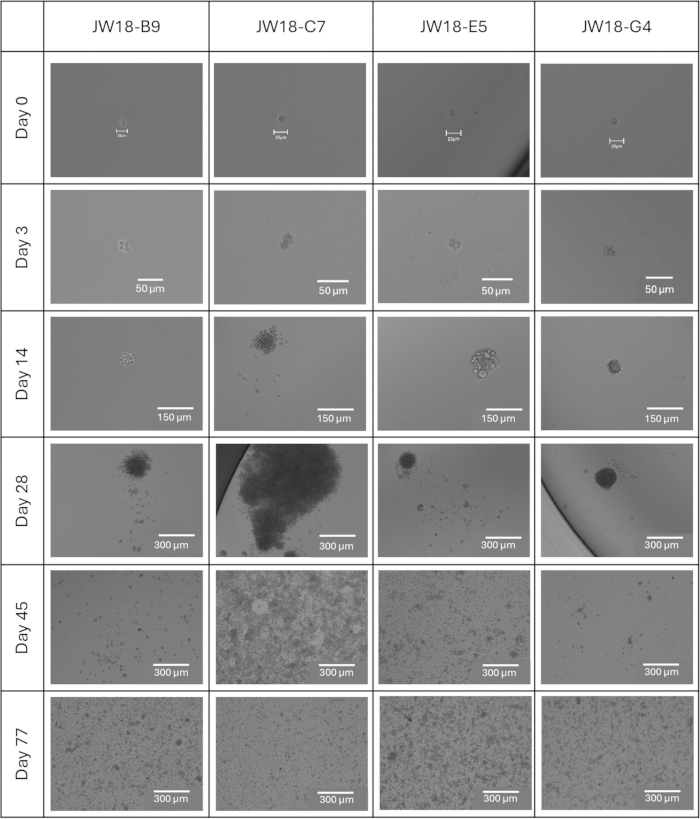
図2:JW18クローン株の単一細胞培養から多細胞培養への進行。0日目(プレーティングの日)から77日目までのクローンラインの明視野画像で、すべてのラインが25cm2細胞培養フラスコで成功裏に確立されました。スケールバー = 25 μm (0 日目)、50 μm (3 日目)、150 μm (14 日目)、300 μm (28、45、77 日目)。この図の拡大版を表示するには、ここをクリックしてください。
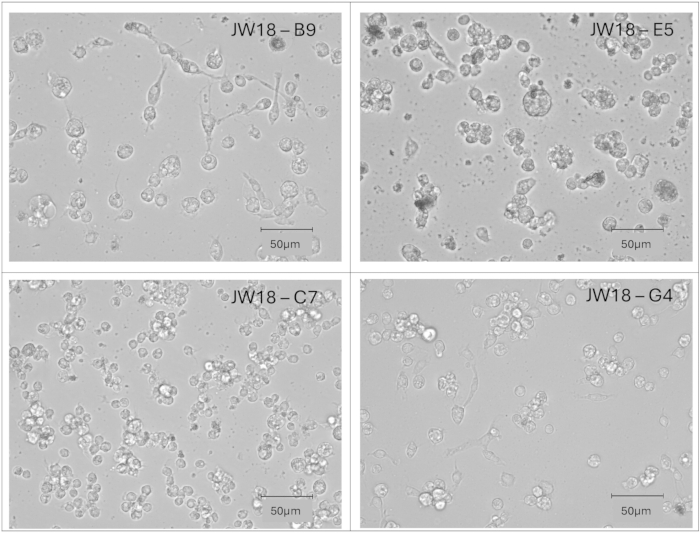
図3:個々のJW18クローン系統の形態。 確立後30の継代における細胞形態を示すクローン線の明視野画像。スケールバー = 50 μm. この図の拡大版を表示するには、ここをクリックしてください。
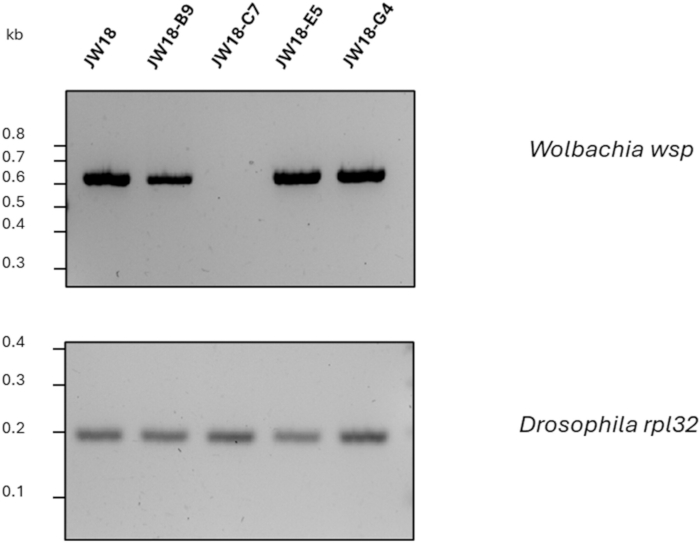
図4:PCRで調べたクローン培養物のボルバキアの状態。JW18親細胞株およびクローン株JW18-B9、JW18-C7、JW18-E5、およびJW18-G4におけるボルバキアのPCR(確立後11継代時)。Wolbachiawsp バンドはボルバキアの存在を確認し、Drosophilarpl32 バンドは DNA 品質管理 PCR です。この図の拡大版を表示するには、ここをクリックしてください。
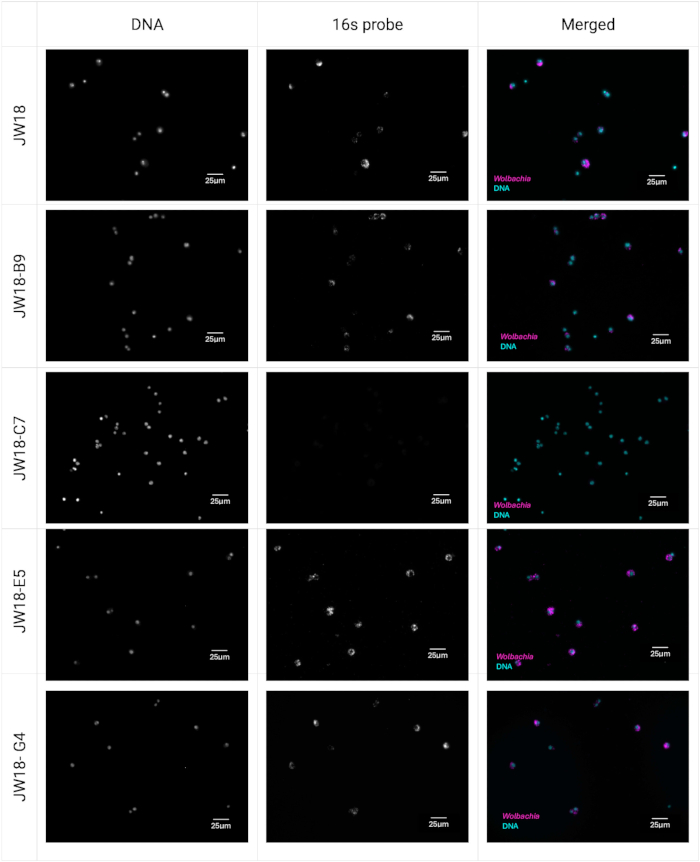
図5:FISHが調査したクローン培養物の ボルバキアの状態。JW18親細胞株およびクローンJW18-B9、JW18-C7、JW18-E5、JW18-G4を、確立後13の継代でFISH染色により可視化。ボルバキアは、マゼンタにセットされたQuasar 670タグ付き16s rRNA Stellaris FISHプローブで染色され、核酸はシアン中のHoechst 33342で染色されます。スケールバー = 25 μm. この図の拡大版を表示するには、ここをクリックしてください。
補足表S1:ボルバキアw Mel 16S rDNAに対して設計されたオリゴヌクレオチドプローブと、Schneiderらによって発表されたプローブとの比較。42. この表をダウンロードするには、ここをクリックしてください。
ディスカッション
ここでは、JW18 D.melanogaster細胞株からシングルセルクローンを作製するための標準化された方法の概要を説明します。これは、他のショウジョウバエや昆虫の細胞株にも適用できます。このプロトコールでは、調製した細胞懸濁液を96ウェルプレート上で段階希釈し、個々の細胞を単離します。次に、これらの細胞を最適な条件下でインキュベートして、連続培養を確立します。このプロトコルには、細胞の生存と単一細胞分裂を促進するための20%のコンディショニング培地の添加も含まれています45,46。
プロトコールの重要なステップは、段階希釈後の各ウェルに1つの細胞が存在することを確認することです。このステップは、プロトコル全体の成功に不可欠であるため、細心の注意を払う必要があります。シングルセルの起源を将来確認するために、選択したウェルの画像をさまざまな角度からキャプチャすることをお勧めします。
もう一つの重要なステップは、培養皿間での細胞の移設です。連続培養の確立を成功させるためには、細胞がコンフルエンスに達した後にのみ細胞を移す必要があります。細胞増殖が2週間以上停滞する場合は、培地をリフレッシュすることでさらなる増殖を促進することができます。コンフルエントになる前の細胞の早期移行は、細胞死につながる可能性があります。
このプロトコールは、蛍光活性化セルソーティング(FACS)38,46のような他の一般的に使用される方法よりも時間と労力がかかるが、いくつかの利点がある。これには、費用対効果、細胞損傷のリスクの最小化、蛍光マーカーの必要性、高価な機器、最適化時間などが含まれます。全体として、このプロトコールは、連続した細胞株から均質な昆虫細胞集団を生成するのに適しています。
モノクローナル培養物の性質
その結果、モノクローナル培養物は、その定着速度と ボルバキア の感染状況が異なることがわかりました(図2、 図4、 図5)。 ボルバキアフリークローンJW18-C7は、当社のシングルセル単離プロトコルでコンフルエンスに到達した最速のクローンでした。 ボルバキア は、この細胞系譜に常に存在していなかったか、宿主細胞の分裂速度に追いつかなかったために失われた可能性があります。また、クローニングプロトコルの初期の細胞密度が低かったために失われた可能性もあります。しかし、他のクローン細胞株ではこれが起こらなかったため、その可能性は低いと考えています。JW18-C7を ボルバキア に実験的に感染させた(他のテトラサイクリン処理クローンと併せて)ことで、この系統が共生生物に寛容であるかどうかの答えが得られる可能性があります。
細胞の不均一性はJW18細胞株に特有のものではなく、他のボルバキア感染細胞株32、47、48、49、50、51、52について以前に報告されています。その改善のための以前の試みは、D. simulansの卵またはAa23細胞からC7-10 A. albopictus細胞株53へのボルバキアの移行を含んでいた。C7-10はボルバキアの転移54,55の何年も前にクローン化されており、この転移は我々が研究しようとしている自然感染を構成するものではない。
個々のJW18クローンの ボルバキア 感染状態とモノクローナル培養確立時間の違い(細胞分裂速度の違いを示す)は、ボル バキア の力価と特定の治療に応答した昆虫細胞の増殖速度を関連付ける以前の研究に大きな影響を与える可能性があります。細胞数、共生生物密度の変化、または治療時の遺伝子発現の変化は、混合集団内のすべての細胞の状態の変化ではなく、特定の特性を持つ細胞タイプの選択に起因する可能性があります。したがって、主要な特性にばらつきがある混合細胞集団に治療を投与すると、偏った再現性のない結果が得られる可能性があります。
開示事項
著者には、開示すべき利益相反はありません。
謝辞
JW18細胞株について、William Sullivan氏(カリフォルニア大学サンタクルーズ校、米国)、Laura Serbus氏(フロリダ国際大学、米国)、Luis Teixeira氏(Universidade Católica Portuguesa、リスボン、ポルトガル)に感謝します。私たちは、議定書に関する有益な提案をいただいたNidhi Krishna Shrivastava氏(Jagiellonian University, Cracow, Poland)に感謝します。原稿の校正をしてくださったYuliya Chykunova氏(Jagiellonian University, Cracow, Poland)に感謝します。
図 1 は BioRender を使用して作成されました (Chrostek, E. (2024) https://BioRender.com/o69b306)。
この研究は、ECに授与されたERC Starting Grant(Grant Agreement ID:101040311)と、NFに授与されたDoctoral School of Exact and Natural Sciences(Jagiellonian University)の博士フェローシップによってサポートされています。ただし、表明された見解や意見は著者のものであり、必ずしも欧州連合または欧州研究会議事務局の見解や意見を反映するものではありません。欧州連合も付与機関も、それらに対して責任を負うことはできません。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.22 & マイクロ;Mシリンジフリッター  | TPPの | 99722 | 不妊 |
| 10x リン酸緩衝生理食塩水 (PBS) | サーモフィッシャーサイエンティフィック | 70011044 | 不妊 |
| 12mmまたは18mmの丸型カバーガラス | どのブランドでも | ||
| 15 mL Falcon チューブ | ジェノプラスト | 601052 | 不妊 |
| 24ウェルプレート | サイトワン | CC7682-7524 | 組織培養処理 |
| 5 & マイクロ;Mシリンジフィルター | ワットマン | 10462000 | 不妊 |
| 6ウェルプレート | サイトワン | CC7682-7506 | 組織培養処理 |
| 96ウェルプレート | サイトワン | CC7682-7596 | 組織培養処理 |
| アガロース | サーモフィッシャーサイエンティフィック | J66501.30 | |
| 細胞培養フラスコ、25 cm2 | グライナーバイオワン | 391-3103 | 不妊 |
| セルスクレーパー | グライナーバイオワン | 391-3010 | 不妊 |
| クリアマニキュア | どのブランドでも | ||
| CryoPure バイアル | ザルシュテット | 72.379 | 不妊 |
| DMSO, 細胞培養グレード | メルク | D2650-100MLの | 不妊 |
| DreamTaq PCRマスターミックス | サーモフィッシャーサイエンティフィック | K1081 | |
| EDTAの | メルク | 324503-100GMの | 不妊 |
| 電気泳動電源 | メルク | PS 251-2 | |
| エッペンドルフ コンセントレータープラス | メルク | EP5305000509 | 代わりに、任意のブランドの真空濃縮器を使用できます。 |
| エタノール | メルク | 1009861000 | |
| EVOS M5000イメージングシステム | サーモフィッシャーサイエンティフィック | AMF5000 | あらゆるブランドの倒立顕微鏡を使用して、クローンの進行を監視できます。FISHを視覚化するには蛍光顕微鏡が必要です。 |
| ウシ胎児血清 | メルク | F9665 | 熱不活化 |
| ホルムアルデヒド | サーモフィッシャーサイエンティフィック | 047377.9L | |
| ホルムアミド | メルク | F7503-100MLの | |
| ゲル電気泳動タンク | クリーバーサイエンティフィック | MSMIDIの | |
| ゲルイメージャー | バイオラッド | 12009077 | GelDoc Go ゲルイメージングシステム |
| GeneRuler 100 bp DNAラダー | サーモフィッシャーサイエンティフィック | SM0243 | |
| 加熱ブロック | サーモフィッシャーサイエンティフィック | 88870005 | |
| Herasafe 2025 クラス II 生物学的安全キャビネット | サーモフィッシャーサイエンティフィック | 51033314 | 内部の無菌環境を維持する限り、どのブランドの生物学的安全キャビネットでも使用できます。 |
| Hoechst 33342 溶液 (20 mM) 5 mL | サーモフィッシャーサイエンティフィック | 62249 | 暗所に保管してください。 |
| 塩酸 | メルク | 258148-2.5L | |
| インテグラ・バイオサイエンス・コーポレーション PIPETBOY acu 2 ピペットエイド | フィッシャーサイエンティフィック | NC0085686 | あらゆるブランドの血清ピペットコントロールを使用できます。 |
| イソプロパノール | メルク | I9516-1L | |
| 研究室用冷凍庫 | リープヘル | LGUex 1500 メディライン | 一定の温度を維持できる冷凍庫であれば何でも適しています。 |
| 液体窒素タンク | サーモフィッシャーサイエンティフィック | CY50985 | |
| 顕微鏡スライド | メルク | CLS294875X25-72EA | |
| 分子グレードの水 | |||
| マルチチャンネルピペット | エッペンドルフ | 3125000036 | |
| ナノドロップ | ペクラボ | ND-1000型 | |
| ノイバウアー血球計算器 | メルク | BR717810-1個 | |
| パラフィルム Mシーリングフィルム | メルク | HS234526B-1個 | |
| ペルチェ冷却インキュベーター | メマート | IPP55プラス | 一定の25を維持できるインキュベーターはありますか?Cが適しています。JW18細胞株またはそのクローンにはCO2コントロールは必要ありません。 |
| フェノール/クロロホルム/イソアミルアルコール(25:24:1) | サーモフィッシャーサイエンティフィック | 327115000 | |
| ピペットセット | エッペンドルフ | EP2231300008 | |
| 酢酸カリウム | メルク | P1190-500G | 不妊 |
| クエーサー 670タグ付き16s rRNA FISHプローブ セット | バイオサーチ技術 | カスタムメイドのプローブのシーケンスは、表1に記載されています。 | |
| 冷蔵マイクロ遠心分離機 | ラボネット | C2500-R | |
| RPL32プライマーフォワード5'-CCGCTTCAAGGGACAGTATC-3' | ユーロフィンのゲノミクス | 論文で引用された参考文献に基づいてカスタムメイド | |
| RPL32プライマーリバース5'-CAATCTCCTTGCGCTTCTTG-3' | ユーロフィンのゲノミクス | 論文で引用された参考文献に基づいてカスタムメイド | |
| SDSの | サーモフィッシャーサイエンティフィック | AM9823 | 不妊 |
| 血清ピペット | コーニング | 357771 | |
| シールドとサン M3 昆虫培地 | メルク | S8398 | 不妊 |
| ステラリス RNA FISH ハイブリダイゼーション バッファー | バイオサーチ技術 | SMF-HB1-10 | 不妊 |
| ステラリス RNA FISH ウォッシュ バッファー A | バイオサーチ技術 | SMF-WA1-60 | 不妊 |
| ステラリス RNA FISH 洗浄バッファー B | バイオサーチ技術 | SMF-WB1-20 | 不妊 |
| 滅菌試薬リザーバー | サーモフィッシャーサイエンティフィック | 8094 | 不妊 |
| TAEバッファー | メルク | 1061741000 | 1倍 |
| TEバッファー | メルク | 93283 | 不妊 |
| サーマルサイクラー | シンジェンバイオテック | サーモブロック 96 | 代わりに、任意のブランドのサーマルサイクラーを使用できます。 |
| トリスベース | メルク | 10708976001 | 不妊 |
| 超低温冷凍庫 | PHCコーポレーション | MDF-DU502VH-PE | -80 を維持できる実験室用冷凍庫はありますか?Cを使用できます。 |
| Vectashield 取り付け媒体 | ベクター研究所 | H-1000-10 | |
| wspプライマーフォワード5'-TGGTCCAATAAGTGATGAAGAAAC-3' | ユーロフィンのゲノミクス | 論文で引用された参考文献に基づいてカスタムメイド | |
| WSPプライマーリバース5'-AAAAATTAAACGCTACTCCA-3' | ユーロフィンのゲノミクス | 論文で引用された参考文献に基づいてカスタムメイド |
参考文献
- Luhur, A., Klueg, K. M., Zelhof, A. C. Generating and working with Drosophila cell cultures: current challenges and opportunities. Wiley Interdiscip Rev Dev Biol. 8 (3), e339(2019).
- Hilgenboecker, K., Hammerstein, P., Schlattmann, P., Telschow, A., Werren, J. H. How many species are infected with Wolbachia? A statistical analysis of current data. FEMS Microbiol Lett. 281 (2), 215-220 (2008).
- Zug, R., Hammerstein, P. Still a host of hosts for Wolbachia: analysis of recent data suggests that 40% of terrestrial arthropod species are infected. PLoS One. 7 (6), e38544(2012).
- Weinert, L. A., Araujo-Jnr, E. V., Ahmed, M. Z., Welch, J. J. The incidence of bacterial endosymbionts in terrestrial arthropods. Proc R Soc B. 282 (1807), 20150249(2015).
- Hoffmann, A. A., Turelli, M. Unidirectional incompatibility in Drosophila simulans: inheritance, geographic variation and fitness effects. Genetics. 119 (2), 435-444 (1988).
- O'Neill, S. L., Giordano, R., Colbert, A. M., Karr, T. L., Robertson, H. M. 16S rRNA phylogenetic analysis of the bacterial endosymbionts associated with cytoplasmic incompatibility in insects. Proc Natl Acad Sci U S A. 89 (7), 2699-2702 (1992).
- Stouthamer, R., Breeuwer, J. A. J., Luck, R. F., Werren, J. H. Molecular identification of microorganisms associated with parthenogenesis. Nature. 361 (6407), 66-68 (1993).
- Rousset, F., Bouchon, D., Pintureau, B., Juchault, P., Solignac, M. Wolbachia endosymbionts responsible for various alterations of sexuality in arthropods. Proc R Soc Lond B Biol Sci. 250 (1328), 91-98 (1992).
- Hedges, L. M., Brownlie, J. C., O'Neill, S. L., Johnson, K. N. Wolbachia and virus protection in insects. Science. 322 (5902), 702(2008).
- Teixeira, L., Ferreira, Á, Ashburner, M. The bacterial symbiont Wolbachia induces resistance to RNA viral infections in Drosophila melanogaster. PLoS Biol. 6 (12), e1000002(2008).
- Glaser, R. L., Meola, M. A. The native Wolbachia endosymbionts of Drosophila melanogaster and Culex quinquefasciatus increase host resistance to West Nile virus infection. PLoS One. 5 (8), e11977(2010).
- van den Hurk, A. F., et al. Impact of Wolbachia on infection with chikungunya and yellow fever viruses in the mosquito vector Aedes aegypti. PLoS Negl Trop Dis. 6 (11), e1892(2012).
- Aliota, M. T., et al. The wMel strain of Wolbachia reduces transmission of chikungunya virus in Aedes aegypti. PLoS Negl Trop Dis. 10 (4), e0004677(2016).
- Kean, J., et al. Fighting arbovirus transmission: natural and engineered control of vector competence in Aedes mosquitoes. Insects. 6 (1), 236-278 (2015).
- Joubert, D. A., et al. Establishment of a Wolbachia superinfection in Aedes aegypti mosquitoes as a potential approach for future resistance management. PLoS Pathog. 12 (2), e1005434(2016).
- Ross, P. A. Designing effective Wolbachia release programs for mosquito and arbovirus control. Acta Trop. 222, 106045(2021).
- Flores, H. A., O'Neill, S. L. Controlling vector-borne diseases by releasing modified mosquitoes. Nat Rev Microbiol. 16 (8), 508-518 (2018).
- Pannebakker, B. A., Loppin, B., Elemans, C. P. H., Humblot, L., Vavre, F. Parasitic inhibition of cell death facilitates symbiosis. Proc Natl Acad Sci U S A. 104 (1), 213-215 (2007).
- Hosokawa, T., Koga, R., Kikuchi, Y., Meng, X. -Y., Fukatsu, T. Wolbachia as a bacteriocyte-associated nutritional mutualist. Proc Natl Acad Sci U S A. 107 (2), 769-774 (2010).
- Zheng, Y., et al. Differentially expressed profiles in the larval testes of Wolbachia-infected and uninfected Drosophila. BMC Genomics. 12 (1), 595(2011).
- Xi, Z., Gavotte, L., Xie, Y., Dobson, S. L. Genome-wide analysis of the interaction between the endosymbiotic bacterium Wolbachia and its Drosophila host. BMC Genomics. 9 (1), 1(2008).
- Lindsey, A. R. I., Bhattacharya, T., Hardy, R. W., Newton, I. L. G. Wolbachia and virus alter the host transcriptome at the interface of nucleotide metabolism pathways. mBio. 12 (1), e03472-e03520 (2021).
- Detcharoen, M., Schilling, M. P., Arthofer, W., Schlick-Steiner, B. C., Steiner, F. M. Differential gene expression in Drosophila melanogaster and D. nigrosparsa infected with the same Wolbachia strain. Sci Rep. 11 (1), 11336(2021).
- Gruntenko, N. E., et al. Drosophila melanogaster transcriptome response to different Wolbachia strains. Int J Mol Sci. 24 (24), 17411(2023).
- Frantz, S. I., Small, C. M., Cresko, W. A., Singh, N. D. Ovarian transcriptional response to Wolbachia infection in D. melanogaster in the context of between-genotype variation in gene expression. G3 (Bethesda). 13 (5), jkad047(2023).
- McMeniman, C. J., et al. Host adaptation of a Wolbachia strain after long-term serial passage in mosquito cell lines. Appl Environ Microbiol. 74 (22), 6963-6969 (2008).
- Woolfit, M., et al. Genomic evolution of the pathogenic Wolbachia strain, wMelPop. Genome Biol Evol. 5 (11), 2189-2204 (2013).
- Martinez, J., Sinkins, S. P. Rapid evolution of Wolbachia genomes in mosquito cell culture. bioRxiv. , (2023).
- Serbus, L. R., et al. A cell-based screen reveals that the albendazole metabolite, albendazole sulfone, targets Wolbachia. PLoS Pathog. 8 (9), e1002922(2012).
- Grobler, Y., et al. Whole genome screen reveals a novel relationship between Wolbachia levels and Drosophila host translation. PLoS Pathog. 14 (11), e1007445(2018).
- Rainey, S. M., et al. Wolbachia blocks viral genome replication early in infection without a transcriptional response by the endosymbiont or host small RNA pathways. PLoS Pathog. 12 (4), e1005536(2016).
- O'Neill, S. L., et al. In vitro cultivation of Wolbachia pipientis in an Aedes albopictus cell line. Insect Mol Biol. 6 (1), 33-39 (1997).
- Fenollar, F., Maurin, M., Raoult, D. Wolbachia pipientis growth kinetics and susceptibilities to 13 antibiotics determined by immunofluorescence staining and real-time PCR. Antimicrob Agents Chemother. 47 (5), 1665-1671 (2003).
- Fallon, A. M., Witthuhn, B. A. Proteasome activity in a naïve mosquito cell line infected with Wolbachia pipientis wAlbB. In Vitro Cell Dev Biol Anim. 45 (8), 460-466 (2009).
- Molloy, J. C., Sommer, U., Viant, M. R., Sinkins, S. P. Wolbachia modulates lipid metabolism in Aedes albopictus mosquito cells. Appl Environ Microbiol. 82 (10), 3109-3120 (2016).
- Andrianov, B. V., Goriacheva, I. I., Alexandrov, I. D., Gorelova, T. V. Establishment of a new continuous cell line of Drosophila melanogaster strain infected by the intracellular endosymbiotic bacterium Wolbachia pipientis under natural conditions. Russ J Genet. 46 (1), 9-12 (2010).
- Fattouh, N., Cazevieille, C., Landmann, F. Wolbachia endosymbionts subvert the endoplasmic reticulum to acquire host membranes without triggering ER stress. PLoS Negl Trop Dis. 13 (3), e0007218(2019).
- Fredericks, A. C., et al. Aedes aegypti (Aag2)-derived clonal mosquito cell lines reveal the effects of pre-existing persistent infection with the insect-specific bunyavirus Phasi Charoen-like virus on arbovirus replication. PLoS Negl Trop Dis. 13 (11), e0007346(2019).
- Kirby, K. S. A new method for the isolation of ribonucleic acids from mammalian tissues. Biochem J. 64 (3), 405-408 (1956).
- Zhou, W., Rousset, F., O'Neill, S. Phylogeny and PCR–based classification of Wolbachia strains using wsp gene sequences. Proc R Soc Lond B Biol Sci. 265 (1395), 509-515 (1998).
- Chrostek, E., et al. Wolbachia variants induce differential protection to viruses in Drosophila melanogaster: a phenotypic and phylogenomic analysis. PLoS Genet. 9 (12), e1003896(2013).
- Schneider, D. I., Parker, A. G., Abd-alla, A. M., Miller, W. J. High-sensitivity detection of cryptic Wolbachia in the African tsetse fly (Glossina spp). BMC Microbiol. 18 (S1), 140(2018).
- Stellaris RNAFISH protocol for adherent cells. , LGC Biosearch Technologies. https://biosearchassets.biosearchtech.com/assetsv6/bti_stellaris_protocol_adherent_cell.pdf (2021).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Freshney, I. Cloning and selection. Culture of Animal Cells: a Manual of Basic Technique. , 207(2010).
- Housden, B. E., et al. Identification of potential drug targets for tuberous sclerosis complex by synthetic screens combining CRISPR-based knockouts with RNAi. Sci Signal. 8 (393), (2015).
- Fenollar, F., et al. Culture and phenotypic characterization of a Wolbachia pipientis isolate. J Clin Microbiol. 41 (12), 5434-5441 (2003).
- Dobson, S. L., Marsland, E. J., Veneti, Z., Bourtzis, K., O'Neill, S. L. Characterization of Wolbachia host cell range via the in vitro establishment of infections. Appl Environ Microbiol. 68 (2), 656-660 (2002).
- Frentiu, F. D., Robinson, J., Young, P. R., McGraw, E. A., O'Neill, S. L. Wolbachia-mediated resistance to dengue virus infection and death at the cellular level. PLoS One. 5 (10), e13398(2010).
- Voronin, D. A., Bochernikov, A. M., Baricheva, E. M., Zakharov, I. K., Kiseleva, E. V. Influence of Drosophila melanogaster genotype on biological effects of endosymbiont Wolbachia (stamm wMelPop). Tsitologiia. 51 (4), 335-345 (2009).
- Venard, C. M. -P., Crain, P. R., Dobson, S. L. SYTO11 staining vs FISH staining: a comparison of two methods to stain Wolbachia pipientis in cell cultures. Lett Appl Microbiol. 52 (2), 168-176 (2011).
- Casper-Lindley, C., et al. Rapid fluorescence-based screening for Wolbachia endosymbionts in Drosophila germ line and somatic tissues. Appl Environ Microbiol. 77 (14), 4788-4794 (2011).
- Khoo, C. C. H., Venard, C. M. P., Fu, Y., Mercer, D. R., Dobson, S. L. Infection, growth and maintenance of Wolbachia pipientis in clonal and non-clonal Aedes albopictus cell cultures. Bull Entomol Res. 103 (3), 251-260 (2013).
- Singh, K. R. P. Cell cultures derived from larvae of Aedes albopictus (Skuse) and Aedes aegypti (L.). Curr Sci. 36 (19), 506-508 (1967).
- Nouri, N., Fallon, A. M. Pleiotropic changes in cycloheximide-resistant insect cell clones. In Vitro Cell Dev Biol. 23 (3), 175-180 (1987).
再版と許可
