便秘はパーキンソン病(PD)の一般的な前駆症状であり、診断の何年も前に現れることがよくあります。この研究では、 Drosophila melanogasterの便秘を測定するための提案された方法が検証され、単一遺伝子PDのさまざまなハエモデルで欠損が確認されました。
この記事について
サマリー
要約
パーキンソン病(PD)は一般的な神経変性運動障害であり、多くの場合、いくつかの非運動症状を伴います。後者の中で、便秘を含む胃腸の問題は、移動困難の発現数年前およびPDの診断が確立される前にしばしば発生します。最近の研究では、野生型のヒトα-シヌクレインを発現するPDフライモデルで便秘を測定する方法が提案されました。この研究では、この方法の実現可能性を検討し、他の遺伝的ハエPDモデルが同様に便秘を引き起こすかどうかをテストしました。常染色体優性PDモデルおよび劣性PDモデルにおける便秘レベルを測定するために利用可能なハエ系統を使用し、これには3つの異なる変異ヒトα-シヌクレイン発現 ショウジョウ バエ系統とPink1欠損およびパーキン欠損ハエが含まれていた。これらのハエとそれに対応するコントロールは、実験の1日前に青色の食品に配置され、青い糞便スポットを誘発されました。実験当日、これらのハエを標準的なコーンミールに移しました。総糞便スポットに対する青い糞便スポットの割合は、90分ごとに記録および計算されました。異なるハエPDモデルは、それぞれの対照ハエと比較して、青色の食物の排出が遅いか不完全であることを示しています。したがって、便秘を測定するために以前に提案された方法が検証され、さまざまな形態の遺伝的PDのさまざまなハエモデルに適用されました。
概要
パーキンソン病(PD)は、運動緩慢、硬直、振戦などの主要な診断徴候を含む、主に運動機能障害を特徴とする神経変性疾患です。PDはその運動徴候で最もよく知られていますが、うつ病、痛み、睡眠障害、便秘などの非運動症状が一般的です1,2。多くの場合、これらの非運動症状は病気の経過の早い段階で現れ、運動症状に数年先行することがあります3。疾患の初期段階でこれらの非運動的特徴を認識することは、PDの早期診断において重要であり、よりタイムリーな介入と疾患管理を促進する可能性があります。
便秘と腸の運動性の変化は、PDで一般的に報告されている非運動症状であり、運動症状の発症のずっと前にしばしば存在します3,4。さらに、PDの進行5により、その重症度と頻度が増加します。それにもかかわらず、便秘のパターンとメカニズムについての私たちの理解は依然として限られています。したがって、PDに関連する便秘の早期発見は、治療的介入が疾患の進行を遅らせるのにより効果的である可能性のある段階でPDを診断するのに役立つ可能性があります。その重要性にもかかわらず、PDの便秘を引き起こす根本的なメカニズムを理解することは、適切な実験モデルとデザインの欠如もあって、限られたままです。ヒト野生型α-シヌクレインの過剰発現を用いたショウジョウバエ・メラノガスターの便秘研究における最近の進歩は、この初期の非運動症状の根底にあるメカニズムを調査するための貴重なツールを提供する6。
α-シヌクレインをコードするSNCAは、PD7の最初の同定された原因を表しています。SNCAにおける遺伝子増殖(重複および三重化)と点変異の両方が、PD8の常染色体優性遺伝につながります。特に、便秘はSNCA変異を持つ患者の最大90%に影響を及ぼします5。さらに、変異するとPDを引き起こす他のいくつかの遺伝子が同定されており、これにはVPS35が含まれ、これもPD8の常染色体優性型を引き起こします。PINK1やParkinなどの他の遺伝子は、変異すると常染色体劣性PDを引き起こします9。非運動症状は、これらの他の遺伝的形態のPDでも発生します。しかし、報告されたデータはまばらであり、したがって、基礎となるメカニズムを結論付けたり調査したりすることは困難である10,11。
PDについては、Drosophila melanogaster12を含むいくつかの動物モデルが作成されています。ショウジョウバエはSNCA遺伝子を含んでいないが、遺伝子の野生型および変異型の過剰発現は、運動症状を含むパーキンソン病の表現型を誘発する13。さらに、PD結合変異体vps35、pink1、およびパーキンバエは、PD12に関連するそれぞれの変異遺伝子の影響を研究するための十分に確立されたモデルです。さらに、優性型と劣性型を含むPDのさまざまなショウジョウバエモデルで便秘を測定する能力により、胃腸機能障害のより詳細な分析が可能になり、したがって、PD関連の便秘に関与する経路の理解を深めることができます。
ここでは、最近提案された便秘の測定方法の実現可能性が評価され、さまざまな遺伝的PDモデルを使用して検証されました6 。この方法の適用を他の遺伝的PDモデルに拡大し、調整を行うことにより、便秘や腸の運動性の変化を測定するための一般的なアッセイとしてこの方法の実現可能性を確認し、PDの便秘の根底にある分子メカニズムについての洞察を得るための修飾スクリーニングを実行する可能性を支持します。
プロトコル
このアッセイでは、生後10日齢のオスのハエを使用しました。 SNCAの過剰発現には、ユビキタスドライバー のDaughterlessGal4 を使用しました。
このアッセイで使用したハエ:
w1118;;SNCA p.A53T/DaGal4 とその制御 w1118;;SNCA p.A53T
w1118;;SNCA p.A30P/DaGal4 とその制御 w1118;;SNCA p.A30P
w1118;;SNCA p.V15A/DaGal4 とその制御 w1118;;SNCA p.V15A
w1118;;Vps35D650N/DaGal4 とその制御 w1118;;VPS35D650Nの
w ピンク1B9;; そして彼らの制御 w pink1RV;;
w1118;;公園D1 / D21 とその制御w1118;;パークRV
SNCA p.A53T, SNCA p.A30P, w*;;P(EP)パーク1、w *;;パークΔ21、Vps35、D650N、およびDaGal4は商業的に入手されました(資料表を参照)。w pink1B9 null mutants and controls (w pink1RVs) は、Jeehye Park 氏と Jongkyeong Chung 氏 (Korea Advanced Institute of Science and Technology)14 のご厚意により提供されました。SNCA p.V15Aフライは以前に15個作成されました。この研究で使用した試薬と機器は、材料表に記載されています。
1.ブルーフードの作り方
- 新鮮な標準的なコーンミールフライミディアムを準備し、暖かく液体に保ちます。
注:事前に準備されたフライメディウムを使用できますが、メディウムを液体にするには加熱する必要があります。標準的なコーンミールは、50 gのコーンミール、7 gの酵母、7 gの寒天、13.5 gのデキストロース、10 mLのエタノール(100%)、1.1 gのメトール-4-ヒドロキシ安息香酸、55 gの糖蜜、および1 Lのフライ培地に対する4.8 mLのプロピオン酸で構成されています。 - 青色の食用色素と蒸留水に1:1の比率(v / v)で混合します。
- ブルーフードミックスを標準のコーンミールメディウムに加えて、ブルーフードで飽和させ、均一な青色にします。
注:この研究では、1:100の比率が使用されました。 - パスツールピペットを使用して青い食品を大きな食品バイアルに分注して底を覆い、自然乾燥させて固めます。
- 標準のコーンミール培地で同じ数の食品バイアルを作ります。
- 乾燥させながら食品バイアルを薄いペーパータオルで覆い、湿気や汚染の蓄積を防ぎます。
2. アッセイの準備
- 濡れたWhatman紙を空の食品バイアルに入れます。
注意: ハエが青い媒体でバイアルに移されるとき、Whatman紙を底にくっつくように浸してください。 - 各バイアルに15〜20匹のハエを加え、1時間放置します。
注:ハエを麻酔することで、正しい遺伝子型のハエを選択できるようになりました。その後、ハエをブラシでバイアルで拭き取り、10日間熟成させました。ハエの移動は、ハエを一方のバイアルからもう一方のバイアルに慎重に反転させ、ハエが逃げるのを防ぐためにストッパーを使用することによって行われます。 - ハエを青色培地の入ったバイアルに移し、25°Cのインキュベーターに一晩放置します。
3. 便秘検査の実施
- 翌朝、ハエを標準的なコーンミール培地でバイアルに移し、インキュベーターに90分間戻します。
注:バイアル内のすべてのハエの腹が青いかどうかは、顕微鏡の下に置くことで確認できます。 - 90分後、青色および無色の不透明なドットの数を数え、色付きのマーカーでマークし、記録し、ハエをインキュベーターに戻します(図1)。
注意: すでにカウントされたドットをマークすると、繰り返しカウントを回避できます。さらに、食品やバイアルプラグのドットは無視されました。 - 同じハエで手順4.2をさらに4回繰り返して、糞便ドットの時間経過を取得します。毎回、前のラウンドのカウントが繰り返されるのを避けるために、異なる色のマーカーが使用されました。
4. 分析
- 各時点のドット (青と不透明なドット) の合計数に対する青いドットの割合を計算します。
- さまざまな時点の青い点の割合を使用してデータをグラフにプロットし、GraphPadの「曲線下面積」分析を介して、曲線下面積を計算してプロットしました。
- GraphPad Prismでデータを解析し、ウェルチの補正16を用いて対応のないt検定を実行します。
注:ウェルチの補正は、すべての母集団で等しい標準偏差を検定できなかったため、含まれていました。
結果
ハエ7 の便秘を測定し、さまざまな遺伝的PD関連ハエモデルで腸の機能をテストするために、以前に提示された方法にわずかな調整が加えられました。青色の培地でハエを一晩孵化させると、ハエの腹が青く見え(図2)、ハエの餌のバイアルに青い斑点が残る糞便が発生しました(図2)。時間が経つにつれて、青い腹は通常の黄色がかった色の腹に戻りました(図2)。また、青色の糞便斑が減少し、黄色の不透明な斑点が増加しました(図2)。この青い斑点から黄色の斑点への変化は、腸の運動性または便秘のレベルを示しています。この移行は、対照フライでは7時間30分後に完了しましたが、PD関連のフライでは、青色の培地の除去はより遅いペースで行われました(図2)。
以前に、野生型α-シヌクレイン7を発現する10日齢のハエでは、青色媒体のクリアランスの遅延が報告されており、対照のハエと比較して、これらのハエには腸の運動性の変化が存在するため、便秘またはクリアランスの遅延のレベルが示唆されています。 SNCAの重複または三重化に加えて、 PDに関連するSNCA ではいくつかの病原性ミスセンス変異体が同定されており、 SNCAでは3つの一般的な病原性ミスセンス変異体を試験しました。変異型α-シヌクレイン(p.A30P、p.A53T、およびp.V15A)の発現は、7時間30分以内に青色媒体の不完全なクリアランスをもたらし、対照ハエと比較してこれらのハエに便秘の存在を示唆している(図3)。
興味深いことに、α-シヌクレインの発現はVPS35タンパク質レベルを低下させる17。VPS35はレトロマーのサブユニットであり、変異するとPD9,18,19を引き起こします。変異体vps35を発現するハエでは、対照のハエと比較して便秘の増加が観察されました(図4)。
Pink1とParkinが不足しているハエは、青色媒体のクリアランスが遅れていることを示しています。しかし、7時間30分後、これらの突然変異型ハエには青い糞便スポットは検出されなくなりました(図5)。
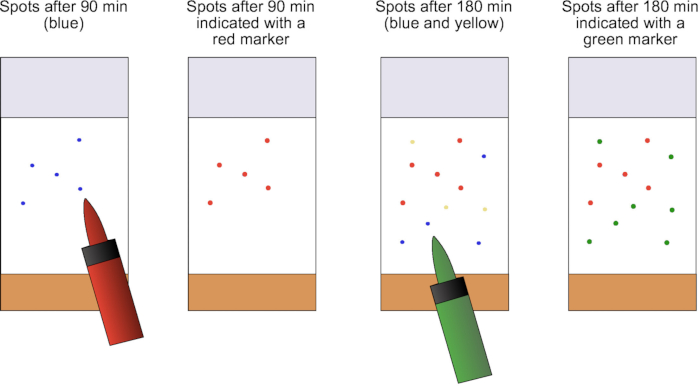
図1:色付きのマーカーを使用したカウントプロセスの概略図。 90分後、糞便スポットはカウントされ、次のラウンドで再カウントされないように色付きのマーカーで示されました。次のカウントラウンド中に追加の糞便スポットを示すために別の色が使用されました。 この図の拡大版を表示するには、ここをクリックしてください。
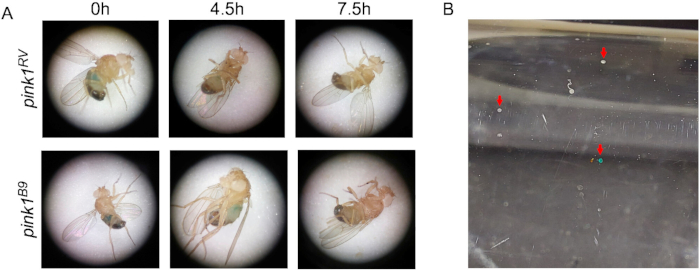
図2:青い中程度は、青い腹と青い糞便の斑点をもたらします。 (A)0時間、4時間30分、7時間30分の時点での対照バエ(pink1RV)と pink1変異ハエの腹の画像は、青色の退色を示しています。(B)フライフードバイアルの青と黄色の不透明な糞便スポットは赤い矢印で示されています。 この図の拡大版を表示するには、ここをクリックしてください。
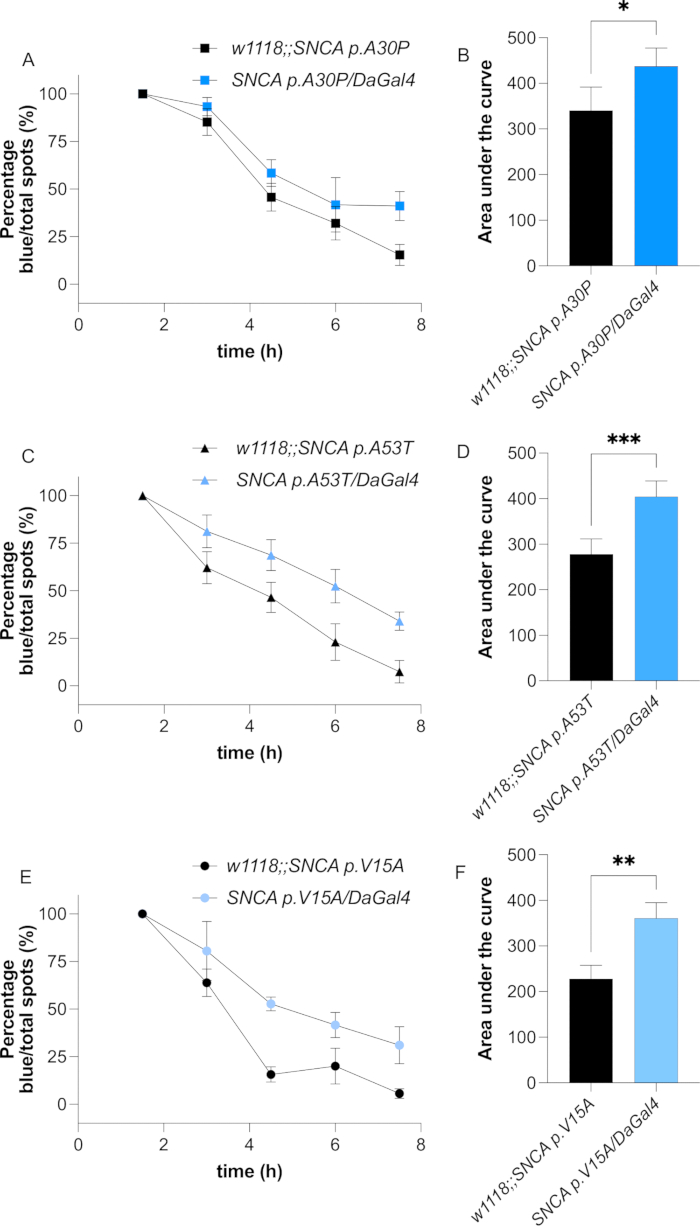
図3:変異型α-シヌクレインの発現は便秘を引き起こします。 SNCA p.A30P (A)、SNCA p.A53T (C)、SNCA p.V15A (E) を過剰発現するハエの経時的な青い糞便斑点の割合と、それぞれのコントロール。曲線の下の関連する領域(B、D、F)が表示されます。データは平均と標準偏差です。n ≥ 3バイアルで、バイアルあたり15〜20匹のハエがいます。ウェルチの T検定 が実行されました。*: p < 0.05;**: p <0.01;: p < 0.001. この図の拡大版を表示するには、ここをクリックしてください。
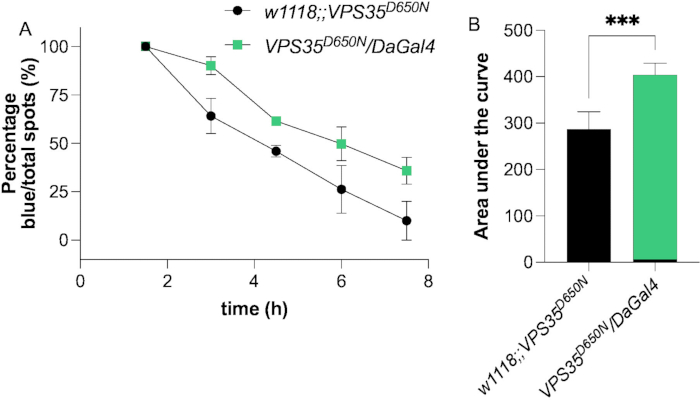
図4:変異体vps35の発現は便秘をもたらします。 (A)PD結合変異体vps35D650N とその制御を過剰発現するハエの経時的な青い糞便スポットの割合。(B)曲線の下の領域が表示されます。データは平均と標準偏差です。n = 3バイアルで、バイアルあたり15〜20匹のハエがいます。ウェルチの T検定 が実行されました。: p < 0.001. この図の拡大版を表示するには、ここをクリックしてください。
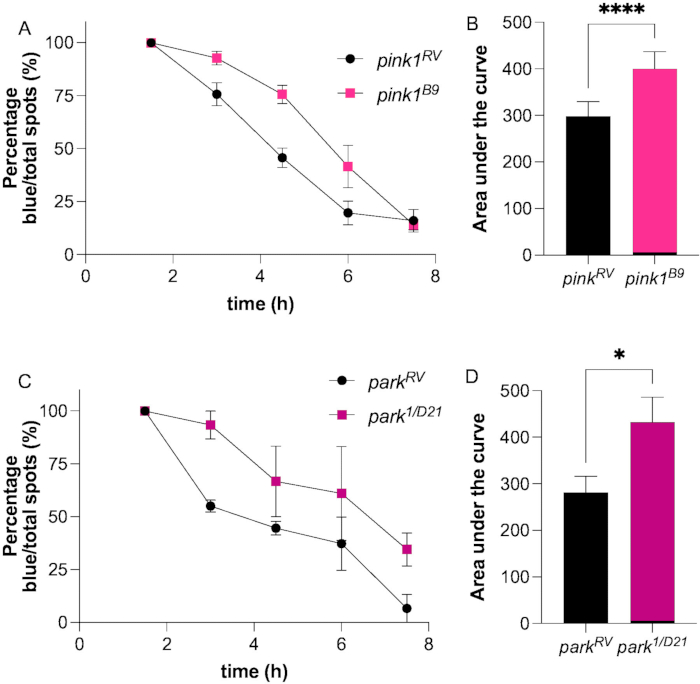
図5:ピンク1とパーキン欠乏症は、遅延性糞便クリアランスを誘発します。 Pink1-(A)とParkin欠損症(C)の経時的な青い糞便スポットの割合と、それぞれの対照ハエ。曲線の下に関連付けられた領域(B,D)が表示されます。データは、標準偏差を持つ平均です。n ≥ 3バイアルで、バイアルあたり15〜20匹のハエがいます。ウェルチのT検定が実行されました。*:p < 0.05;: p < 0.0001.この図の拡大版を表示するには、ここをクリックしてください。
ディスカッション
最近、 Drosophila melanogaster の便秘を測定する方法が提案されました。この方法を適用すると、野生型α-シヌクレイン7を発現するハエに便秘または腸の運動性の変化が観察されました。この方法はいくつかの変更を加えて検証され、テストされたすべての遺伝的PDモデルで便秘が特定されました。
この方法の元の説明と比較して、実現可能性と頑健性を高めるためにいくつかの変更が組み込まれました。青色培地の飽和度の変化を避けるために、青色培地の1つのバッチを調製し、必要な数の食品バイアルに分割しました。さらに、ハエをブルーメディウムに加える前に、ハエは一時的に餌を奪われ、水へのアクセスを提供するだけでした。このステップは、ブルーメディウムの取り込みを刺激するために追加されました。この追加のステップがなければ、すべてのハエが明確な青い腹を示したわけではなく、代表的な結果を得るための重要な出発点でした。最後に、いくつかのPDフライモデルは、強打感度13,14,20のレベルを示しています。したがって、この感度が糞便出力に与える影響を避けるために、各カウントステップ中にハエは転送されませんでした。ただし、二重カウントを避けるために、スポットを示すために異なる色のマーカーが使用されました。
元の説明と同様に、ハエが午後に排泄する頻度が低いことも観察されました。それにもかかわらず、これはコントロールハエと突然変異ハエの両方に当てはまるため、スポットの記録に異常は生じませんでした。さらに、各時点でカウントするのに十分な糞便スポットを持つことが、しっかりとした結果を得るための鍵となります。したがって、バイアルあたり最低15匹のハエが推奨されます7。
元の原稿では、便秘は生後10日のハエで観察されましたが、生後1日のハエでは観察されませんでした。したがって、このアッセイでは、便秘アッセイを10日齢のハエで実施し、便秘または腸の運動性の変化が、試験されたすべてのPDフライモデルで観察されました。以前の運動研究では、α-シヌクレイン発現ハエの運動機能障害には便秘が先行し、飛行障害が明らかになるのは16歳の3週間後であることが明らかになりました。この時間的な症状のシーケンスは、運動障害の前に胃腸の問題が現れることが多いPD患者で観察される進行を反映しています。α-シヌクレインモデルとは対照的に、 pink1または パーキン変異体のハエは、脱落後1日目という早い時期に障害を示します21。したがって、腸通過障害がこの早い時点で現れるかどうかを調査することは、これらの遺伝子モデルにおける非運動症状の進行に関する貴重な洞察を提供するでしょう。したがって、基礎となる生物学をさらに理解するために、より詳細な実験を実施する必要があります。
ここで説明するアッセイは、胃腸の運動性と便秘の表現型の定量的評価を容易にしますが、糞便の一貫性、含有量、着色、形態などのパラメーターを評価することはできません。以前は、糞便出力が測定され、ショウジョウバエモデル22,23,24で確立された方法論を使用して色と形態が評価されました。ただし、このアッセイには特殊な機器(透明性スキャナーなど)と専用の分析ソフトウェアが必要であり、ここで説明するプロトコルと比較して、技術的およびリソースに関する明確な考慮事項が発生します。それにもかかわらず、このアッセイは、Pink122,23が不足しているハエの胃腸障害を示しています。
胃腸機能障害は、自閉症スペクトラム障害、アルツハイマー病、多発性硬化症25,26,27,28など、複数の神経学的および神経変性疾患にわたる併存症状として認識されており、Drosophila melanogasterは、メカニズムの基盤を調査するための扱いやすいモデル生物として機能します。ショウジョウバエの腸の運動性と便秘を研究するために確立された方法論的枠組みは、これらの疾患に外挿することができます。
結論として、この研究は、ハエの便秘を測定するために以前に提示された実行可能で堅牢な方法を確認しました。このアッセイは、便秘の研究に特に適した複数の遺伝的 ショウジョウバエ PDモデルに便秘が存在することを示しています。これらのモデルは、運動特徴の発現が現れる前に遺伝的に定義されたリスクのあるハエを研究する機会を提供します。さらに、腸の運動性の不規則性を示す ショウジョウバエ の他の疾患モデルは、薬物スクリーニングと同様に、これと評価することができます。
開示事項
C.K.は、Centogene、武田薬品、バイオジェン、ルンドベック財団のコンサルタントを務め、Bialから講演者謝礼を受け、DFG、MJFF、ASAPから研究資金を受けています。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Bacto Agar | Becton, Dickinson and company | 214010 | |
| Ceapran plugs | Greiner Bio-One | 330070 | |
| Cornmeal | Dr. Oetker GmbH | ||
| Dextrose | Sigma-Aldrich | D9434-1KG | |
| ショウジョウバエ容器 | Greiner Bio-One | 217101 | |
| エタノール (100%) | J.T. Baker | BAK8025 2500 | |
| フィルターペーパーセルロース、Whatman (グレード 3) | Sigma-Aldrich | WHA1003185 | |
| GraphPad プリズム | GraphPad | ||
| メチル-4-ヒドロキシベンゾート | Sigma-Aldrich | H5501-100G | |
| 糖蜜 | ラプンツェル Naturkost GmbH | ||
| パーマネネットカラーマーカー | Stadtler | 11-348 | |
| プロピオン酸 | モフィッシャー科学株式会社 | 149300010 | |
| ロイヤルブルーアズールリアルアイシングカラー | ルトンレーベンミッテルファルベン | ||
| 体顕微鏡 | ニコン | ||
| アルギストブルッゲマン | 1278 | ||
| ショウジョウバエ株 | |||
| DaGal4 | ミントンストックセンター95282 | ||
| D1/D21 | Jeehye Park and Jongkyeong Chung | ||
| parkRV | Jeehye Park and Jongkyeong Chung | ||
| SNCA p.A53T | Bloomington Stock Center | 8148 | |
| SNCA p.A30P | Bloomington Stock Center | 8147 | |
| SNCA p.V15A | に研究室 | ||
| Vps35D650N | ブルーミントンストック | センター91646 | |
| w pink1B9 | Jeehye Park and Jongkyeong Chung | ||
| w pink1RV | Jeehye Park and Jongkyeong Chung | ||
| w1118 | Bloomington Stock Center | 3605 |
参考文献
- Fanciulli, A., et al. Diagnosis and treatment of autonomic failure, pain and sleep disturbances in Parkinson's disease: Guideline "Parkinson's disease" of the German Society of Neurology. J Neurol. 272 (1), 1-32 (2025).
- Kasten, M., Marras, C., Klein, C. Nonmotor signs in genetic forms of Parkinson's disease. Int Rev Neurobiol. 133, 129-178 (2017).
- Bloem, B. R., Okun, M. S., Klein, C. Parkinson's disease. Lancet. 397 (10291), 2284-2303 (2021).
- Higinbotham, A. S., Kilbane, C. W. The gastrointestinal tract and Parkinson's disease. Front Cell Infect Microbiol. 13, 1158986(2023).
- Yuan, X. Y., Chen, Y. S., Liu, Z. Relationship among Parkinson's disease, constipation, microbes, and microbiological therapy. World J Gastroenterol. 30 (3), 225-237 (2024).
- Sodders, M. J., Shen, M., Olsen, A. L. Measuring constipation in a Drosophila model of Parkinson's disease. J Vis Exp. (199), e65966(2023).
- Spillantini, M. G., et al. Alpha-synuclein in Lewy bodies. Nature. 388 (6645), 839-840 (1997).
- Trinh, J., et al. Genotype-phenotype relations for the Parkinson's disease genes SNCA, LRRK2, VPS35: MDSGene systematic review. Mov Disord. 33 (12), 1857-1870 (2018).
- Kasten, M., et al. Genotype-phenotype relations for the Parkinson's disease genes Parkin, PINK1, DJ1: MDSGene systematic review. Mov Disord. 33 (5), 733-741 (2018).
- Deutschländer, A., Ross, O. A., Wszolek, Z. K. VPS35-related Parkinson disease. GeneReviews. , https://www.ncbi.nlm.nih.gov/books/NBK447258/ (2023).
- Wasner, K., Grünewald, A., Klein, C. Parkin-linked Parkinson's disease: From clinical insights to pathogenic mechanisms and novel therapeutic approaches. Neurosci Res. 159, 34-39 (2020).
- Vos, M., Klein, C. The importance of Drosophila melanogaster research to uncover cellular pathways underlying Parkinson's disease. Cells. 10 (3), 579(2021).
- Feany, M. B., Bender, W. W. A Drosophila model of Parkinson's disease. Nature. 404 (6776), 394-398 (2000).
- Park, J., et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 441 (7097), 1157-1161 (2006).
- Diaw, S. H., et al. Characterization of the pathogenic α-synuclein variant V15A in Parkinson's disease. NPJ Parkinsons Dis. 9 (1), 148(2023).
- Ruxton, G. D. The unequal variance t-test is an underused alternative to Student's t-test and the Mann-Whitney U test. Behav Ecol. 17 (4), 688-690 (2006).
- Lin, G., et al. Phospholipase PLA2G6, a Parkinsonism-associated gene, affects Vps26 and Vps35, retromer function, and ceramide levels, similar to α-synuclein gain. Cell Metab. 28 (4), 605-618.e6 (2018).
- Mandik, F., Vos, M. Neurodegenerative disorders: Spotlight on sphingolipids. Int J Mol Sci. 5 (21), ijms222111998(2021).
- Vos, M., Klein, C., Hicks, A. A. Role of ceramides and sphingolipids in Parkinson's disease. J Mol Biol. 435 (12), 168000(2023).
- Clark, I. E., et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 441 (7097), 1162-1166 (2006).
- Vos, M., et al. Vitamin K2 is a mitochondrial electron carrier that rescues pink1 deficiency. Science. 336, 1306-1310 (2012).
- Fedele, G., et al. Suppression of intestinal dysfunction in a Drosophila model of Parkinson's disease is neuroprotective. Nat Aging. 2 (4), 317-331 (2022).
- Popovic, R., et al. Blocking dPerk in the intestine suppresses neurodegeneration in a Drosophila model of Parkinson's disease. Cell Death Dis. 14 (3), 1-9 (2023).
- Wayland, M. T., et al. Spotting the differences: Probing host/microbiota interactions with a dedicated software tool for the analysis of faecal outputs in Drosophila. J Insect Physiol. 69, 126-135 (2014).
- Heston, M. B., et al. Gut inflammation associated with age and Alzheimer's disease pathology: A human cohort study. Sci Rep. 13 (1), 1-12 (2023).
- Levinthal, D. J., et al. Adding to the burden: Gastrointestinal symptoms and syndromes in multiple sclerosis. Mult Scler Int. 2013, 319201(2013).
- Sorboni, S. G., et al. A comprehensive review on the role of the gut microbiome in human neurological disorders. Clin Microbiol Rev. 35 (1), e0033820(2022).
- Salim, S., et al. The gut-microbiota-brain axis in autism: What Drosophila models can offer. J Neurodev Disord. 13 (1), 37(2021).
再版と許可
この記事は公開されました
動画は近日公開