このプロトコルにより、6〜8時間以内に十分な初代軟骨細胞を単離することができ、軟骨生物学と軟骨疾患メカニズムのさらなる詳細な調査が容易になります。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
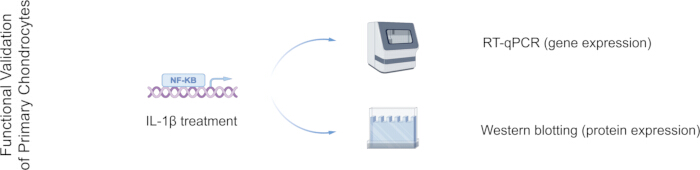
関節軟骨の破壊は軟骨細胞活性の変化につながり、変形性関節症 (OA) や関節リウマチ (RA) などのさまざまな軟骨疾患の主要な原因因子です。軟骨に最も豊富な細胞型であるため、軟骨細胞の生物学的特性の詳細な研究は、効果的な疾患治療戦略の開発に不可欠です。初代軟骨細胞の単離と培養は、軟骨疾患の調査に重要な実験材料を提供し、軟骨の損傷と修復のメカニズムの解明に貢献します。このプロトコルは、マウス由来の初代軟骨細胞の in vitro 単離および培養方法の詳細な説明を提供します。最適化されたコラゲナーゼIIプロトコルを使用することにより、新生児マウス膝関節軟骨標本の軟骨細胞単離を8時間以内に完了することができます。細胞収量は、軟骨組織の約1〜2×10³細胞/ mgであり、組織の鮮度と初期細胞密度によって異なります。単離された細胞は>90%の生存率を示します。このプロトコルは、マウス初代軟骨細胞を例として使用し、単離後1、2、および5日間培養された細胞の形態学的特徴と接着状態を示します。逆転写定量的ポリメラーゼ連鎖反応(RT-qPCR)とウェスタンブロッティングは、インターロイキン-1β(IL-1β)処理がコラーゲンII型アルファ1(Col2a1)を減少させ、マトリックスメタロペプチダーゼ13(Mmp13) の発現を増加させることを示し、単離された軟骨細胞が炎症刺激に反応することを確認しました。従来の方法と比較して、このプロトコルは、トリプシン処理による潜在的な細胞損傷を回避しながら、細胞生存率に対する長期の単離時間の影響を軽減するために、より高いコラゲナーゼ濃度を採用しています。得られた初代軟骨細胞は純粋で生存可能であり、軟骨損傷関連メカニズムに関する詳細な研究に適しており、 in vitro 研究や軟骨疾患の臨床治療に重要な意味を持ちます。
概要
関節軟骨の破壊は、OA や RA などのさまざまな軟骨疾患の主な原因です 1,2。軟骨の主な細胞型である軟骨細胞は、恒常性を維持し、損傷に反応して修復を促進するために不可欠です3。軟骨細胞活性の変化は、軟骨の構造的完全性に影響を与えるだけでなく、炎症反応や進行性組織変性も誘発します4。したがって、軟骨細胞の生物学的特性を詳細に調査することは、これらの疾患の病因を解明するために非常に重要です。
近年、炎症反応における軟骨細胞の役割がますます注目されています。研究によると、IL-1β や腫瘍壊死因子-α (TNF-α) などの炎症性サイトカインが軟骨細胞の代謝プロセスを著しく損ない、その結果、マトリックス分解酵素の発現が増加し、マトリックス合成が減少することが示されています 5,6,7。これらの変化は、最終的に軟骨の段階的な変性と関節機能障害につながります。したがって、in vitro モデル内の病理学的条件下での軟骨細胞の生物学的変化を調査することが特に不可欠になっています。従来の2次元(2D)単層培養に基づいて、3次元(3D)軟骨細胞培養とオルガノイド技術の最近の進歩は、軟骨関連の研究にますます採用されています。これらの洗練されたシステムは、より生理学的に関連する微小環境を提供し、疾患の状況における軟骨細胞の挙動に関する貴重な洞察を提供します8。
細胞源の選択は、in vitroの所見が関節の病態生理学を正確に再現しているかどうかを決定します。不死化軟骨細胞株や軟骨外植片とは異なり、初代軟骨細胞は、関節軟骨の天然の遺伝的背景、機械感受性カルシウムシグナル伝達経路、表現型の安定性を保持しているため、常在軟骨細胞の軟骨形成能力と生物学的挙動をより厳密に反映する優れた軟骨形成能力と生物学的挙動を示します9.初代軟骨細胞とATDC5細胞株の間で、カルシウムシグナル伝達源と主要なイオンチャネルおよび下流経路の体系的な違いが文書化されています10。したがって、関節の生理学または病理学を調査する場合、初代軟骨細胞を優先する必要があります。したがって、初代軟骨細胞の単離と培養を最適化することは、疾患関連生物学を正確にモデル化し、潜在的な治療薬を探索するために不可欠です11,12,13,14,15。それにもかかわらず、既存の方法は、消化が長引くために細胞生存率または表現型の完全性を損ないます16,17。
ここでは、マウス軟骨組織由来の初代軟骨細胞のin vitro単離および培養のためのプロトコルを記述し、これは迅速に十分な細胞を産出します。従来の低酵素濃度、長時間の消化プロトコルと比較して、この研究では酵素消化条件と組織前処理ステップが最適化されました。この最適化により、トリプシン処理による潜在的な細胞損傷を回避しながら、消化時間が6〜8時間に大幅に短縮されました15,17。この方法を使用すると、マウス軟骨組織の各mgから約1〜2×10〜3個の軟骨細胞を得ることができます。このプロトコルは、初代軟骨細胞を in vitro で単離および培養するための信頼できるガイドを提供し、軟骨疾患研究のための堅牢なモデルを提供します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
すべての動物実験は西安宏輝病院倫理委員会(第202309009号)によって承認され、実験手順は動物実験の置換、削減、改良の3R原則に厳密に準拠しました。
図1A は、試薬と機器の調製の概略図を示しています。 材料表 には、このプロトコルで使用される試薬と機器に関する情報が含まれています。
1.実験マウス
注:この研究では、4匹の3日齢野生型C57BL / 6Jマウスを使用しました。
- ケージを25°C±2°Cの一定温度、50%〜60%の湿度に維持し、12時間/ 12時間の明暗サイクルで維持します。特定の病原体フリー(SPF)グレードの無菌マウス飼料( 60Co照射で滅菌)と無菌水を 自由に提供します。
- 死 後 3日齢のマウス4匹から膝関節軟骨(~10 mg/マウス)を採取し、初代軟骨細胞を単離します。
2. 軟骨標本の採取と処理
- マウス処理と組織解剖
- 生後3日以内に新生マウスを安楽死させます。75%医療用アルコールで拭き取って体表面を除菌します。
- 滅菌手術器具でマウスの膝関節を分離します。それらを滅菌した1x PBSに入れます。
- 膝関節を取り巻く筋肉、骨、滑膜、その他の増殖性結合組織を滅菌手術器具で慎重に切除します。膝関節の軟骨組織のみを保持します。
- 組織標本を滅菌1x PBSで3回すすぎます。液体を捨てます。
注: 図1B は、軟骨組織の取得と前処理の簡略化された概略図を示しています。

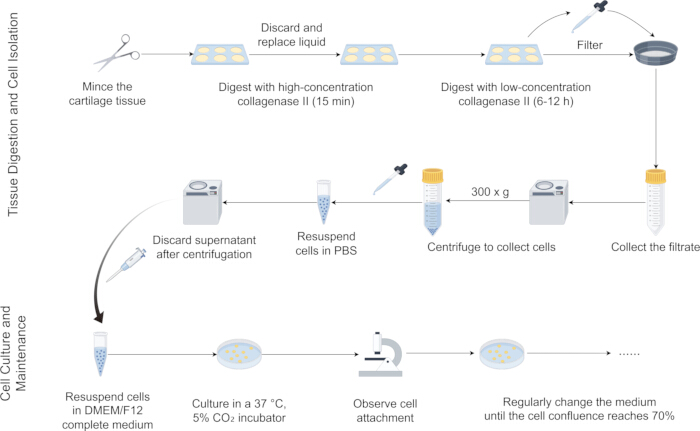
図1:材料調製と軟骨標本処理の簡素化されたワークフロー。 (A)試薬、消耗品、主要機器を含む試薬と機器のセットアップの概略図。(B)マウス膝関節からの軟骨組織を処理するための段階的なプロトコル。略語:PBS =リン酸緩衝生理食塩水。 この図の拡大版を表示するには、ここをクリックしてください。
3. 初代軟骨細胞の単離と培養
- 単離された軟骨組織を新しい6ウェル細胞培養プレートに移します。滅菌No.11外科用ブレードを使用して、組織を約0.25 mm3 のサイズの小片に細かく刻みます。予冷滅菌1x PBSで一度すすぎます。液体を捨てます。
- 高濃度コラゲナーゼII(25 mg / mL、滅菌ダルベッコの修飾イーグル培地/栄養混合物F-12 [DMEM / F12]基礎培地に溶解)を含む予熱(37°C)消化液2 mLを加えて、組織ブロックを覆います。
- 細胞培養プレートを加湿した5%CO2 インキュベーターで37°Cで15分間インキュベートし、酵素消化を行います。インキュベーション後、液体を廃棄します。
- 手順 3.2 と 3.3 を繰り返します。
注:高濃度酵素消化は予備段階です。組織を前消化し、その後の消化を改善するためにその構造を部分的に分解し、組織周辺からの切断によって存在する可能性のあるマトリックスの癒着を除去することを目的としています。 - 低濃度コラゲナーゼII(5 mg / mL、滅菌DMEM / F12基礎培地に溶解)を含む予熱(37°C)消化液2 mLを加えて、組織ブロックを覆います。
- 細胞培養プレートを37°Cの加湿5%CO2 インキュベーターで6〜8時間インキュベートして消化し、細胞分離の進行状況を観察します。溶解効率を高めるために、ゆっくりとした水平振とう(80〜120 rpm)または穏やかなピペッティングを時々行います。
注:新生児マウス組織の場合、細胞放出は約3時間で見られ、6〜8時間の間に完全な単離が達成可能である。6〜8時間のコラゲナーゼII処理中は、1時間ごとに溶解を観察し、明らかな組織塊が肉眼で見えず、細胞の90%が遊離して顕微鏡下で懸濁しているときに消化を終了します。消化過程で、液胞様軟骨細胞が軟骨組織塊から徐々に剥離していくのが光学顕微鏡下で観察されます。このステップを数回繰り返すことで、長時間の消化による軟骨細胞への損傷を最小限に抑えることができ、消化液を新鮮な低濃度コラゲナーゼII消化液に置き換えて細胞収量を増やすことができます。 - すべての消化産物を100 μmのセルストレーナーを通して滅菌50 mL遠心分離管にろ過します。
注:100 μmの細胞ストレーナーを使用して、軟骨細胞凝集体の損失を防ぎ、収量を増加させます。残留組織断片は培地交換中に除去されます。 - 細胞培養プレートを滅菌1x PBSですすぎます。セルストレーナーを再度ろ過します。
- 前のステップのすべての濾液を15 mL遠心分離管に集めます。ブレーキを切った状態で室温で300× g で5分間遠心分離します。遠心分離後に上清を廃棄します。
- 2 mLの滅菌1x PBSを加え、ピペットで軽く吹き付けて吸引して沈殿物を穏やかに再懸濁させます。滅菌15 mL遠心分離管に移します。ブレーキを切った状態で室温で300× g で5分間遠心分離します。遠心分離後に上清を廃棄します。
- ステップ4.10の沈殿物を、15%ウシ胎児血清(FBS)および1%P / Sを含む2 mLの新しく調製された滅菌DMEM / F12完全培地で再懸濁します。血球計算盤を使用して採取した細胞懸濁液を数え、細胞を2〜2.5×10⁵ 細胞/ cm2の滅菌10 cm培養皿にプレートします。完全培地で最終容量10 mLまで補充します。
注:低密度または中密度の播種は、関節軟骨細胞の線維芽細胞への表現型シフトにつながる可能性があるため、軟骨細胞播種密度は2〜2.5×10⁵ 細胞/ cm2である必要があります。単離された初代細胞の増殖活性と生存率は、オプションのMTTアッセイまたはトリパンブルー排除染色(オプションのステップ)を使用して評価できます。 - 加湿した5%CO2 インキュベーターで37°Cでインキュベートします。
 | ||||
| | |
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
図1、図2、および図3に示すように、プロトコルを実行し、マウス膝関節から初代軟骨細胞を正常に単離しました。約10mgの新生児マウス軟骨から、生存率>90%の約1×10 4細胞が得られました。in vitro培養の初日に、初代マウス軟骨細胞は丸みを帯びた形態を示し、ほとんどの細胞は浮遊状態にあり、まだ培養皿の底に完全に付着していませんでした。2日目に、一部の細胞が培養皿に付着し始め、徐々にin vitro環境に適応しました。5日目に、DMEM/F12培地中の細胞は堅調な増殖を示し、ほとんどすべての細胞が付着し、正常な増殖を示しました(図4A)。約3日ごとに、細胞は1つの増殖サイクルを完了し、細胞形態は典型的な多角形を示し、高い生存率と高い増殖率を示しました。
COL2A...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
初代軟骨細胞の単離と培養は、軟骨疾患の病態を解明するために不可欠です22。初代軟骨細胞培養では、潜在的な細胞損傷を軽減しながら細胞外マトリックスの分解のバランスをとるため、コラゲナーゼ濃度と消化時間を最適化することが重要です17。本明細書では、マウス軟骨組織から初代軟骨細胞を単離するための信頼性が高く再現性のある方法について説明します。この方法を用いて、マウス軟骨組織1mgごとに10×3軟骨細胞を約1〜2個得ることができる。このアプローチにより、十分な数の初代軟骨細胞を迅速に単離することができ、再現性と実用性が高くなります。単離された軟骨細胞は、in vitro で典型的な形態と機能的特徴を維持するため、軟骨細胞遺伝子発現の変化の調査と軟骨代謝に関連する機能アッセイの実施が容易になります。さらに、これらの細胞は、3D軟骨培養実験8などの高度なアプリケーションに利用できます。
初代軟骨細胞を単離するため...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者は、利益相反がないことを宣言します。
謝辞
この研究は、中国国家自然科学基金(第82370909号)の支援を受けました。 図1、 図2、 図3 はFigdrawで作成しました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1×PBSパウダー(2 L) | サービスバイオ | G0002-2L | |
| 100 mm細胞培養皿 | サービスバイオ | CCD-100 | |
| 100 & ムー;Mセルふるい | サンゴンバイオテック | F613463-0001 | |
| 15mLコニカル遠心分離管(滅菌、酵素フリー) | サービスバイオ | EP-1501-J | |
| 50mLコニカル遠心分離管(滅菌、酵素フリー) | サービスバイオ | EP-5001-J | |
| 6ウェル細胞培養プレート | サービスバイオ | CCP-6H | |
| 抗COL2A1ウサギポリクローナル抗体 | 免疫ウェイ | YT1022 | 一次抗体;白白:1/500 |
| 抗GAPDHマウスモノクローナル抗体 | プロテインテック | 60004-1-IG | 一次抗体;白熱: 2000年1月 |
| 抗MMP13ウサギポリクローナル抗体 | 免疫ウェイ | YT2796 | 一次抗体;白白:1/1000 |
| 無菌超清浄ベンチ | サーモフィッシャー | 51029704 | |
| 細胞培養用インキュベーター | サーモフィッシャー | 51033782 | |
| コラゲナーゼII | ソーラービオ | C8150型 | |
| カスタムプライマー(Gapdh、Col2a1、Mmp13) | サンゴンバイオテック | Primer BLASTを使用して設計 | |
| DMEM/F12 媒体 | ハイクローン | SH30023.01 | |
| ウシ胎児血清 | エクスセル | FCS500 | |
| HRP-Goat 抗マウスポリクローナル抗体 | 免疫ウェイ | RS0001 | 二次抗体;白熱:1/10000 |
| HRP-ヤギ抗ウサギポリクローナル抗体 | 免疫ウェイ | RS0002 | 二次抗体;白白:1/10000 |
| 逆位相差顕微鏡 | オリンポス | CKX53 | |
| マイクロピペット | サーモフィッシャー | ||
| 小型卓上遠心分離機 | スンネ | SN-TDL-6 | |
| No.11 サージカルブレード | サービスバイオ | QXJZ-11型 | |
| ペニシリン-ストレプトマイシン溶液(100X) | ビヨタイム | C0222 | |
| 小動物解剖器具セット | サービスバイオ | QXTZ01 |
参考文献
- Makris, E. A., Gomoll, A. H., Malizos, K. N., Hu, J. C., Athanasiou, K. A. Repair and tissue engineering techniques for articular cartilage. Nat Rev Rheumatol. 11 (1), 21-34 (2015).
- Bierma-Zeinstra, S., Van Middelkoop, M., Runhaar, J., Schiphof, D. Nonpharmacological and nonsurgical approaches in OA. Best Pract Res Clin Rheumatol. 34 (2), 101564(2020).
- Urlic, I., Ivkovic, A. Cell sources for cartilage repair-biological and clinical perspective. Cells. 10 (9), 2496(2021).
- Murphy, M. P., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhao, K., Ruan, J., Nie, L., Ye, X., Li, J. Effects of synovial macrophages in osteoarthritis. Front Immunol. 14, 1164137(2023).
- Wang, B. W., et al. Aucubin protects chondrocytes against IL-1β-induced apoptosis in vitro and inhibits osteoarthritis in a mouse model. Drug Des Devel Ther. 13, 3529-3538 (2019).
- Kuswanto, W., Baker, M. C. Repurposing drugs for the treatment of osteoarthritis. Osteoarthritis Cartilage. 32 (8), 886-895 (2024).
- Heywood, H. K., Thorpe, S. D., Jeropoulos, R. M., Caton, P. W., Lee, D. A. Modulation of sirtuins during monolayer chondrocyte culture influences cartilage regeneration upon transfer to a 3d culture environment. Front Bioeng Biotechnol. 10, 971932(2022).
- Piñeiro-Ramil, M., et al. Generation of human immortalized chondrocytes from osteoarthritic and healthy cartilage : A new tool for cartilage pathophysiology studies. Bone Joint Res. 12 (1), 46-57 (2023).
- Li, W., Zhou, Y., Han, L., Wang, L., Lucas Lu, X. Calcium signaling of primary chondrocytes and atdc5 chondrogenic cells under osmotic stress and mechanical stimulation. J Biomech. 145, 111388(2022).
- Zhao, Y., et al. Protein folding dependence on selenoprotein m contributes to steady cartilage extracellular matrix repressing ferroptosis via PERK/ATF4/CHAC1 axis. Osteoarthritis Cartilage. 33 (2), 261-275 (2025).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- Tang, H., et al. The IRF1/GBP5 axis promotes osteoarthritis progression by activating chondrocyte pyroptosis. J Orthop Translat. 44, 47-59 (2024).
- Bittner, N., et al. Primary osteoarthritis chondrocyte map of chromatin conformation reveals novel candidate effector genes. Ann Rheum Dis. 83 (8), 1048-1059 (2024).
- Ramser, A., Greene, E., Rath, N., Dridi, S. Primary growth plate chondrocyte isolation, culture, and characterization from the modern broiler. Poult Sci. 102 (1), 102254(2023).
- Mao, J., et al. Insufficiency of collagenases in establishment of primary chondrocyte culture from cartilage of elderly patients receiving total joint replacement. Cell Tissue Bank. 24 (4), 759-768 (2023).
- Lau, T. T., Peck, Y., Huang, W., Wang, D. A. Optimization of chondrocyte isolation and phenotype characterization for cartilage tissue engineering. Tissue Eng Part C Methods. 21 (2), 105-111 (2015).
- Pagani, S., et al. Rna extraction from cartilage: Issues, methods, tips. Int J Mol Sci. 24 (3), 2120(2023).
- Goldring, M. B., Otero, M., Tsuchimochi, K., Ijiri, K., Li, Y. Defining the roles of inflammatory and anabolic cytokines in cartilage metabolism. Ann Rheum Dis. 67 (Suppl 3), 75-82 (2008).
- Wang, G., et al. TGFbeta attenuates cartilage extracellular matrix degradation via enhancing FBXO6-mediated MMP14 ubiquitination. Ann Rheum Dis. 79 (8), 1111-1120 (2020).
- Pang, Y., Zhao, L., Ji, X., Guo, K., Yin, X. Analyses of transcriptomics upon IL-1β-stimulated mouse chondrocytes and the protective effect of catalpol through the NOD2/NB-κb/MAPK signaling pathway. Molecules. 28 (4), 1606(2023).
- Naranda, J., Gradisnik, L., Gorenjak, M., Vogrin, M., Maver, U. Isolation and characterization of human articular chondrocytes from surgical waste after total knee arthroplasty (TKA). PeerJ. 5, e3079(2017).
- Koyama, N., et al. Pluripotency of mesenchymal cells derived from synovial fluid in patients with temporomandibular joint disorder. Life Sci. 89 (19-20), 741-747 (2011).
- Lawrence, J. E. G., et al. Single-cell transcriptomics identifies chondrocyte differentiation dynamics in vivo and in vitro. Dev Cell. , (2025).
- Huang, C., et al. Single-cell transcriptomic analysis of chondrocytes in cartilage and pathogenesis of osteoarthritis. Genes Dis. 12 (2), 101241(2025).
- Wu, C. L., et al. Single cell transcriptomic analysis of human pluripotent stem cell chondrogenesis. Nat Commun. 12 (1), 362(2021).
- Zhang, H., Huang, J., Alahdal, M. Exosomes loaded with chondrogenic stimuli agents combined with 3d bioprinting hydrogel in the treatment of osteoarthritis and cartilage degeneration. Biomed Pharmacother. 168, 115715(2023).
- Mahapatra, C., Jin, G. Z., Kim, H. W. Alginate-hyaluronic acid-collagen composite hydrogel favorable for the culture of chondrocytes and their phenotype maintenance. Tissue Eng Regen Med. 13 (5), 538-546 (2016).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。