この記事では、ウシテカ細胞と顆粒膜細胞の共培養モデルを紹介します。この方法は、卵胞内の体細胞間のパラクリンコミュニケーションと基質輸送の研究に焦点を当てた分析の信頼できる基盤として機能する可能性があります。
この記事について
サマリー
要約
顆粒膜(GC)とテカ細胞(TC)の信頼性の高い共培養は、ウシ卵胞の両方の細胞コンパートメント間の相互作用、シグナル伝達経路、および基質交換のより包括的な理解を促進する可能性があります。市販の細胞培養インサートを利用して、ウシGCとTCの再現性のある共培養モデルが確立されました。初代テカ細胞および顆粒膜細胞は、細胞株と比較して、挿入膜への付着にかなり長い時間を要することが観察されました。最初に、TC を逆さまのインサート膜に播種し、培地の漏れを防ぐために接種容器として機能する切り捨てられたチューブを使用しました。72時間のインキュベーション期間の後、インサートを反転させ、GCを膜の反対側で培養できるようにしました。次に、この共培養を37°Cおよび5%CO2でさらに6日間インキュベートし、1日おきに培地交換を行いました。マーカー遺伝子の発現は細胞型特異的なパターンを示し、 CYP17A1 はTCで非常に多く、GCでは発現しませんでした。逆に、 CYP19A1 はGCで高レベルを示し、TCで低レベルしか示さなかった。ホルモン分析は、エストラジオールの合成によって証明されるように、生理学的共培養システムの存在を裏付けました。この修正された共培養モデルは、卵胞の体細胞間のパラクリンシグナル伝達と基質輸送の再現性のある研究をサポートします。
概要
卵胞形成中、黄体形成ホルモン(LH)の急増は卵巣の生理学的変化のカスケードを引き起こし、最終的には排卵中に成熟卵母細胞の放出につながります1,2。このプロセスは卵胞体細胞によって厳密に調節されており、卵母細胞の成熟に不可欠なサポートを提供し、適切な排卵機能を保証します3。卵胞は、顆粒膜細胞 (GC) の内層とテカ細胞 (TC) の外層の 2 種類のステロイド生成体細胞で構成されています。これらの中で、GC は LH サージ後に最も顕著な形態学的および機能的変化を遂げ、卵胞発達の最終段階を調整する上で重要な役割を浮き彫りにしています4。したがって、GC は、卵胞形成、排卵、および黄体形成に影響を与える可能性のある要因の分析において非常に興味深いものです。
エストラジオール活性状態を模倣するウシGCの細胞培養モデルは、以前に確立されていました5,6,7,8,9,10,11。この無血清培養モデルにより、GC生理学の信頼性の高い分析と、シグナル伝達経路、遺伝子調節、およびホルモン合成におけるエフェクター分析が可能です12,13,14。しかし、卵胞構造は、2細胞2ゴナドトロピン仮説15によって強調されているように、はるかに複雑です。これは、ステロイド合成が2つの層間で区画化されるという文脈における細胞型の依存性と相互接続の性質を強調しています。
多くの研究で、以前に確立されたGC単一培養システム16、17、18に類似したTC培養モデルが記載されています。しかし、ブタテカ細胞と顆粒膜細胞の共培養システムが報告されており、両方の細胞集団が1つの皿でGCとTCの4:1の比率で培養されます19,20,21。このモデルでは、顆粒膜細胞とテカ細胞の間に機能系と相互作用があることを示し、単一培養よりも共培養系でより多くの量のエストラジオールが明らかになりました。ただし、このモデルでは、顆粒膜細胞とテカ細胞の間の相互作用と基質交換を適切に分析できないことに注意する必要があります。したがって、GCとTCの分子レベルを互いに独立して分析することは、精巧な選別手順なしではほとんど不可能であり、それ自体が細胞生理学に影響を与える可能性があります。さらに、このモデルは、GCとTCが基底膜によって分離されているLHサージ前の状況を正確に再現できない可能性があることを考慮することが重要です3。ウシでは、両方の細胞型がコラーゲン膜の両側で培養され、それによってin vivoの状況をより正確に反映する膜ベースの細胞培養システムが提案されました22,23,24,25,26。
この方法は、膜ベースのシステムの初期概念を適応させ、ウシのGCとTCの細胞培養インサートとの共培養モデルを確立し、両方の細胞コンパートメント間のパラクリンシグナル伝達の将来の研究を可能にすることを目的としました。提示された方法は、カスタムベースのメンブレンシステムの代わりに市販の吊り下げ式細胞培養インサートを利用しており、再現性の向上、品質の標準化、製品の安定性の向上などの利点を提供します。このアプローチにより実験間の一貫性が確保され、濾胞細胞の相互作用を研究する研究者にとって貴重なツールとなります。培養手順には、インサートの下側に1.7〜1.8 x 10⁵個のテーカ細胞を最初に播種し、続いて反転後の上面に約1.0 x 10⁵個の顆粒膜細胞を播種し、72時間のプレインキュベーションを行います。培養物は、標準条件(37°C、5%CO2)で定義された培地に維持され、培地は1日ごとに交換されます。コンパートメント間でパラクリン交換を可能にするために、ポリエチレンテレフタレート(PET)などのポリエステル製の0.4μm細胞培養インサートを使用しました(市販)。この細孔サイズの膜は、細胞の遊走を防ぎながら、ホルモン、成長因子、タンパク質などの可溶性高分子の拡散を可能にします27,28。
パラクリンコミュニケーションを維持しながら空間分離を可能にすることにより、この共培養システムは、顆粒膜とテカ細胞の相互作用、シグナル伝達経路、および基質交換を調査するための生理学的に関連する環境を提供します。このモデルは、ホルモン調節、遺伝子発現解析、薬物検査など、制御された条件を必要とする研究に特に適しています。卵胞動態、生殖生理学、または卵巣障害に関心のある研究者は、この方法が研究に適用できると感じるかもしれません。さらに、標準化されたインサートを使用すると、培養期間、細胞の種類、処理条件の変更など、さまざまな実験ニーズに簡単に適応できます。
プロトコル
ウシの卵巣は、地元の商業食肉処理場から入手されました。この実験セットアップでは、卵巣の準備は受け取ってから2時間以内に行われます。食肉処理場の副産物の収集は、ドイツの法律によれば倫理的承認を必要としません。
注:ウシGCの単離および凍結保存は、以前のメソッドレポート6 ですでに説明および示されており、それに応じて実行できます。
1. 卵胞郭清のための試薬の調製とセットアップ
- 卵巣輸送用に100 IUペニシリン、0.1 mg/mLのストレプトマイシン、および0.5 μg/mLのアムホテリシンを添加した1x PBS(pH 7.4)を調製します。溶液は4°Cで最大4週間保存できます。
- 25 mM HEPES、100 IUペニシリン、0.1 mg/mLのストレプトマイシン、および0.5 μg/mLのアムホテリシンを添加した10xハンクス塩緩衝液を含む消化溶液を調製します。消化液は4°Cで2〜3週間保存できます。
- 計画された解剖卵胞ごとに1.5 mLのチューブに1 mLの消化液を充填し、溶液を37°Cに予熱します。
- 調製の直前に10 μLのコラゲナーゼNB8を加えて、消化液の濃度を0.1%にします。
- 準備、隔離、洗浄手順のために、次の皿を準備します。
- 解剖のために卵巣を配置するための最小直径3 cmのガラス皿。
- 洗浄用の1 mL 1x PBS(抗生物質を添加)を含む6ウェルプレート。
- 約10 μLの消化液を含む12ウェルディッシュ。
- 凍結保存のために、80%の子牛胎児血清(FCS)と20%のDMSOからなる凍結溶液を調製します。
注:凍結保存用のDMSOの最終濃度は10%になります。
2.卵胞の解剖とそれに続くウシテカ細胞の消化
- 層流ベンチの下で細胞消化手順と細胞培養作業を実行します。
- 卵巣を1x PBS(抗生物質を添加、ステップ1.1を参照)で2〜3回洗浄し、表面から血液やその他の残留物を取り除きます。卵巣をタンブラーに入れ、卵巣が覆われるように1x PBSで満たし、その後溶液を捨てます。卵巣がきれいになるまで、この手順を3〜4回繰り返します。
- 1つの卵巣をガラス皿に入れ、定規で測定した5〜11 mmの卵胞を選択して解剖します。
- 3 mLのシリンジと18 Gの針で、選択した1つの卵胞に穴を開けて卵胞液を吸引します。卵胞液を廃棄します。
- 吸引中に針が挿入された点から始めて、はさみで卵胞を切り開きます。正確に切断するには双眼鏡を使用してください。
- 卵胞の刃先でピンセットを使用して、最も内側の層であるテカインターナをつかみます。
- 開いた毛包壁の内側から内側を剥がしてみてください。
注:卵胞の年齢や段階によっては、テカ細胞層をより簡単に剥がすことができ、その結果、無傷のテカ層が得られます。
- 1x PBS(抗生物質を添加、ステップ1.1を参照)で満たされた皿にテカ細胞層を置き、残りの顆粒膜細胞を除去します。
- メスで膜の内側から顆粒膜細胞をそっとこすります。細胞は大きなクラスターで簡単に分離する必要があります。
- テカ細胞層を1x PBSで満たされた新しい皿に入れて洗浄します。
- 新鮮な1x PBSを旋回させてメンブレンを注意深くすすぎ、緩い細胞を除去します。
注:次のステップ以降は、層流ボックスの下で作業します。
- テカインターナを12ウェルプレートの調製した消化液に移し(ステップ1.2および1.3.3を参照)、メスを使用しておそらく1〜3 mmの小片に切ります。
注:異なる起源の組織の詰まりを防ぐために、異なる卵胞からテカ細胞を独立して消化することをお勧めします。 - テカスニペットを準備した1.5 mL反応チューブに移します(ステップ1.2.1および1.2.2を参照)。テカを魔法瓶振とうインキュベーターで37°Cで800rpmで45〜50分間インキュベートします。
- 30分間振とうた後、反応チューブを3〜5秒間ボルテックスし始め、振とうインキュベーターに戻します。
- 残りのインキュベーション時間でこのステップを3〜4回繰り返します。
- インキュベーション後、消化した細胞をピペットで再懸濁します。
- 50 mLチューブに100 μmの細胞ストレーナーを置いてろ過して未消化組織を除去し、すぐに細胞の計数と凍結保存を進めて消化培地を除去します。
3. TCの計数と凍結保存
- 生細胞の数を数えるには、1.5 μLの0.25%トリパンブルー溶液を入れたチューブを準備します。生細胞は染色されないままですが、死んだ細胞は壊れた細胞バリアを通ってトリパンブルーがアクセスするため青く見えます。
- 消化した細胞懸濁液15 μLをトリパンブルー溶液に加え、穏やかに混合します。
- 10 μLの混合物を血球計算盤の両方のチャンバーに入れます。チャンバーごとに1つの大きな正方形にある生きている(=無色の)細胞の数を数えます。
- 標準的なガイドラインに従って、両方のチャンバーの正方形の平均で生細胞の数を決定します。生細胞の割合は卵巣によって異なる場合があることに注意してください。
- テカ細胞懸濁液の未消化部分を凍結し(ステップ2.9を参照)、非培養コントロールとして意図した比較を行い、GCとの潜在的な相互汚染の評価を実行します( 図2を参照)。
- 100 μmの細胞ストレーナー(ステップ2.10を参照)に残っている各解剖された内部テカの未消化組織を標識チューブに移します。
- -80°Cで保管する前に、チューブを液体窒素で衝撃凍結します。
- 分離されたテカ細胞の凍結保存を実行して、特に必要な細胞数に関して、細胞培養の計画の改善を促進します。
- 消化した細胞懸濁液を室温(平均20°C)で500 x g で5分間遠心分離します。上清を捨てます。
- 細胞ペレットを1mLの100%FCSに慎重に溶解します。1 mLの凍結培地(ステップ1.4を参照)を細胞溶液に加えます。凍結保存用のDMSOの最終濃度は10%です。混合物を指定された2 mLクライオバイアルに移します。
- バイアルを低温装置に入れて、温度の低下を制御します。このセットアップでは、特定の凍結容器が使用され、-80 °C で少なくとも 4 時間置いた場合の凍結速度が -1 °C/分保証されました。 その後、バイアルは液体窒素貯蔵システムに保管できます。
4. 細胞培養作業の準備
- 1.5 mLの反応チューブから蓋を切り取ります。次に、メス(できれば温めた)または適切なホースカッターを使用して、反応チューブを開口部から約1cm切断します。その後、切断したチューブと蓋をオートクレーブする。蓋は、細胞培養の後続の手順に必要になる場合があります(ステップ5.5を参照)。
注:1.5 mLチューブが選択したインサートにしっかりとフィットしていることを確認してください。 - 培養物へのGCおよびTCの付着のために、インサートを0.02%のコラーゲンRでコーティングしてください。
注:滅菌層流フードの下でコーティングする手順を実行します。- 精製水(細胞培養に適切)を使用して、0.02%コラーゲンR溶液を調製します。必要な細胞培養インサートごとにこの溶液を80 μL調製します。
- インサートを逆さまにして、24ウェルプレートの蓋に入れます。40 μLのコラーゲンR溶液をインサートのメンブレンにそっと加え、所定の位置に留まるようにします。コラーゲンR溶液を層流フードの下で4〜5時間乾燥させます。
- インサートを回して24ウェルプレートのウェルに吊るし、2番目の面を40 μLのコラーゲンR溶液で再度コーティングします。溶液を再び4〜5時間乾燥させます。
- インサートにUV光を10〜15分間照射して、汚染を減らします。
- インサートは、24ウェルプレート内(できれば滅菌デリバリーバッグ内)および4°Cの冷蔵庫に保管する必要があり、最大4週間使用できます。
- メディア8,10を次のように準備します。
注:無菌層流フードの下で培地調製の手順を実行します。- α-Minimial Essential Medium(α-MEM)に、2 mM L-グルタミン、0.084%重炭酸ナトリウム、0.1%BSA、20 mM HEPES、4 ng/mL亜セレン酸ナトリウム、5 μg/mLトランスフェリン、10 ng/mLインスリン、および1 mMの非必須アミノ酸を補充します。
注:一貫性を確保するために、実験全体に十分な培地を事前に準備することをお勧めします。調製した培地は4°Cで保存できます。 説明されているセットアップでは、細胞培養ウェルあたり750 μLを使用します。 - さらに、100 IUのペニシリン、0.1 mg/mLのストレプトマイシン、および0.5 μg/mLのアムホテリシンを調製した培地に加える。
- 培地をウォーターバスで37°Cに予熱します。
注:培地の予熱後、抗生物質は約48時間安定です。したがって、加温に必要な量の培地のみを分注します。 - さらに、生理学的細胞環境7,8,10,11のために、α-MEMに20 ng / mLの卵胞刺激ホルモン(FSH)、50 ng / mLのR3 IGF-1、および2 μMアンドロステンジオンを補充します。
注:これらの成分は、培養または培地交換の開始直前に追加してください。活性の低下を防ぐためには、FSHおよびIGF-1ストック溶液の凍結融解サイクルを繰り返すことを避けることが不可欠です。
- α-Minimial Essential Medium(α-MEM)に、2 mM L-グルタミン、0.084%重炭酸ナトリウム、0.1%BSA、20 mM HEPES、4 ng/mL亜セレン酸ナトリウム、5 μg/mLトランスフェリン、10 ng/mLインスリン、および1 mMの非必須アミノ酸を補充します。
5. TCとGCの共培養
- テカ細胞の培養のために接種チャンバーを準備します(図1A)。
- コーティングされたインサートを逆さまにして、より大きなプレート(12ウェルプレートなど)に入れます。
- 切断してオートクレーブ滅菌したチューブを逆さまのインサートに置きます(ステップ4.1を参照)。メディアの漏れを防ぐために、チューブがインサートにしっかりと固定されていることを確認してください。
- 凍結保存されたテカ細胞を37°Cのウォーターバスで3〜5分間急速に解凍し、解凍後すぐに細胞懸濁液を予熱培地に移します。
- テカ細胞懸濁液を室温(平均20°C)で500 x g で3分間遠心分離し、上清を廃棄します。補充したα-MEMを加え、細胞を慎重に再懸濁します。
- 1.7-1.8 x 10⁵細胞を 接種チャンバーに播種し、最終容量の200 μL培地に播種します。条件ごとに少なくとも 3 つの技術的反復を含めます。
- 細胞培養皿を蓋で閉じるには、接種チャンバーを使用する際に皿と蓋の間の距離を広げる必要がある場合があります。
- 1.5 mL反応チューブからカットおよびオートクレーブ滅菌したキャップを使用し(ステップ4.1を参照)、細胞培養プレートの各コーナーに配置します。キャップはプレートの蓋をわずかに持ち上げるためのサポートとして機能し、培養皿を適切に覆いながら接種チャンバーに十分なスペースを提供します。
- ウェルプレートを慎重に閉じ、安定した状態を保ち、膜やチャンバーに触れないようにします。
- プレートを加湿した細胞培養インキュベーターにそっと移します。
- テカ細胞を5%CO2 とともに37°Cで3日間インキュベートし、膜上に細胞を付着させます。
- 培養の3日後にインサートを回して、GCによる播種の準備をします(図1B)。
- 24ウェルプレートを準備し、目的の各ウェルに500 μLの培地を充填します。
- ピペットを使用して、接種チャンバーからすべての培地を取り除きます。ピンセットでインサートから接種チャンバーを慎重に取り外します。
- テカ細胞が取り付けられたインサートを準備した24ウェルプレートに入れ、TCが下向きになるようにします(詳細については 、図1B を参照)。
- 凍結保存から顆粒膜細胞を播種するには、手順5.2および5.3を実行します。
- インサート内に配置された250 μLの培地の最終容量に、インサートあたり約1.0 x 10⁵ 個の細胞を播種します。
- 続いて、共培養物を37°Cで5%CO2 とさらに6日間インキュベートします。
- GCシーディング後、培地の3分の2のみが交換される場合は、48時間ごとに培地交換を行います。これにより、手順のストレスが軽減され、新しく追加されたメディアに適応するのに役立ちます。
6. 培養テカ細胞と顆粒膜細胞のその後の分析
- 位相差顕微鏡を使用して細胞培養全体でテカ細胞と顆粒膜細胞の形態学的評価を行い、両方の細胞型の付着と拡散を監視します( 図3を参照)。
- ステロイドホルモン分析では、培地を回収し、-20°Cで凍結します。 適切な方法を使用して、目的のステロイドホルモンの濃度を分析します(たとえば、このワークフローでは、エストラジオールをRIA 5,29を介して分析しました)。
注:ステロイドホルモン分析は、培養物の生理学的状態を評価するのに役立ちます7。 - 遺伝子発現を解析するには、まず適切な技術(キット手順など)でRNAを単離します。
注:単離手順中、両方の細胞型が互いに独立して調製されることに注意してください。- 膜の両側から細胞を適切な試薬(トリプシンやアキュターゼなど)で解離させます。解離培地をインサート(例:200 μLのアキュターゼ)とプレートのウェル(例:500 μLのアキュターゼ)の両方に配置し、膜が解離培地で完全に囲まれるようにします。
- 顆粒膜細胞はインサートから収集しますが、分離したテーカ細胞はウェルから収集できます。すべての細胞型を1.5mLチューブに移します。
- 細胞を500 x g で3分間遠心分離し、上清を廃棄します。
- 細胞を溶解し、RNA単離を行い、その後RNA濃度を測定します。
注:ほとんどの単離手順では、細胞の溶解後にプロトコルを中止できるため、サンプルを-20°Cで短期間保存できます。より長く保存するには、溶解した細胞を-80°Cで保存できます。 - 続いて、cDNAを合成して、qPCRによって目的の転写産物の存在量を測定します。cDNA合成では、ランダムヘキサマーおよびオリゴdTプライマーを含む100 ngのRNAを使用します。qPCRについては、前述のように遺伝子特異的プライマーを用いた5,30。簡単に言うと、サイクル条件は、95°Cで5分間のプレインキュベーション、95°Cで20秒間の40サイクル変性、60°Cで15秒間のアニーリング、72°Cで15秒間の伸長、および10秒間のシングルポイント蛍光取得でした。5つの異なる濃度(5x10-12-5x10-16 g DNA/反応)の外部標準を共増幅しました。転写産物の存在量を正規化するために、RPLP0 と TBP の幾何平均を計算しました。
- 潜在的な相互汚染を排除するには、新たに単離されたTCおよびGCの細胞調製物から CYP17A1 および CYP19A1 細胞特異的マーカーの遺伝子発現を分析することにより、テカおよび顆粒膜細胞調製物の純度を評価します(図2)。
注:統計的評価には、異なる細胞培養の少なくとも3回の反復を含める必要があります。この実験セットアップでは、正規性と分散をチェックした後、t 検定または一元配置分散分析が実行されました。
結果
TCとGCは、卵胞区画化に基づく確立された機械的分離技術を使用して単離されましたが、クロスコンタミネーションのリスクを排除するために、細胞型特異的遺伝子の発現 CYP17A1 および CYP19A1 が評価されました。 CYP17A1 は新たに単離されたTCでのみ発現し、 CYP19A1 は主に新たに単離されたGCで発現しました(図2)。
共培養システムは、メンブレンインサートの反対側にあるウシテカ細胞と顆粒膜細胞の区画化を可能にし、それによってin vivoの空間組織を模倣します。培養3日後、TCはコラーゲンでコーティングされたインサート膜の表面に広がり、平らで細長い形態を示し、付着が成功したことを示しています(図3A)。9日間全体にわたって単独で培養した場合、TCは増殖し続け、9日目までに合流に達しました(図3B)。対照的に、コラーゲンでコーティングされたインサート膜上で6日間単独で培養されたGCは、in vitroでのGCに特徴的な線維芽細胞様表現型を発達させました(図3C)。さらに、前述のように、GCはクラスターを形成する傾向があり、これは培養におけるこれらの細胞の典型的な特徴である5,7,31,32。共培養システムでは、それぞれの時間一致単一培養と比較して、TCまたはGCのいずれにも明らかな形態学的違いは観察されず(図3D)、インサートベースの環境が正常な細胞挙動を維持していることを示しています。しかし、技術的な制限により、共培養の顕微鏡的評価は、特に他の細胞から独立してTC形態を区別および評価する上で、依然として困難です。これらの制限を克服するために、免疫染色用の細胞特異的抗体がない場合の細胞同定のための代替戦略の探索に従って、細胞固定のための最適化されたプロトコルが現在取り組まれています。
共培養システムの機能は、ホルモン産生とTCおよびGCの主要なマーカー遺伝子の発現を分析することによって評価され33,34、細胞型特異的なステロイド生成の役割が確認されました。GC単一培養モデルと共培養モデルを比較すると、in vitroで生成された同様のエストラジオール(E2)レベルが明らかになりました。しかし、予想通り、TC単一培養は、テカ細胞が独立してE2を合成する能力を欠いていると述べている2細胞-2-ゴナドトロピン仮説(図4A)15と一致して、無視できる量のE2しか産生しませんでした。
培養条件の生理学的関連性をさらに評価するために、主要なマーカー遺伝子33 の発現を調べました。2細胞2ゴナドトロピン仮説に従って、 CYP19A1 は主にGCで発現していましたが、 CYP17A1 は主にTCで検出され、単培養条件と共培養条件の両方で観察されたパターンでした(図4B、C)。特に、エストラジオール濃度に差は観察されなかったにもかかわらず、 CYP19A1 の転写産物存在量は、GC単一培養と比較して共培養システム内のGCで高かった。
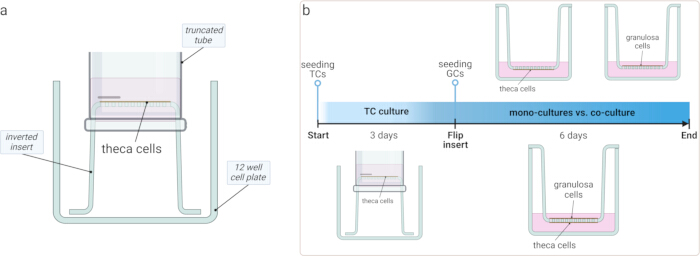
図1:細胞培養セットアップの概略図。 (A)最初の培養期間を通じて培地の漏れを防ぐために、逆インサートの切り捨てられたチューブを利用するカスタムビルドの接種チャンバーを示す図。(B)実験手順のタイムライン:TCを逆さまのインサート上で3日間培養し、付着させました。インサートを裏返し、GCを反対側に播種し、さらに6日間培養しました。この研究では、別々に培養された TC と GC を TC-GC 共培養システムと比較しました。 この図の拡大版を表示するには、ここをクリックしてください。
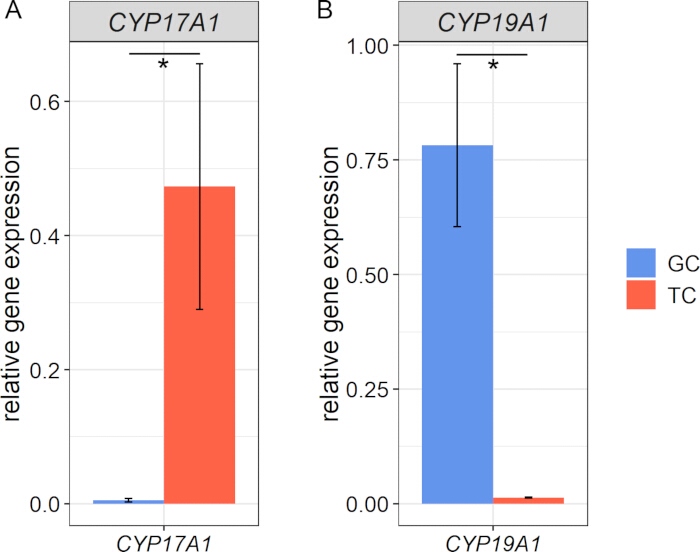
図2:新たに単離された顆粒膜細胞およびテカ細胞における細胞型特異的マーカーの遺伝子発現。 (A) CYP17A1 はTCでのみ発現し、(B) CYP19A1 は主にGCで検出され、培養前に単離された細胞集団の特異性と初期純度を確認しました。データは、参照遺伝子 RPLP0 および TBPの幾何平均に正規化された相対発現として表示されます。平均と平均の標準誤差が表示され、データは正規性と分散についてテストされ、アスタリスクは有意差を示します (n=3、t 検定)。 この図の拡大版を表示するには、ここをクリックしてください。
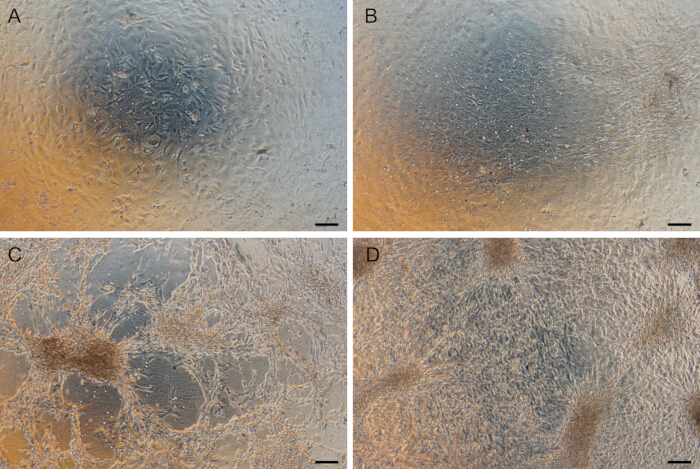
図3:培養中のテカ細胞と顆粒膜細胞の形態。 (A)3日間培養したTCをコラーゲンでコーティングされたインサート膜に結合させた。(B)TCは、単一培養で9日間の期間全体後に合流するまで成長しました。(C)GCは、培養6日後に典型的な線維芽細胞様表現型を示します。(D)TCとGCの共培養は、それぞれの時間一致した単一培養と比較して明らかな形態学的違いを示さない。この画像は、6日間のGC培養と9日間のTC培養後(共培養実験の終点)に撮影されました。スケールバーは100μm。 この図の拡大版を表示するには、ここをクリックしてください。
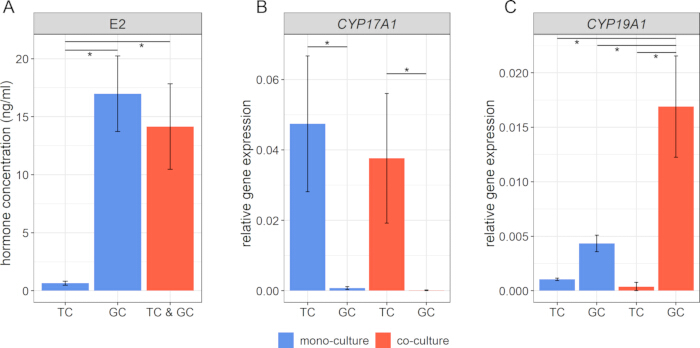
図4:共培養システムにおける機能マーカーの分析。 (A)エストラジオール(E2)のホルモン濃度は、細胞培養システムの生理学的機能を確認します。(B、C)TCマーカー CYP17A1 とGCマーカー CYP19A1 の遺伝子発現解析により、両方の細胞集団の同一性と機能状態が実証されます。参照遺伝子 RPLP0 および TBP の幾何平均を使用して、相対発現を計算しました。平均と平均の標準誤差が表示され、データは正規性と分散についてテストされ、アスタリスクは有意差を示します (n=3、一元配置分散分析)。 この図の拡大版を表示するには、ここをクリックしてください。
ディスカッション
この共培養モデルを実行するための前提条件は、相互汚染を防ぐために両方の細胞型を適切に分離することです。両方の細胞調製物の純度は、TC特異的マーカー CYP17A1 とGC特異的マーカー CYP19A1の遺伝子発現によって評価されました 。 前に示したように、GCおよびTC分離の技術では、関連する相互汚染は見られませんでした30。
この共培養モデルにより、膜の反対側にあるテカ細胞と顆粒膜細胞の同時培養が可能になり、卵胞内の空間組織を模倣し、両方の細胞集団の生理学的状態をサポートします3。このモデルの妥当性は、2細胞2ゴナドトロピン仮説15と一致するホルモン産生プロファイルと遺伝子発現パターンによって強化されます。予想通り、TC 単一培養におけるエストラジオールレベルの低下は、テカ細胞だけではエストラジオールを合成できないことを確認し、濾胞ステロイド生成の確立された知識を裏付けています35。共培養GCではCYP19A1発現が高いにもかかわらず、エストラジオールレベルはGC単培養と同等であり、基質の利用可能性、フィードバック阻害、酵素活性の違いなどの調節メカニズムの影響を示唆しています。シグナル伝達経路と根底にあるメカニズムのさらなる調査は、将来の研究の主題として正当化されます。それにもかかわらず、この研究で提供されているように、ウシ TC と GC の機能的な共培養システムの確立が不可欠です。本研究は、共培養モデルの機能の重要な指標として、エストラジオール産生とCYP17A1およびCYP19A1のmRNA発現レベルに焦点を当てました。どちらも顆粒膜と細胞機能の高感度マーカーを表しており4、8、36、2細胞2ゴナドトロピン仮説15と直接一致しています。タンパク質発現の重要性は認識されていましたが、信頼できる抗体がないため、正確な評価は不可能でした。したがって、タンパク質レベルの包括的な分析は、この初期調査の範囲を超えていました。
一般に、このモデルは、卵胞3の構造を部分的に模倣する従来の2D培養モデルのさらなる発展である。この結果は、GCおよびTC生理学の高感度マーカーの発現によって明らかにされた両方の細胞コンパートメントの生理学的状態を裏付けています。
従来の2D培養モデルに対する利点は、テカ細胞と顆粒膜細胞の間のパラクリン相互作用を促進しながら、空間的分離を維持し、in vivoの濾胞構造をよりよく模倣することです。対照的に、TCとGCが1つのウェルで混合されるオンディッシュ共培養システムには、この構造組織が欠けています。このようなシステムを使用した研究では、一般に4:1 19,20,21のGC:TC比が適用されていますが、このアプローチはin vivoで見られる区画化を反映していないため、基質交換の分析には実行できない可能性があります。さらに、このGC-TC混合物を複雑な方法で選別する必要がある場合、細胞レベルで見つかった変化は簡単に検出できません。
顆粒膜細胞とテカ細胞の3次元共培養モデルは依然として不足していますが、初期の試みは有望な結果を示しています。Kotsuji 22,23,24,37のグループは、コラーゲン膜を物理的分離器として使用して、培養における顆粒膜とテカ細胞の相互作用を以前に説明しました。ただし、このシステムは特注のコラーゲン膜に依存していたため、再現性と標準化が困難でした。対照的に、提示された共培養モデルは、市販の吊り下げ培養インサートの恩恵を受けており、再現性、標準化、製品品質が向上し、研究室全体でのより幅広い適用性が保証されます。本明細書に提示されたモデルは、以前のモデルよりも高いエストラジオール産生をもたらしたが、細胞培養サプリメントの統一性、特に使用された濃度26またはIGF-1の追加使用法を欠いているため、これらのモデルの比較は困難である22,23,24,37。
手順の最も重要なステップの 1 つは、接種チャンバー内での TC の培養です。チャンバーが逆インサートにしっかりと配置されていることを確認することは、TC の付着と生存を損なう可能性のあるメディアの漏れを防ぐために不可欠です。したがって、ピンセットを使用して接種チャンバーを逆インサートにしっかりと押し付け、接種チャンバーの配置を目視検査することをお勧めします。さらに、接種チャンバーを取り外し、3日後にインサートを裏返すには、技術的な精度が必要です。付着した細胞を混乱させたり損傷したりすることなく、このステップを実行するには、ある程度のスキルトレーニングが必要になる場合があります。もう一つの重要な考慮事項は、GCの播種密度です。インサートあたり1.0 x 10⁵ 細胞の最適レベルを超える細胞密度が高いと、GCの分化につながり、ステロイド生成出力に影響を与える可能性があります。さらに、提示された凍結保存法は、両方の細胞型で80〜90%の解凍後に生存率をもたらしました。
記載されているモデルは、顆粒膜とテカ細胞の相互作用を研究するための生理学的で再現性のあるシステムを提供しますが、いくつかの制限を考慮する必要があります。この方法は他の種にも適応できます。ただし、種特異的な違いにより、細胞密度、タイミング、培地組成などの細胞培養パラメーターの最適化が必要になる場合があります。このモデルの拡張性は、細胞培養インサートの入手可能性に限定されますが、ほとんどのエフェクター研究には十分かもしれません。最後に、この共培養モデルは、卵胞の in vivo 状況を模倣するためのさらなる一歩ですが、卵胞の完全な複雑さをまだ欠いています。
結論として、提示されたモデルは、培養期間の延長、細胞数や比率の調整、追加要因の組み込みなど、さまざまな実験ニーズに対応するために簡単に変更できます。さらなる開発により、このシステムは、両方の細胞コンパートメント間の卵胞機能、ステロイド生成、および細胞シグナル伝達を研究するための貴重なツールとなります。さらに、生殖毒物学への応用の可能性を秘めており、濾胞細胞に対するさまざまな化合物の影響を評価するための制御されたプラットフォームを提供します。
開示事項
すべての著者は、利益相反がないことを宣言します。
謝辞
ベロニカ・シュライター氏、マレン・アンダース氏、オリヴィエ・ザイデル氏の優れた技術支援に感謝申し上げます。さらに、この研究のために卵巣を入手した商業食肉処理場「DANISH CROWN Teterower Fleisch GmbH」(ドイツ)に感謝します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 10x ハンクの平衡塩溶液 HBSS (w Mg/Ca、フェノールレッド) | バイオ&売る | 理学士。L201-10 | 超純水に溶かします。消化液(HBSSおよびHEPES)のpHを7.4に調整し、使用前に無菌ろ過を行ってください |
| 18 G針、40 mm、直径1.2 mm | ロス | 281T.1 | 使い捨て針, ショートカット |
| 3mlシリンジ(Omnifix Luer) | ロス | LY22.1 | |
| アキュターゼ | メルク | A6964 | 支店:シグマ・アルドリッチ |
| アムホテリシンB(250およびマイクロg/ml) | バイオ&売る | 理学士。AB17.01050 | |
| アンドロステンジオン | メルク | 46033 | 100%エタノールで希釈した100mMの原液を使用します。支店:Supelco |
| 双眼鏡 Carl Zeiss Technival2 | カールツァイスイエナ | 該当なし | 入射光 Schott KL 1600 LEDと一緒に使用 |
| BSA(5%) | メルク | A3311 | 支店:シグマ・アルドリッチ |
| セルストレーナー(100µm孔径) | ザルシュテット | 83.3945.100 | 50ml遠心分離チューブに取り付けます |
| コラーゲンR(0.2%) | セルバ | 47254 | |
| コラゲナーゼNB8(10%) | ノードマーク | S1745601 | |
| CoolCell LX細胞凍結容器 | メルク | CLS432002 | コーニングの製品 |
| 凍結保存バイアル(2ml) | TPPファウスト | TPP89020 | |
| 培養皿, 12ウェル, 平底 | TPPファウスト | TPP92112 | |
| 培養皿, 24ウェル, 平底 | TPPファウスト | TPP92424 | |
| 培養皿, 6ウェル, 平底 | TPPファウスト | TPP92006 | |
| DMSOの | ロス | 4720.1 | |
| DPBS 無し Ca2+、Mg2+ | バイオ&売る | 理学士。L182-10 | 使用前に超純水とオートクレーブに溶かしてください |
| エストラジオール、17b-[2,4,6,7-3H] | ハルトマン・アナリティック | ART1555 | |
| 子牛胎児血清(FBS Superior stabil) | バイオ&売る | FBSです。S0615 | |
| FSH(~7,000 IU/mg、ヒト下垂体由来) | メルク | F4021 | 2 & micro の原液を使用することを好みます。g/ml、0.9%NaClで希釈;支店:シグマ・アルドリッチ |
| 吊り下げ式細胞培養インサート(0.4 & micro;m孔径) | セルQART | 9320412 | 注文中は、挿入物のさまざまなプロパティに注意してください。位相差顕微鏡検査には透明なPETメンブレンを好みます |
| ヘペス (1 M) | ロス | 9105.2 | 消化液(HBSSおよびHEPES)のpHを7.4に調整し、使用前に無菌ろ過を行ってください |
| ホロトランスフェリン(牛) | メルク | T1283 | 滅菌水に溶かします。支店:シグマ・アルドリッチ |
| innuPREP RNAミニキット2.0 | ISTインヌスクリーン | 845-KS-2040250 | |
| インスリン (10 mg/ml、ウシ膵臓由来) | メルク | I0516 | 1x PBSに溶解します。支店:シグマ・アルドリッチ |
| L-グルタミン (200 mM) | バイオ&売る | 理学士。K0283 | |
| LR3-IGF-1 | メルク | I1146 | 200µの原液を使用します。g/ml、10 mM HCl および 1x PBS に溶解し、1 mg/ml BSA を添加。支店:シグマ・アルドリッチ |
| NanoDrop 1000分光光度計 | サーモサイエンティフィック | 該当なし | RNA濃度測定 |
| NEA(100倍) | バイオ&売る | 理学士。K0293 | |
| ペニシリン/ストレプトマイシン (10,000 IU/10 mg/ml) | バイオ&売る | 理学士。A2213 | |
| 細胞培養に適した精製水 | メルク | W3500 | 支店:シグマ・アルドリッチ |
| SensiFAST cDNA合成キット | バイオライン | バイオ-65054 | 販売パートナーのBioCatを通じて供給 |
| 重炭酸ナトリウム(7.5%) | バイオ&売る | 理学士。L1713 | |
| 亜セレン酸ナトリウム | メルク | S9133 | 滅菌水に溶かします。支店:シグマ・アルドリッチ |
| サーモシェーカー TS-100C | フィッシャーサイエンティフィック | 12357627 | HC18ブロック(カタログ番号12337627)と併用 |
| α-MEM | バイオ&売る | 理学士。F0915 |
参考文献
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
再版と許可
