本稿では、昆虫病原性線虫(EPN:昆虫寄生)線虫であり、新たな遺伝モデルである Steinernema hermaphroditum におけるCRISPR-Cas9媒介ゲノム工学を実証しています。この技術は変異体の作成に有用であり、相利共生および寄生共生に関連する線虫生物学の遺伝子機能の解明を可能にします。
方法論記事
CRISPR-Cas9ベースの線虫 Steinernema hermaphroditum における変異誘発と変異系統の維持
この記事について
サマリー
要約
ステインネルネマ属およびヘテロラブディティス属の昆虫病原性線虫(EPN)は、それぞれゼノルハブダス属およびフォトラブドゥス属の共生細菌と相利共生関係を維持しています。これらの線虫-細菌のペアは、主にチョウ目とコウチョウ目に属する幼虫の宿主を感染・殺害し、相利共生と寄生の分子基盤を解明するための扱いやすい三部構成システムを形成します。このモデルを完全に活用するための重要な一歩は、EPNにおける安定的かつ世代を超えた遺伝的ツールの開発です。ここでは、生体内およびin vitroで容易に維持でき、性腺マイクロ注射にも非常に適している新興モデルSteinernema hermaphroditumにおける信頼性の高いCRISPR–Cas9ゲノム編集プラットフォームを示します。重要なのは、その両性生殖によってホモ接合型変異体系統の生成と維持が大幅に効率化されていることです。私たちは、Cas9リボヌクレオタンパク質複合体のマイクロインジェクションを用いて効率的かつ標的的となる遺伝子破壊のための詳細なプロトコルを提供します。概念実証として、保存された筋肉関連遺伝子unc-22を修飾し、このシステムにおける標的変異誘発を検証する特徴的な痙攣表現型を生成しました。このCRISPR–Cas9プラットフォームは、S. hermaphroditumにおけるトランスジーン発現などの安定した遺伝子操作への扉を開き、農業および生態学的に重要な他のEPN種にも拡張可能な枠組みを提供します。
概要
昆虫病原性線虫(EPN)は、細菌共生菌と種特異的な相利共生的パートナーシップを形成する昆虫殺害寄生虫です。EPNは2つの科、SteinermatidaeとHeterorhabditidaeの2科で構成され、それぞれグラム陰性菌のPhotorhabdusおよびXenorhabdus属と共生します2,3。Steinernema線虫の自由生活感染幼虫期(IJ)には、Xenorhabdus菌は線虫の腸内ポケットである受け皿内に宿っており、昆虫宿主が血腔に侵入すると細菌が放出され、その後増殖して敗血症によって昆虫を殺します 3,4.この相利共生の関係の中で、細菌は抗菌および殺虫化合物を産生し、宿主の免疫反応から守り、線虫5に栄養を支えます。その見返りとして、細菌は線虫宿主による環境微生物からの保護を受け、新たな昆虫の獲物への拡散が促進されます。
過去数十年にわたり、Steinernema-Xenorhabdusのパートナーシップは、昆虫の宿主探索行動3、線虫宿主における細菌の定着8、線虫と昆虫宿主動物間の移行を促進する共生細菌の適応的行動など、寄生および相利共生の相互作用の様々な側面を研究するための強力な実験システムとして確立されました.EPNは土壌の持続可能性においても重要な種であり、有機害虫防除剤として農業生産性の促進に使用されています10,11。
共生細菌であるゼノルハブダスおよびフォトラブドゥス12における遺伝的手法の急速な発展にもかかわらず、EPNsにおける一貫した遺伝的手法は稀です。性腺マイクロ注射はヘテロラブディティスおよびステイナーネマ線虫の両方で成功裏に確立されています13,14。以前は、ヘテロラハブディティス・バクテリオフォラにおける生殖腺微注射を用いて、第一世代の子孫13,15において一貫して二本鎖RNAを送達し遺伝子ノックダウンを行ってきました。最近、SteinernemaにおけるCRISPR-Cas9ゲノム編集が開発され、性腺マイクロ注射によって投与され、正確で安定かつ遺伝可能な突然変異をもたらしました14。
Steinernema属のS. hermaphroditumは、非常に扱いやすく、新興の遺伝モデル生物として大きな可能性を秘めていることが示されています4,14。 もともとはインドネシア16の土壌から分離され、インド17で再分離されたS. hermaphroditumは一貫して両性具有であり、各世代に少数のオスが存在します。これらは古典モデル線虫C. elegansの遺伝的手法の適応を促進する2つの特徴です。さらに、S. hermaphroditumのゲノムは染色体として配列決定・組み立てられ、潜在的なCas9標的部位の特定やプライマー設計の作業が簡素化されました。
EPNの微小注射中、適切な試薬(例えばdsRNA、Cas9タンパク質、ガイドRNAなど)を含む注射混合物が、石英毛細管から引き出された針を介して合胞線虫性腺に届けられます。適切な注入量と圧力により、性腺腕全体に液体の「流れ」が目に見えます。これらの線虫は、同じ細胞質を共有する生殖細胞核からなる2つの合胞性腺を持つため、この微小注射法により複数の生殖細胞を編集可能にし、細胞分裂が起こって生殖細胞細胞を発育中の卵母細胞に分離します。性腺マイクロ注射は、非モデル線虫14,21,22,23,24,25種において遺伝的調節の一貫した技術として機能しますが、成功と高い効率を確保するためには、各線虫種の適切な生殖腺構造、生活段階、生理的状態に合わせて注射技術を適応させることが不可欠です。注入後の回収技術と変異株ラインの維持管理は、この技術をコスト効率よくするために重要です。
本研究は、 Steinernema hermaphroditumにおけるCRISPR-Cas9ゲノム編集プロトコルを示しています。性腺マイクロ注射は若年成人期に記述され、高圧マイクロインジェンダーに耐性があり遺伝子編集にも受容性のある段階です。さらに 、低温 保存および昆虫による増殖を通じて、遺伝的かつ安定した変異体系統の維持を詳細に記述する方法も提供されています。
プロトコル
試薬および使用機器は 材料表に記載されています。
1. マイクロインジェクション前の線虫調製
- Xenorhabdus griffiniaeおよびComamonas aquaticusの細菌をシードした線虫成長培地(NGM)プレートを準備します。
注:マイクロインジェインス前に、 S. hermaphroditum 線虫を自生共生細菌 Xenorhabdus griffiniae 上で培養し、線虫の成長を最大化し、注射された動物を Comamonas aquaticus 菌に回収して注射後の生存率を上げます14。- ストリーク菌X . griffiniae をLBピルビン酸寒天プレート(酵母抽出物2.5g、トリプトン5g、塩化ナトリウム2.5g、ピルビン酸ナトリウム0.5g、寒天7.5g、500 mL水に浸して)にストリークし、30°Cで一晩培養します。
- LB寒天プレートにC . aquaticus 菌をストリークし、37°Cで一晩培養します。
- 暗色のLB液体培地(酵母抽出液5g、トリプトン10g、塩化ナトリウム5gを1Lの水に溶け込ませて)を接種するために、単一の細菌コロニーを選びます。細菌培養を一晩(最大16時間)にして、曝気( X. griffiniae 30°C、 C. aquaticus 37°C)を培養します。
- NGM寒天を調製します:(NaCl 3 g、ペプトーン2.5 g、寒天20 gを975 mLの水に加え、コレステロール1 mL、1 mL 1 M CaCl2、1 mL 1 M MgSO4、25 mL 1 M KPO4 (オートクレーブ後)10 mL、60 mm x 15 mmのペトリ皿を加えます。
- 種子バクテリア:一晩かけて培養したバクテリアの液滴を数滴、各NGM寒天プレートに加え、優しく振ってバクテリアの滴をパッチ状に広げます。
- 細菌シードされたNGMプレートを室温で培養し、寒天を乾燥させて細菌を増殖させます。
注意: X. griffiniaeの種付きプレートはできるだけ早く使用すべきです。 C. aquaticus のプレートは室温で1〜2週間保存可能です。
- 線虫の段階
注意:注射前夜に両性具有のJ3期を、若年成人は注射当日に選びましょう。- S . hermaphroditum nemahoditum 線虫をX . griffiniaeを種子付けした準備済みのNGMプレートにピックまたはチャンクします。最適な成長のために25〜28°Cの温度で孵化してください。
- マイクロインジェンダーの前夜、両性具有のJ3段階をX . griffiniae を植えたNGM寒天に採取します。 図1Aに示すように、J3段階は線虫の大きさと生殖腺および外陰部の形態によって推定されます。
- 顕微注射当日には、若年成人の両性具有者を摘みます(図1B)。
2. マイクロインジェクション用CRISPR-Cas9製剤
- CRISPRのcrRNAと試薬貯蔵の選択
- BlastP PRJNA982879を用いて、リファレンス Steinernema hermaphroditum ゲノムから標的遺伝子配列を抽出します。
- 可能であれば初期のコーディングエクソン配列を選択し、できれば最初のエクソンを選び、デフォルト設定26 でCRISPRScanに入力して可能なCRISPR RNA(crRNA)のリストを作成します。
- 上部のcrRNAを S. hermaphroditum ゲノムに照射し、ユニークなcrRNAのみが選ばれるようにします。
注意:任意:crRNA設計前にPCR増幅およびサンガーシーケンスでゲノムの標的領域の配列を確認し、crRNAの効率的な結合を確保してください。 - CRISPR RNA(crRNA)および汎用トランス活性化CRISPR核糖RNA(トラcrRNA)をそれぞれ100μMの2重バッファー(-80°C)に保存します。
- Cas9タンパク質は10 mg/mL、-20°Cまたは-80 °Cで保存します。 4°Cで1 M KClを保存します。
- 注射用2%アガロースパッドの製作(Berkowitzら27より改変)
- 電子レンジで2%アガロースを水で溶かします。
- 溶かしたアガロース50μLをカバーグラス(48×60mmのNo.1)に移します。すぐにアガロースの滴を別の蓋のグラスで覆いましょう。
- アガロースを室温で20分間乾燥させます。上部カバーのガラスを外してください。アガロースパッドの前面にラベルを貼ってください。
注意:任意:アガロースパッドを37°Cで一晩焼き、さらに乾燥させます。 - 2%アガロースパッドは室温で数ヶ月から数年保管してください。
- 針の準備
- レーザーフィラメントプラーで以下のパラメータを使って石英針を製造します。本研究で使用したニードルプラーの推奨プログラムは以下の通りです:熱:700、フィラメント:4、速度:60、遅延:145、引き:175。
- 注入直前または事前に、石英針(外径1.0mm、内径0.7mm)を抜き、ピペットの保管箱に保管してください。
注:または、ホウケイ酸塩針(外径1.2mm、内径0.68mm)での注射でも成功例があります。針のサイズは針ホルダーのサイズも異なります。
3. CRISPR-Cas9顕微注射と顕微注射後の線虫回収
- CRISPR-Cas9マイクロインジェクション混合物(Wangら28より応用)を準備します。
- 選択したcrRNAとユニバーサルトラクターRNAを1:1の比率で混合し、PCRチューブ内で全crRNAとトラクラRNAを合成します。
crRNA #1(100 μM) - 1.5 μL
crRNA #2(100 μM)- 1.5 μL
tracrRNA(100μM)- 3.0μL
注:co-CRISPRを使用する場合、crRNA #1は unc-22 マーカー遺伝子を標的とし、crRNA #2は別の配列に置き換えることができます。 - PCRチューブを94°Cの熱サイクラーで2分間孵育し、その後室温まで冷やします。
- 注射混合物を以下のもので組み立て、室温で5分間培養します:
Cas9(10 mg/mL) - 2 μL
1M KCl - 0.58 μL
gRNA二重合成(ステップ3.1.1より)- 2.7 μL - PCRチューブをひじいて3回混ぜ、その後ミニ遠心分離機で短時間(10〜15秒)回転させてチューブの内容物を集めます。最終ミックスの後は、最大1分間スピンダウンを続けます。
- 選択したcrRNAとユニバーサルトラクターRNAを1:1の比率で混合し、PCRチューブ内で全crRNAとトラクラRNAを合成します。
- 針を装填して折る
- マイクロローダーの先端を使って1〜2μLの注入混合物を針に注入します。
- 針をピペット(針)ホルダーに組み立て、ハロカーボン油で覆われた両面テープの上を針で引きずって先端を割ります。マイクロインジェクターの CLEAN 機能を使って針の開口部をテストします。
- 若成線虫の合胞体性腺への微小注射
- 2%アガロースパッドに小さなハロカーボン油の滴を移します。
- 解剖ステレオスコープの下で、細い(柔らかい)プラチナ線を使い、若成雌雄同体線虫を採取し、M9バッファー(1リットルあたり:3 g KH2PO4、11.3 g Na2HPO4、5 g NaCl、オートクレーブ後に1 ml 1 M MgSO4 を加えた)で洗浄し、細菌を除去します( 図1の若成線虫参照)。
- 洗浄線虫をアガロースパッドに移し、ハロカーボン油の滴に浸します。柔らかいプラチナワイヤーを使って、動物を動けなくするまで優しくブラッシングします。
- アガロースパッドを慎重にマイクロインジェクションステージに置いてください。性腺合胞体の向きは針に対して約45°の角度を向いているべきです。最初は5倍の倍率から始めて、注射時は20倍と40倍に切り替えます。
- 針がシンシチウムに確実に入り込むことを確認し、マイクロインジェクターのCLEAN機能を使って約99 psiの圧力で注入混合物を注入し、注入された液体の明確な性腺流量が観察されるまで、試薬が生殖細胞の胚細胞に到達できるようにします。
- もし第2の生殖腺アームにアクセスできるなら、ステージを移動して注射針の位置を調整します。
- 注射後の線虫回復
- 注射直後、注射した動物をアガロースパッド上の1〜2μLのM9バッファーに再懸浮させます。
- 細いプラチナワイヤーを使って、注入した線虫をアガロースパッドから取り、M9バッファーで油を洗い流します。
- NGMプレート上でC . aquatica 細菌の芝生を用いて回収します(NGMプレート準備:ステップ1.1参照)。これにより注入後の線虫の生存率が上がります14。25°Cで一晩抱卵します。
- 翌日、注入された線虫(P0)をX . griffiniaeをシードしたNGMプレートに分離します。P0動物に一晩でF1子孫を産ませ(卵を産むか袋詰めで)、表現型と遺伝子型付けを行います(ステップ4参照)。
4. CRISPR-Cas9介在ノックアウトの確認のためのスクリーニング
- unc-22を共同CRISPRマーカーとして使用した場合のF1のピクリン表現型のニコチンベース(CAUTION)スクリーニング
- 注射したP0動物からF1子孫を2%のニコチン溶液のスポットに移します。
- ニコチンの部位から痙攣している個体を選び、X . griffiniaeを植えたNGM寒天ですぐに回復させます。各痙攣するF1を個別のプレートに分離し、F2動物を生成して遺伝子型解析を行います(ステップ4.2参照)。
- 遺伝子型分け
- F1のツイッチング系統から8匹のF2またはF3の子孫を選んで遺伝子型を測定します。これらの動物には、+/mut ヘテロ接合体と mut/mut ホモ接合体の両方が含まれている可能性が高いです。
- 新鮮なDNA抽出バッファーを、20μLプロテイナーゼK(10 mg/mL)を180 μLのミミズ溶解バッファー(50 mM KCl、10 mM Tris pH 8.0、2.5 mM MgCl2、0.45% NP-40、0.45% Tween 20、0.01% ゼラチン)に加えます。
- PCRチューブ内のDNA抽出バッファー10μLに線虫を加えます。65°Cで10分間、次に95°Cで15分間培養してゲノムDNAを抽出します。
- 製造元の指示に従い、ステップ4.2.2の1〜2μLの解裂液を用いてCas9標的領域をPCR増幅して線虫の遺伝子型を決定します。大きな欠失が発生した場合に備え、Cas9切断部位とプライマー結合部位の間に可能であれば少なくとも300塩基の十分なスペースを確保することが重要です。
注:アガロースゲル電気泳動は、シーケンス前に増幅の成功を確認するために使用できます。 - メーカーの指示に従ってPCR製品をクリーンアップし、サンガーシーケンシングトレースの正確な分析を確実にしてください。
- ステップ4.2.4で生成されたPCRアンプリコンをサンガーシーケンスでシーケンスし、ICEプログラム29でクロマトグラムを解析します。
- ステップ4.2.6で変異対立遺伝子が確認された場合は、元のF1ピッチプレートに戻り、少なくとも8個の両性具有者を個別のプレートに分離します。各線虫に子孫を生ませ、その後大量遺伝子型をしてホモ接合を確認する。ホモ接合系はステップ5で説明した通り、実験室で維持可能です。
5. CRISPRラインのメンテナンス
注:ラインメンテナンスには主に3つの方法があります。これには、トレハロース-DMSOベースの凍結保存(ステップ5.1)、 in vivo でのワックスワーム通過(ステップ5.2)、NGMプレートでの in vitro メンテナンス(ステップ5.3)が含まれます。
- 野生型および変異株系統のトレハロース-DMSO凍結保存
注:トレハロース-DMSO凍結保存法4を用いると、 S. hermaphroitum は-80°Cで長期安定保存でき、NGM培地で回収可能です。線虫は2 mLの低温バイアルに凍結されます。最適な凍結は、発泡スチロール容器を使った徐々の冷却によって達成されます。- Ngm ( Ngm)に X. griffiniae をまき(ステップ1.1参照)を植え、個体群の大多数がJ1になるか両性同体を捕獲するまで栽培します。
注意:感染性幼虫(IJ)期は凍結がうまくないため避けてください。 - NGM寒天プレートから線虫をM9バッファーで洗い流し、5mLまでの15mL円錐形チューブに採取します。遠心分離で濃縮します(1372 x g 、1-2:30分で十分)。
- 上清液を除去し、ステップ5.1.2のパラメータに従って遠心分離で5 mLのトレハロース-DMSO凍結バッファーを1回洗浄します。
- ミミズを室温5mLのトレハロース-DMSO凍結バッファーに再懸浮させます。チューブを横にして室温で30分間孵化させます。これにより生存率が上がります。
- 1本あたり1mLを4つの低温バイアルに分ける。
- バイアルを発泡スチロールの箱に入れて、-80°Cの冷凍庫に入れてください。
- 1週間後、試して1つのバイアルを解凍しました。
- 残りのバイアルは-80°Cの冷凍箱に移し、永久保存してください。
- 凍結ストックからのS . hermaphroditum のテスト解凍または回復
- 冷凍庫からバイアルを取り出し、室温で完全に解凍します。
- 液体の内容物を新しいNGMプレートに注ぎます。凍結されたストックには通常十分な共生細菌が含まれているため、共生細菌の追加は必須ではありません。寄生虫は数分から数時間以内に回復し始めるはずです。
- 線虫の動きと繁殖を観察してください。1〜2日後、いくつかの線虫をX. griffiniaeを種付けした新しいNGMプレートに移します。
- Ngm ( Ngm)に X. griffiniae をまき(ステップ1.1参照)を植え、個体群の大多数がJ1になるか両性同体を捕獲するまで栽培します。
- Galleria mellonellaによる生体内維持
注: 生体内 成長のために、 S. hermaphroditum 変異系統を Galleria mellonella (ワックスワーム)5齢 幼虫に繁殖させてください。この方法は、冷凍保存後に生存できなくなる系統に特に有用です。昆虫病原性線虫を通じた昆虫および他の培地によるEPN成長のための自然増殖に関する詳細な類似プロトコルは(McMullenら30)で確認できます。簡単に言うと:- 線虫を飢えさせてNGMプレート上のIJにしてしまうのです。
- M9バッファーを使ってNGMプレートからIJを除去してください。
- ホワイトトラップを使ってIJを移して Galleria 昆虫に感染させます。
- NGMプレートの in vitro メンテナンスについては、以下の手順に従ってください:
- 約100μLの新鮮液体培養物を用いたS . hermaphroditum symbiont( X. griffiniae)のNGMシードプレート。
- 細菌パッチが完全に乾くまで待ってから、線虫をプレートに移してください。
- プレートは25°Cで保存し、約月に一度線虫を新たに種まきのプレートに移します。
結果
2つのCRISPR RNAが設計され(Pamサイト番号、Pam 3およびPam 5)、既に発表されたPamサイト14のUnc-22のS. hermaphroditum相同体を標的としています(図2A)。各crRNAはtracrRNAと複合体を形成し、単一のガイドRNA(sgRNA)を形成し、Cas9に組み込まれてステップ3.1で説明したリボ核タンパク質を形成しました。このプロトコルでは、2つのcrRNAが同じ遺伝子を標的とするように設計されました。しかし、C. elegans31で開発されたco-CRISPR法を用いる場合、crRNA #2は目的遺伝子であるcrRNAに置き換えることができます。あるいは、unc-22 crRNAを対象遺伝子を標的とする2つに加え、全crRNAとtracrRNAの比率を1:1に保つことも可能です。
顕微注射の前日、目に見える生殖腺腕を持つ十分な栄養を得た初期のJ3線虫(図1A)を、共生細菌 Xenorhabdus griffiniae で播種した新鮮なプレートに摘み取り、室温で一晩若成虫へと成長させました(図1B)。注射当日、受精胚がほとんどまたは全くない若年成人(図1B)が新しいペトリ皿に隔離され注射されました。観察に基づき、若い線虫は比較的より通過しやすい角皮を持っていました。しかし、注射後の回復はあまり困難でした。針は(ステップ2.3参照)、注射混合物を充填し、ステップ3.2で説明した通りに割って開けました。線虫はM9バッファーで洗浄され、アガロースパッド上のハロカーボン油の滴に固定されました(ステップ2.2)。注射部位(図1C)では、マイクロインジェクターからの外部圧力を用いて性腺合胞体内に目に見える液体の流れを作り出し、生殖細胞核が注射混合物で浸潤されることを確実にしました(ステップ3.3)。可能な限り、編集されたF1子孫を得る確率を高めるために両方の生殖腺を注射しました。
注入された線虫(P0)はM9バッファーで洗浄され、Comamonas aquaticus菌をシードしたNGMプレート上で一晩培養されて一晩回収されました(ステップ3.4)。注射されたP0動物の約40%〜90%が注射直後に回復し、注射されたP0線虫の20%〜90%がC. aquaticaで一晩生き残りました。(表1)生存した個体P0は、X. griffiniaeを種子にしたNGMペトリ皿に分離され、その移植率は20%〜90%でした。unc-22欠失表現型のニコチンスクリーニングは、F1、F2、F3動物で遺伝性を判断するために実施されました(ステップ4.1)。2%のニコチンに曝露するとunc-22遺伝子欠失を持つS. hermaphroditum線虫は痙攣し、野生型線虫は麻痺するため、欠失と推定される動物のスクリーニングと選択が可能になります28。この実験では、注射されたP0から分離されたF1線虫の最大64%が一貫して痙攣するF2子孫を産みます(表1)。共CRISPR注射のスクリーニングを容易にするため、個々の痙攣線虫を画像および追跡システムで監視・定量化することができ、図2Bに示す例があります。
痙攣子孫の遺伝子型を確認するために、F3線虫からゲノムDNAを抽出し、UNC22遺伝子座の遺伝子型を解析しました(ステップ4.2)。標的部位周辺のゲノム領域をPCR増幅することで、複数の淡い帯が観察され、大小の挿入および欠失(インデル)が示されました(図2C,D)、その一部はシーケンス解析で確認されました(図2E)。これらのデータは、CRISPR-Cas9がゲノム標的部位に二本鎖断線を作り出し、非相同末端結合(NHEJ)によって修復されたことを示唆しています。ヌクレオチドレベルでのゲノムの特異的修飾を確認するため、ターゲット部位からのPCR増幅生成物をサンガーシーケンシングを用いて解析しました。ピッキング線虫と野生型線虫の両方のクロマトグラムのアラインメントにより、ターゲット部位の挿入または欠失を特定できるようになりました(図2E)。表現型および遺伝子型解析で確認された後、CRISPR変異株は昆虫Galleria mellonella(ワックスワーム)を通すことで実験室で維持するか、凍結保存(ステップ5)で保存されます。unc-22を共同CRISPRマーカーとして用いる場合、標的遺伝子の変異を持つF2およびF3子孫を分離するための提案戦略の図は図3を参照してください。
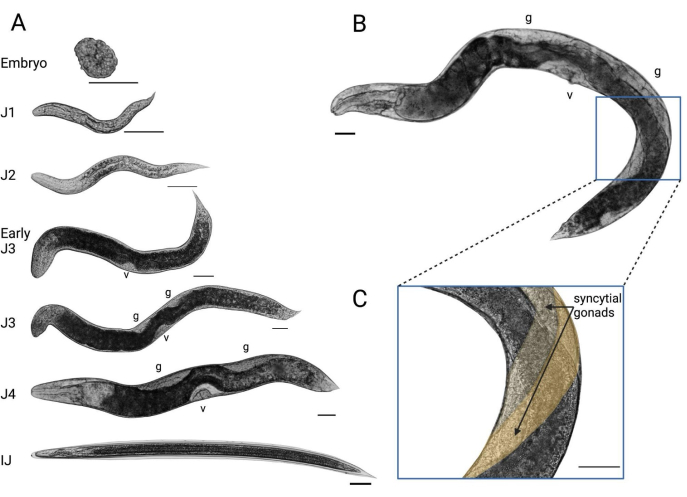
図1:実験室環境での S. hermaphroditum の発生。 (A) NGM寒天上で共生細菌 X. griffiniaeを餌とする両性具有の推定発生段階。スケールバー=50μM。v = 外陰部;g = 生殖腺。(B)生殖腺マイクロ注射に適した発達段階にある若年成人の両性具有者。青いボックス:性腺注射の位置。(C) 微量注射対象となる両性同体の合胞性腺。2つの生殖腺は視覚化を容易にするために異なる黄色の濃淡で色付けされています。 この図の拡大版はこちらをクリックしてご覧ください。
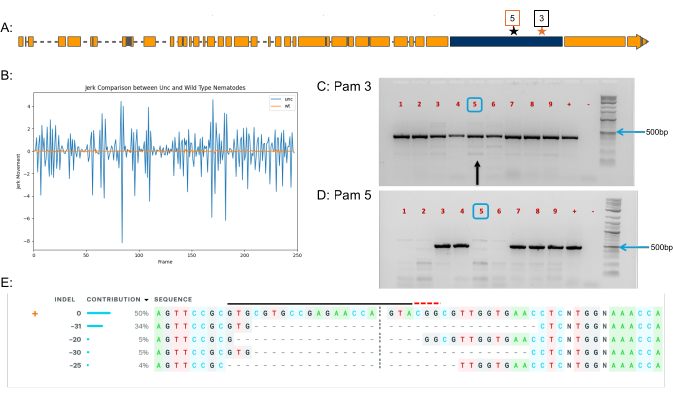
図2: S. hermaphroditumにおけるCRISPR-Cas9ゲノム編集の代表的な結果。 (A) S. hermaphroditum unc-22 相同体の遺伝子構造。青いボックス:標的となるエクソン。ブラックスター:パム3のターゲットサイト。赤い星:パム5のターゲットサイト。(B) 2%ニコチン投与時のけいれん運動に基づく代表的な痙攣子孫の表現型解析。ブルー: unc-22 のミュータント系統のピクピクする大人。オレンジ:2%のニコチンで麻痺した野生型成虫。(C,D)2匹の注射P0動物から独立したF3痙攣系統9本(1-9)の遺伝子型解析。各サンプルには同じF1系統からの4つのF3子孫が含まれています。プライマーはPam 3(C)およびPam 5(D)周辺のゲノム領域を増幅するために用いられました。「+」:野生型制御;「-」:DNAをロードしない陰性対照。青いボックス:アガロースゲル上の確認されたヘテロ接合体サンプルアンプリコンの例。(C)に黒い矢印、(E)で解析されたアンプリコン。(E) Pam 3の UNC-22 変異体のICE分析。(C)(黒い矢印)からのPCRサンプル5はICEで配列決定・解析されたところ、対立遺伝子の50%が野生型であり、ゲノムDNAでは20 bpから31 bpの範囲の欠失変異が検出されました。 この図の拡大版はこちらをクリックしてご覧ください。
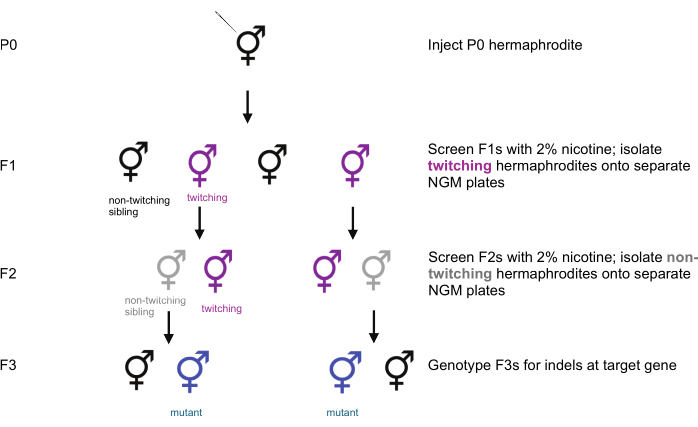
図3:標的遺伝子内の変異体分離のためのCo-CRISPRスクリーニングワークフロー。unc-22を共CRISPRマーカーとして用いる場合、F1線虫は2%のニコチンでスクリーニングされ、痙攣するF1は共生細菌X. griffiniaeをシードした別々のNGMプレートに分離されます。その後、痙攣するF1のF2子孫をスクリーニングし、非痙攣するF2を個々のプレートに分離します。F2が子孫を生み出した後、F3は標的遺伝子がノックアウトされているかどうかを調べるために遺伝子型を解析します。痙攣線虫の非いけいれんの兄弟姉妹も、関心遺伝子にインデル(インデル)を持つことがあり、遺伝子型分析に含めるべきです。この図の拡大版はこちらをクリックしてご覧ください。
| レプリケート | いいえ。注入されたP0 | いいえ。注射に耐えたP0* | いいえ。一晩生き残ったP0 | いいえ。P0は X. griffiniae の斑点に移転しました。 | いいえ。P0とF2の痙攣 | P0を注射し、痙攣を引き起こすF2 |
| 1 | 8 | 4 | 4 | 3 | 0 | 0 |
| 2 | 9 | 4 | 4 | 4 | 3 | 33.33 |
| 3 | 11 | 10 | 10 | 10 | 7 | 63.64 |
| 4 | 9 | 4 | 2 | 2 | 2 | 22.22 |
表1:S . hermaphroditum unc-22 の顕微注射 による ホモログ修飾の代表的な結果と、痙攣子孫による成功率。 *生存率は顕微注射後約30分後の咽頭ポンプの動きによって決定されました。
ディスカッション
非伝統的な遺伝学モデルの動物システムは、真核生物の遺伝子機能が自然に存在する生態学的・生理学的文脈、例えば寄生宿主や生物の固有のマイクロバイオームの存在下で研究する貴重な機会を提供します。昆虫病原性線虫(EPN)では、遺伝子操作がRNAiベースのアプローチの一部のケースに依存しています13,32。RNAiは一部の種で機能的な遺伝学的研究を可能にしますが、dsRNAの一時的な性質に制約があり、遺伝子サイレンシングは確実に遺伝性が低い場合があります。これらの制約は、安定した世代を超えた遺伝学ツールの必要性を強調しています。33,34。本研究は、Rhabditida目に属する2つのEPNファミリーの一つであるSteinernematidsにおける正確なゲノム編集の最初のプロトコルを記述しており、Cao(2023)14で示されています。
このプロトコルを用いたCRISPR–Cas9変異誘発の成功は、線虫の慎重な取り扱いに依存します。栄養不足の人は、注射針で貫通しにくい性腺が崩壊することがよくあります。注射量は調整が必要で、針の開口部をわずかに大きくするか、注入圧力を微調整して生殖腺が注射混合物と適切にフラッシュされるようにします。注射された動物をアガロースパッドから C. aquatica 回収プレートへ迅速に移すことは、注射後の生存に不可欠であり、経験を積むほど処刑速度は大幅に向上します。注射後は、損傷した線虫が共生細菌にさらされ ないように することが重要です。X . griffiniae の回復は14未満です。
針の詰まりはマイクロインジェクション時によく見られる技術的課題です。詰まりは、ハロカーボン油に浸した両面テープを優しく針で擦ることで解消されることもあります。マイクロ注射前にM9で線虫を徹底的にすすいでいることで、共生細菌の侵入や針の侵入を防ぎます。詰まりが続く場合は、針先端の開口部を慎重に大きくすることで流量を回復できますが、過度に拡大すると注射混合物が制御不能に排出されることがあります。ホウケイ酸塩14から石英毛細管への針製造への移行により、注入性能が大幅に向上しました。石英針は先端が鋭くなり、やや年配の大人にも厚いキューティクルを施しやすくなり、生存率を高めます。
このプロトコルの現在の制約は、CRISPRベースのトランスジェーン挿入が依然として困難であり、さらなる最適化が必要であることです。Cas9誘導の二本鎖断線のホモロジー指向修復(HDR)は、短いssDNAドナーを用いてS. hermaphroditumで達成が困難でした14,35。正確な遺伝子転換挿入は、単一アミノ酸置換や転写リポーターなどの高精度修飾を可能にする重要な遺伝子モデルの重要な能力です。したがって、信頼性の高いCRISPR-Cas9介在ノックインプロトコルの開発は、EPNの遺伝学ツールキットを大幅に進歩させ、寄生虫学、微生物共生などの広範な研究コミュニティに利益をもたらすでしょう。
開示事項
著者たちは利益相反はないと宣言しています。
謝辞
共焦点顕微鏡の使用をいただいたマーガレット・マクフォール・ンガイ氏とエドワード・ルビー氏に感謝いたします。共焦点顕微鏡のトレーニングをしてくれたアレクシス(コーディ)・ハーガドン氏とグリシャ・チェン氏、そしてピクピク動画の写真取得と分析に協力してくださったカーリー・R・マイヤーズ氏に感謝いたします。また、マイクロインジェクションシステムの購入資金を割り当ててくださったステファニー・ハンプトン氏にも感謝いたします。カーネギー科学研究所がこの研究を支援しました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| アガー(80-100メッシュ) | フィッシャー・サイエンティフィック | BP26411 | LBピルビン酸板にも使用されます |
| アガロース | フィッシャー・サイエンティフィック | 16500500 | また、遺伝子型分けにも利用されます |
| Alt-R CRISPR-Cas9 tracrRNA | IDT | 1072532 | |
| Alt-R S.p. Cas9 ヌクレアーゼ V3 | IDT | 1081058 | |
| ホウケイ酸塩針 | ワールド・プレシジョン・インスツルメント | 1B120F-4 | |
| 塩化カルシウム(CaCl2) | シグマ・オルドリッチ | C4901 | |
| コレステロール | VWR | 433 | エタノールに5 mg/mL |
| Comamonas aquatica (DA1877) | |||
| アガロースパッド用のカバーガラス | 脳研究所 | #4860-1D | 48 x 60 mm No1 厚さ |
| CRISPRScan | https://www.crisprscan.org/ | ||
| ジメチルスルオキシド(DMSO) | シグマ・オルドリッチ | 472301 | 0.5 M |
| DNAクリーン&コンセントレーター-5 | ザイモリサーチ | D4014 | |
| FemtoJet 4xマイクロインジェクター(グリップヘッドセット付き、4サイズ0ニードルホルダー) | エッペンドルフ/カリブル | 5253000017 | |
| ガレリア・メロネラ 5齢幼虫 | グラブコ | https://www.grubco.com/index.cfm | |
| ゲルイメージングシステム | Azure400 | AZI400-01 | |
| ゲルローディング染料 | サーモフィッシャー・サイエンティフィック | B72 | |
| ゼラチン(2%) | シグマ・オルドリッチ | G1393 | |
| ジェルレッド | バイオティウム | #41003 | |
| ジェノタイピングプライマー:DNAオリゴ、25 nmol | IDT | 該当なし | |
| ギブコ・バクト・ペプトーン | フィッシャー・サイエンティフィック | DF0118-17-0 | |
| ギブコ・バクト・トリプトン | フィッシャー・サイエンティフィック | DF0123-17-3 | また、ダークLB、LBピルビン酸プレートなどにも使用されています。 |
| Gibco酵母抽出物 | フィッシャー・サイエンティフィック | DF0127-17-9 | また、ダークLB、LBピルビン酸プレートなどにも使用されています。 |
| グリップヘッドセット 4サイズ1 ニードルホルダー | 口径 | EPE-5196083008 | (ホウケイ酸塩針1B120F-4と組み合わせて) |
| ハロカーボンオイル700 | シグマ・オルドリッチ | H8898 | |
| 日々のメンテナンス用に硬いプラチナのワイヤーワームピック | トライテックリサーチ | PT-9901 | |
| CRISPR編集の推論(ICE) | シンセゴ | 該当なし | インデルを特定するためにサンガー配列を解析するソフトウェア |
| KCl | シグマ・オルドリッチ | P9541 | |
| レーザーニードルプラー P-2000 | サター | P-2000G | |
| 塩化マグネシウム(MgCl2) | シグマ・オルドリッチ | M8266 | |
| 硫酸マグネシウム(MgSO4) | シグマ・オルドリッチ | M7506 | M9バッファー用、NGMでも使用されます。 |
| マイクロローダーチップ 2x96ST | 口径 | 930001007 | |
| ツァイス・アクシオ・オブザーバーおよびアクキシオベルト200用のマイクロマニピュレーター取り付けアダプター | トライテックリサーチ | NZ-19-2 | |
| 顕微鏡 | トライテック | SMT1 | |
| ニコチン | シグマ・オルドリッチ | N3876 | |
| NP-40 | サーモフィッシャー・サイエンティフィック | 85124 | |
| ヌクレアーゼフリーデュプレックスバッファ | IDT | 11-01-03-01 | |
| OneTaq マスターミックス | NEB | M0486 | |
| ピペット保管箱 | サター・インストゥルメンツ | BX10 | |
| 塩化カリウム(KCl) | シグマ・オルドリッチ | 793590 | |
| リン酸カリウム、二塩基(K2HPO4) | シグマ・オルドリッチ | P3786 | KOHはNGMの意味です |
| リン酸カリウム、単塩性(KH2PO4) | シグマ・オルドリッチ | P5655 | M9バッファー用、NGMでも使用されます。 |
| プロテイナーゼK | シグマ・オルドリッチ | P6556 | |
| 石英針 | サター・インストゥルメンツ | QF100-70-10 | |
| S. hermaphroditiumゲノム | NCBI | https://www.ncbi.nlm.nih.gov/datasets/genome/GCA_030435675.1/ | |
| sh-unc-22 Alt-R CRISPR-Cas9 crRNA | IDT | 該当なし | |
| 塩化ナトリウム(NaCl) | VWR | SS0430 | M9、ダークLB、LBピルビン酸プレートにも使用されています |
| リン酸ナトリウム、二塩基性(Na2HPO4.7H20) | シグマ・オルドリッチ | S9390 | M9バッファの場合 |
| ピルビン酸ナトリウム | シグマ・オルドリッチ | P2256 | また、LBピルビン酸プレートにも使用され、nbsp; |
| マイクロインジェクション用のソフトプラチナワイヤーワームピック | シュアピュア・ケメタルズ | 6824 | プラチナ90%、イリジウム10%合金線、直径0.002インチ×長さ5フィート |
| 標準ニードルホルダー | トライテックリサーチ | HI-7 | |
| Steinernema hermaphroditum | |||
| 立体顕微鏡 | ライカ | インベタ3 | |
| トレハロース | コール・パーマー | EW-88195-99 | 0.08 M |
| Tris | フィッシャー・サイエンティフィック | AM9855G | pH 8.0 |
| トゥイーン20 | シグマ・オルドリッチ | P1379 | |
| 垂直マイクロマニピュレーター取り付けアダプター | トライテックリサーチ | NR2 | |
| Xenorhabdus griffiniae (HGB2511) |
参考文献
- Stock, S., Blair, H. G. Entomopathogenic nematodes and their bacterial symbionts: The inside out of a mutualistic association. Symbiosis. 46, 65-75 (2008).
- Murfin, K. E., et al. Nematode-bacterium symbioses--cooperation and conflict revealed in the "omics" age. Biological Bull. 223 (1), 85-102 (2012).
- Dillman, A. R., et al. An entomopathogenic nematode by any other name. PLoS Pathog. 8 (3), e1002527(2012).
- Cao, M., Schwartz, H. T., Tan, C. -H., Sternberg, P. W. The entomopathogenic nematode Steinernema hermaphroditum is a self-fertilizing hermaphrodite and a genetically tractable system for the study of parasitic and mutualistic symbiosis. Genetics. 220 (1), iyab170(2022).
- Sergeant, M., et al. Identification, typing, and insecticidal activity of Xenorhabdus isolates from entomopathogenic nematodes in United Kingdom soil and characterization of the xpt toxin loci. Appl Environ Microbiol. 72 (9), 5895-5907 (2006).
- Walsh, K. T., Webster, J. M. Interaction of microbial populations in Steinernema (Steinernematidae, Nematoda) infected Galleria mellonella larvae. J Invertebr Pathol. 83 (2), 118-126 (2003).
- Herbert, E. E., Goodrich-Blair, H. Friend and foe: The two faces of Xenorhabdus nematophila. Nat Rev Microbiol. 5 (8), 634-646 (2007).
- Flores-Lara, Y., Renneckar, D., Forst, S., Goodrich-Blair, H., Stock, P. Influence of nematode age and culture conditions on morphological and physiological parameters in the bacterial vesicle of Steinernema carpocapsae (Nematoda: Steinernematidae). J Invertebr Pathol. 95 (2), 110-118 (2007).
- Cao, M., Goodrich-Blair, H. Ready or Not: Microbial adaptive responses in dynamic symbiosis environments. J Bacteriol. 199 (15), e00883-e00916 (2017).
- Lacey, L. A., et al. Insect pathogens as biological control agents: Back to the future. J Invertebr Pathol. 132 (C), 1-41 (2015).
- Campos-Herrera, R., et al. Intraspecific virulence of entomopathogenic nematodes against the pests Frankliniella occidentalis (Thysanoptera: Thripidae) and Tuta absoluta (Lepidoptera: Gelechiidae). J Nematol. 53 (1), 1-14 (2021).
- Rill, A., Zhao, L., Bode, H. B. Genetic toolbox for Photorhabdus and Xenorhabdus: pSEVA based heterologous expression systems and CRISPR/Cpf1 based genome editing for rapid natural product profiling. Microb Cell Fact. 23 (1), 98(2024).
- Ratnappan, R., et al. RNAi-mediated gene knockdown by microinjection in the model entomopathogenic nematode Heterorhabditis bacteriophora. Parasit Vectors. 9 (1), 160(2016).
- Cao, M. CRISPR-Cas9 genome editing in Steinernema entomopathogenic nematodes. bioRxiv. , (2023).
- Heryanto, C., Ratnappan, R., O'Halloran, D. M., Hawdon, J. M., Eleftherianos, I. Culturing and genetically manipulating entomopathogenic nematodes. J Vis Exp. (181), e63885(2022).
- Stock, S. P., Griffin, C. T., Chaerani, R. Morphological and molecular characterisation of Steinernema hermaphroditum n. sp. (Nematoda: Steinernematidae), an entomopathogenic nematode from Indonesia, and its phylogenetic relationships with other members of the genus. Nematology. 6 (3), 401-412 (2004).
- Bhat, A. H., Chaubey, A. K., Shokoohi, E., William Mashela, P. Study of Steinernema hermaphroditum (Nematoda, Rhabditida), from West Uttar Pradesh, India. Acta Parasitol. 64 (4), 720-737 (2019).
- Schwarz, E. M., et al. Genomes of the entomopathogenic nematode Steinernema hermaphroditum and its associated bacteria. bioRxiv. , (2025).
- Haglund, K., Nezis, I. P., Stenmark, H. Structure and functions of stable intercellular bridges formed by incomplete cytokinesis during development. Commun Integr Biol. 4 (1), 1-9 (2011).
- Ghanta, K. S., Ishidate, T., Mello, C. C. Microinjection for precision genome editing in Caenorhabditis elegans. STAR Protoc. 2 (3), 100748(2021).
- Gang, S. S., et al. Targeted mutagenesis in a human-parasitic nematode. PLoS Pathog. 13 (10), e1006675(2017).
- Adams, S., Pathak, P., Shao, H., Lok, J. B., Pires-daSilva, A. Liposome-based transfection enhances RNAi and CRISPR-mediated mutagenesis in non-model nematode systems. Sci Rep. 9 (1), 483(2019).
- Culp, E., et al. Genome editing in the nematode Caenorhabditis briggsae using the CRISPR/Cas9 system. Biol Methods Protoc. 5 (1), bpaa003(2020).
- Hellekes, V., et al. CRISPR/Cas9 mediated gene editing in non-model nematode Panagrolaimus sp. PS1159. Front Genome Ed. 5, 1078359(2023).
- Patel, R., et al. The generation of stable transgenic lines in the human-infective nematode Strongyloides stercoralis. G3 (Bethesda). 14 (8), jkae122(2024).
- Moreno-Mateos, M. A., et al. CRISPRscan: Designing highly efficient sgRNAs for CRISPR-Cas9 targeting in vivo. Nat Methods. 12 (10), 982-988 (2015).
- Berkowitz, L. A., Knight, A. L., Caldwell, G. A., Caldwell, K. A. Generation of stable transgenic C. elegans using microinjection. J Vis Exp. (18), e833(2008).
- Wang, H., Park, H., Liu, J., Sternberg, P. W. An efficient genome editing strategy to generate putative null mutants in Caenorhabditis elegans using CRISPR/Cas9. G3 (Bethesda). 8 (11), 3607-3616 (2018).
- Conant, D., et al. Inference of CRISPR Edits from Sanger Trace Data. CRISPR J. 5 (1), 123-130 (2022).
- McMullen, J. G. 2nd, Stock, S. P. In vivo and in vitro rearing of entomopathogenic nematodes (Steinernematidae and Heterorhabditidae). J Vis Exp. (91), e52096(2014).
- Kim, H., et al. A co-CRISPR strategy for efficient genome editing in Caenorhabditis elegans. Genetics. 197 (4), 1069-1080 (2014).
- Ciche, T. A., Sternberg, P. W. Postembryonic RNAi in Heterorhabditis bacteriophora: A nematode insect parasite and host for insect pathogenic symbionts. BMC Dev Biol. 7 (1), 101(2007).
- Du, X., McManus, D. P., French, J. D., Jones, M. K., You, H. CRISPR/Cas9: A new tool for the study and control of helminth parasites. Bioessays. 43 (1), e2000185(2021).
- Quinzo, M. J., Perteguer, M. J., Brindley, P. J., Loukas, A., Sotillo, J. Transgenesis in parasitic helminths: A brief history and prospects for the future. Parasit Vectors. 15 (1), 110(2022).
- Schwartz, H. T., Tan, C. -H., Peraza, J., Raymundo, K. L. T., Sternberg, P. W. Molecular identification of a peroxidase gene controlling body size in the entomopathogenic nematode Steinernema hermaphroditum. Genetics. 226 (2), (2024).
- Dokshin, G. A., Ghanta, K. S., Piscopo, K. M., Mello, C. C. Robust genome editing with short single-stranded and long, partially single-stranded DNA donors in Caenorhabditis elegans. Genetics. 210 (3), 781-787 (2018).
再版と許可
