本研究では、Mycobacterium属向けのホットフェノール法を用いたRNA抽出法を最適化し、トランスクリプトーム解析に適した高品質なRNAを回収しました。同一条件下でTRIzolおよびRNeasyと比較した結果、本手法はより高い回収率と同等の完全性を維持しつつ、コスト効率も向上しており、大規模な遺伝子発現研究における実用的な代替手法となることが示されました。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
Mycobacterium tuberculosis (Mtb)は依然として世界的な健康脅威となっており、その生物学および薬剤耐性メカニズムを理解するための信頼性の高いトランスクリプトーム研究の必要性が強調されています。このような解析は、高品質かつ高収量のRNAを得ることに依存しています。いくつかのRNA抽出法が利用可能ですが、その多くは高価な試薬、大量の培養液、または特殊な装置を必要とするため、特にリソースが限られた環境における大規模な研究への適用には限界があります。本稿では、マイコバクテリウム属に特化して最適化されたホットフェノール法によるRNA抽出法を提示します。この手法は、最小限の培養量と一般的に入手可能な試薬を用いて、ハイスループットなトランスクリプトーム解析に適した高品質なRNAを安定して抽出します。RNAの量と完全性は、ゲル電気泳動およびRNA整合性解析 (RIN) によって評価し、ダウンストリームアプリケーションへの適合性をqPCRおよびQubit 4によって確認しました。最適化された手法の性能をベンチマークするため、同一の実験条件(同一のMycobacterium種、培養量、増殖相(対数増殖期および定常期)、および溶菌条件)の下で、TRIzolおよびRNeasyを用いた並行的なRNA抽出を実施しました。これにより、収量、品質、実現可能性、およびコストの直接的な比較が可能となりました。最適化されたホットフェノール法は、試薬コストと特殊装置への依存度を大幅に削減しつつ、同等またはそれ以上のRNA収量と品質を示しました。その効率性、再現性、および経済性により、本プロトコルはMtbおよびその他のマイコバクテリウム属における大規模な遺伝子発現およびトランスクリプトーム研究のための実用的な代替案を提供します。
概要
M. tuberculosis (Mtb)は結核 (TB) の原因菌であり、HIV/AIDSを上回り、単一の感染性病原体による死因として依然として最大の要因となっています。2024年、結核による死亡者は世界全体で約130万人に達しました1。この負担は、多剤耐性 (MDR) および広範囲薬剤耐性 (XDR) 株の有病率の上昇によってさらに深刻化しています。したがって、結核の病原性の分子基盤を理解し、新たな治療標的を特定することが急務となっています2。
Mtbの転写プロファイリングは、宿主と病原体の相互作用3、環境ストレスへの適応4、および薬剤耐性の根底にあるメカニズム5に関与する機能的要素を解明するための重要なツールとなっています。リアルタイムPCR、マイクロアレイ、RNAシーケンシング(RNA-seq)などの高度な手法により、マイコバクテリアのトランスクリプトームを分析する能力が大幅に向上しました6。しかし、これらの手法の成否は高品質なRNAの得られるかどうかに大きく依存しており、それは抽出時の効率的な細胞溶解にかかっています。Mtbの複雑なミコールイル-アラビノガラクタン-ペプチドグリカン細胞壁は、RNA抽出を特に困難にしています7。酵素加水分解8、超音波処理9、ビーズビーティング10を含む既存の溶解技術は、高価な装置や大量の培養液を必要とすることが多く、多くのBSL-3研究室における実用性を制限しています。さらに、Mtbの増殖速度が遅いため、十分なバイオマスを得るには長時間の培養が必要です11。
これらの制限を克服するために、迅速かつ経済的な、最適化されたホットフェノール法によるRNA抽出法が開発されました。対数増殖期中期の培養液をわずか3 mL使用するだけで、この方法により、下流のトランスクリプトーム解析に適した高品質なRNAが45–60 µg得られます。細胞溶解には、小型の手持ち式組織グラインダーと入手容易な試薬を使用するため、高価な装置は不要です。ホットフェノール法は以前に報告されていますが1,12、最適化されたこのホットフェノール法は、利便性、費用対効果、およびRNA収量を向上させています。最適化はM. smegmatis mc215 (Msmeg)を用いて行われ、Mtb H37Rvで正常に検証されました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
使用した試薬および機器は、以下の通り記載されています。 材料一覧表.
1. Mycobacteriumの培養
- 0.2%グリセロール、0.05% Tween 80、および10% ADCを添加した10 mLのMiddlebrook 7H9培地に、MsmegまたはMtbのグリセロールストックから1 mLを接種し、 37 °C ODが1〜1.5に達するまで、150 rpmで振とうしながら培養する。
- 7H9培地10 mLに一次培養液を1%添加し、対数増殖期中期(OD)に達するまで二次培養を行う。600nm = 0.6–0.7.
- 培養液を3 mLずつ分注し、2000 x gで遠心分離する。 g 室温(23–25 °C).
- ペレットを-で保存する。80 °C RNA抽出まで。
注意:Mtb培養物については、適切なBSL3ガイドラインに従い、ペレットを95℃で20~25分間加熱不活性化させてください。
注: 図1 ホットフェノール法によるRNA抽出において、行われる基本手順のフローチャートを示します。
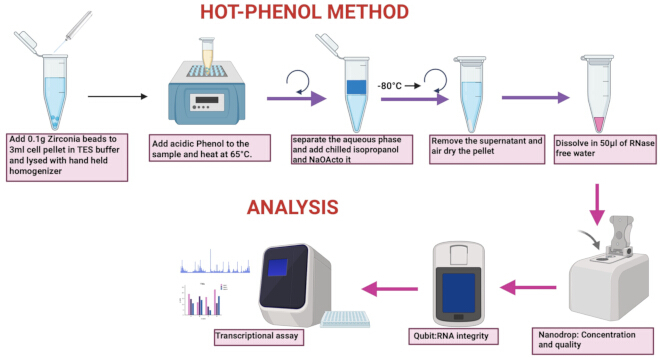
図 1: ホットフェノール法および分析の概略図。 ここをクリックして、この図の拡大版を表示してください。
2. RNA抽出
- 熱フェノール法(HP法)
- 追加 200 µL TESバッファー(100 mM Tris-HCl, pH 8.0; 5 mM EDTA, pH 8.0; 0.1 M NaCl; % SDS; 1% β-メルカプトエタノール)を細胞ペレットに加え、ボルテックスミキサーで懸濁させる。
- サンプルに約0.1 gの0.1 mmシリカビーズを加える。ハンドティッシュグラインダーを用い、氷上でペレットが完全に融解するまで10〜15秒間処理する。この工程をさらに2サイクル繰り返し、各繰り返しの後に液体窒素で急冷する。
- または 卓上高速ビーズ破砕機を用い、室温にて速度設定5(5.0 m/s)で1分間処理する。この操作を3サイクル繰り返し、各サイクルの後にはサンプルを氷上でインキュベートして加熱を防止する。
注:ハンドヘルド式組織グラインダーまたはビードラプチャーを用い、Mtb細胞の溶解を6~8サイクル(1サイクルあたり1分)繰り返す。各サイクルの後には、間欠的に氷上で冷却すること。RNA抽出に必要なすべてのバッファーおよび試薬の調製には、DEPC(ジエチルピロカルボネート)処理水を使用すること。 - 追加してください 200 µL TESバッファー(~まで予熱する) 65 °C)を各サンプルに加え、最終容量を~まで調整する 400 µL各サンプルに、〜を添加する。 200 µL 酸性フェノール(100 mMクエン酸緩衝液、pH 4.5で平衡化したフェノール)および 200 µL クロロホルム(サンプルに添加する前に、酸性フェノールとクロロホルムを等量で混合すること)。
- サンプルを以下の条件でインキュベートする。 65 °C シェーキング機能付きヒートブロックを用い、900 rpmで30分間振盪後、12,000 x gで遠心分離し g 室温で15分間静置する。遠心分離後、適切に相分離していることを確認する(RNAを含む透明な上層の水相、明確なDNAの間層、およびタンパク質と脂質を含む下層の有機相が観察される)。
- 上層の水相を取り除き、新しい1.5 mLマイクロ遠心チューブに移す。同量の酸性フェノール:クロロホルムを再度加え、12,000 x gで遠心分離する。 g 室温で15分間静置してください。適切に相分離が行われていることを確認してください。
- 上層の水相を新しい1.5 mLマイクロ遠心チューブに移し、次に以下を添加する。 30 µL 3 M 酢酸ナトリウム緩衝液(pH 5.3)および 240 µL 冷却したイソプロパノールを加え、−でインキュベートする。80 °C 30分から1時間。
注:マイクロ遠心チューブは-℃で一晩保存することが可能です。80 °C この段階で、マイクロ遠心チューブが開封されるのを防ぐため、パラフィルムを複数層にわたって巻いて封止します。 65 °C インキュベーション中。
注意: フェノールおよびクロロホルムは有害化学物質であるため、適切な個人用保護具(PPE)の着用、ドラフトチャンバーなどのエンジニアリングコントロールの導入、および特定の廃棄物処理手順に従う必要があります。 - 12,000 x g で遠心分離する g 室温で1時間静置する。ペレットが形成されていることを確認し、ペレットを乱さないように注意して上清を除去する。
- ペレットを1 mLの75%エタノールで再懸濁し、12,000 x gで遠心分離します。 g 室温で1分間静置する。この操作を2回繰り返し、ペレットを風乾させる。
- ペレットを〜に再懸濁します。 50 µL ヌクレアーゼフリー水の。
注:RNAを溶解させるには、RNaseフリー水に懸濁し、室温で10〜30分間インキュベートしてください。
- TRIzol法
- 追加 200 µL TRIzol試薬を細胞ペレットに加えます。
注意: TRIzolは有害化学物質であるため、適切な個人用保護具(PPE)の着用、ドラフトチャンバーなどのエンジニアリングコントロールの利用、および特定の廃棄物処理手順に従ってください。 - ステップ2.1.2から2.1.3に従って、細胞溶解法を行う。
- 追加してください 200 µL TRIzol試薬を加え、続いて 200 µL クロロフォームを加え、1分間ボルテックスする。13,400 x gで遠心分離し、 g 15分間、~で 4 °C遠心分離後、適切に相分離が行われていることを確認してください。
- 水相を新しい1.5 mLマイクロ遠心チューブに慎重に転移させる。
- 以下を添加してRNAを沈殿させる。 500 µL イソプロパノールを水相に加え、-80 °C 30分から1時間。
- 15,000 x g で遠心分離し、RNAをペレット化します。 g 20分間、以下の条件で 4 °Cペレットを注意深く観察し、ペレットを乱さないように上清を除去する。
- ペレットを1 mLの75%エタノールで再懸濁し、13,400 x gで遠心分離します。 g 1分間、〜で 4 °Cこの工程を2回繰り返し、ペレットを室温で30分間風乾させた後、以下に再懸濁させる。 50 µL ヌクレアーゼフリー水で。
- 追加 200 µL TRIzol試薬を細胞ペレットに加えます。
- 市販のRNA抽出キットを用いた手法
- 細胞ペレットを以下の液で再懸濁します。 200 µL 再懸濁バッファー(キットに付属)の
- ステップ2.1.2および2.1.3に従って細胞溶解操作を行う。
- 以降の実験は、製造元の指示に従って実施してください。
3. DNase処理、定量および可視化
- ゲノムDNAの混入を除去するため、各RNAサンプルにDNase I (10units) 1 µLとRDDバッファー (1x) 5 µLを加え、室温で30分間インキュベートする。
- Nanodropを用いてRNAサンプルの量を分光光度計で定量し、Qubit4を用いてRNAの完全性を定量する。RINの許容値は7.5〜10とする。A260/A280およびA260/A230の許容値は、それぞれ1.8~2.0および2.0~2.2の範囲とする。
- 1X RNAローディングダイを用い、1%アガロースゲルでRNAを可視化する。
4. cDNA合成および定量リアルタイムPCR
- cDNA逆転写キットおよび1 µgのRNAを用い、メーカーの指示に従ってサーマルサイクラーでcDNA調製のための20 µL反応系を構築する。
- メーカーの指示に従い、50 ngのcDNA、各0.4 µMのプライマー、およびSYBRを用いて10 µLのリアルタイムPCR反応系を構築する。リアルタイムPCR用サーマルサイクラーでサンプルを解析する。
注:qPCR解析には以下のプライマーを使用した:
Mtb sigA Fw 5' cctcaaacagatcggcaagg 3', Mtb sigA Rv 5' cagatccacatcatgtcgcg 3'
Mtb hsp70 Fw 5’ gctggtggacaagttcaagg 3', Mtb hsp70 Rv 5' ggtcagctgctcgtctaaga 3'
Mtb16srRNA Fw 5' gcgatacgggcagactagag 3', Mtb16srRNA Rv 5' aaggaaggaaacccacacct 3'
Ms. sigA Fw 5' gaagacaccgacctggaact 3', Ms.sigA ms Rv. 5' gactcttcctcgtcccacac 3'
Ms. sigH Fw 5' gaagggttcccgtacaagg 3', Ms sigH Rv. 5' tcatgacgtcacctcctcg 3'
Ms. sigE Fw 5' caccaccaaccttttcctcg 3', Ms. sigE Rv. 5' accctcgatgtcacacagg 3'
5. 統計解析
- Graph Pad Prismを用いて、すべての生物学的レプリケートに対してStudent's t-testを行い、P ≤ 0.05を統計的に有意であると見なした。エラーバーは、少なくとも3つの生物学的レプリケートから得られた標準誤差を示す。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
RNAの品質と収量
アガロースゲル電気泳動により、RNAの品質と量を評価した(Figure 2)。 すべての抽出法において、23Sおよび16S rRNAに対応する明確でシャープなバンドが観察され、全RNAの単離が成功したことが確認された。Hot Phenol法とTRIzol法では、23S(~2900 bp)、16S(~1500 bp)、および5S rRNA(~120 bp)を示す3本の明瞭なバンドが認められ、分解のない高品質なRNAであることが示された。対照的に、カラムベースのキット法では23Sと16Sのバンドのみが観察され、5S rRNAのバンドは消失しているか検出限界以下であった。これは、カラム精製中に小型RNAが優先的に失われたためと考えられる。定量的に見ると、Hot Phenol法によるRNA収量は、TRIzol法およびRNeasy法と比較してそれぞれ1.5~2倍であった(Figure 2A
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
Mycobacterium向けの簡便で堅牢なRNA抽出法を開発するため、ホットフェノール法を最適化した。続いて、抽出されたRNAを、広く用いられている2つの手法であるTRIzol法およびカラムベースのキット法12,13と比較した。これらの手法を、RNAの収量、純度、完全性、コスト、および処理時間の観点から比較し、下流の分子生物学的アプリケーションへの実用性を評価した。ホットフェノール法とTRIzol法は、キット法に比べて比較的時間がかかるものの、分解のない高品質なRNAを得ることができた。3つの手法すべてで同等の純度と完全性のRNAが得られたが、ホットフェノール法は一貫してより高いRNA収量を示した。さらに、ホットフェノール法とTRIzol法で抽出したRNAは、同様のCt値を示した。しかし、ホットフェノール法とRNeasy法の間では、Ct値に統計的に有意な差が認められた。実験には等量のRNAを使用したため、すべての手法で同様のCt値が得られることが予想されていた。RNeasy法で見られたこれらの差は、R...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者間に利益相反はありません。すべての著者が本論文の投稿を承認しています。
謝辞
バイオテクノロジー局(DBT)、インド医学研究評議会(ICMR)、および科学工学研究委員会(SERB)からの支援に感謝いたします。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.1 mm シリカビーズ | MP Biomedicals | MP1691050 | |
| 2-プロパノール | シグマ | 278475 | |
| Bead Ruptor 4 | Revvity | ||
| クロロホルム | シグマ | 288306 | |
| 冷却遠心分離機 | ThermoScientific | 42541217 | |
| DNase I | QIAGEN | 79254 | |
| EDTA | シグマ | E02SS | |
| HCl | SRL | 62889 | |
| ヒートブロック | MIULAB | MU-E02-1049 | |
| 高効率 cDNA 逆転写キット | Thermo Fisher Scientific | 4368814 | |
| モーター駆動式組織ホモジナイザー G10 | コロナ | G261608 | |
| NaCl | シグマ | S586 | |
| Nanophotometer N50 | 実装 | T51601 | |
| 0.1 M クエン酸緩衝液(pH 4.5)で平衡化したフェノール | シグマ | P4682 | |
| PowerUP SYBR | Applied Biosystems | A25742 | |
| Qubit 4 フッ路計 | Invitrogen | 2.32262E+12 | |
| リアルタイムPCRサーマルサイクラー | Analytik Jena AG | 844-00503-2 | |
| RNeasy Kit | Qiagen | 74104 | |
| 安全データシート | シグマ | S988 | |
| 酢酸ナトリウム | シグマ | S289 | |
| サーマルサイクラー | Bio-Rad | 621BR29739 | |
| TRI Reagent | シグマ | T9424 | |
| Tris塩基 | Himedia | MB029 | |
| β2-メルカプトエタノール | シグマ | 516732 |
参考文献
- Global tuberculosis report, 2024. , Available from: https://www.who.int/publications/b/74877 (2024).
- Lange, C., et al. Drug-resistant tuberculosis: An update on disease burden, diagnosis and treatment. Respirology. 23 (7), 656-673 (2018).
- Tailleux, L., et al. Probing host-pathogen cross-talk by transcriptional profiling of both Mycobacterium tuberculosis and infected human dendritic cells and macrophages. PLoS One. 3 (1), e1403(2008).
- Voskuil, M. I., et al. Inhibition of respiration by nitric oxide induces a Mycobacterium tuberculosis dormancy program. J Exp Med. 198 (5), 705-713 (2003).
- Zhang, Y., Yew, W. W. Mechanisms of drug resistance in Mycobacterium tuberculosis. Int J Tuberc Lung Dis. 13 (11), 1320-1330 (2009).
- Arnvig, K. B., Young, D. B. Identification of small RNAs in Mycobacterium tuberculosis. Mol Microbiol. 73 (3), 397-408 (2009).
- Brennan, P. J., Nikaido, H. The envelope of mycobacteria. Annu Rev Biochem. 64, 29-63 (1995).
- Belisle, J. T., Sonnenberg, M. G. Isolation of genomic DNA from mycobacteria. Methods Mol Biol. 101, 31-44 (1998).
- Manganelli, R., et al. Role of the extracytoplasmic-function sigma factor σH in Mycobacterium tuberculosis global gene expression. Mol Microbiol. 45 (2), 365-374 (2002).
- Rustad, T. R., et al. Global analysis of mRNA stability in Mycobacterium tuberculosis. Nucleic Acids Res. 41 (1), 509-517 (2013).
- Mangan, J. A., Sole, K. M., Mitchson, D. A., Butcher, P. D. An effective method of RNA extraction from bacteria refractory to disruption, including mycobacteria. Nucleic Acids Res. 25 (3), 675-676 (1997).
- Venkataraman, B., Gupta, N., Gupta, A. A robust and efficient method for the isolation of DNA-free, pure and intact RNA from Mycobacterium tuberculosis. J Microbiol Meth. 93 (3), 198-202 (2013).
- Hiebert, R. M., et al. RNA extraction and RNA-sequencing method for transcriptomic analysis of Mycobacterium tuberculosis. Biotechniques. 77 (1), 23-34 (2025).
- Kumar, K., Tharad, M., Ganapathy, S., et al. Phenylalanine-rich peptides potently bind ESAT6, a virulence determinant of Mycobacterium tuberculosis, and concurrently affect the pathogen's growth. PLoS One. 4, e7615(2009).
- Alli, A. O., et al. Optimization of RNA extraction in Mycobacterium tuberculosis for studying intracellular gene expression. Afr J Clin Exp Microbiol. 10 (2), 64-79 (2009).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
