ここでは、代謝性の高い近位管上皮細胞における低酸素/再酸素化損傷をモデル化する in vitro プロトコルを説明します。このモデルは、近位細管損傷マーカーの発現やミトコンドリア呼吸機能の評価を通じて測定可能な代謝ストレス誘発性損傷を誘導するよう設計されています。
この記事について
サマリー
要約
腎臓移植は、移植された全臓器の約60%〜65%を占めています。ほとんどのドナー腎臓は故人から入手されるため、長期の冷保存が必要であり、これが移植結果の悪化の要因として知られています。現在の保存戦略にもかかわらず、虚血再灌流損傷(IRI)は一時的な血流遮断による避けられない結果であり、酸素と栄養の欠乏を引き起こします。ネフロン内では、S3セグメントの近位管状上皮細胞(PTEC)が高い代謝需要とミトコンドリアの酸化リン酸化依存によりIRIに特に感受性が高い。分子レベルでは、IRIはミトコンドリア代謝を妨げ、ATP産生を減少させることで、近位管上皮細胞(PTEC)のエネルギー需要を抑制し、アポトーシスや壊死を促進します。これらのメカニズムを調査し、治療戦略の可能性を評価するためには、PTECの代謝脆弱性を正確に再現する堅牢かつ再現可能な in vitro モデルが不可欠です。ここでは、マウスの不死化PTEC(IM-PTEC)における低酸素症/再酸素化(H/R)損傷の誘導および評価に関するプロトコルを説明します。プロトコルには、これらの細胞を維持するために必要な培地組成および培養条件に関する詳細な情報が含まれており、その後、移植腎臓の虚血および再灌流イベントを非常によく模倣した制御された低酸素および再酸素化フェーズを通じてH/R損傷を誘導します。このモデルは、H/R損傷にさらされた腎上皮細胞に対するさまざまな介入の効果を評価するための貴重なプラットフォームを提供します。これらの治療の効果は、PT損傷に関連するマーカーの発現解析やミトコンドリア呼吸機能の評価を通じて評価できます。これらの数値は、化合物の有効性や細胞回復過程に関するメカニズム的洞察を提供し、腎IRIの標的治療の開発を支援します。
概要
グローバル・オブ・ドネーション・アンド・トランスプラントによれば、腎臓移植は世界中の固形臓器移植の約60%〜65%を占めており、2023年に実施された手術件数は肝臓移植のほぼ3倍に達し、肝臓移植が2番目に多いタイプです。その年に行われた腎臓移植の61%は、臓器が亡くなったドナーから提供されており、これは生存ドナーからの移植に比べて保存期間が長いものであり、生存ドナーの移植は待ち時間が著しく短い2。この保存期間中、腎臓は通常、細胞代謝を遅らせるために静的冷却保存を用いて保存し、酸素やエネルギーの需要を減らし、虚血性損傷を抑制します。しかし、静的冷蔵は細胞の代謝や酸素供給を完全に維持できず、保存中に進行性の代謝機能障害を引き起こすため、部分的な保護しか提供しません。あるいは、生体外の正常な保存法が、臓器を生理的温度に近い状態に保ち、細胞代謝と酸素供給を支え、その結果として虚血再灌流損傷(IRI)を減少させる有効な戦略として浮上しています。
しかし、腎移植の際には、IRIによる急性腎損傷(AKI)は避けられない結果となります。IRIは臓器内の血流が途絶え、酸素と栄養素の供給と需要の不均衡を引き起こすことにより生じます。この過程は移植された腎臓の機能に直接影響を与え、急性拒絶反応のリスクを高め、長期的な移植片機能の低下を招きます 8,9。
特に腎皮質に豊富に見られるPTECSは、IRIに対して特に脆弱です。これらの細胞は細管上皮の約60%〜70%を占め、水、イオン、グルコース、アミノ酸を含む糸球体濾過の大部分の再吸収を担っています10。彼らの高い代謝活動は、ATP依存的な輸送要求を満たすための広範なミトコンドリアネットワークによって支えられています11。そのため、酸素不足やミトコンドリア機能障害など、IRI12の中心的な特徴である代謝障害に非常に敏感です。
IRI中、酸素の欠乏によりミトコンドリアの酸化的リン酸化が妨げられ、ATPの枯渇と再吸収機能の障害が生じます13,14。これにより脂肪酸酸化(FAO)から嫌気性解糖作用への代謝切り替えが始まり、ペントースリン酸経路の活性化が始まります。これは一時的に保護効果はあるものの、これらの細胞のエネルギーおよび酸化還元要求を完全に満たすには不十分です15。修復段階でFAOの抑制が続くと、脂質の蓄積16と脂肪毒性が17を引き起こし、細胞をさらに損傷させ再生能力を低下させます。この不適応な代謝状態は最終的に卵管萎縮、間質性線維症、慢性腎疾患への進行を引き起こす可能性があります。
この代謝障害は欠陥のあるFAOによって引き起こされ、腎細管の高いエネルギー要求を満たす能力を妨げています17,19。その結果生じるATPの枯渇と脂質蓄積はミトコンドリア機能障害を促進し、活性酸素種の生成を促進し、炎症促進シグナル伝達と白血球浸潤を活性化します20,21,22。持続的な炎症と酸化損傷はミトコンドリアの完全性を不安定にし、エネルギー喪失を増幅させ、最終的にアポトーシスおよび壊死性の細胞死を引き起こす23,24。この急性損傷期では、腎損傷分子1(KIM-1)や好中球ゼラチナーゼ関連リポカリン(NGAL)などの特定のバイオマーカーが上位調節され、近位管損傷および早期AKI25の敏感な指標となります。
急性損傷後、不適応修復機構は過剰な細胞外マトリックス沈着を促進し、これは腎線維症の特徴である26。細胞外マトリックスの成分の中で、特にタイプIコラーゲン(Col1a1遺伝子によってコードされる)が間質空間に蓄積し、管状萎縮や機能的な実質の喪失に寄与します。この線維化的再構築は主に管状老化および管状上皮細胞における部分的上皮から間葉への移行(pEMT)によって引き起こされ、最終的に腎機能の低下をもたらします 28,29,30。腎のpEMTと線維化の発症は、AKIから慢性腎疾患(CKD)への進行を助け、最終的には腎機能の不可逆的な喪失と移植片生存の低下をもたらします(31,32)。
本プロトコルでは、マウスSV40不死化近位管上皮細胞(IM-PTEC)を用いて、制御されたH/R条件を用いるH/R損傷のin vitroモデルを記述します。腎IRIの前臨床研究の多くは、腎臓の複雑な血管および免疫応答を再現する動物モデルに依存してきましたが、コストが高く、倫理的な懸念があり、生物学的変動性もかなり高くなります(33,34)。これらの制限により、詳細な機構的かつ高スループットの研究に有効な補完的な細胞ベースのシステムの開発が遅れています。この実験装置により、酸素欠乏と回復の再現性を可能にし、移植腎臓で観察されるIRIの主要な特徴を模倣しています。このモデルは、管理された環境下で管状損傷、バイオマーカー発現、線維化反応の細胞および分子メカニズムを研究するための貴重なツールとして機能します。さらに、虚血損傷の予防や軽減、移植後の転帰改善を目的とした治療戦略のスクリーニングと評価のための適切なプラットフォームを提供します。
プロトコル
本プロトコルで使用された細胞は、本研究の文脈で単離されていません。これらは以前に分離され、他の研究者によって提供されていました35。したがって、新たな動物実験は行われず、本研究には倫理的承認は必要ありませんでした。
1. IM-PTEC文化
- 表1に記載されたL3培地を準備します。
- IM-PTECのバイアルを解凍してください。約1×10⁶個の細胞を、標準条件(5%CO2、大気中の酸素2)で33°Cの加湿インキュベーターで80%の合流(通常3日後に到達)まで培養します。
注:IM-PTECはImmortoマウスから分離されています。IM-PTECの分離に関する詳細なプロトコルについては、35を参照してください。 - サブカルチャー細胞を週2回、約1:10の分割比率で行います。配皮時には、0.05%トリプシン-EDTAを用いて33°Cで2〜3分間接着単分子層を剥離し、完全な培地で中和し、新鮮な培養フラスコに再播種します。
| コンポーネント | 量/最終媒体濃度 |
| DMEM/F12 | 500 mL |
| 胎児の子牛血清(FCS) | 10% |
| ペニシリン | 10,000 U/mL |
| ストレプトマイシン | 10,000 μg/mL |
| L-グルタミン | 0.02 μM |
| インスリン | 5 μg/mL |
| トランスフェリン | 5 μg/mL |
| セレンナイトナトリウム | 5 μg/mL |
| トリヨードサイロニン | 40 pg/mL |
| ヒドロコルチゾン | 36 ng/mL |
| 表皮成長因子 | 20 ng/mL |
| インターフェロンγ(IFN-γ) | 10 ng/mL |
表1:L3中等の組成。
2. IM-PTECの制限的培養
- ステップ1.3で説明したサブカルチャーを行い、IM-PTECsのT-25フラスコ1個からインターフェロンγなしの約10 mLのL3培地(IFN-γを含むT-75フラスコ)に細胞懸濁液全体を移します。標準条件下で37°Cで80%合流点まで培養(通常3日後に到達)。
- ステップ1.3で説明したサブカルチャーを行い、1つのT-75フラスコからIFN γなし約20mLのL3培地を含む2つのT-175フラスコに細胞懸濁液全体を移します。標準条件下で37°Cで80%合流点まで培養(通常3日後に到達)。
- 実験用に、0.05%トリプシン-EDTAを用いて結合培養から細胞を剥離し、完全な培地に再懸浮させ、所望密度(約1×10⁵)でシードすることでIM-PTECをプレートします。分子マーカー発現解析には6ウェルプレート、ミトコンドリア呼吸研究に適した96ウェル細胞培養マイクロプレートを使用します。
注意:他の実験では適切な培養フォーマットを用いてください。- ミトコンドリア呼吸研究のために96ウェルの細胞培養マイクロプレートに細胞をプレートする際は、4つの角のウェルを空にして背景補正として使用してください。マイクロプレートは室温で1時間放置してからインキュベーターに入れ、細胞が沈殿するまで待ちます。
3. 低酸素症/再酸素化手順(図1)
- IM-PTECをリフレッシュするには、培養培地を除去し、IFN-γを含まない新しいL3培地を追加してください(96ウェルプレートなら0.1mL/ウェル、6ウェルプレートなら2mL/ウェル)。細胞を1%酸素、5%CO2、 37°Cの低酸素培養盤に48時間置きます。
- 低酸素インキュベーターから細胞を取り出し、IFN γを含まないL3培地でリフレッシュします。細胞を標準のO2 条件で細胞培養インキュベーターに入れ、5%CO2 を37°Cで24時間放置します。
注:低酸素状態は、低酸素インキュベーターまたは制御ガス供給に接続されたモジュール式低酸素チャンバーのいずれかで達成可能です。
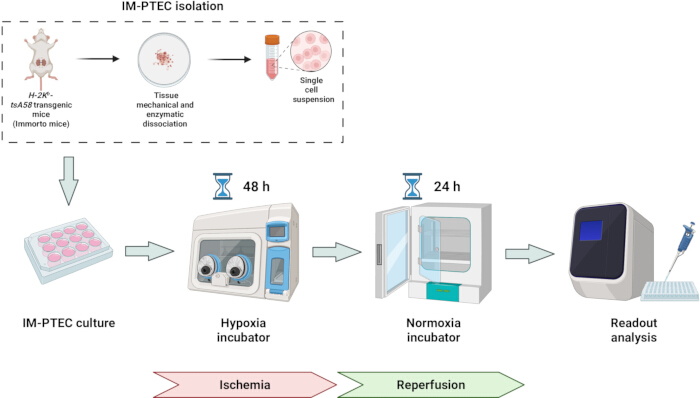
図1:不死化された近位管上皮細胞(IM-PTEC)におけるin vitro H/Rモデルの概略的表示。 H-2Kb-tsA58トランスジェニック(Immorto)マウス由来のIM-PTECを正常酸素状態で培養し、低酸素状態(1%O2、48時間)、その後再酸素化(標準酸素2条件下、24時間)を行い、読み取り解析を行いました。 この図の拡大版はこちらをクリックしてご覧ください。
4. 分子マーカーの発現解析
- RNA単離
- 6ウェルプレートの各ウェルに800μLのRNA分離試薬を加えます。室温で5分間孵育します。サンプルをRNAseフリーの1.5 mLマイクロ遠心分離管に移します。
- クロロホルム200μLを加え、ピペッティングで15秒間よく混ぜます。室温で2〜3分間孵育させます。
- 遠心分離機で12,000 x g 、4°Cで12分間。水性トップ相をRNAseフリーの1.5 mLマイクロ遠心分離管に移します。
- イソプロパノール500μLを加えます。室温で10分間培養します。遠心分離機は12,000 x g 、4°Cで10分間。
- 上澄液を捨て、70%エタノール1mLでペレットを洗います。遠心分離機で5,000 x g 、4°Cで5分間加熱します。上清液は捨てる。
- ペレットは自然乾燥させます。ペレットを12μLのRNAseフリー水に溶かします。
- サンプルを56°Cで15分間加熱します。マイクロボリュームUV-Vis分光光度計でRNA濃度を測定します。
注意:RNA分解を防ぐため、培養間は常にサンプルを氷に保管してください。
- 逆転写
- 氷上に置き、RNAseフリー0.2 mLのマイクロ遠心分離チューブに以下の反応成分を加えます:マスターミックス10 μL(2x)、酵素ミックス2 μL、RNA 1〜5 μg、ヌクレアーゼフリーH2O最大20 μL。
- 優しく混ぜて25°Cで10分間培養し、その後50〜55°Cで10分間孵育します。
- 反応を不活化させるには85°Cで5分間加熱し、氷で冷やします。cDNAを1:5または1:10で希釈します。
- リアルタイム定量PCR(RT-qPCR)
- プライマーセットは最終濃度10μMで混合して準備します(表2)。
- 各遺伝子ごとに、1ウェルあたり以下の試薬を含むリアルタイム(RT)qPCRミックスを準備します:5μLのRT-qPCRマスターミックス;10 μMの順方向プライマー 0.4 μL、逆方向プライマー 0.4 μL、ヌクレアーゼフリーのH2Oを2.2 μL。
- 384ウェルのPCRプレートの各ウェルに8μLのRT-qPCRミックスを加えます。各ウェルに2μLのcDNAサンプルを加え、ウェルの端に滴を残します。
- すべてのサンプルを加えた後、プレートを優しく叩き、すべての滴がウェルに落ちるまで叩きます。プレートをその膜でしっかり密封してください。384ウェルPCRプレートを回転させます。
- RT qPCRシステムで以下のプログラムで測定します:98°Cを30秒間、98°Cを40サイクル10秒、続いて60°Cで30秒、融解曲線を95°Cで測定します。
| 遺伝子 | プライマー配列 |
| キム-1 | F: 5' - TGGTTGCCTTCCGTGTCTCT |
| 右サイド:5' - TCAGCTCGGGAATGCACAA | |
| ンガル | F: 5' - ATGTCACCACCCATCCTGGTCAG |
| 右:5フィート - GCCACTTGCACATTGTAGCTG | |
| Acta2 | F: 5' - GCCATCTTTCATTGGGATGGA |
| 右:5' - CCCCTGACAGGACGTGTGTTA | |
| Col1a1 | F: 5' - CCTCAGGGTATTGCTGGACAAC |
| 右:5' - カガアガッカッタッタッカッカッ |
表2:RT-qPCRに使用されるプライマー配列。
5. ミトコンドリア呼吸機能評価
- アッセイの前日
- 酸素消費率(OCR)/細胞外酸性化率(ECAR)分析装置を起動し、実験の少なくとも5時間前から温めてください。
- センサーカートリッジを37°Cで非CO2 インキュベーターで一晩水和させてください。
- 検査日
- 96ウェルの細胞培養マイクロプレート1枚分のアッセイ培地を準備します。その中には、33.4mLのDMEM培地pH7.4が含まれています。グルコース0.875 mL 1 M(最終濃度25 mM);ピルビン酸0.35 mL 100 mM(最終濃度1 mM);およびグルタミン0.35 mL 200 mM(最終濃度2 mM)を投与しました。
- 表3に従って阻害剤溶液を準備します。
- 組み立て済みのセンサーカートリッジをインキュベーターから取り出します。マルチチャネルピペットとローディングガイドを用いて、各阻害剤を対応するポートに25μLを充填します。
- 細胞培養マイクロプレートから細胞培養培地を取り出します。マルチチャンネルピペットを使って各ウェルに175μLの予備加熱(37°C)アッセイ培地を加えます。
- アッセイの前に細胞培養マイクロプレートを37°Cの非CO2 インキュベーターに45〜60分間置きます。
- 装填済みセンサーカートリッジ付きの校正プレートをOCR/ECARアナライザーに入れて校正します。
- 細胞培養マイクロプレートを機器に置いて測定します。
- ラン後は、データ正規化のために細胞培養マイクロプレートを保存し、全タンパク質の定量化に使います。
| [カートリッジ](μM) | [アッセイ・ミディアム](μM) | ポートA | ポートB | ポートC | |
| オリゴマイシン | 12 | 1.5 | 8.4 μL | ||
| FCCP | 9 | 1 | 6.3 μL | ||
| アンチマイシンA | 25 | 2.5 | 17.5 μL | ||
| ロテノン | 12.5 | 1.25 | 8.75 μL | ||
| アッセイ培地 | 3.5 mL | 3.5 mL |
表3:ミトコンドリア呼吸評価のための阻害剤溶液。
結果
IM-PTECにおける虚血損傷の再現に最適な低酸素/再酸素化(H/R)条件を決定するために、まず時間経過検証が行われました。カスパーゼ3活性化は、生体内およびin vitroの両方で腎虚血再灌流損傷の特徴であり、モデルの忠実度の指標として用いられた36,37。その結果、48時間の低酸素状態と24時間の再酸素化が最も大きなカスパーゼ3活性の増加が見られました。MTTアッセイで評価された細胞生存率は、これらの条件下で正常酸素コントロールと同等であり、アポトーシスシグナル伝達が開始されたものの、その後の薬理学的検査において細胞が生存可能であることを示しました(補足図1)。この検証済みプロトコルを用いて、IM-PTECの制御された低酸素/再酸素化を通じてH/R損傷を誘発しました。
虚血性損傷後、RT-qPCRを用いて腎損傷の複数のマーカーの発現を調べました(図2)。RT-qPCRは、IRIの文脈で、急性腎損傷の既知のマーカーであるKim-138,39およびNgal40,41の発現が有意に増加していることを示しました。さらに、腎のpEMT/線維化マーカーであるActa242,43およびCol1a1 44,45,46の発現も増加しました。腎臓のpEMT/線維症マーカーであるだけでなく、Col1a1発現はCKDの重症度と相関しています。/p>
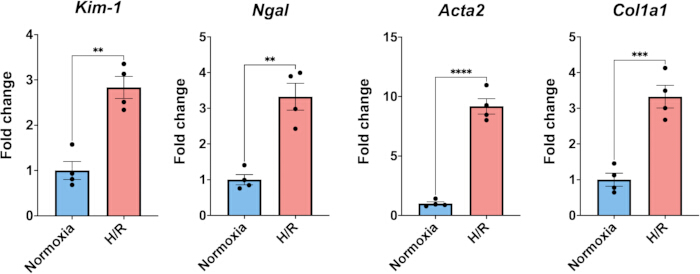
図2:正常酸素または低酸素/再酸素化(H/R)下での腎損傷マーカーの分子発現。H/R後、IM-PTECsでは腎損傷分子マーカーであるKim-1、Ngal、Acta2、Col1a1の発現が有意に増加します。データは各条件ごとに4回の生物学的複製からの平均平均±標準誤差(SEM)として提示されます。統計的有意性は、ペアなしの両側学生検定を用いて評価されました。有意水準は以下の通りです:p < 0.05(*)、p < 0.01(**)、p < 0.001(***)、およびp < 0.0001(****)。この図の拡大版はこちらをクリックしてご覧ください。
また、H/R後のミトコンドリア呼吸能力を調べるためのミトコンドリア呼吸検査も行われました(図3)。酸素消費率(OCR)の測定により、虚血性挑戦後、すべてのミトコンドリア呼吸パラメータ(基礎呼吸、ATP産生、プロトン漏れ、最大呼吸、予備容量)が減少し、ミトコンドリア代謝の障害を示していることが判明しました。
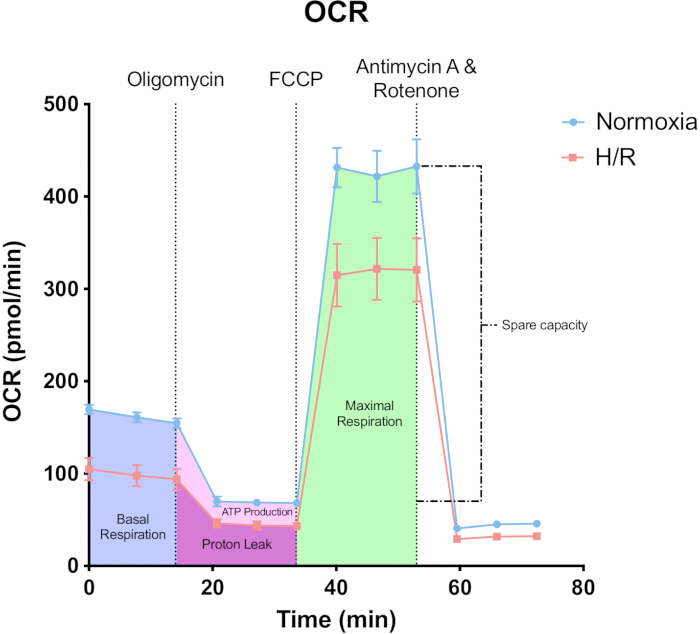
図3:正常酸素または低酸素条件下のIM-PTECにおけるOCR(酸素消費率)。 低酸素/再酸素化(H/R)後、IM-PTECはミトコンドリア呼吸機能の低下を示します。ミトコンドリア呼吸は、オリゴマイシン、FCCP(カルボニルシアン化物-p-フルオロメトキシフェニルヒドラゾン)、アンチマイシンA、ロテノンなどの電子伝達連鎖阻害剤を順次添加することで評価されました。データは各条件ごとに4回の生物学的複製からの平均平均±標準誤差(SEM)として提示されます。 この図の拡大版はこちらをクリックしてご覧ください。
これらの結果は、H/RプロトコルがIM-PTECsにおいて虚血性腎損傷と一致する分子および代謝の変化を効果的に誘発することを裏付けています48,49。したがって、このプロトコルは、腎虚血再灌流様疾患をvitroで再現するための有用な枠組みを提供します。
補足図1。正常酸素状態および低酸素/再酸素化(H/R)条件下での細胞生存率およびカスパーゼ3活性。(A) 細胞生存能力。ノールキシアまたは低酸素/再酸素(H/R)曝露後の細胞生存率はMTTアッセイで評価されました。結果は、ノルマキシックコントロールに正規化された相対生存率(%)として表されます。(B)切断したカスパーゼ-3。切断されたカスパーゼ3活性(nmol/min/mgタンパク質)は、異なる持続時間の常常性(N)、低酸素(H)、再灌流(R)を受けた細胞で定量化されました。データはSEM±平均として提示され、各点は個々の生物学的複製を表します。この図形をダウンロードするには、こちらをクリックしてください。
ディスカッション
腎IRI誘発性AKIの前臨床データの多くは、in vitroモデルが確立されていないため、in vivoモデル50、51、52、53を通じて生成されています。これに加え、よく特徴付けられたマウスの近位管上皮細胞株の入手可能性が限られているため、in vitro研究が制約されており、このプロトコルの開発は貴重な資産となっています。この方法は、管理された条件下で腎のH/R損傷メカニズムを研究するよりアクセスしやすく再現性の高いプラットフォームを提供し、動物の使用の必要性も減らします。
さらに、このプロトコルは主に標準的な実験機器を利用しており、専門的で高価な機器を必要とせずに実装を容易にしています。唯一の例外は、低酸素腫瘍微小環境を再現するために通常がん研究所で利用可能な低酸素インキュベーターの必要性です。このアクセスのしやすさは、より広範な採用を支え、異なる研究室間での再現性を促進します。
このプロトコルで重要な考慮事項の一つは、IM-PTECの正しい培養です。細胞は33°Cで培養し、SV40活性のダウンレギュレーションを避けるためにIFN-γを補う必要があります。実験手順の前に、IM-PTECは実験開始の7日前から制限条件に移されます。制限培養は、温度を37°Cに上げ、培地からインターフェロンガンマ(IFN-γ)を1週間除去することで実現されます。これにより、サルウイルス40によってコードされるウイルスタンパク質SV40の大きなT抗原発現が減少し、細胞の不死化に使われます。35,57は細胞の不死化を失い、より分化し生理学的に重要な表現型を促進する58です。.特に、IM-PTECは培養中に数日間の培養後に顕著な細胞質液胞を発達させることがあります。虚化が起きた場合は、この変化を防ぐまたは逆転させるためにヒドロキシコルチゾンを培養培地から除外すべきです。
不死化PTECの使用は安定性とメンテナンスの容易さという利点がありますが、生理学的関連性を高めるために一次近位管状上皮細胞の使用も検討できます。しかし、マウス一次PTECはドナー間変異が大きく59,60となり、増殖能力が限られているため、高スループットや長期実験には適していません。これらの利用は、検証研究や特定の患者由来反応の研究により適している場合があります
このプロトコルは、H/R損傷の分子メカニズムを調査し、潜在的な治療アプローチを特定・評価し、炎症、酸化ストレス、細胞死経路などの細胞応答を制御された環境下で探求するための貴重なプラットフォームを提供します(63,64)。
しかしながら、このモデルの重要な制約は、腎移植で観察される低体温症や冷蔵時の栄養不足など、虚血の特定の特徴を再現できないことです。これらの疾患は細胞の代謝や損傷パターンに著しく影響を与え、それらが欠如すると、臨床現場への研究結果の応用が制限される可能性があります(65,66)。
結論として、IM-PTECにおけるこのin vitro H/Rモデルは、制御された条件下で腎虚血再灌流損傷を研究するための再現性が高くアクセス可能かつ倫理的に有利なアプローチを提供します。生 体内 虚血の複雑さを完全に再現するものではありませんが、細胞メカニズムの解明、治療候補のスクリーニング、腎臓研究における動物実験への依存を減らすための貴重な補完ツールとなります。
開示事項
著者たちは本研究に対して利益相反がないと宣言し、開示する義務はありません
謝辞
マリアーノ・マリン・ブラスケスはムルシア・カトリック大学(UCAM)の「Programa de Doctorado en Ciencias de la Salud」に所属しています。ルーベン・ラバダン・ロスおよびルーベン・サパタ・ペレスの研究は、科学省、イノベーション大学 - 2023年科学部(PID2023-147560OA-I00)からの助成金によって支援されています。Ruben Rabadán-RosはFundación Séneca - Agencia de Ciencia y Tecnología de la Región de Murcia(22524/JLI/24, Ayudas a Proyectos para la Generación de Nuevo Liderazgo Científico Jóvenes Líderes en Investigación 2024)からの助成金を受けています。ATは、Zonmw(No. 457002002)によるNWO-FAPESPの健康的な老化に関する助成金と、Nierstichtingのジュニアタレント助成金によって財政的に支援されています。
著者たちは、映像が記録された施設へのアクセスを提供してくれたムルシア大学(UM)とカトリカ大学(UCAM)に感謝の意を表します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 384ウェルqPCRプレート | 応用バイオシステム | 4309849 | |
| 遠心分離機 | オルトアルレサ | Biocen22R | |
| クロロホルム | VWR | 0757-500ML | |
| DMEM/F12 | ギブコ | 21331020 | |
| 表皮成長因子 | シグマ・オルドリッチ | E9644 | |
| エタノール | パンリアック・アプリケム | 141086.1214 | |
| FCS | バイオウエスト | S181B-500 | |
| 加熱ブロック | エッペンドルフ | サーモミキサーC | |
| ヒドロコルチゾン | シグマ・オルドリッチ | H0135 | |
| 低酸素インキュベーター | メマート | ICO 50メダル | |
| IFN-γ; | ProspecBIo | CYT-358 | |
| インキュベーター | メマート | ICO 105 | |
| イソプロパノール | VWR | 0918-1L | |
| ITSe | ギブコ | 41400045 | |
| L-グルタミン | ギブコ | 25030081 | |
| マルチチャネルピペット | エッペンドルフ | 3125000052 | |
| 非CO2インキュベーター | |||
| PCRプライマー | ユーロフィンズ・ゲノミクス | ||
| ペニシリン - ストレプトマイシン | ギブコ | 15140-122 | |
| qPCRマスターミックス | NZYTech | MB22303 | |
| リアルタイムqPCRシステム | 応用バイオシステム | クアントスタジオ5 | |
| 逆転写マスターミックス | NZYTech | MB12502 | 酵素ミックスを含む |
| RNAseフリーの水 | ハイクローン | SH3053802 | |
| シーホースXFセルミトストレステストキット | アジレント | 103015-100 | オリゴマイシン、FCCP、アンチマイシンA、ロテノンを含む |
| シーホース XF DMEM ミディアム | アジレント | 103575-100 | |
| シーホースXFグルコース | アジレント | 03577-100 | |
| シーホースXFグルタミン | アジレント | 103579-100 | |
| シーホースXFピルバート | アジレント | 103578-100 | |
| シーホース XFe96アナライザー | アジレント | S7800BR | |
| シーホース XFe96 フラックスパック | アジレント | 103792-100 | XFe96細胞培養マイクロプレートおよびXFe96センサーカートリッジを含みます |
| サーマルサイクラー | バイオ・ラッド | T100サーマルサイクラー | |
| トリイオドチロニン | シグマ・オルドリッチ | T5516 | |
| トリゾール | インビトロジェン | 15596026 | |
| UV-Vis分光光度計 | デノヴィックス | DS-11 |
参考文献
- Use of the data/quoting data. GODT. , Global Observatory on Donation and Transplantation. https://www.transplant-observatory.org/uses-of-dataquoting-data (2016).
- van de Laar, S. C., Lafranca, J. A., Minnee, R. C., Papalois, V., Dor, F. J. M. F. The Impact of Cold Ischaemia Time on Outcomes of Living Donor Kidney Transplantation: A Systematic Review and Meta-Analysis. J Clin Med. 11 (6), 1620(2022).
- Tingle, S. J., et al. Machine perfusion preservation versus static cold storage for deceased donor kidney transplantation. Cochrane Database Syst Rev. 3 (3), CD011671(2019).
- Jing, L., Yao, L., Zhao, M., Peng, L., Liu, M. Organ preservation: from the past to the future. Acta Pharmacol Sin. 39 (5), 845-857 (2018).
- Smith, T. B., Nicholson, M. L., Hosgood, S. A. Advances in Hypothermic and Normothermic Perfusion in Kidney Transplantation. Transplantology. 2 (4), 460-477 (2021).
- Montagud-Marrahi, E., et al. Ex vivo normothermic preservation of a kidney graft from uncontrolled donation after circulatory death over 73 hours. Front Bioeng Biotechnol. 11, 1330043(2023).
- Malek, M., Nematbakhsh, M. Renal ischemia/reperfusion injury; from pathophysiology to treatment. J Renal Inj Prev. 4 (2), 20-27 (2015).
- Ditonno, P., et al. Effects of ischemia-reperfusion injury in kidney transplantation: risk factors and early and long-term outcomes in a single center. Transplant Proc. 45 (7), 2641-2644 (2013).
- Salvadori, M., Rosso, G., Bertoni, E. Update on ischemia-reperfusion injury in kidney transplantation: Pathogenesis and treatment. World J Transplant. 5 (2), 52-67 (2015).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Curthoys, N. P., Moe, O. W. Proximal Tubule Function and Response to Acidosis. Clin J Am Soc Nephrol. 9 (9), 1627-1638 (2014).
- Bhargava, P., Schnellmann, R. G. Mitochondrial energetics in the kidney. Nat Rev Nephrol. 13 (10), 629-646 (2017).
- Erpicum, P., Rowart, P., Defraigne, J. O., Krzesinski, J. M., Jouret, F. What we need to know about lipid-associated injury in case of renal ischemia-reperfusion. Am J Physiol Renal Physiol. 315 (6), F1714-F1719 (2018).
- Vasko, R. Peroxisomes and Kidney Injury. Antioxid Redox Signal. 25 (4), 217-231 (2016).
- Lan, R., et al. Mitochondrial Pathology and Glycolytic Shift during Proximal Tubule Atrophy after Ischemic AKI. J Am Soc Nephrol. 27 (11), 3356-3367 (2016).
- Lipke, K., Kubis-Kubiak, A., Piwowar, A. Molecular Mechanism of Lipotoxicity as an Interesting Aspect in the Development of Pathological States-Current View of Knowledge. Cells. 11 (5), 844(2022).
- Jang, H. S., Noh, M. R., Kim, J., Padanilam, B. J. Defective Mitochondrial Fatty Acid Oxidation and Lipotoxicity in Kidney Diseases. Front. Med. 7, 65(2020).
- Rinaldi, A., et al. Impaired fatty acid metabolism perpetuates lipotoxicity along the transition to chronic kidney injury. JCI Insight. 7 (18), e161783(2022).
- Kang, H. M., et al. Defective fatty acid oxidation in renal tubular epithelial cells has a key role in kidney fibrosis development. Nat Med. 21 (1), 37-46 (2015).
- Chen, Y., et al. Mitochondrial metabolism and targeted treatment strategies in ischemic-induced acute kidney injury. Cell Death Discov. 10 (1), 69(2024).
- Bhatia, D., Capili, A., Choi, M. E. Mitochondrial dysfunction in kidney injury, inflammation, and disease: potential therapeutic approaches. Kidney Res Clin Pract. 39 (3), 244-258 (2020).
- Zhao, L., et al. Energy metabolic reprogramming regulates programmed cell death of renal tubular epithelial cells and might serve as a new therapeutic target for acute kidney injury. Front Cell Dev Biol. 11, 1276217(2023).
- Fontecha-Barriuso, M., et al. Tubular Mitochondrial Dysfunction, Oxidative Stress, and Progression of Chronic Kidney Disease. Antioxidants. 11 (7), 1356(2022).
- Wang, H., Zhang, S., Guo, J. Lipotoxic Proximal Tubular Injury: A Primary Event in Diabetic Kidney Disease. Front Med (Lausanne). 8, 751529(2021).
- Bhosale, S. J., Kulkarni, A. P. Biomarkers in Acute Kidney Injury. Indian J Crit Care Med. 24 (Suppl 3), S90-S93 (2020).
- van der Rijt, S., Leemans, J. C., Florquin, S., Houtkooper, R. H., Tammaro, A. Immunometabolic rewiring of tubular epithelial cells in kidney disease. Nat Rev Nephrol. 18 (9), 588-603 (2022).
- Liu, Y. Cellular and molecular mechanisms of renal fibrosis. Nat Rev Nephrol. 7 (12), 684-696 (2011).
- Lovisa, S., et al. Epithelial-to-mesenchymal transition induces cell cycle arrest and parenchymal damage in renal fibrosis. Nat Med. 21 (9), 998-1009 (2015).
- Luo, C., et al. Wnt9a Promotes Renal Fibrosis by Accelerating Cellular Senescence in Tubular Epithelial Cells. J Am Soc Nephrol. 29 (4), 1238-1256 (2018).
- Mylonas, K. J., et al. Cellular senescence inhibits renal regeneration after injury in mice, with senolytic treatment promoting repair. Sci Transl Med. 13 (594), eabb0203(2021).
- Mimura, I., Nangaku, M. The suffocating kidney: tubulointerstitial hypoxia in end-stage renal disease. Nat Rev Nephrol. 6 (11), 667-678 (2010).
- Fine, L. G., Norman, J. T. Chronic hypoxia as a mechanism of progression of chronic kidney diseases: from hypothesis to novel therapeutics. Kidney International. 74 (7), 867-872 (2008).
- Lerink, L. J. S., et al. Preclinical models versus clinical renal ischemia reperfusion injury: A systematic review based on metabolic signatures. American Journal of Transplantation. 22 (2), 344-370 (2022).
- Harwood, R., et al. Murine models of renal ischemia reperfusion injury: An opportunity for refinement using noninvasive monitoring methods. Physiol Rep. 10 (5), e15211(2022).
- Leemans, J. C., et al. Renal-associated TLR2 mediates ischemia/reperfusion injury in the kidney. J Clin Invest. 115 (10), 2894-2903 (2005).
- Havasi, A., Borkan, S. C. Apoptosis and acute kidney injury. Kidney Int. 80 (1), 29-40 (2011).
- Wang, X., Wang, W., Wang, J. Z., Yang, C., Liang, C. -Z. Effect of apigenin on apoptosis induced by renal ischemia/reperfusion injury in vivo and in vitro. Ren Fail. 40 (1), 498-505 (2018).
- Bonventre, J. V. Kidney injury molecule-1: a translational journey. Trans Am Clin Climatol Assoc. 125, discussion 299 293-299 (2014).
- Ichimura, T., et al. Kidney injury molecule-1 (KIM-1), a putative epithelial cell adhesion molecule containing a novel immunoglobulin domain, is up-regulated in renal cells after injury. J Biol Chem. 273 (7), 4135-4142 (1998).
- Clerico, A., Galli, C., Fortunato, A., Ronco, C. Neutrophil gelatinase-associated lipocalin (NGAL) as biomarker of acute kidney injury: a review of the laboratory characteristics and clinical evidences. Clin Chem Lab Med. 50 (9), 1505-1517 (2012).
- Xu, C., Lin, S., Mao, L., Li, Z. Neutrophil gelatinase-associated lipocalin as predictor of acute kidney injury requiring renal replacement therapy: A systematic review and meta-analysis. Front Med (Lausanne). 9, 859318(2022).
- Huang, R., Fu, P., Ma, L. Kidney fibrosis: from mechanisms to therapeutic medicines. Sig Transduct Target Ther. 8 (1), 1-20 (2023).
- Schreibing, F., Anslinger, T. M., Kramann, R. Fibrosis in Pathology of Heart and Kidney: From Deep RNA-Sequencing to Novel Molecular Targets. Circ Res. 132 (8), 1013-1033 (2023).
- Wang, Q., et al. CircCSPP1 Functions as a ceRNA to Promote Colorectal Carcinoma Cell EMT and Liver Metastasis by Upregulating COL1A1. Front Oncol. 10, 850(2020).
- Zhu, X., Luo, X., Jiang, S., Wang, H. Bone Morphogenetic Protein 1 Targeting COL1A1 and COL1A2 to Regulate the Epithelial-Mesenchymal Transition Process of Colon Cancer SW620 Cells. J Nanosci Nanotechnol. 20 (3), 1366-1374 (2020).
- Salimian, N., Peymani, M., Ghaedi, K., Hashemi, M., Rahimi, E. Collagen 1A1 (COL1A1) and Collagen11A1(COL11A1) as diagnostic biomarkers in Breast, colorectal and gastric cancers. Gene. 892, 147867(2024).
- Mavrogeorgis, E., et al. Collagen-Derived Peptides in CKD: A Link to Fibrosis. Toxins. 14 (1), 10(2022).
- Kurian, G. A., Pemaih, B. Standardization of in vitro Cell-based Model for Renal Ischemia and Reperfusion Injury. Indian J Pharm Sci. 76 (4), 348-353 (2014).
- Strazdauskas, A., et al. In Vitro Hypoxia/Reoxygenation Induces Mitochondrial Cardiolipin Remodeling in Human Kidney Cells. Int J Mol Sci. 25 (11), 6223(2024).
- Wang, H. J., Varner, A., AbouShwareb, T., Atala, A., Yoo, J. J. Ischemia/reperfusion-induced renal failure in rats as a model for evaluating cell therapies. Ren Fail. 34 (10), 1324-1332 (2012).
- Greite, R., et al. Renal ischemia-reperfusion injury causes hypertension and renal perfusion impairment in the CD1 mice which promotes progressive renal fibrosis. Am J Physiol Renal Physiol. 314 (5), F881-F892 (2018).
- Skrypnyk, N. I., Harris, R. C., de Caestecker, M. P. Ischemia-reperfusion Model of Acute Kidney Injury and Post Injury Fibrosis in Mice. J Vis Exp. (78), e50495(2013).
- Le Clef, N., Verhulst, A., D'Haese, P. C., Vervaet, B. A. Unilateral Renal Ischemia-Reperfusion as a Robust Model for Acute to Chronic Kidney Injury in Mice. PLoS One. 11 (3), e0152153(2016).
- Ma, R., He, X., Wang, H., Jia, W., Zeng, X. Hypoxic microenvironment promotes proliferation and invasion of non-small cell lung cancer A549 Cells through Wnt/β-catenin signaling pathway. Biomed Res. 29 (2), 268-273 (2018).
- Metsälä, O., et al. Transportable system enabling multiple irradiation studies under simultaneous hypoxia in vitro. Radiat Oncol. 13, 220(2018).
- Nushtaeva, A. A., et al. Establishment of primary human breast cancer cell lines using "pulsed hypoxia" method and development of metastatic tumor model in immunodeficient mice. Cancer Cell Int. 19 (1), 46(2019).
- Stokman, G., et al. Stem Cell Factor Expression after Renal Ischemia Promotes Tubular Epithelial Survival. PLoS One. 5 (12), e14386(2010).
- Stokman, G., et al. Epac-Rap signaling reduces cellular stress and ischemia-induced kidney failure. J Am Soc Nephrol. 22 (5), 859-872 (2011).
- Bejoy, J., Qian, E. S., Woodard, L. E. Tissue Culture Models of AKI: From Tubule Cells to Human Kidney Organoids. J Am Soc Nephrol. 33 (3), 487-501 (2022).
- Li, Y., et al. An in vitro method for the prediction of renal proximal tubular toxicity in humans. Toxicol Res. 2 (5), 352-365 (2013).
- Wilmer, M. J., et al. Novel conditionally immortalized human proximal tubule cell line expressing functional influx and efflux transporters. Cell Tissue Res. 339 (2), 449-457 (2010).
- Terryn, S., et al. A primary culture of mouse proximal tubular cells, established on collagen-coated membranes. Am J Physiol Renal Physiol. 293 (2), F476-F485 (2007).
- Zapata-Pérez, R., et al. Reduced nicotinamide mononucleotide is a new and potent NAD+ precursor in mammalian cells and mice. FASEB J. 35 (4), e21456(2021).
- Tammaro, A., et al. HDAC1/2 inhibitor therapy improves multiple organ systems in aged mice. iScience. 27 (1), 108681(2024).
- Verstraeten, L., Den abt, R., Ghesquière, B., Jochmans, I. Current Insights into the Metabolome during Hypothermic Kidney Perfusion-A Scoping Review. J Clin Med. 12 (11), 3613(2023).
- Turkmen, K., et al. Apoptosis and Autophagy in Cold Preservation Ischemia. Transplantation. 91 (11), 1192(2011).
再版と許可
