本プロトコルは、若年RAC1/CED-10変異型 カエノルハブディティス・エレガンスにおける定量排便アッセイを詳細に示し、前駆期パーキンソン病の段階を研究するための簡易なモデルを提供します。他の動物モデルの限界を克服し、初期パーキンソン病病理を標的とした治療戦略の検証を促進します。
方法論記事
初期パーキンソン病研究のためのツールとしての Caenorhabditis elegans RAC1/CED-10変異体の消化管運動評価
この記事について
サマリー
要約
パーキンソン病(PD)は最も一般的な神経変性疾患の一つであり、著しいドーパミン作動性ニューロンの喪失後に現れる運動症状に基づいて診断されます。便秘などの非運動症状が最も一般的で、病気の発症を示すことが多いです。多くの動物モデルが神経変性疾患の研究に用いられていますが、多くは後期段階に焦点を当てています。神経変性の正確な開始点を特定するのは難しいため、単一のモデルは病気の進行全体を完全に代表していません。哺乳類モデルは特に長い寿命のため時間と費用がかかります。対照的に、透明な1mm線虫で寿命と繁殖周期が短い(約3週間と3日)のカ エノルハブディティス・エレガンス(C. elegans)は、その迅速な世代交代により、より迅速かつコスト効率の高い実験を可能にします。 C. elegans の排便運動プログラムは、Rho/rac GTPaseが関与する複雑な遺伝ネットワークによって調節されたリズミカルなサイクルで構成されており、RAC1( C. elegansのCED-10)もその一つです。RAC1/CED-10変異体はGABA作動性の形態と機能が損なわれ、排便サイクルの妨げを生じていることを示しました。ここでは、RAC1/CED-10 C. elegans の早期段階での便秘測定の実験プロトコルを紹介します。神経変性前の早期PD症状の予測ツールとして機能するだけでなく、薬理学的介入の有効性を評価する早期評価項目としても利用可能です。これらの変化は疾患特異的ではないため、このモデルは他の疾患で早期に生じる変化を調査する上で貴重なツールを提供すると考えています。
概要
パーキンソン病(PD)は、神経変性疾患の中で2番目に多い疾患であり、神経障害の主な原因の一つです1,2。その病理的特徴には、主にαシヌクレインから構成されるルビー小体およびルイニューライト、さらに黒質および他の脳領域における神経細胞の喪失が含まれます。
臨床的には、パーキンソン病は運動障害として分類されますが、非運動症状の幅広いスペクトラムも特徴です。運動障害は黒質のドーパミン作動性ニューロン変性および線条状体ドーパミンの枯渇によって引き起こされます。しかし、便秘、不安、REM睡眠行動障害4などの非運動症状は、前駆期に現れることが多いです。この時期には神経変性が外来構造(例:脳幹、嗅覚系、自律神経経路)に影響を及ぼします5。
PD研究における大きな課題は臨床発症の遅延です。運動症状は通常、ドーパミン作動性ニューロンの60%〜80%が失われた後に現れます。3初期の非運動症状(例:自律神経機能障害)は前駆期PD6のバイオマーカーとなり得ますが、非特異性が確定診断を複雑にします。これらの限界を踏まえ、動物モデルは早期パーキンソン病の研究、症状の特徴付けの標準化、そして現在不足している神経変性を遅らせたり予防したりする神経保護療法の開発に不可欠です。
RAC1/CED-10 C. elegans 変異体は、初期および後期のPDの特徴を回収しています。以前、RAC1活性がドーパミン作動性ニューロンの生存と機能に重要であり、αシヌクレイン誘発性の毒性から守ることを明らかにしました7。さらに、RAC1/CED-10変異体は初期PDに似た表現型変化を示し、脂質代謝調節障害やGABA作動性機能障害が現れ、後者は排便サイクルの障害に反映されています6。これらの発見は、RAC1/CED-10変異体を前変性PD病態生理の研究に適したモデルとして確立しました。
ここでは、RAC1/CED-10変異体に対する最適化された排便アッセイを説明し、腸の運動異常を定量的に捉え、PDの前駆期における消化管の特徴を体系的に研究できるようにします。
プロトコル
注:野生型:N2ブリストルが使用されました。初期PD RAC1/CED-10のモデル:BR3579株は遺伝子型Ced-10(n3246)で、ここではRAC1/CED-10と名付けられています。これはドイツ・フライブルク/ブライスガウのアルベルト・ルートヴィヒ大学のラルフ・バウマイスター博士からの寛大な寄贈でした。このced-10(n3246)の変異体は強い対立遺伝子です。変異ced-10(n3246)はGからAへの転移であり、CED-10のグリシン60がアルギニン(G60R)に変化し、非帰却変異機能8,9をもたらします。この対立遺伝子の重症度は他のCed-10対立遺伝子と比べて強いです。研究全体で両性具有者が使用されました。
1. ミミズの維持管理
- 25mLの線虫成長培地(NGM)を150mmのペトリ皿に注ぎ、寒天を固まらせます。各プレートに500μLの 大腸 菌OP50培養液を播種し、懸濁液を寒天表面に均等に広げます。細菌の増殖を許可するために、30°Cで一晩培養皿を保管します。使用の24時間前にプレートを準備してください。
2. 幼虫の第 4段階( L4)で同期したミミズの取得
- L4幼虫の発生段階で同期した線虫との腸の運動能力の測定を行います。この発生段階で虫を得るには、以下で説明する漂白プロトコル( 11から適応)に従い、RAC1/CED-10表現型11に関連するわずかな修正を加えます。
- NGMプレートに10個の成虫を、ステップ1と同様に調理した大 腸菌 OP50を加え、卵を産み3日間育てます。あるいは、混合集団を含むNGMプレートから新しいNGMプレートに移行する。この場合、10匹の妊娠した成虫を使う場合ほどのライフサイクル制御は正確ではありません。80時間後、野生型ではC . elegans 雌雄同体と妊娠中の成虫の混合集団が観察されました。RAC1/CED-10変異体は6時間の遅延発生6を示し、妊娠中の成体は86時間で出現しました。
注:妊娠中の成虫は卵を持っていることで識別されます。 - 10 mLのM9を洗浄して、15 mLチューブ(対応する遺伝子型を標識)で妊娠した成体を回収します。
- 2000 x g (標準的なテーブル遠心分離機で約1500 rpm)を室温で遠心分離して2分間、ミミズをペレットし、上清液を捨てて新鮮なM9バッファー10 mLを加えます。
注:室温では動作しますが、10°Cで遠心分離した方がより良い結果が得られました。 - ステップ2.4を3回行うか、バッファーに細菌がいない(透明な上清液)見えるまで続けてください。上清液がやや黄ばみを帯びて濁っていることから、細菌の存在は推測できます。
- 総体積3.5 mLにM9バッファーを加えます。
注:私たちの経験では、この段階では無菌蒸留水、あるいは水道水を使用しても汚染を生まずに使用できます。漂白工程によって微生物は除去されます。ただし、実験室間での再現性を確保するために、M9バッファーまたは滅菌水の使用を推奨します。 - 5M NaOH 0.5 mLと漂白剤1 mLを混ぜて漂白液を準備します。使用直前にこの溶液を新鮮にしてください。ミミズ入りの遠心分離機チューブに混合物1.5mLを加えます。
- 脱色中に卵管を激しく攪拌しつつ、解剖顕微鏡で成人組織の破壊を観察します。成虫の痕跡だけが残ったら反応を止めてください。
注:漂白処理は成虫や幼虫を溶除しますが、胚は卵殻が漂白剤から守っているため生存可能です。このステップは生存者を確保するために非常に重要です。時間が経すぎるとすべてのミミズが死んでしまいます。ボルテックスの使用は強く推奨されますが、キューティクルの破壊状況は3分ごとに確認してください。RAC1/CED-10変異体は漂白剤に対してより敏感です。成体組織の崩壊を2分ごとに観察し、8分を超えないようにしてください。 - 反応を止めるためにM9バッファーを追加してチューブ(~15 mL)を満たします。処理がまだ進行中かもしれないので、2,000 x g で1分間素早く遠心分離機で処理し、上清液を捨てます。
- 上記の通り、チューブ内にM9バッファーを入れて遠心分離機でペレットを3回洗浄します。最終洗浄後、上清液を慎重に除去し、約0.1 mLが残るまで続けます。
- これらの卵を新しい15 mLチューブに加え、M9を5 mLに加えます。室温でやさしく回転させて培養します。適切なエアレーションが行われるべきです。
注:ステップ2.9を除くすべてのステップで、M9ではなく水道水を使用したことで良好な同期結果が得られました。 - 24時間後に回転を止め、2,000 x g で10°Cで1分間遠心分離してミミズにペレットを送ります。
- 対応する遺伝子型のペレットミミズ30〜50μLを、OP50をシードし、対応する遺伝子型を標識した150cmのNGMプレートにプレートします。RAC1/CED-10のいくつかの線虫は死んだように見えましたが、これはRAC1/CED-10遺伝子型の本質的な特性です(個人観察)。したがって、これらの変異体を2倍の量でプレートし、翌日に観察してください。
注:プレート化されたミミズの体積は漂白プロトコルの収量に依存します。1皿あたり250匹のミミズを超えてはいけません。食料が早く尽きてしまい、ミミズが飢餓状態に陥る可能性があります。発酵時間の差を賢く利用し、野生型の初期排便サイクルとRAC1/CED-10の排泄サイクルを記録する時間を確保することができます(次の節参照)。 - 孵化34時間後、幼虫のL4段階で野生型ミミズの有無を確認してください。RAC1/CED-10の線虫も同様の発生段階を40時間6分で達成します。L4ミミズとL3および若年成虫を区別するには、その大きさ(~650μm)を測定し、月のような外陰部構造を調べる12。
3. 腸の運動機能の記録
- プレートを3 mLのM9で洗浄し、L4ワームを2本の1.5 mL遠心分離機チューブに回収します。
- 2,000 x g で遠心分離機で1分間(図1A)、上清液を捨てて新鮮なM9バッファー1 mLを加えます。このステップを3回繰り返します。
- これらの洗浄されたミミズをOP50なしのNGMプレートでメッキリングします(図1B)。これらの洗浄と最終プレートの工程で、余分な細菌を除去します。
- ミミズを12ウェルプレートに個別に移し、5μLのOP50細菌をシードします(図1C)。20°Cで1時間、ミミズに適応させます。
注:これらのプレートは種をまき、ミミズを加える前に乾燥させていました。これらのプレートは事前に準備しない方が良いです。細菌の過剰増殖により排便サイクルの視覚化が困難になるからです。 - 12ウェルのミミズプレートを顕微鏡の下に置き、1匹のミミズを位置特定して記録を始めます。排便サイクルを15分間記録する(15サイクル; 図1D)。12ビット解像度と60フレーム毎秒(fps)のカメラで撮影に5倍対物レンズを使いましょう。Windowsのスニッピングツールを使ってビデオ取得を行います。最初の排泄サイクルを検出したら録音を始めてください。
注意:顕微鏡がコンピューターに接続されている場合、スニッピングツールで画面を直接記録できます。排便サイクルのモニタリングにはコンピュータークロノメーターの設置を強くお勧めします。排泄サイクルの終わりに必ずラップスボタンをクリックしてください。
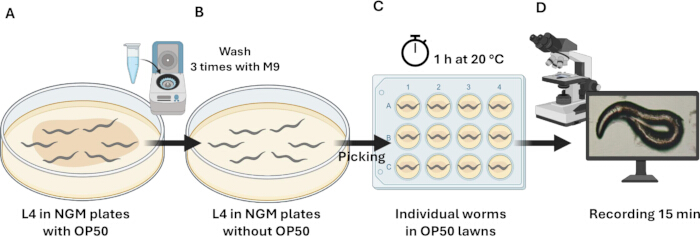
図1:腸の運動性を測定するための実験プロトコルの概説図。 (A) 発生のL4段階における同期した線虫。これらのミミズは3回M9で洗浄されました。(B) 洗浄ミミズはOP50を含まずNGMプレートでメッキされました。(C) ミミズはOP50で12ウェルプレートで個別に採取し、20°Cで1時間這い回しました。この間、ミミズは新しい培地に適応し、移動のストレスからリラックスします。(D) 個々の寄生虫を15分間記録し、腸の運動性を分析した。 この図の拡大版はこちらをクリックしてご覧ください。
4. 排便サイクルの分析
注: C. elegansの排便運動プログラムは、複雑な遺伝的ネットワークによって調整されたリズミカルなサイクルで構成されています。このプログラムは、3つの連続した異なる筋肉収縮で構成されており、それぞれが解剖顕微鏡で容易に検出できます。最初のステップは後体壁筋(pBoc)の収縮、続いて前体壁筋(aBoc)、最後に腸内筋収縮(EMC)を経て腸内物の排出(Exp)13 (図2)を目指す。
- 実験は20°Cで行う。すべての動画が録画されたら、データ分析を始めましょう。
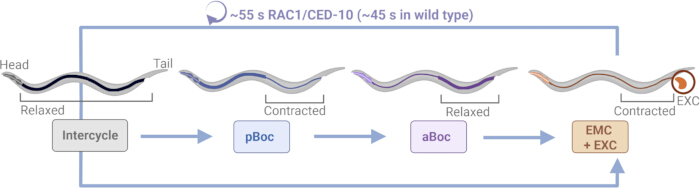
図2:C. elegans RAC1/CED-10変異体の排便サイクル。 RAC1/CED-10変異線虫におけるC. elegansの排泄サイクルの図解的表現。pBocは後壁の筋肉の収縮を示します。aBocは前壁筋の収縮を示し、EMC + EXCは腸内の排出に対応します。野生型の無妨碍摂食動物では、この運動プログラムは45秒ごとに非常に高い頻度で開始されます。ワームは頭が左、尾が右を向く方向に配置されています。排泄(EXC)はオレンジ色で強調表示されます。このフィギュアは6から修正されています。この図の拡大版はこちらをクリックしてご覧ください。
5. ビデオ分析
- ビデオプレーヤープログラムで1本の動画を開きます。
注:私たちはWindows Media Player Legacy v12を使用しました。他のビデオプレーヤープログラムも使用できます。 - スプレッドシートのファイルを準備してください。提供されたテンプレートファイル(補足表1)を開きます。指定されたフィールドにビデオファイル名とワームサイズ(任意)を入力し、ビデオ再生を開始します。
- 最初の排泄を定義し、記録します。タイムゼロとは、ワームを顕微鏡の下に置くモーメント記録が始まる時点と定義します。虫の肛門部分を観察し、最初の排泄イベントを特定します。この出来事の時間(s単位)をスプレッドシートの「First Excretation」とラベル付けされたセルに記録してください。
注意:最初の排泄時間はミミズによって異なり(例:ワーム1=5秒、ワーム2=26秒、ワーム3=34秒)、記録前の最後の排泄のタイミングが不明です。 - その後の排泄イベントを記録する:再生を続け、排泄2回、排泄3回などを順次記録し、合計16回の排泄が導入されるまで記録します。
- サイクル間隔の計算:テンプレートは連続する排泄間の間隔を自動的に決定します(例:排泄2 - 排泄1;排泄3 - 排泄2;...).これらの間隔をサイクルの長さとして使います。
- 総サイクル時間の決定:16のイベントが記録された後、テンプレートはワームが15サイクルを完了するのに必要な時間を計算します。この値はスプレッドシートの「Total Time」とラベル付けされたセルに表示されます。このプロセスを各ミミズごとに繰り返します。
注:現在、C. elegansの排便サイクルを確実に検出する自動ソフトウェアはありません。WMicrotrackerのようなプラットフォームは、動作パラメータ(速度、移動距離、寄生虫数、体のサイズ14,15)を定量化するのに効果的ですが、肛門領域の監視や収縮・排泄事象を特定するための解像度は提供できません。したがって、人工スコアリングは依然として必要であり、咽頭ポンプ16のアッセイで見られる制限と同様のものです。
6. 周期長の測定
- サイクル長を連続した2回の排泄の間の時間としてスコアします。表 1 および式1に記載されている通り、次のサイクルの終了時間を次のサイクルの終了時間から引き算します。
サイクル長(n)(秒単位)= 排泄時間(n+1)- 排泄時間(n)式1
サイクル長(1st)= 66秒((時間排泄2 = 71秒)- (時間排泄1 = 5秒)) - 各データセットに対して、排便サイクルの平均期間、標準偏差(SD)、平均の標準誤差(SEM)を統計解析ソフトウェアを使って計算します。
7. 排便サイクルのリズム性または規則性
- 変動係数(CV)は相対的な変動性を記述し、データが平均に対してどのように広がっているかを説明します。以前からC . elegans6の排便サイクルの規則性を示す指標として用いられてきました。各ワームのCVは式2を適用して計算します。
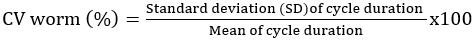 式2
- 各 C. elegans 株について、統計解析ソフトウェアを用いて平均のCV、標準偏差(SD)、標準誤差(SEM)を計算します。
8. 統計分析
- 3つの独立した複製体で実験を行い、各条件ごとに5匹のミミズを分析します。データ正規性は、nから50に対して推奨されるシャピロ・ウィルク検定(α=0.05)を用いて評価<。
- サイクル長の測定は正規分布に従わなかったため、分析はサンプルサイズが小さい場合の中央値差検出に適した非パラメトリックのマン・ホイットニー検定で行われました。逆に、CV(%)データは正規分布しています。不等分散を考慮して、ウェルチの補正を用いた非ペアt検定を用いて解析します。
- すべての統計解析は統計解析ソフトウェアを使用して実施してください。2つ以上のストレインを含む実験については、サンプル分布の連続検証を伴う一方向ANOVAなどの代替検定を適用します。
結果
記載されたビデオベースのアッセイは、初期PDのC. elegans RAC1/CED-10モデルで導入され、腸の運動性を定量的に評価しました。RAC1/CED-10変異体の発生遅延を考慮し、同期集団は野生型対照群との段階一致を確実に調整しました。L4段階で個々の寄生虫を記録し、15回連続した排便サイクルを分析して周期の長さと規則性を判断しました。このアプローチにより、腸の運動機能の正確かつ高解像度の測定が可能となり、C. elegansにおける初期PD表現型に関連する微細な非運動変化の検出が可能です。
同期実験におけるRAC1/CED-10動物の発達遅延
C . elegans RAC1/CED-10変異体6で観察された発達遅延を考慮すると、野生型動物と並行して行う同期実験には時間的な調整が必要です。この遅延を考慮し、ビデオ記録時の段階一致比較を確保するため、RAC1/CED-10の動物は野生型対照群より6時間早く同日にプレートを施しました。
パーキンソン病に関連する排便変化を調査するためのRAC1/CED-10線虫
便秘は運動型パーキンソン病の診断より早い20年前から検出され、病気の発症を示す最初の識別可能な兆候の一つとなっています。これまでに、RAC1/CED-10モデルは神経変性6の発症前のL4発達段階で非運動的変化を示しており、腸の運動性の変化もその一例です。プロトコルに記載されているように、個々の線虫はL4段階で記録されました。 図3 は代表的なRAC1/CED-10のミミズを示しています。
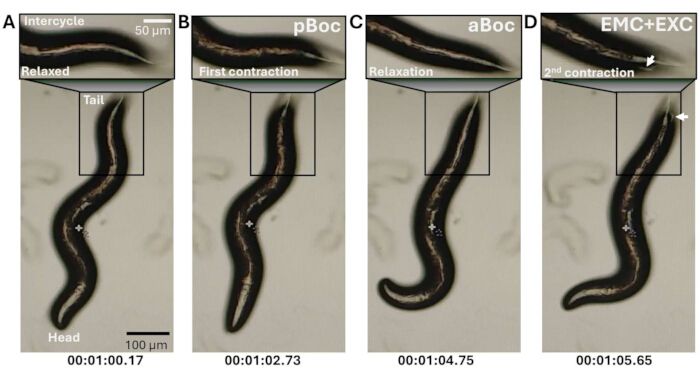
図3:RAC1/CED-10変異動物の画像におけるC. elegansの排泄サイクル。RAC1/CED-10変異体の排便サイクル画像。ミミズは頭を下にして向きます。尾部は水平のボックスでハイライトされており、図2に示された排便運動ステップの順序が示されています:(A)前路の弛緩、(B)後方体収縮(pBoc)、(C)前体収縮(aBoc)、(D)腸筋収縮と排出(EMC+EXC)。サイクル期間は以下に示されています。矢印は排出された物質を示している。この図の拡大版はこちらをクリックしてご覧ください。
腸の運動性を分析するために用いられる2つのパラメータは、周期長と周期規則性です。まず、 図4に示された各ミミズのサイクルを15回測定しました。
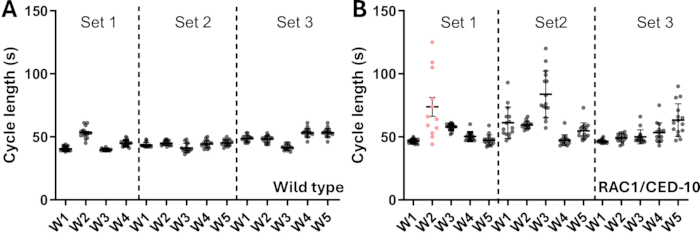
図4:野生型(A)およびRAC1/CED-10個体(B)のサイクル持続時間。 セット1、2、3は独立した複製を示します。各点は1つの排便サイクルを表し、1隻のミミズには15サイクルあります。Bのピンク色W2は15サイクルを完了しなかったため、さらなる解析のために除外されました。W = ワーム。この図では統計分析は行われていません。 この図の拡大版はこちらをクリックしてご覧ください。
個々のワームは異なる実験複製(セット=1、2、3)でW(W1、W2など)で指定されました。1隻のミミズ(W)に対して15分間で15回の測定が行われました。野生型動物の最初の実験セット(図4A、セット1)では、1匹のミミズがL4ではなく若い成虫であるため除外されました。RAC1/CED-10の場合、データ処理後に15サイクルを15分以内に完了しなかったため、1隻のワームが廃棄されました。そのため、RAC1/CED-10のワームは非常に不規則だったため、クロックアプリケーションで何サイクルが完了したかを知ることをお勧めします。
これらの個別値に基づき、野生型線虫およびRAC1/CED-10変異体の周期長の平均および標準偏差が算出されました(表1 および 図5)。以前に発表された6つのRAC1/CED-10線蟲は野生型線虫よりも周期が長く、規則性も低いです。野生型ミミズはRAC1/CED-10変異体(55秒±12秒)よりも周期が短い(46秒±5秒)を示します。
表1:個々の線虫の排泄サイクル測定の代表的なデータセット。 この表は、3つの動物から収集された代表的なデータをまとめたものです。各ミミズごとに、データセットにはビデオファイル識別子、体のサイズ(μm)、個々の排泄イベントに対応する時間点(s単位)、15サイクルにわたる計算されたサイクル長、そして総記録時間が含まれています。サイクル長は連続した排泄時間点を差し引くことで得られました(例:VID_154028の初期サイクル長は66秒で、計算は71〜5秒です)。残りの項目は、さらに2種類のミミズについての類似の測定を示し、データセット内の典型的な変動の例を示しています。 この表をダウンロードするには、こちらをクリックしてください。
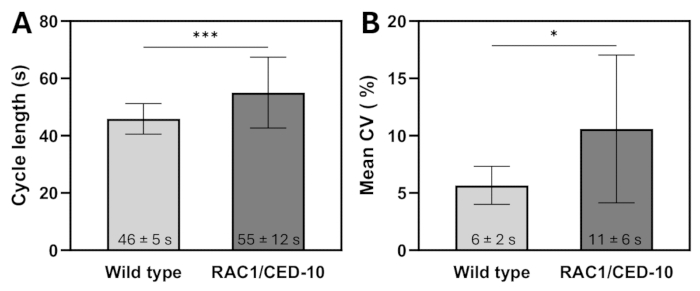
図5:排便サイクルパラメータ。 (A) 排便サイクルの長さ、(B) 野生型およびRAC1/CED-10寄生虫の平均 CV。データは平均±SDを表します。N=3 n=5です。排便サイクルの長さについてはノンパラメトリックのマン・ホイットニー検定を適用しました。平均 CV データにはウェルチ補正を用いた非ペアt検定が適用されました。p < 0.001 * p < 0.05。統計分析の情報はステップ8を参照してください。 この図の拡大版はこちらをクリックしてご覧ください。
サイクルの規則性は、実験18の各ミミズの変動係数の平均である平均変動係数(CV)を用いて計算されます。 図5B は、RAC1/CED-10変異動物の多様性が野生型動物と比べてより大きいことを示しています。野生型の平均CVは6%±2%であり、RAC1/CED-10変異体では11%±6%と比べて低いです。
補足表1:Caenorhabditis elegansの排便サイクルの長さ計算用テンプレート。ユーザーは各ワームファイル名を最初の列に入力し、任意のワームの体長を記録することもできます。各排泄イベントに対応する時間(排泄1-16)は、ビデオ再生から決定された順序に順に入力されます。テンプレートは連続する排泄間隔(排泄時間N - 排泄時間N-1)を自動的に計算し、排便サイクルの長さを表します。16回の排泄イベントが入力されると、15サイクルを完了するのに必要な総時間が自動的に計算され、Total Time (mm:ss)セルに表示されます。このファイルをダウンロードするには、こちらをクリックしてください。
ディスカッション
前駆性PD研究における強力なモデルとしてのC. elegans
ほとんどの神経変性疾患モデルは後期病理に焦点を当てていますが、早期発症の研究は技術的には依然として困難です。マウス、ラット、霊長類のような伝統的な哺乳類モデルは、長いライフサイクルと高いコストによって制約を受けています。微小線虫C . elegans は、3週間の寿命、3日間の生殖サイクル、遺伝的扱いやすさによってこれらの制約を克服し、神経変性の効率的かつ大規模な研究に理想的なシステムとなっています。
C. elegansのRAC1/CED-10変異体は、早期PD病因の研究に3つの主要な利点を提供します。第一に、その正確な時間的解像度により、神経変性イベントを明確に定義された発達段階で追跡できます6。第二に、このモデルは遺伝的扱いやすさ、メンテナンスの低さ、高スループット互換性により卓越した実験的多様性を提供します6,7。第三に、C. elegansは内因性αシヌクレインホモログを持たないため、RAC-1/CED-10モデルに含まれているため、貴重な利点を提供します。研究者はαシヌクレイン干渉なしに前臨床PDのメカニズムを調べることができ、これはより進行したステージ6を示しています。これにより、このモデルは初期の病原性イベントの研究や、その後のαシヌクレイン発現の統合による高度な病因の調査に優れたツールとして位置づけられています。最後に、CED-10のヒトRAC1との相同性の進化的保存により、直接的な翻訳的関連性が保証されます10,20。
ここで説明するC. elegansモデルは薬理学的アッセイに適しています17,21。RAC-1/CED-10変異体は発達遅延を示すため、野生型に比べて正体を隠すことができず、初期段階での盲目化は不可能です。しかし薬理学的スクリーニングでは、データを収集する実験者と分析者がすべての実験変数を知らないままの二重盲検設計を採用することでバイアスを最小限に抑えることができます。
便秘は前駆期にほぼすべてのPD患者に影響を及ぼし、しばしば運動症状の前に現れます5。 C. elegans は、この初期の消化器機能障害の研究において独自の利点を提供します。哺乳類モデルが侵襲的介入を必要とするのに対し、線虫の透明性と簡潔さは、非常に典型的な排便運動プログラムを非侵襲的かつリアルタイムで観察することを可能にします。これは腸の運動異常を定量化する上で重要な特徴です。C . elegans の排便の短いライフサイクルと正確なリズムにより、機能障害の迅速かつ再現性のある解析が可能となります。RAC1/CED-10変異体では、排便タイミングの逸脱が前驅期PD6で観察される便秘様表現型を反映しています。これらの発見は、複雑な哺乳類(例:マウス、霊長類)での後の検証の基盤となる枠組みを提供し、RAC1シグナル伝達が腸機能障害と直接結びついていることを示しています。
機構論的な関連性を超えて、RAC1/CED-10モデルは翻訳的な有用性も提供します。排便アッセイは簡便で再現性が高く、拡張性が高いため、初期段階の薬物スクリーニングに適しています。周期のタイミングや規則性を正規化する化合物は、哺乳類モデルでの試験に迅速に優先順位付けできるため、治療候補に対してコスト効率の良いフィルターを提供します。消化管機能障害は複数の神経変性疾患で一般的であるため、このアッセイはPDを超えて応用可能であり、発見ツールおよび前臨床研究へのトランスレーショナルな架け橋として機能します。
プロトコルの重要なステップ
前駆性PDに関連する主要な非運動表現型であるRAC1/CED-10変異株の腸の運動機能障害を研究するための洗練された方法論を提示します。確立された排便アッセイ18,22に基づいていますが、このプロトコルはRAC1/CED-10変異体がもたらす独自の課題に対応し、堅牢かつ再現性の高い結果を保証します。
RAC1/CED-10変異体の主な適応は以下の通りです。
同期調整:RAC1/CED-10変異体は野生型株と比べて繁殖能力が低下する(個人観察)。子孫の減少を補うために、同期時に以下の調整を加えます:プレートチャンク法 - 野生株の約2倍の大きな接種量を用い、発生変動の増加を考慮します。妊娠成体法 - 標準10体から15〜20体の成人胚を移植し、その後の実験に必要な胚数を確保する。
漂白剤感受性:RAC1/CED-10変異体の胚は次亜塩素酸塩処理に対する感受性が高まります。損傷を最小限に抑えるために、野生型プロトコルと比較して漂白剤の曝露時間を20%〜30%短縮し、処理後に胚の完全性を顕微鏡で確認してください。
発生遅延の考慮点:RAC1/CED-10変異体は野生型線虫よりも成熟が遅い10。記録の適切な同期を達成するために、野生型ミミズを用いたビデオ解析を開始し、時間的な基準を確立し、変異体を年代別ではなく、形態学的段階(例:外陰部形態)で記録します。
ワークフローの根拠:野生型 C. elegans を用いた初期実験は環境変動を制御し、正常な排便リズムの参考資料を提供します。RAC1/CED-10-10変異体の発生遅延のため、記録スケジュールは厳密な年齢一致ではなく段階マッチを優先するよう調整されるべきです。
株特異的なタイミングの考慮:変異体の発達遅延には柔軟な実験スケジュールが必要であり、単なる年代に基づく年齢に頼るのではなく、遺伝子型を超えた発達段階の一致に重点が置かれます。
線虫モデルの限界
C. elegansは哺乳類システムに見られる解剖学的複雑さや経路の冗長性(一部の翻訳研究の制約)を持たないものの、その単純さは離散的な生物学的機能を検証する上で有利です。腸の運動性に焦点を当てることで、線虫の効率的な生理構造により特定の機能パラメータを正確に解析できるため、この強みを活かします。治療的検証には補完的な哺乳類研究が必要ですが、C. elegansは保存された生物学的プロセスの機構的調査において卓越したプラットフォームを提供します(21,23)。
また、我々のモデルには便秘が前駆症状として現れる可能性のある早期臨床前臨床のPD(パーキンソン病)の研究に有益な内因性αシヌクレインも含まれていません。排便サイクルの長さは客観的かつ高スループットの指標を提供しますが、消化管機能障害の一側面のみを反映しており、疾患特異的ではありません。
このアッセイは進行性αシヌクレイン凝集、複雑な神経変性、またはヒトPD5に見られる加齢性全身病理を捉えきれませんが、ドーパミン作動性およびGABA作動性機能の変化、Rac1シグナル伝達の障害が観察され、このモデルの機序的関連性が強調されています。したがって、早期のPD関連神経消化管機構や保存経路の解明に依然として価値があります。
開示事項
著者たちは何も明かすことはありません。
謝辞
A.M.J.は、バルセロナ自治大学のバイオテクノロジー博士課程の枠組みにおける博士論文(FPU18/05190)を認めます。ALおよびAMJは、MCIN/AEI//10.13039/501100011033/FEDER「Una manera de hacer Europa」による資金提供PID2021-122645OB-100およびPID2024-1576370B-100を認めます。「セベロ・オチョア」センター・オブ・エクセレンスプログラム(R&D CEX2019-000917-S(FUNFUTURE)、CEX2023-001263-S(MATRANS42)、カタルーニャ自治政府2021S00446、そして欧州連合のHorizon Europe研究・イノベーションプログラム(助成金契約No 101057527(NextGEM))に関わっています。EDCは、救済科学研究基金(FESS)およびカタルーニャ生命と救済科学研究基金(IRIS-CC)によって資金提供されたAPR-2024助成金(PMI24006年)からの支援を感謝します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 12井戸の培養マルチウェルプレート、処理済み、滅菌済み | ラボボックス | CCPP-012-100 | |
| アガー | VWR | AAA10752-0E | NGMプレートの準備 |
| バクトペプトン | VWR | 90000-264 | NGMプレートの準備 |
| ブリーチ | どの家庭でも | 漂白のため | |
| CaCl2 | ラブケム | CACH-02P-1K0 | NGMプレートの準備 |
| 遠心分離機 Sorvall ST8 | ソーヴァル | 15194923 | |
| コレステロール | シグマ・オルドリッチ | C8667-25G | NGMプレートの準備 |
| 時計 | 窓 | v 11.2503.4.0 | |
| 大腸菌 OP50 | CGC | OP50 | |
| エタノール | パンレアック | 131086.1214 | NGMプレートの準備 |
| インキュベーター20 & deg;C | 生態発生 | CIR180 | |
| KH2PO4 | シグマ・オルドリッチ | P0662 | M9バッファーの準備 |
| KPO4 | シグマ・オルドリッチ | P5655 + P3786 | KH2PO4 + K2HPO4;NGMプレートの準備 |
| MgSO4 | シグマ・オルドリッチ | M7506 | NGMプレートの準備;M9バッファーの準備 |
| 顕微鏡 | オリンポス | オリンパス BX51 | |
| Na2HPO4 | シグマ・オルドリッチ | S9763 | M9バッファーの準備 |
| Na2HPO4 | シグマ・オルドリッチ | 7558-79-4 | M9バッファーの準備 |
| NaCl | シグマ・オルドリッチ | S5886 | NGMプレートの準備;M9バッファを準備するために;LB |
| NaOH | シグマ・オルドリッチ | 567530 | 漂白の過程について;LB |
| Windowsのスニッピングツール | 窓 | v 11.2504.42.0 | |
| トリプトン | コンダ | 1612 | LB |
| 酵母抽出物 | コンダ | 1702 | LB |
参考文献
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
再版と許可
