この研究は、Wnt/β-カテニン経路と miR-22 発現の調節を通じて、網膜芽細胞腫細胞の挙動に対するクルクミンの効果を評価するためのプロトコルを提示します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
研究記事
網膜芽細胞腫におけるクルクミンによるWnt/β‐カテニンシグナル伝達のmiR‐22媒介調節
* These authors contributed equally
この記事について
サマリー
要約
網膜芽細胞腫 (RB) は、乳児や小児に影響を与える一般的な眼内悪性腫瘍ですが、その正確な病因と病因は不完全には理解されていません。生理活性ポリフェノールであるクルクミンは、マイクロRNAを介したWnt/β-カテニンシグナル伝達カスケード の調節を介して 腫瘍の進行を阻害します。この研究は、クルクミンのmiRNA-22(miR-22)発現の調節を調査し、根底にある分子メカニズムを調査することにより、クルクミンがRBにおける抗腫瘍効果をどのように媒介するかを明らかにすることを目的としました。2 つの検証済み網膜芽細胞腫モデル (SO-RB50/WERI-Rb-1) をさまざまな濃度のクルクミンで治療しました。miR-22のWnt/β-カテニンシグナル伝達の調節を描写するために、標的細胞にmiR-22模倣レンチウイルスまたは非機能コントロールレンチウイルスのいずれかを形質導入しました。異種移植腫瘍モデルは、腫瘍サイズ、miR-22発現、およびWnt / β-カテニンタンパク質レベルに対するクルクミンの in vivo 効果を観察するために、ヒトRB細胞を使用してマウスで確立されました。細胞増殖、浸潤、およびアポトーシスは、それぞれ CCK-8、Transwell、およびアネキシン V-APC-PI 二重染色アッセイを使用して評価されました。miR-22レベルはRT-PCRによって定量され、Wnt1およびβ-カテニンの発現プロファイルはウェスタンブロット分析によって決定されました。クルクミン処理は、RB細胞の増殖と浸潤性を低下させ、アポトーシスを促進し、miR-22発現を上昇させました。miR‐22の阻害はWnt/β‐カテニンシグナル伝達経路に対するクルクミンの効果を減少させた異種移植研究では、クルクミンは腫瘍サイズを大幅に縮小し、腫瘍内のmiR-22発現を増強し、Wnt/β-カテニンシグナル伝達を効果的に抑制しました。これらの発見は、クルクミンが主にmiR-22のアップレギュレーションとそれに続くWnt/β-カテニン経路の阻害を介して媒介されるアポトーシスを促進しながら、RB細胞の増殖と侵襲性を阻害することを示しています。
概要
網膜芽細胞腫 (RB) は、網膜組織に発生する攻撃性の高い小児悪性腫瘍であり、特に 5 歳未満の子供に重大な健康上の脅威をもたらします。遺伝子変異、特にRB1遺伝子に影響を与える遺伝子変異は、この病気の発症と密接に関連しています1。乳児および小児における網膜芽細胞腫 (RB) の有意な有病率と、主に低所得国および発展途上国で毎年約 9000 人の新規症例が報告されているという事実を考慮すると、効果的な治療戦略を開発し、患者の転帰を改善するには、疾患メカニズムの包括的な理解が不可欠です2。長年にわたり、RBに関する研究は主にゲノム変化、特にmiRNA発現3に焦点を当ててきました。確かに、miR-34a と miR-22 は、RB 4,5 の腫瘍形成において重要なプレーヤーとして浮上しています。これらのmiRNAの中で、miR-22は、増殖、浸潤、および遊走に影響を与え、さまざまな癌6,7,8にわたる腫瘍形成への関与を実証しています6,9。さらに、以前の研究では、マウスとヒトの両方のRB細胞株でmiR-22発現が低下していることが示されており、この疾患におけるmiR-22の潜在的な役割がさらに強調されています10。
クルクミンは、クルクマ・ロンガの根茎に含まれる主要な生理活性クルクミノイドであり、伝統医学やアジア料理の基本的な成分となっています11.抗腫瘍、抗菌、抗炎症、抗酸化、神経保護効果を含むその豊富な薬理学的プロファイルは、生物医学研究で大きな注目を集めています 12,13,14。RB におけるその抗腫瘍の役割は数多く研究で調査されており、NF-κB15、JAK/STAT16、MRP117 などのさまざまなシグナル伝達経路に対するその影響が強調されています。これらの以前に研究された経路と比較して、クルクミン-miR-22/Wnt/β-カテニン軸は、より的を絞った特異的なアプローチを提供し、治療効果を向上させ、オフターゲット効果を軽減する可能性があります。
以前の研究では、クルクミンが肝細胞癌18 および結腸癌細胞19 において TET1/Wnt/β-カテニン シグナル伝達経路軸を調節することにより抗腫瘍効果を達成することが示唆されています。しかし、クルクミンがWnt/β-カテニンシグナル伝達経路に影響を与えることにより、RB細胞の腫瘍進行を抑制できるかどうかは不明のままです。最近の研究では、網膜芽細胞腫細胞および口腔扁平上皮癌における miR-22 発現の低下が報告されており、これは Wnt/β-カテニンシグナル伝達経路活性の変化に関連しています20,21。実用的な適用性を考慮すると、クルクミンは定義された濃度範囲(in vitroで10〜40μM)15,22内で効果的な抗腫瘍活性を示し、管理可能な薬物動態特性でin vivoで投与することができ、トランスレーショナルリサーチを促進します。したがって、この研究は、クルクミンが miR-22 レベルを増加させ、その後 Wnt/β-カテニンシグナル伝達活性を低下させるかどうかを調査するための RB モデルを確立し、従来の NF-κB、JAK/STAT、または MRP1 調節アプローチと比較して、より効率的で臨床的に関連する治療戦略を提供する可能性があります。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
動物が関与するすべての手順は、天津眼科病院の動物倫理福祉委員会 (AEWC) によって審査され、承認されました (承認番号。NKYY-DWLL-2023-054)。使用する試薬と機器は 、材料表に記載されています。
1. 細胞培養
ヒト網膜芽細胞腫株WERI-Rb-1およびSO-RB50の細胞を、10%ウシ胎児血清および1%ペニシリン-ストレプトマイシンを添加した高グルコースダルベッコ修飾イーグル培地で培養した。細胞を培養フラスコに適切な密度で播種し、%CO2を含む加湿雰囲気中で37°Cに維持しました。培地を2〜3日ごとに交換し、標準的なトリプシン処理を使用して細胞を70%〜80%のコンフルエンスで継代しました。
2. 動物実験
合計48匹の特異的病原体を含まないBalb / cヌードマウス(4週齢、16〜18 g)を使用しました。動物は、26〜28°C、相対湿度40%〜60%の制御された環境条件で、層流下で無菌で個別に換気されたケージに収容されました。飼料、水、寝具は使用前に滅菌されました。マウスは餌と水に自由にアクセスでき、実験の前に1週間順応させました。
3. 動物のグループ分けと治療
miR-22 模倣配列または陰性対照配列のいずれかで安定してトランスフェクトされた WERI-Rb-1 および SO-RB50 細胞を腫瘍接種に使用しました。対数増殖期の細胞を回収し、滅菌リン酸緩衝生理食塩水に再懸濁し、5 × 10⁷ 細胞/mL の密度に調整しました。各マウスに0.1mLの懸濁液を右前肢に皮下注射した。マウスをランダムにモデル群、クルクミン群、miR-22模倣群、miR-22模倣+クルクミン群、miR-22陰性対照群、miR-22陰性対照群+クルクミン群の6つのグループ(グループあたりn = 6)に分けました。クルクミンを投与されたグループでは、マウスに腫瘍細胞接種直後から1日1回15 mg / kgのクルクミンを腹腔内注射しました。残りのグループには、車両制御として同量のDMSOが投与されました。
4.腫瘍の重量と体積の測定
腫瘍採取率は、異種移植ヌードマウスで約80%〜90%でした。腫瘍のサイズはデジタルノギスを使用して毎週測定され、最長の直径は長さ (L) として記録され、最短の直径は幅 (W) として記録されました。腫瘍体積は、式 V = (L × W2)/2 を使用して計算されました。マウスは腫瘍の増殖と健康状態について定期的に監視され、腫瘍が1,500 mm3 を超える場合、または動物が苦痛または体重減少の兆候を示した場合は、人道的エンドポイントが適用されました。4週目の終わりに、マウスはCO2 吸入によって安楽死させられ、その後、子宮頸部脱臼が確実に死に至った。腫瘍は切除直後に解剖され、体重が測定されました。
5. マイクロRNAトランスフェクション
miR-22 模倣、ネガティブコントロール、抗 miR-22 (20-メトキシ修飾)、抗 miR ネガティブコントロール、Wnt1 特異的 siRNA、およびコントロール siRNA を含む合成オリゴヌクレオチドをトランスフェクションに使用しました。70%〜80%コンフルエンスの細胞を、トランスフェクションの1日前に6ウェルプレートに播種しました。トランスフェクションは、製造元の指示に従って脂質ベースの試薬を使用して実行されました。各ウェルについて、核酸を無血清培地で希釈し、推奨比率でトランスフェクション試薬と組み合わせて複合体を形成し、室温で15〜20分間インキュベートしてから、完全培地中の細胞に滴下しました。ウェルあたりの最終容量は2 mLでした。37°Cで5%CO2で6時間インキュベートした後、培地を新鮮な完全培地に置き換えた。細胞は、その後のアッセイの前に48時間維持されました。トランスフェクション効率は、定量的リアルタイムPCRによって評価されました。Wnt1を標的とする3つの異なるsiRNA(si-Wnt1-1:5'-CCAAGAGTCTGCAACTGGTACTCGA-3'、si-Wnt1-2:5'-CGAGAAACGGCGTTTATCTTCGCTA-3'、si-Wnt1-3:5'-GCTTCCTCATGAACCTTCAACAA-3')を個別に、または等モル混合物として使用して、オフターゲット効果を最小限に抑えました。
6. 細胞計数キット-8(CCK-8)アッセイ
細胞を100 μLの完全培地中にウェルあたり5×10³ 細胞の密度で96ウェルプレートに播種し、一晩接着させました。指定された濃度のクルクミンで指定された期間処理した後、10 μLのCCK-8作業溶液を各ウェルに直接添加しました。培地のみを含むウェルはブランクコントロールとして機能しました。プレートを37°Cで5%CO2 とともに4時間インキュベートした後、マイクロプレートリーダーを使用して490 nmで吸光度を測定しました。細胞生存率は次のように計算されました。
生存率(%)= 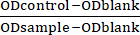 ×100
用量反応曲線を生成し、それに応じてクルクミンの半最大阻害濃度 (IC50) を決定しました。
7. トランスウェルアッセイ
遊走アッセイでは、細胞を無血清培地に懸濁し、インサートあたり200 μLの3細胞×105 細胞でTranswellインサート(孔径8 μm)の上部チャンバーに播種しました。下部チャンバーは、化学誘引物質として10%ウシ胎児血清を含む600 μLの完全培地で満たされました。プレートを37°Cで5%CO2 とともに24時間インキュベートした。インキュベーション後、膜の上面にある非遊走性細胞を滅菌綿棒でそっと除去しました。インサートをリン酸緩衝生理食塩水で2回すすぎ、5%グルタルアルデヒドで4°Cで30分間固定し、再度すすぎ、室温で0.1%クリスタルバイオレットで30分間染色しました。余分な色素はPBSで洗浄して除去しました。膜を自然乾燥させ、移動した細胞を倒立顕微鏡で400×倍率で視覚化した。定量化のために、インサートごとに3つのランダムフィールドを画像化し、平均細胞数を計算しました。
8. アネキシンV-APC-PIアッセイ
各グループの細胞を回収し、予冷したリン酸緩衝生理食塩水(PBS)で2回洗浄し、300 × g で4°Cで5分間遠心分離しました。 ペレットを300 μLの1×結合バッファーに約1×10⁶ 細胞/mLの密度で再懸濁した。アネキシンV-APC(5 μL)を添加し、サンプルを室温で暗所で15分間インキュベートしました。フローサイトメトリーの直前に、5 μLのヨウ化プロピジウムを200 μLの細胞懸濁液に添加し、室温で5分間インキュベートしました。サンプルは、適切なチャネル(APCおよびPI)を使用してフローサイトメーターで分析され、データは標準的なゲーティング戦略で処理され、生細胞、初期アポトーシス細胞、後期アポトーシス細胞、および壊死細胞を区別しました。
9. qRT-PCRプロファイリング
フェノールクロロホルム法を用いて全RNAを抽出し、紫外分光光度法により濃度と純度を測定した。逆転写には、1 μgのトータルRNAを、メーカーのプロトコルに従って逆転写マスターミックスとの20 μLの反応に使用しました。定量的PCRは、2 μLのcDNA、10 μLのSYBR Greenマスターミックス、および0.4 μMの各プライマーを含む20 μLの反応で実行されました。反応は、次のサイクルプログラムでリアルタイムPCRシステムで実行されました:95°Cで1分間、続いて95°Cで15秒間、63°Cで25秒間の40サイクルが続き、各サイクルの終わりに蛍光取得が行われました。55°Cから95°Cまでの融解曲線分析を行い、製品の特異性を検証しました。各サンプルを3回に分けて分析し、相対発現を2-ΔΔCt法で定量化しました。U6はマイクロRNA定量のリファレンス遺伝子として機能し、β-アクチンはmRNAの正規化に使用されました。
プライマー配列は次のとおりです。U6:順方向5'-CTCGCTTCGGCAGCACA-3'、逆方向5'-AACGCTTCACGAATTTGCGT-3';miR-22:順方向5'-GCCTGAAGCTGCCAGTTGA-3'、逆方向5'-GTGCAGGGTCGAGGT-3';Wnt1:順方向5'-CGATGGTGGGGTATTGTGAAC-3'、逆方向5'-CCGGATTTTGGCGTATCAGAC-3';β-アクチン:順方向5'-AGTGTGACGTGGACATCCGCAAAG-3'、逆方向5'-ATCCACATCTGCTGGAAGGGAG-3'。増幅データは、システムソフトウェアを使用して処理されました。すべてのプライマーは商業プロバイダーから入手しました。
10.ウェスタンブロット
プロテアーゼ阻害剤を含む溶解バッファーを用いて培養細胞または組織からタンパク質を抽出し、ビシンコニン酸法によりタンパク質濃度を測定しました。同量のタンパク質(レーンあたり40 μg)を定電圧(ゲルのスタッキングに80 V、ゲルの分離を120 V)で10%SDS-PAGEで分離し、100 Vの湿式転写システムを用いてポリ二フッ化ビニリデンメンブレンに90分間転写した。膜は、0.1%トゥイーン-20(TBST)を含むトリス緩衝生理食塩水で調製した5%スキムミルクで室温で1時間ブロックしました。Wnt1、β-カテニン、およびβ-アクチンに対する一次抗体を、1%スキムミルクを含むTBSTで1:1000に希釈し、メンブレンとともに4°Cで一晩インキュベートしました。 TBSTで3回(各10分)洗浄した後、メンブレンを西洋わさびペルオキシダーゼ結合二次抗体(1:5000希釈)とともに室温で1時間インキュベートした。TBSTでさらに3回洗浄した後、強化された化学発光検出試薬を使用してタンパク質バンドを視覚化し、デジタルイメージングシステムでシグナルをキャプチャしました。バンド強度は、ImageJソフトウェアを使用して定量化されました。
11.ルシフェラーゼアッセイ
miR-22結合部位が予測されたWnt1の3'UTRを含む野生型レポータープラスミド(Wnt1-WT)と、結合部位が破壊された変異レポーター(Wnt1-MUT)を構築しました。ヒト網膜芽細胞腫細胞を、ウェルあたり1〜105 細胞の密度で24ウェルプレートに播種し×脂質ベースのトランスフェクション試薬を使用して、MiR-22模倣またはネガティブコントロールとともにWnt1-WTまたはWnt1-MUTレポータープラスミドを同時トランスフェクトしました。各ウェルに、500 ngのレポータープラスミドと50 nMのmiRNA模倣またはコントロールを使用しました。5%CO2を使用して37°Cで48時間インキュベートした後、細胞を100 μLのパッシブ溶解バッファーで溶解しました。ホタルおよびレニラルシフェラーゼ活性は、メーカーのプロトコルに従ってデュアルルシフェラーゼレポーターアッセイシステムを使用して順次測定されました。ホタルルシフェラーゼ活性をレニラルシフェラーゼ活性に正規化し、トランスフェクション効率を制御しました。各条件は、3 回のウェルでテストされ、3 つの独立した生物学的反復で繰り返されました。
12. 統計分析
すべてのデータは、少なくとも 3 つの独立した生物学的反復からの平均±標準偏差 (SD) として表示されます。統計分析は、統計ソフトウェアを使用して実行されました。複数のグループ間の比較は、一元配置分散分析 (ANOVA) とそれに続く Tukey の事後検定によって実施されました。<0.05の p値は統計的に有意であると考えられた。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
Wnt/β‐カテニン経路の不活性化を伴うヒト網膜芽細胞腫細胞に対するクルクミンの用量依存的抗増殖および抗侵襲効果
ヒトRB細胞を24時間にわたってさまざまなクルクミン用量で処理しました。この発見は、アポトーシスの増加と相まって、細胞生存率と浸潤の用量依存的な低下を明らかにしました。具体的には、クルクミンの濃度が10μMから50μMに増加すると、未処理の細胞と比較して、SO-Rb50およびWERI-Rb-1細胞株の両方で細胞増殖が徐々に減少しました(図1A)。クルクミンのIC50は、SO-Rb50細胞で35μM、WERI-Rb-1細胞で38μMであることが判明しました。さらに、両方の細胞株において、クルクミンは用量依存的に浸潤を著しく減少させ(図1B)、アポトーシス率を高めました(図1C)。重要なことに、10〜50μMのクルクミンで処理すると、両方の細胞株でWnt1およびβ-カテニンタンパク質発現の用量依存的抑制が観察され...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
クルクミンは、クルクマの根茎に由来するポリフェノールであり、抗炎症作用、抗血管新生作用、抗増殖作用、抗酸化作用で有名です23,24。さらに、抗腫瘍特性、特に悪性細胞のアポトーシスを誘導する能力があります25。以前の研究では、RB 細胞に対するクルクミンの増殖抑制効果が強調されていますが22、26、27、RB 治療におけるクルクミンの抗腫瘍活性の根底にある正確なメカニズムについてはまだ限られています。この研究では、ヒトRB細胞におけるクルクミンの細胞毒性が確認され、アポトーシスの促進とともに増殖/浸潤の用量依存的な抑制が明らかになりました。さらに、クルクミンは RB 細胞と組織の両方で Wnt/β-カテニン シグナル伝達を抑...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者には宣言すべき利益相反はありません。
謝辞
中国国家自然科学基金(82271218);天津眼科病院科学基金(一般プロジェクトykyb1908)。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| アネキシン V-APC/PI デュアル染色キット | ソーラービオ | CA1020 | フローサイトメトリーによるRB細胞のアポトーシスを定量的に評価 |
| CCK-8 アッセイキット | ビヨタイム | C0038 | 細胞増殖能力を評価するための490nmでの吸光度測定 |
| CO2インキュベーター | エッペンドルフ | 最適な培養条件(37&°C;RB細胞増殖用のC、5%CO2、および飽和湿度) | |
| クルクミン | シグマ | C1386 | 網膜芽細胞腫に対するクルクミンの抗腫瘍効果の調査 (RB) |
| ECL化学発光基板 | バイオス | C05-07004 | ウェスタンブロット分析におけるタンパク質バンドの可視化 |
| ウシ胎児血清 (FBS) | ビバセル | C04001-500 C04002-500 | 細胞培養 |
| フローサイトメトリー | ベックマン・コールター | ガリオス | 細胞のアポトーシス率を定量的に分析 |
| ImageJソフトウェア | 国立衛生研究所 | バージョン 6 | ウェスタンブロットバンド分析、タンパク質発現レベルの評価 |
| 倒立顕微鏡 | オリンポス | CKX53 | 浸潤細胞を400&回観察してカウントします。Transwellアッセイの倍率 |
| リポフェクタミン 3000 | インビトロゲン | L3000015 | 細胞トランスフェクション |
| マイクロプレートリーダー | 熱 | K3 | 酵素結合免疫吸着測定法(ELISA)定量 |
| miR-22はレンチウイルスを模倣します | ハンハンバイオテクノロジー | has-miR-22 | 動物実験用の安定トランスフェクト細胞株の確立 |
| マルチプレックスリアルタイムPCRシステム | バイオラッド | CFX384 | 定量的RT-PCR(qRT-PCR)を実行して、正確な遺伝子発現解析を行います。 |
| ペニシリン-ストレプトマイシン (PS) | アブキン | BMC1030 | 細菌汚染を防ぐために細胞培養培地に添加 |
| タンパク質抽出キット | ソーラービオ | BC3640-50T | 細胞および組織サンプルからのタンパク質の単離 |
| psiCHECK-2ベクトル | プロメガ | JR20110328 | miR-22とWnt1 3'UTRの間の相互作用を調べるためのWnt1-WT(野生型)およびWnt1-MUT(変異体)レポータープラスミドを構築する |
| PVDF用メンブレン | メルク | ISEQ00010 | プロテインブロッティング |
| ウサギIgG二次抗体 | 細胞シグナル伝達技術 | 14708 | 一次抗体への結合によるウェスタンブロット検出 |
| SPSS統計ソフトウェア | アイビーエム | SPSS 20.0 | 実験データの統計分析を実行する |
| SuperScript III ファーストストランド合成 SuperMix キット | インビトロゲン | 11752-050 | その後のRT-PCR分析のためのRNAのcDNAへの逆転写 |
| SYBR プレミックス Ex Taq II キット | タカラバイオ | RR820A | RT-PCRでWnt1、&β;-アクチンなどの標的遺伝子の発現を定量的に検出するため |
| TRIzol試薬 | インビトロゲン | 12183-555 | 細胞サンプルと組織サンプルの両方からのRNA抽出 |
| UV分光光度計 | ベックマン | DU800 | RNAサンプルの濃度と純度を決定する |
| Wnt1抗体 | アブカム | AB15251 | Wnt1タンパク質発現を検出するためのウェスタンブロット分析 |
| &β;-アクチン抗体 | アブカム | アブ8227 | ウェスタンブロット分析でタンパク質負荷を正規化するための内部リファレンスとして使用 |
| &β;-カテニン抗体 | 細胞シグナル伝達技術 | 37447 | β-カテニンタンパク質発現を検出するためのウェスタンブロット分析 |
参考文献
- Dimaras, H., et al. Retinoblastoma. Nat Rev Dis Primers. 1, 15021(2015).
- Pandey, A. N. Retinoblastoma: An overview. Saudi J Ophthalmol. 28 (4), 310-315 (2014).
- Rushlow, D., et al. Detection of mosaic RB1 mutations in families with retinoblastoma. Hum Mutat. 30 (5), 842-851 (2009).
- Yin, W., Gao, F., Zhang, S. MicroRNA-34a inhibits the proliferation and promotes the chemosensitivity of retinoblastoma cells by downregulating Notch1 expression. Mol Med Rep. 22 (2), 1613-1620 (2020).
- Liu, M., Wang, S. M., Jiang, Z. X., Lauren, H., Tao, L. M. Effects of miR-22 on viability, migration, invasion and apoptosis in retinoblastoma Y79 cells by targeting high-mobility group box 1. Int J Ophthalmol. 11 (10), 1600-1607 (2018).
- Guo, S., et al. miR-22 inhibits osteosarcoma cell proliferation and migration by targeting HMGB1 and inhibiting HMGB1-mediated autophagy. Tumour Biol. 35 (7), 7025-7034 (2014).
- Poliseno, L., et al. Identification of the miR-106b~25 microRNA cluster as a proto-oncogenic PTEN-targeting intron that cooperates with its host gene MCM7 in transformation. Sci Signal. 3 (117), ra29(2010).
- Zhang, J., et al. microRNA-22, downregulated in hepatocellular carcinoma and correlated with prognosis, suppresses cell proliferation and tumourigenicity. Br J Cancer. 103 (8), 1215-1220 (2010).
- Chen, H., et al. miR-22 inhibits the proliferation, motility, and invasion of human glioblastoma cells by directly targeting SIRT1. Tumour Biol. 37 (5), 6761-6768 (2016).
- Martin, J., et al. Differentially expressed miRNAs in retinoblastoma. Gene. 512 (2), 294-299 (2013).
- Hewlings, S. J., Kalman, D. S. Curcumin: A review of its effects on human health. Foods. 6 (10), 92(2017).
- He, Y., et al. Curcumin, inflammation, and chronic diseases: how are they linked. Molecules. 20 (5), 9183-9213 (2015).
- Anand, P., Sundaram, C., Jhurani, S., Kunnumakkara, A. B., Aggarwal, B. B. Curcumin and cancer: an "old-age" disease with an "age-old" solution. Cancer Lett. 267 (1), 133-164 (2008).
- Khadrawy, Y. A., Hosny, E. N., Eldein Mohamed, H. S. Assessment of the neuroprotective effect of green synthesized iron oxide nanoparticles capped with curcumin against a rat model of Parkinson's disease. Iran J Basic Med Sci. 27 (1), 81-89 (2024).
- Mu, Y. T., et al. Curcumin suppressed proliferation and migration of human retinoblastoma cells through modulating NF-κB pathway. Int Ophthalmol. 40 (10), 2435-2440 (2020).
- Li, Y., Sun, W., Han, N., Zou, Y., Yin, D. Curcumin inhibits proliferation, migration, invasion and promotes apoptosis of retinoblastoma cell lines through modulation of miR-99a and JAK/STAT pathway. BMC Cancer. 18 (1), 1230(2018).
- Sreenivasan, S., Ravichandran, S., Vetrivel, U., Krishnakumar, S. In vitro and in silico studies on inhibitory effects of curcumin on multi drug resistance associated protein (MRP1) in retinoblastoma cells. Bioinformation. 8 (1), 13-19 (2012).
- Zhu, J., Qu, J., Fan, Y., Zhang, R., Wang, X. Curcumin inhibits invasion and epithelial-mesenchymal transition in hepatocellular carcinoma cells by regulating TET1/Wnt/β-catenin signal axis. Bull Exp Biol Med. 173 (6), 770-774 (2022).
- Lu, Y., Zhang, R., Zhang, X., Zhang, B., Yao, Q. Curcumin may reverse 5-fluorouracil resistance on colonic cancer cells by regulating TET1-NKD-Wnt signal pathway to inhibit the EMT progress. Biomed Pharmacother. 129, 110381(2020).
- Sreenivasan, S., Thirumalai, K., Danda, R., Krishnakumar, S. Effect of curcumin on miRNA expression in human Y79 retinoblastoma cells. Curr Eye Res. 37 (5), 421-428 (2012).
- Yuan, S., et al. miR-22 promotes stem cell traits via activating Wnt/β-catenin signaling in cutaneous squamous cell carcinoma. Oncogene. 40 (39), 5799-5813 (2021).
- Sreenivasan, S., Thirumalai, K., Krishnakumar, S. Expression profile of genes regulated by curcumin in Y79 retinoblastoma cells. Nutr Cancer. 64 (4), 607-616 (2012).
- Park, W., Amin, A. R., Chen, Z. G., Shin, D. M. New perspectives of curcumin in cancer prevention. Cancer Prev Res (Phila). 6 (5), 387-400 (2013).
- Gupta, S. C., Patchva, S., Aggarwal, B. B. Therapeutic roles of curcumin: Lessons learned from clinical trials. AAPS J. 15 (1), 195-218 (2013).
- Reuter, S., Eifes, S., Dicato, M., Aggarwal, B. B., Diederich, M. Modulation of anti-apoptotic and survival pathways by curcumin as a strategy to induce apoptosis in cancer cells. Biochem Pharmacol. 76 (11), 1340-1351 (2008).
- Yu, X., et al. Curcumin exerts antitumor effects in retinoblastoma cells by regulating the JNK and p38 MAPK pathways. Int J Mol Med. 38 (3), 861-868 (2016).
- Sreenivasan, S., Krishnakumar, S. Synergistic effect of curcumin in combination with anticancer agents in human retinoblastoma cancer cell lines. Curr Eye Res. 40 (11), 1153-1165 (2015).
- Jiao, D. M., et al. Exploration of inhibitory mechanisms of curcumin in lung cancer metastasis using a miRNA-transcription factor-target gene network. PLoS One. 12 (2), e0172470(2017).
- Lu, Y., et al. Curcumin increases the sensitivity of Paclitaxel-resistant NSCLC cells to Paclitaxel through microRNA-30c-mediated MTA1 reduction. Tumour Biol. 39 (4), 1010428317698353(2017).
- Suresh, R., Ali, S., Ahmad, A., Philip, P. A., Sarkar, F. H. The role of cancer stem cells in recurrent and drug-resistant lung cancer. Adv Exp Med Biol. 890, 57-74 (2016).
- Yang, Z., et al. Retinoblastoma-binding protein 5 regulates H3K4 methylation modification to inhibit the proliferation of melanoma cells by inactivating the Wnt/β-catenin and epithelial-mesenchymal transition pathways. J Oncol. 2023, 5093941(2023).
- Bai, S., Shao, J., Bi, C., Li, F. β-asarone attenuates the proliferation, migration and enhances apoptosis of retinoblastoma through Wnt/β-catenin signaling pathway. Int Ophthalmol. 43 (5), 1687-1699 (2023).
- Yang, M., Li, Y., Wei, W. MicroRNA-188-5p promotes epithelial-mesenchymal transition by targeting ID4 through Wnt/β-catenin signaling in retinoblastoma. Onco Targets Ther. 12, 10251-10262 (2019).
- Shang, S., Hua, F., Hu, Z. W. The regulation of β-catenin activity and function in cancer: Therapeutic opportunities. Oncotarget. 8 (20), 33972-33989 (2017).
- Lu, Y., Wei, C., Xi, Z. Curcumin suppresses proliferation and invasion in non-small cell lung cancer by modulation of MTA1-mediated Wnt/β-catenin pathway. In Vitro Cell Dev Biol Anim. 50 (9), 840-850 (2014).
- Hao, J., et al. Curcumin suppresses colorectal tumorigenesis via the Wnt/β-catenin signaling pathway by downregulating Axin2. Oncol Lett. 21 (3), 186(2021).
- Shao, J., et al. LincROR mediates the suppressive effects of curcumin on hepatocellular carcinoma through inactivating Wnt/β-catenin signaling. Front Pharmacol. 11, 847(2020).
- Gao, M., Cui, Z., Zhao, D., Zhang, S., Cai, Q. MicroRNA-9 inhibits proliferation and progression in retinoblastoma cells by targeting PTEN. Genes Genomics. 43 (9), 1023-1033 (2021).
- Xu, L., Zhu, S., Tang, A., Liu, W. LncRNA MBLN1-AS1 inhibits the progression of retinoblastoma through targeting miR-338-5p-Wnt/β-catenin signaling pathway. Inflamm Res. 70 (2), 217-227 (2021).
- Fu, C., Wang, S., Jin, L., Zhang, M., Li, M. CircTET1 inhibits retinoblastoma progression via targeting miR-492 and miR-494-3p through Wnt/β-catenin signaling pathway. Curr Eye Res. 46 (7), 978-987 (2021).
- Bi, L. L., Han, F., Zhang, X. M., Li, Y. Y. LncRNA MT1JP acts as a tumor inhibitor via reciprocally regulating Wnt/β-catenin pathway in retinoblastoma. Eur Rev Med Pharmacol Sci. 22 (13), 4204-4214 (2018).
- Lyv, X., et al. Long noncoding RNA ZFPM2-AS1 knockdown restrains the development of retinoblastoma by modulating the MicroRNA-515/HOXA1/Wnt/β-catenin axis. Invest Ophthalmol Vis Sci. 61 (6), 41(2020).
- He, H., Qin, M. Long non-coding RNA LEF1-AS1 is involved in the progression of retinoblastoma through regulating the Wnt/β-catenin pathway. Clin Exp Pharmacol Physiol. 47 (5), 886-891 (2020).
- Yu, F., Pang, G., Zhao, G. RETRACTED: ANRIL acts as onco-lncRNA by regulation of microRNA-24/c-Myc, MEK/ERK and Wnt/β-catenin pathway in retinoblastoma. Int J Biol Macromol. 128, 583-592 (2019).
- Cruickshank, B. M., et al. LncRNA PART1 promotes proliferation and migration, is associated with cancer stem cells, and alters the miRNA landscape in triple-negative breast cancer. Cancers (Basel). 13 (11), 2644(2021).
- Rysz, J., Konecki, T., Franczyk, B., Ławiński, J., Gluba-Brzózka, A. The role of long noncoding RNA (lncRNAs) biomarkers in renal cell carcinoma. Int J Mol Sci. 24 (1), 643(2022).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。