本論文は、蛾の嗅覚受容ニューロンを培養し、長期的な生存と分化を可能にするプロトコルを提示します。このアプローチは、酵素的および機械的解離を用いてハンギングカラム培養技術を用いることで、パッチクランプ録音のような機能的研究を可能にする、非常に難しい現地記録の代替手段を提供します。
この記事について
サマリー
要約
昆虫は、交尾、摂食、社会的相互作用に関連する多くの行動において嗅覚に極めて依存しています。彼らは非常に感度の高い嗅覚受容体ニューロン(ORN)を進化させています。現 地 細胞外記録はこれらの細胞の反応プロファイル、コーディング特性、生理学の解析に一般的に用いられますが、シグナル伝達経路の詳細な解析にはパッチクランプ記録が必要です。この電気生理学的技術の利用を促進し、細胞内および細胞外ORN溶液の組成を良好に制御するために、本論文では昆虫ORNの培養プロトコルを説明しています。昆虫のORNは付属細胞に密接に包まれているため、成虫の急性解離やその膜への直接アクセスを防ぐため、このプロトコルはORNの分化前に蛾の蛹から触角細胞を解剖する方法を記述します。発達中の触角は酵素的かつ機械的に解離され、その後「ハンギングカラム技術」で逆さまに培養され、ORNsの分化と生存を数週間支える条件付き培地で行われます。この方法で培養されたORNは、パッチクランプ記録などの機能的アッセイに適しています。
概要
昆虫は嗅覚に大きく依存して環境を移動し、餌を見つけ、交尾を識別し、捕食者を避けるために1,2。嗅覚システムは非常に効率的で精密に調整されており、高感度と特異性で幅広い揮発性化学的手がかりを検出可能です。臭いは主に嗅覚受容体ニューロン(ORN)によって検出されます。これらは触角(主要な嗅覚器官)に位置するセンシルラや、蚊やショウジョウバエ4のような二翼目では二次的な嗅覚構造として機能する上顎触覚に存在します。
嗅覚信号伝達の分子メカニズムを調査するには、個々のORNへの直接的な電気生理的アクセスが不可欠です。パッチクランプ記録は神経生理学におけるゴールドスタンダード技術であり、イオンチャネル、受容体、シグナル伝達経路の詳細な機能的特徴付けを可能にします。昆虫ORNからの現場パッチクランプ記録は可能ですが、小型で付属細胞内の密集した詰まり、これらのニューロンがキューチキュラーカプレーションであるため技術的には困難です。これらの困難は、巨大サタニドガAntheraea polyphemus5の外突出樹状突起をパッチしたり、ショウジョウバエ6,7の半無傷または触角スライス処理からORNをパッチしたりすることで克服されました。インシチュ記録は正常に分化したニューロンの記録を可能にしますが、これらの手法には大きな技術的困難があり、よりアクセスしやすい実験条件を提供する代替手法の必要性を強調しています。
本記事では、蛾の触角からORNSを培養するための堅牢なプロトコルについて説明します。このプロトコルは幅広い鱗翅目に適用できるようですが、他の昆虫群ではまだ試験されていません。この方法は、ORNsの維持と増殖を体外で可能にし、パッチクランプ研究8,9,10や薬理学的および画像診断研究のためにこれらの細胞に直接アクセスできるようにします。この培養システムは、嗅覚伝達経路および関与分子成分の機能解析に貴重なプラットフォームを提供し、現地記録に伴う多くの制限を回避します。
プロトコル
昆虫を対象とした研究において、倫理承認や遵守声明は必要ありません。昆虫ORNの一次培養は、タバコタカガ( Manduca sexta 、鱗翅目、スフィンジダエ科)11、ミツバチ のApis mellifera12、キャベツガの Mamestra brassicae (鱗翅目、夜行蛾科)13で記載されました。記述されたプロトコルには、いくつかの類似点(蛹期からの解剖)と相違点(培養培地、成長面)が見られます。ここで述べたプロトコルは、いくつかの蛾種である M. brassicae、Spodoptera littoralis、 Bombyx mori、 Agrotis ipsilonのORN(遺伝子)培養に改良なしで成功裏に用いられています。層流フードの下で行われるすべての工程(セクション2から8は無菌で行われます)。
1. 昆虫
- S. littoralis(鱗翅目:Noctuidae)の後部幼虫は人工飼料で、22〜24°C、相対湿度60〜70%、かつ前述の16:8時間の明暗サイクルで維持しています。
- 蛹期にオスとメスが分かれています。羽化後は、成体のオスとメスをプラスチック容器に分けて保管し、20%ショ糖溶液を自由に提供してください。
- 毎日新しい蛹を採取し、22°Cで保ちましょう。 このような条件下で蛹化は14〜16日間続きます。オスまたはメスを対象に実験を行いましょう。
2. 条件付けグレース培養培地の調製
注:蛾のORN培養に用いられるグレースの培地は 、マンドゥカセクタ 細胞株(MRRL-CH115;この細胞株は希望に応じて入手可能です)に基づいています。MRRL-CH1細胞を3週間ごとに(約80%の合流率)を通常の空気下20°Cでサブカルチャーします。細胞の結合率が90%を超えないようにしてください。これは細胞の剥離や細胞死の増加につながります。各通路で次のステップを行います。
- 10mLピペットを使ってフラスコの底面から優しく接着した細胞を剥離します。
- 細胞懸濁液1.5mLを4つのフラスコに広げ、各フラスコに10%胎児用牛血清(FBS)を補足したグレース培地6.2mLを加えます。
- 細胞通過から2日後、最後に準備されたフラスコに汚染がなければ、前回のパスチャーの残りの3つのフラスコから培地を採取します。フィルター(0.2μm)を使い、調整されたグレース培地を5°Cで保存します。 最大6ヶ月間使えます。
3. パパーンの調合
注意:パパンは酵素活性の損失を最小限に抑えるために、濃縮アリコート(100 mLで10 mg/mL)および-80°Cで保存する必要があります。したがって、パパン溶剤のアリコウは別途調製する必要があります。エチレンジアミネテトラアセチン酸(EDTA)とL-システインが活性パパイン16に添加されます。パパンと混合すると、最終濃度は0.5 mM EDTA、1 mM システイン、1 mg/mLパパン(~10 U/mL)です。
- パパンアリコート:25mgを20%グリセロールを含む滅菌ハンクスバランス塩溶液(HBSS)2.5mLに希釈します。100μLのアリコートで-80°Cで保管してください。
- パパン溶媒アリコート:マンニトール27mLをピペットで投与し、その浸透圧をマンニトールで380 mOsmol/Lに調整します。EDTAを5.6mg、L-システインを5.3mg追加します。pHを6.7に調整してください。0.2μmの低結合フィルターで滅菌します。900μLのアリコートで-20°Cで保管してください。
4. 培養培地の準備
注:すべてのメディアは無菌です。滅菌は0.2μmの滅菌フィルターを使用して行われます。
- 3+2中音:
- 30mLのチューブにLeibovitz培地3份(16.4 mL)、Grace's medium 2份(11 mL)、ペニシリン・ストレプトマイシン2%(0.6 mL)を加えます。浸透圧を370 mOsmol/L(約150 mgのマンニトール)に調整し、pHを6.7(NaOH 1 M)に調整します。
- 得られた28mLの3+2培地から、5mLをろろして7mLのチューブに移します。残りの23 mLの3+2培地にフェニルチオウ尿素の結晶(約1〜2 mg)を加え、1.5 mLを滅菌して7 mLのチューブ(チューブ#1)および後に蛹の解剖に使う6つのペトリ皿に移し、以下で「解剖皿」と呼びます。
注:フェニルチオウ尿症は、触角組織の黒ずみを引き起こす酸化酵素活性17,18,19を阻害します。
- 条件付き3+2メディウム:
- 30 mLのチューブに67 mgのマンニトールを加え、9 mLのLeibovitz培地とフィルター(0.2 μm)を加えます。次にコンディショニングされたグレースの培地を2つ加えます。
- ライボヴィッツ培地とグレースの培地の浸透圧に応じてマンニトールの量を調整し、調整された3+2培地の浸透圧を370 ± 15 mOsmol/L(チューブ#2)にします。
- HBSS培地:HBSSを12mL、ペニシリン・ストレプトマイシンを0.25mL追加します。浸透圧を370 mOsmol/L(約216 mgのマンニトール)、pHを6.7(HCl 1 M)に調整し、滅菌(チューブ#3)を行います。
- HBSS-EGTA培地:エチレングリコールビス(β-アミノエチルエーテル)-N,N,N′,N′-四酢酸(EGTA)2mgと、事前に準備したHBSS溶液2mLを7mLのチューブに加えます。pHを6.7(NaOH 1 M)に調整し、(チューブ#4)を滅菌します。
5. 蛹の解剖(図1)
注意:ピンセットは定期的に70%エタノールと吸収性の紙で洗浄し、その後素早く炎で焼き付けてください。黒い背景での解剖はアンテナの可視化を容易にします。
- 生後2.5〜3日の蛹は水道水で洗い、その後蒸留水で洗い流します。
- ラミナーフローフードの下にペトリ皿に20〜25個の蛹を入れます。
- フードの下には、2つのビーカーを燃やしています。一方は70%エタノールで、もう一方は滅菌(オートクレーブ)された蒸留水を充填します。
- 鉗子で蛹4個を取り、70%エタノールに約10秒浸し、その後滅菌蒸留水に浸して解剖ペトリ皿の蓋に移します。
- 各触角のキューティクルを炎状の鉗子で切り、触角のペアを3+2培地で満たした解剖皿に移します(図1A,B)。
- 3+2培地では、触角が発達する管を覆うすべての組織を取り除き、触角と蛹の外皮だけを残し(図1C)、その後触角(図1D)を3+2の培地で満たされた新しい皿に移します。
注:図1E-Jは解剖過程の画像を示しています。 - 触角が発達する管を細かい鉗子で開け、優しくアンテナを取り除きます。アンテナを一つずつ取り外しると、以下のすすいでほぐしやすくなります(ステップ7.1〜7.9)。アンテナはチューブの底に沈みやすいためです。
- 無菌のパスツールピペットを使い、皿から培地を吸引して皿内に排出し、ピペットの内側表面を湿らせます。これにより、ピペット内のガラスに触角がくっつく傾向を減らすことができます。その後、剥離した触角をピペットで7mLチューブに移し、3+2の1.5mL(チューブ#1)に移します。
- 20個の蛹に対してステップ5.4から5.8を繰り返し、チューブ#1に20ペアの触角を集めます。
6. ペトリ皿の準備
注:触角細胞はハンギングカラム技術20で培養されます。これにはペトリ皿の準備が必要です。事前に済ませることも可能です。
- スライドからガラス片(6-7mm×6-7mm)を切り取る。エタノールで保管してください。
- ボンネットの下でガラス片を燃やし、すぐに滅菌(オートクレーブ処理)ワセリン(例:ワセリン)に浸し、 図2Aに示すようにペトリ皿に入れます。
7. 細胞の解離とプレート化
注意:以下に記載する培地交換については、触角組織を廃棄せずに滅菌されたパスツールピペットでできるだけ多くの培地を除去することが重要です。冷光源のアームは、媒質中に浮かぶアンテナをより明確に視覚化するのに役立ちます。酵素解離と機械的トリチュレーションは、触角細胞を遠心分離してパパインを除去するのを避けるため、同時にではなく順次行われます。
- パパン溶剤とパパン溶剤を室温に入れます。
- チューブ#1の3+2培地を、チューブ#3から1mLのHBSSを投与して切断したアンテナに置き換え、10分間待ちます。
- HBSS培地をチューブ#4から1mLのHBSS-EGTAに置き換え、5分間待ちます。
- HBSS-EGTA培地を1mLのHBSSに置き換え、5分間待ちます。
- HBSS培地を1mLのHBSSに置き換え、5分間待ちます。
- パパン溶媒(900μL)をパパンアリコート(100μL)に移します。3+2溶液の黄色と色が異なる場合は、得られたパパン希釈(0.2〜0.5 μL HCl 1M)のpHを調整します。pHを測定しないでください。測定すると溶液が汚染されます。
- HBSS培地を1mLの新たに薄めたパパン溶液に置き換え、10〜15分間培養します。酵素による消化は常温で行います。
- パパーム溶液を1mLのHBSS+50μLのFBSに置き換え、5分間パパーム活性を不活化させます。
- 1mLのHBSSで5分間2回洗い流します。
- HBSS培地を3+2培地1mLに置き換えます。
- パスツールピペットの先端をブンゼンバーナーで火磨きで研磨し、開口径を50〜100μmに減らします(十分な練習を重ねれば目視で確認できます)。
- 火で研磨したパスツールピペットで培地を優しく前後にピペットし、細胞クラスターが見えなくなるまで機械的に触角細胞を解離させます。媒体はぼんやりして見えなければなりません。
- 3+2培地を2mL加え、パスツールピペットで培地内に細胞を再懸浮させて均一な細胞密度を確保します。
- 細胞懸濁液を20個のペトリ皿(1皿あたり約150μL)に分割します(図2B)。
- 細胞を45分間静かにします。
- 各皿の3+2培地を、5%のFBSを補足した150μLの調整済み3+2培地に置き換えます。
- カバースリップ(図2C)を加え、パラフィルムで皿を密封します。
- インバート皿(図2D)をインバートし、20°Cの湿度で吸収性組織の2層の間にインキュベーターで保管します。
8. 文化媒体の変化
注意:培地の半分は4〜7日ごとに交換してください。
- 食器を点検して汚染の可能性がないか確認しましょう。これにより通常、色が黄色から赤みがかった色に変わります。
- 食器を開けて、カバースリップを優しく外します。P100マイクロピペットで75μLの培地を除去し、5%FBSを補足した85μLのフレッシュ調整済み3+2培地に置き換えます。
- カバースリップを戻し、パラフィルムで皿を密封し、20°Cの湿度で吸収性組織の層を加湿させてインキュベーターで保存します。
結果
このプロトコルにより、昆虫のORNSは培養中で3〜5週間生存状態を維持できます。ORNは形態によって容易に識別でき、小さな丸いまたはアーモンド形の細胞体と薄い突起(ニューライト)が特徴で、培養でわずか1日で明確に見え(図3A)、数日間にわたって拡大し続けます(図3B-D)。ニューロンの集団は体体のサイズに基づいて2つの集団で区別できます。大多数のニューロンは5〜7μm、少数は10〜12μmです(図3D)。おそらく、小さなニューロンはORNであり、大きなニューロンは機械感覚ニューロンです。ニューロンは単極または双極性で、単独、小さなクラスター、または解離していない触角外植面内に存在します。これらの細胞の神経細胞の同一性は、抗HRP抗体13(図4)を用いた免疫細胞化学によって確認されました。これは昆虫神経生物学におけるニューロン標識のゴールドスタンダードツールです。2週間後、非神経細胞、おそらく神経膠細胞が皿の表面に連続した層を形成し、ORNsはその上で成長し神経線を伸ばします(図5A,B)。
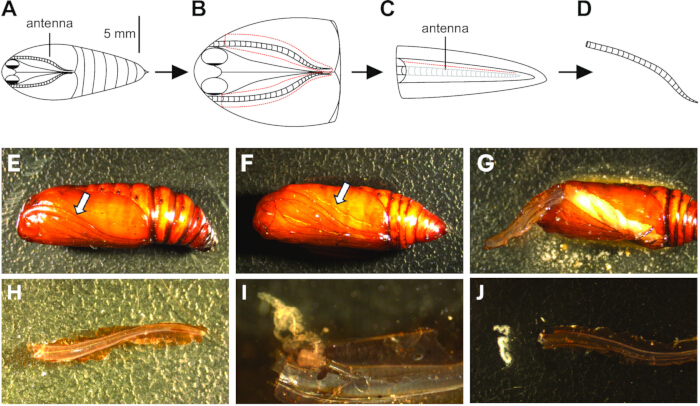
図1:蛹の解剖。 (A) 蛹の腹側。(B)キューティクルは両方の触角の周囲に切り込まれ(赤い破線)、蛹に深く入り込みすぎず、発達中の成虫組織を貫かないように注意します。各アンテナは優しく取り除かれ、3+2メディウムで満たされたアンテナに移されます。(C) 蛹のキューティクルに残っていた非触角組織はすべて除去され、触角は清潔な3+2培地の新しい皿に移されます。発達中のアンテナを覆う透明膜は慎重に切断されます(赤い破線)。(D) アンテナを優しく取り外す。(E) Aに相当するものを示す画像。白い矢印はアンテナを指しています。(F) Bに相当するものを示す画像。白い矢印はキューティクルに刻んだ切開を指しています。(G) アンテナを優しく持ち上げ、(H)から取り外す。(I) アンテナが発達する膜を分割した後、遠位端から基底(J)に押し出され、その後取り除かれます。 この図の拡大版はこちらをクリックしてご覧ください。
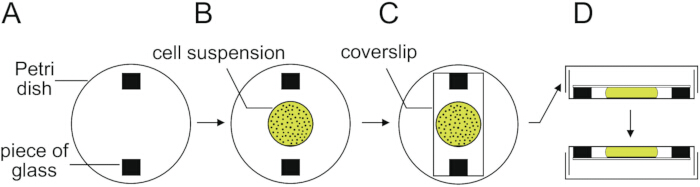
図2:アンテナ細胞培養に用いられるハンギングカラム技術。 (A) 2枚のガラス片が35mm皿の底に滅菌ワセリンで接着されます。(B)細胞懸濁液を皿の中心で優しく板付けし、45分間皿に取り付けます。(C)培養液を交換した後、無菌カバースリップをガラス片に慎重に置き、細胞懸濁液を覆い、位置を保ちます。(D) ペトリ皿は最終的に蓋を閉め、パラフィルムの帯で密封されます。 この図の拡大版はこちらをクリックしてご覧ください。
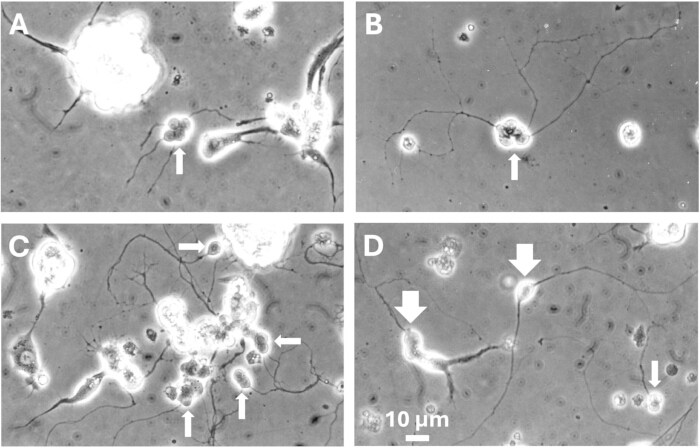
図3:M. brassicaeの触角から見た若い培養株の眺め。 (A) 1日経過すると神経質が伸長し始める。(B) 2日後には神経筋がより伸びて見える。(C,D)5日後、神経突起ネットワークはより密度が高くなります。ORN(白い矢印)は形態によって簡単に識別できます。単独または小さな群れで見られます。(C)に見られるような大きな細胞クラスターは、おそらく解離されていない触角外層である可能性が高いです。ニューロンを含むことがあり、そこから出るニューライトがその証拠です。小さなニューロンは小さな矢印(A-D)で示され、大きなニューロン2つは大きな矢印(D)で示されます。スケール(10μm)はAからDまで同じです。この図の拡大版はこちらをクリックしてください。
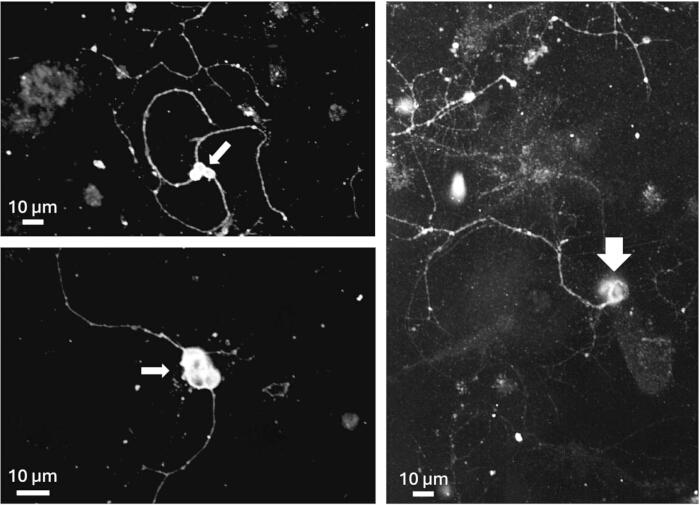
図4:小さいニューロン(小さな矢印)と大きなニューロン(大きな矢印)における抗HRP染色。 この実験は生後5日の培養菌で行われました。スケールバー:10μm。詳細なプロトコルについては13を参照してください。 この図の拡大版はこちらをクリックしてご覧ください。
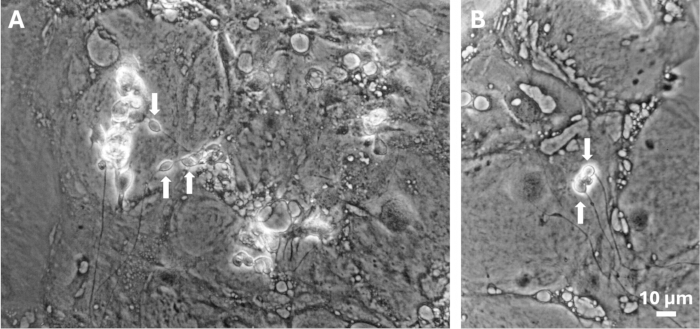
図5:M. brassicaeの触角からの古い培養の眺め。(A,B) 培養2週間後、皿の表面は非神経細胞の密層で覆われます。白い矢印はORNを示します。スケール(10μm)はAとBで同じです。この図の拡大版はこちらをクリックしてください。
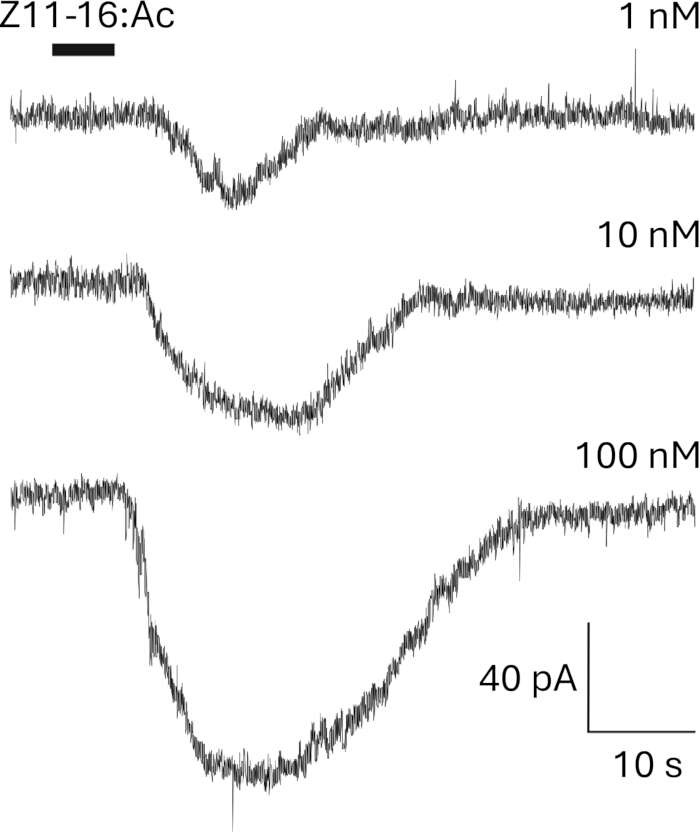
図6:培養中に少なくとも2週間滞在したニューロンは、嗅覚刺激に反応します。M. brassicaeの主なフェロモン化合物であるZ11-16:Acへの反応は、パッチクランプ技術の全細胞構成で記録できます。Z11-16:Acはジメチルスルホキシド(DMSO)に溶解され、最終濃度は0.1%を超えませんでした。この図の拡大版はこちらをクリックしてご覧ください。
ディスカッション
プロトコルの主なステップは以下の通りです:(i) 適切な発生段階での蛹の解剖。蛹がまだ若いときは触角組織が非常に少なく、緩く急速に拡散するため採取が非常に困難です。蛹が年を取りすぎると触角の剥離はずっと容易になりますが、ORNは 体外受精では生存しません。ORNの一次培養を作成した3種の異なる種において、蛹の解剖に最適な段階は2.5〜3日間で、20°Cで維持されている場合の半日であることを実験的に明らかにしました。(ii) グレース培地とリーボヴィッツのL-15培地の混合。グレースの培地は昆虫細胞の成長を支援するために一般的に使われ、ライボヴィッツのL-15培地はニューロンの成長を支えます。(iii) セルをメッキする際のFBS除去。FBSの補給が必要な場合は、細胞懸濁液でペトリ皿を播種する培地はFBSを含まないものでなければなりません。FBSは細胞の付着を阻害し、細胞生存を妨げるためです。(iv) 高密度でアンテナ細胞を培養すること。これはORNの存続にとって極めて重要です。(v) ハンギングコラム技法を用いる。細胞の増殖を促進し、培養の寿命を大幅に延ばします。
プロトコルの潜在的なトラブルシューティングの問題点として、パパンとの培養時間(10〜15分)は、パパンのバッチ数や100 μLのパパンアリコートを準備してから経過した時間に応じて調整する必要がある点があります。これは、パパンは-80°Cで保存しても徐々に活性が低下するためです。 パパーニの孵化中に触角の外観が目立って変化しないため、目視検査では潜伏時間の評価ができません。
根本的な問題は、in vitroにおけるORNの分離に関するものです。記載されたプロトコルにより、ORNは3〜5週間生存可能です。触角は成虫の出現約10日前に採取され、ORNは孵化の1〜2日前に完全に機能する(EAGおよび単一センシルム記録(個人観察)で測定されることを考えると、この生存期間は理論的には体外での分化に十分な時間を提供します。ORNは8,9,10,14,22,23,24,25,26の多様なイオンチャネルを表現することが確認されました。嗅覚刺激に対して線量依存的に反応する(図6)ため、少なくとも部分的にはin vitroでの通常の分化経路を辿っていることが示唆されています。
昆虫のORNは3つの付属細胞27に包まれており、センシラー区画を区切り、ORN樹状突起が沐浴するセンシラーリンパのイオン性およびタンパク質組成を制御しています。これらの補助細胞は、特に嗅覚結合タンパク質(OBP)を合成します。以前の研究では、3〜4週間齢の培養でOBPの高い発現が観察され、付属細胞もin vitro13で分化していることが示唆されました。培養の制約として、培養されたORNの樹状突起がセンシラーリンパに存在しない点があります。センシラーリンパはヘモリンパよりもK+濃度が高く、Na+濃度が低い媒体です。これにより、これら2つの区画の間に経上皮電位が生じます。逆に、細胞培養は電気生理学的特徴解析のための補助細胞へのアクセスを提供し、私たちの知る限り、これまでに行われていないアプローチです。
興味深いことに、 S. littoralis で行われた予備試験では、このプロトコルは蛾の口吻細胞の培養にも適していることが示唆されています。同様の形状のニューロン、恐らく味覚受容体ニューロンが観察されましたが、数は少なかったです。
一次培養はパッチクランプ記録のために昆虫ORN(昆虫ORN)への容易なアクセスを提供します。主な欠点は二重で、細胞を高密度で培養しなければならないため、多くの触角を解剖しなければならないこと、これらは一次培養であり、新しい培養物を定期的に準備する必要があります。しかし、培養物の質が良ければ、小さなサイズにもかかわらず、そのようなニューロンのパッチ接続は比較的容易であるため、それだけの価値はあります。
開示事項
著者たちは何も明かすことはありません。
謝辞
著者らはMRRL-CH1細胞株の寄贈をいただいたモニカ・ステングルに感謝の意を表します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 10mLシリンジ | アヴァントール | 該当なし | |
| 2.5 mLの注射器 | アヴァントール | 該当なし | |
| 21 mm x 26 mm カバースリップ | アヴァントール | WVR - 631-1335 | |
| 76mm x 26mmのガラススライド | アヴァントール | WVR - 631-9460 | 厚さ:1 mm以上;0.05mm |
| アクロディスク・スポールPF、0.8/0.2 & mu;m、25mm | アヴァントール | WVR - 514-4102 | 低結合シリンジフィルター |
| オートクレーブ | 特定のブランドはありません | 該当なし | |
| バーンゼンバーナー | 特定のブランドはありません | 該当なし | ペダルで操作できるものでなければなりません |
| コーニング Falcon Easy-Grip 組織培養皿 35 mm x 10 mm。コーニング 353001 | アヴァントール | WVR - 734-0005 | 細胞培養用の滅菌ペトリ皿 |
| D-マンニトール | シグマ・オルドリッチ | M9546 | 室温で保存 |
| デュモン #5 鉗子 | 該当なし | ||
| EGTA | シグマ・オルドリッチ | E4378 | 室温で保存 |
| ファルコン:50 mL、25 cm²、プラグシール、組織 培養処理 | アヴァントール | WVR - 734-0009 | 細胞培養フラスコ |
| 胎児用牛血清 | サーモフィッシャー・サイエンティフィック | A3160801 | -20度で保存してください。C |
| Grace's Insect培地にラクトアルブミン加水分解液と酵母酸塩(1x)-Gibcoを補足したもの | サーモフィッシャー・サイエンティフィック | 11605045 | グレースの昆虫培地を補助的に使いました。5 & deg;C |
| カルシウムおよびマグネシウムなしのHBSS-Gibco- | サーモフィッシャー・サイエンティフィック | 14170138 | ハンクスのバランスソルトソリューション(HBSS)。5 & deg;C |
| 個別に巻かれた血清学的ピペット、ファルコン | アヴァントール | WVR - 734-0352 | 滅菌使い捨て10mLピペット |
| 個別に巻かれた血清学的ピペット、ファルコン | アヴァントール | WVR - 734-0343 | 滅菌使い捨て25mLピペット |
| L15中型 - Gibco | サーモフィッシャー・サイエンティフィック | 11415056 | ライボヴィッツのL-15中型。5 & deg;C |
| 層状組織培養フード | 特定のブランドはありません | 該当なし | |
| N-フェニルチオウレア | シグマ・オルドリッチ | P7629 | 室温で保存 |
| パパン | シグマ・オルドリッチ | P5306 | 無菌充填の凍乾粉末。 アリクオートは-80 & degで保存;C |
| パラフィルム | シグマ・オルドリッチ | P7793 | |
| パスツールピペットプラグド 綿付き - 150 mm | 特定のブランドはありません | そのまま(綿プラグ付き)オートクレーブし、ボンネットの下に消毒箱 に入れて保管してください | |
| ペニシリン・ストレプトマイシン | シグマ・オルドリッチ | P4333 | ペニシリン-ストレプトマイシン:5000 UI/ml + 5000 & micro;g/ml. ストアは-20°1 mLの無菌アリコートにCを充填 |
| pHメーター | 特定のブランドはありません | ||
| ピペットコントロール | アヴァントール | WVR - 612-7179 | 安価な代替手段としては手動ピペット の使用があります。コントローラー(例:ピペットポンプやベルアートピペットポンプ) |
| 冷蔵インキュベーター | PHCヨーロッパ | モデルMIR-154-PE | CO2濃度調整システムは 昆虫培養培地のpH調整には不要です |
| 立体顕微鏡 | 特定のブランドはありません | 10倍から64倍の倍率で およびnbspを装備;冷光源と柔軟な光導引装置 | |
| 蛹解剖用の滅菌ペトリ皿 | アヴァントール | WVR - 391-0868 | どんな無菌皿でも使用できます |
| スクリューキャップ付きのステリリン容器、30mL | アヴァントール | WVR - 215-0321 | 30 mL 滅菌チューブ |
| ステリリン容器(スクリューキャップ付き)、7mL | アヴァントール | WVR - 215-0328 | 7 mL 滅菌チューブ |
| ワセリン | シグマ・オルドリッチ | 室温で無菌保存;ワトロリンゼリー |
参考文献
- Gadenne, C., Barrozo, R., Anton, S. Plasticity in insect olfaction: To smell or not to smell. Annu Rev Entomol. 61, 317-333 (2016).
- Hansson, B. S. Olfaction in lepidoptera. Experientia. 51, 1003-1027 (1995).
- De Bruyne, M., Baker, T. C. Odor detection in insects: Volatile codes. J Chem Ecol. 34 (7), 882-897 (2008).
- Ayer, R. K., Carlson, J. Olfactory physiology in the Drosophila antenna and maxillary palp: Acj6 distinguishes two classes of odorant pathways. J Neurobiol. 23 (8), 965-982 (1992).
- Zufall, F., Hatt, H. Dual activation of a sex pheromone-dependent ion channel from insect olfactory dendrites by protein kinase C activators and cyclic GMP. Proc Natl Acad Sci U S A. 88, 8520-8524 (1991).
- Dubin, A. E., Harris, G. L. Voltage-activated and odor-modulated conductances in olfactory neurons of Drosophila melanogaster. J Neurobiol. 32, 123-137 (1997).
- Cao, L. H., et al. Distinct signaling of Drosophila chemoreceptors in olfactory sensory neurons. Proc Natl Acad Sci U S A. 113 (7), E902-E911 (2016).
- Kadala, A., Charreton, M., Jakob, I., Le Conte, Y., Collet, C. A use-dependent sodium current modification induced by type I pyrethroid insecticides in honeybee antennal olfactory receptor neurons. Neurotoxicology. 32 (3), 320-330 (2011).
- Lucas, P., Shimahara, T. Voltage- and calcium-activated currents in cultured olfactory receptor neurons of male Mamestra brassicae (lepidoptera). Chem Senses. 27 (7), 599-610 (2002).
- Stengl, M. Intracellular-messenger-mediated cation channels in cultured olfactory receptor neurons. J Exp Biol. 178, 125-147 (1993).
- Stengl, M., Hildebrand, J. G. Insect olfactory neurons in vitro: Morphological and immunocytochemical characterization of male-specific antennal receptor cells from developing antennae of male Manduca sexta. J Neurosci. 10 (3), 837-847 (1990).
- Gascuel, J., Masson, C., Bermudez, I., Beadle, D. J. Morphological analysis of honeybee antennal cells growing in primary cell cultures. Tissue Cell. 26 (4), 551-558 (1994).
- Lucas, P., Nagnan-Le Meillour, P. Primary culture of antennal cells of Mamestra brassicae: Morphology of cell types and evidence for biosynthesis of pheromone-binding proteins in vitro. Cell Tissue Res. 289 (2), 375-382 (1997).
- Pézier, A., et al. Calcium activates a chloride conductance likely involved in olfactory receptor neuron repolarisation in the moth Spodoptera littoralis. J Neurosci. 30 (18), 6323-6333 (2010).
- Eide, P. E., Caldwell, J. M., Marks, E. P. Establishment of two cell lines from embryonic tissue of the tobacco hornworm, Manduca sexta (L). In Vitro. 11 (6), 395-399 (1975).
- Huettner, J. E., Baughman, R. W. Primary culture of identified neurons from the visual cortex of postnatal rats. J Neurosci. 6 (10), 3044-3060 (1986).
- Ryazanova, A. D., Alekseev, A. A., Slepneva, I. A. The phenylthiourea is a competitive inhibitor of the enzymatic oxidation of dopa by phenoloxidase. J Enzyme Inhib Med Chem. 27 (1), 78-83 (2012).
- Hunt, A. J., Sherman, K. D., Weintraub, S. T. Characterization of phenoloxidases from larval cuticle of Sarcophaga bullata and a comparison with cuticular enzymes from other species. Can J Zool. 65 (11), 2501-2508 (1987).
- Zufelato, M. S., Lourenco, A. P., Simoes, Z. L., Jorge, J. A., Bitondi, M. M. Phenoloxidase activity in Apis mellifera honey bee pupae, and ecdysteroid-dependent expression of the prophenoloxidase mRNA. Insect Biochem Mol Biol. 34 (12), 1257-1268 (2004).
- Lees, G., Beadle, D. J. Cell Culture Approaches to Invertebrate Neuroscience. Beadle, D. J., Lees, G., Kater, S. B. , Academic Press. London. 109-147 (1988).
- Jan, L. Y., Jan, Y. N. Antibodies to horseradish peroxidase as specific neuronal markers in Drosophila and in grasshopper embryos. Proc Natl Acad Sci U S A. 79 (8), 2700-2704 (1982).
- Pézier, A., Acquistapace, A., Renou, M., Rospars, J. P., Lucas, P. Ca2+ stabilizes the membrane potential of moth olfactory receptor neurons at rest and is essential for their fast repolarization. Chem Senses. 32 (4), 305-317 (2007).
- Dolzer, J., Krannich, S., Stengl, M. Pharmacological investigation of protein kinase C- and cGMP-dependent ion channels in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. Chem Senses. 33 (9), 803-813 (2008).
- Krannich, S., Stengl, M. Cyclic nucleotide-activated currents in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. J Neurophysiol. 100 (5), 2866-2877 (2008).
- Stengl, M. Inositol-triphosphate-dependent calcium currents precede cation currents in insect olfactory receptor neurons in vitro. J Comp Physiol A. 174 (2), 187-194 (1994).
- Laurent, S., Masson, C., Jakob, I. Whole-cell recording from honeybee olfactory receptor neurons: Ionic currents, membrane excitability and odourant response in developing worker bee and drone. Eur J Neurosci. 15 (7), 1139-1152 (2002).
- Steinbrecht, R. A. Pheromone Biochemistry. Prestwich, G. D., Blomquist, G. J. , Academic Press. Orlando. 353-384 (1987).
- Kaissling, K. E. R. H. Wright Lectures on Insect Olfaction. , Simon Fraser University, Burnaby. B.C., Canada. (1987).
- Kaissling, K. E., Thorson, J. Receptors for Neurotransmitters, Hormones and Pheromones in Insects. Sattelle, D. B., Hall, L. M., Hildebrand, J. G. , Elsevier, North Holland Biomedical Press. Amsterdam. 261-282 (1980).
- Gu, Y., Lucas, P., Rospars, J. P. Computational model of the insect pheromone transduction cascade. PLoS Comput Biol. 5 (3), e1000321(2009).