クルクミン(CUM)は、AKT/Wnt/β-カテニン軸を抑制することで膠芽腫(GBM)の進行を抑制します。本プロトコルは、CUMがGBMにおける悪性進行を阻害する分子メカニズムを調査し、CUMがこの経路を調節することでCUPがどのように誘導するかを評価する方法を説明しています。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
クルクミン(CUM)は膠芽腫(GBM)の悪性行為を調節することができます。本研究は、CUMがAKT/Wnt/βカテニンシグナル伝達経路を通じてGBMの進行を誘導することでGBMの進行を抑制するかどうかを調査します。最適なクルクミン濃度はMTTアッセイを用いて決定されました。A172およびU251細胞はCUM、AKT阻害剤MK-2206、Wnt阻害剤LGK974、Elsm-Cu(エレスクロモール+CuCl2)で処理されました。細胞増殖、移動、侵入、アポトーシスは、カルボキシフルオレセイン・スクシニミジルアミノエステル染色、スクラッチアッセイ、トランスウェルアッセイ、フローサイトメトリーをそれぞれ用いて評価しました。ミトSOX蛍光、タツノオトシゴ代謝解析、免疫蛍光、Cu2+ 検出、ウェスタンブロッティングを用いてミトコンドリア酸化ストレスおよびカプロプトーシスを評価しました。AKT/Wnt/β-カテニン軸はTCF/LEF1レポーターキットとウェスタンブロッティングを用いて解析されました。GBM異種移植モデルが確立され、5週間にわたりガヴェージでCUMを投与しました。腫瘍増殖、クープロプトーシス、およびAKT/Wnt/βカテニン経路タンパク質発現に対するCUMの効果が評価されました。細胞はin vitroで10μMおよび20μM CUMで処理されました。CUM治療は増殖、移動、侵入を抑えつつ、酸化ストレスとキュプロプトーシスを促進しました。また、CUMはWnt/β-カテニンシグナル活性を抑制しました。経路阻害により活性酸素種(3.7倍)およびCu2+ (3.1倍)のレベルが増加し、ジヒドロリポアミド・アセチルトランスフェラーゼの発現が減少し、悪性行動を抑制しました。ヌードマウスでは、CUMは腫瘍の増殖を有意に抑制し、キュプロプトーシスを促進し、AKT/Wnt/β-カテニン軸の活性化を阻害しました。私たちの結果は、CUMがAKT/Wnt/β-カテニンシグナル伝達を抑制し、キュプロプトーシシスを促進し、GBMの進行を妨げることを示しています。
概要
膠腫は中枢神経系(CNS)で最も多く見られる原発性頭蓋内悪性腫瘍です1。グレード4のグリオーマは通常、膠芽腫(GBM)を指し、予後は悪い2。GBMは非常に侵襲性の高い脳腫瘍で、中枢神経系悪性腫瘍の約50%を占め、中央値生存期間は3年未満です。悪性腫瘍の発生率が高く再発率が高いことで知られています(4.5)。現在、GBM治療は主に手術に依存し、放射線療法、化学療法、その他の包括的な治療法を補完しています6。免疫療法、バイオセラピー、ナノ医療などの新興治療戦略は前臨床試験で顕著な成果を上げています7,8ですが、全体の5年生存率は依然として4.3%にとどまります。最も一般的に使われている化学療法の治療法は、よく知られたStupp療法です。しかし、未メチル化MGMTのGBM患者では、全体の生存率は有意に延長されません。したがって、新しい治療戦略を探ることは患者の生存期間を延ばす上で極めて重要です。本研究は、GBMに対するクルクミン(CUM)の抗がんメカニズムがキュプロプトーシスに関与していると仮説を立てています。
異常な銅代謝や銅による細胞損傷は、一連の疾患を引き起こすことがあります11.従来の酸化還元条件下では、還元されたCu+をCu2+に酸化することができます。ツヴェトコフらは、銅による細胞死の未発見のメカニズムであるキュプロプトーシスを発見しました。Cu2+イオンはアシル化化合物に結合し、その後Fe-Sクラスタータンパク質の発現がダウンレギュレーションされ、細胞死を引き起こします12,13。広範な研究により、キュプロプトーシスは腫瘍の病態生理過程と密接に関連していることが確認されています14,15。キュプロプトーシス関連のlncRNAおよび遺伝子は、GBMの予後および治療の潜在的なバイオマーカーとなります16。BCMDはCu2+を放出し、クプロプトーシスを誘発し、免疫原性細胞死を引き起こしてGBM17を治療します。したがって、私たちはクプロプトーシスがGBM治療の新規標的として利用可能であると考えます。しかし、既存の多くの方法はエレスクロモール・銅のような合成キャリアや高濃度銅イオンの直接誘導に依存しています。この外因的な劇的介入はキュプロプトーシスの概念を証明する可能性はありますが、生理学的相関や標的化が乏しいため、臨床的転換の見通しは限られています。したがって、GBMのキュプロトーシスを内因性かつ正確に調節し、その上流のシグナル伝達機構を解明できる天然または小分子化合物の探索は、この新規メカニズムと臨床治療との重要な架け橋となっています。
中国医学は抗腫瘍薬研究において広く貴重な資源とされています。CUMは伝統的な中国医学のウコンから抽出されるポリフェノール物質です。現代の薬理学で、抗酸化、抗炎症、抗腫瘍の機能があることが確認されています。CUMは多くの抗腫瘍活性を持っています。アポトーシス、多分子経路の破壊、その他のメカニズムを促進することでGBM細胞の活動を低減させることができます18。in vitro実験では、低線量CUMと照射の組み合わせが抗GBM増殖を相乗的に促進できることが示されています19。さらに、CUMはMAPK20を含むGBMに関連するコア経路を調節することができます。従来のテモゾロミド(TMZ)化学療法と比較して、CUMは独自の治療的利点を示しています。テモゾロミドの有効性は、GBMの強力なDNA修復機構によって制限されることが多いため、薬剤耐性が生じます。CUMがミトコンドリア代謝を標的とする21,22の誘導メカニズムはTMZとは独立しています。CUMはクプロプトーシスに関連する代謝プロセスを調節するだけでなく、GBMの進行に関連する複数の重要なシグナル伝達経路を同時に妨害し、単一療法の限界を克服し、統合治療戦略を開発する可能性を秘めています。本研究で使用されたCUMの濃度範囲(10-20 μM)は、前臨床治療研究で報告された有効濃度と一致しています23。CUMの口腔バイオアラベイシティが低いことや血液脳関門を通じた送達効率が実用的な課題である一方で、新興のナノデリバリーシステムやターゲットを絞った修飾戦略がこのボトルネックを克服する有望な解決策を提供しています。
GBMにおけるCUMのプロアポトーシス、抗増殖、移動抑制効果は多くの研究で報告されていますが、既存の研究の多くは伝統的なアポトーシスやオートファジー経路への影響に焦点を当てています。本研究は、CUMが卵巣形成を調節することでGBMの悪性進行を抑制するかどうかを明らかにすることを目的としています。私たちは、CUMがAKT/Wnt/β-カテニン軸を抑制することで部分的にクプロプトーシスを誘導し、それによってGBMを抑制する可能性があるかどうかを調査しました。これを基に、本研究はCUMによるGBM治療の改善およびGBM治療における新規標的の開発に関する実験的基盤を提供します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
すべての動物処置は、実験動物の人道的ケアと使用に関する確立された機関基準に準拠して実施され、機関動物倫理委員会によって正式に承認されました。可能な限り動物の不快感や苦痛を減らすための措置が講じられました。
化学化合物、染料、生物サンプルを用いた作業は、潜在的なリスクを軽減するために確立されたバイオセーフティの実践に従って行われました。パラホルマルデヒド、銅系試薬、DHEなどの潜在的に危険な物質は、手袋、マスク、安全メガネなどの適切な個人用防護具を用いて取り扱いました。使用済み試薬や汚染された使い捨て品などのすべての廃棄物は、指定されたバイオハザード容器に分類され、その後、機関および環境安全規則に則った認可された有害廃棄物管理サービスによって処理されました。全体的な実験設計は 図1に示されています。
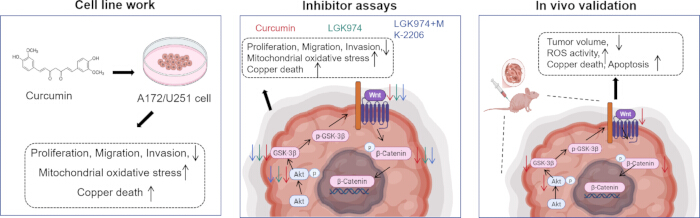
図1:本研究のワークフロー。 この図の拡大版はこちらをクリックしてご覧ください。
細胞培養とグルーピング
正常なヒト脳星状細胞(NHA)および膠芽腫細胞株A172、U251、LN229、SHG-44(材料 表参照)は、10%胎児用牛血清(FBS)を含むDMEM培地で培養され、3°Cのインキュベーターで5% CO₂で維持されました。培地は隔日で交換され、細胞は約80%の合流度に達したときに通過させられました。CUMの適切な用量と曝露時間はMTTアッセイを用いて決定されました。NHA、A172、U251、LN229、SHG-44細胞は、それぞれ24時間、48時間、7時間の23年間、異なる濃度(0、2.5、5、10、20、4μM)のCUMで処理されました。その後、2μLのMTT溶液を加えました。hの後、各ウェルに15μLのジメチルスルホキシドを加え、優しく混合しました。45 nmでの光学密度(OD)はマイクロプレートリーダーを用いて測定されました。すべての実験で未処理細胞(対照群)が陰性対照として使用されました。
A172およびU251細胞はシードされ、処理条件に基づき対照群、CUM低用量(1μM)、高用量CUM(2μM)、AKT阻害剤(MK-2206)、AKT阻害剤+Wnt阻害剤(MK-2206+LGK974)、Elsm-Cu(エレスクロモール+CuCl₂)に分けられました。CUM群の細胞は10μM または2μM CUMで4時間処理されました。MK-2206群の細胞は2時間間1μMのMK-2206を受け取りました。MK-2206 + LGK974群の細胞は、MK-2206曝露後にμM LGK974でhを処理しました。Elsm-Cu基細胞は100 nMエレスクロモールとμM CuCl₂で4時間14分処理されました。
フローサイトメトリー
各群の培養A172およびU251細胞は、1 μg/mL PI染色液を含むPBSで1分間インキュベートされました。細胞は0.25%トリプシンで処理され、遠心分離(20 × g、室温)で採取されました。PEチャネルを持つフローサイトメーター(励起488nm)を用いてPI陽性細胞を検出し、細胞死亡率は27と計算されました。
カルボキシフルオレセイン・スクシニミジルアミノエステル(CFSE)アッセイ
A172およびU251細胞は、μmol/L CellTrace CFSE染料を3°Cの暗闇で1分間インキュベートしました。培地は中和され、室温で20 × gでミノミンを遠心分離しました。採取後、細胞はそのグループ分けに従って培養・処理されました。CFSE蛍光強度はフローサイトメトリー(488 nmの励起)を用いて解析されました27。
細胞クローン形成アッセイ
培養したA172およびU251細胞を消化し、再懸浮させ、カウントしました。準備した細胞懸濁液を2ミリリットル追加しました。穏やかな混合の後、細胞は約14日間インキュベートされました。細胞は4%パラホルムアルデヒドで3分間固定され、固定液は廃棄されました。0.1%のクリスタルバイオレットで染色した後。コロニー画像を撮影し、クローン形成率は14と計算されました。
セルスクラッチテスト
A172およびU251細胞(10個×6 個の細胞/ウェル)は90%の結合率に達するまで培養されました。細胞単分子層は無菌の2μLチップで一度傷を刻み、その後異なる濃度のCUMでh時間と48時間治療しました。画像は顕微鏡で撮影されました。傷の治癒率はImageJソフトウェアで評価されました。画像は8ビット形式に変換され、スクラッチ面積とセル面積を区別するための統一閾値が設定され、0時間および48時間のスクラッチ面積は Analyze Particles 関数で計算されました。傷の治癒率(%) = (0時間距離 − 48時間距離) / 0時間距離 × 100%23。
トランスウェル実験
A172およびU251細胞は指定された処理に曝露され、酵素的に分離され、室温で200× gで5分間遠心分離されました。細胞は血清不使用培地に再懸濁されました。マトリジェルは血清フリー培地で1:8の比率で希釈され、十分に混合され、5μLをトランスウェル挿入の上部チャンバーに加え、その後4時間の培養が行われました。上部チャンバーには1井戸あたり合計5×10個の4セルが追加され、下部チャンバーには20%FBSを補った60μLの培地が置かれました。48時間の培養後、細胞はパラホルムアルデヒドで固定され、結晶バイオレットで染色されました。各井戸の中心および周辺から5つの視野が選ばれました。細胞は顕微鏡で観察・画像化されました。ImageJを用いて侵襲細胞を算出しました。画像は8ビット形式に変換され、染色された細胞と背景を区別するために閾値が適用され、Analyze Particles機能で膜を通過した細胞を数えました。
ミトコンドリア膜電位(MMP)検出
各グループの培養A172およびU251細胞は、JC-1作動液のmLとともに暗闇で30分間インキュベートされました。細胞は予冷のJC-1バッファーで優しく洗浄され、観察・蛍光顕微鏡で撮影されました。488 nm励起を用いて、JC-1ポリマーおよびモノマー信号はそれぞれ590 nmおよび530 nmの発光フィルターで収集されました。赤緑蛍光比(JC-1集合体とモノマーの比率)はImageJソフトウェアを用いて解析し、MMP変化28を評価しました。赤色と緑色のチャネル画像を別々に抽出し、同じ領域の平均蛍光強度を定量化しました。
酸素消費率(OCR)検出
培養したA172およびU251細胞をシードしました。プレートは3°Cの予熱分析器に置かれ、適応されました。適応後、決定媒体が追加されました。自動校正後、板はCO2なしで3°Cで15〜2分間平衡状態にされました。ベースラインOCRを測定し、アッセイプログラムは定められた間隔でミトコンドリアOCRを記録するように設定されました。データは後続解析のためにエクスポートされました。
活性酸素種(ROS)のミトSOX蛍光プローブ検出
A172およびU251細胞は1 ×4 cells/mLの密度に調整され、共焦点皿に1 mLずつ1 mLをまきまき、その後薬物介入が実施されました。細胞上清液は廃棄され、希釈されたミトSOXプローブ1 mL(1:1,000)を追加しました。細胞は暗闇で3°Cの環境で1分間培養されました。蛍光顕微鏡(励起/放出:510/580 nm)を用いてミトコンドリアのROSレベル29を評価するために蛍光信号を捕捉しました。
免疫蛍光
カバースリップはDMEM培養培地で一度洗浄しました。その後、細胞シーディングと薬物介入のために6ウェルプレートに置かれました。24時間後、細胞は4%のパラホルマルデヒドに固定され、その後5%の牛血清アルブミン(BSA)で30分間ブロックされました。ブロッキング溶液を除去し、ジヒドロリポアミドアセチルトランスフェラーゼ(DLAT)およびβ-カテニンを標的とした希釈した一次抗体を適用し、その後°C30で一晩培養しました。その後、蛍光標識された二次抗体を導入し、3°Cで30分間インキュベートしました。細胞核はDAPIでカウンタースインテインされ、スライドはアンチフェード試薬で装着されました。蛍光顕微鏡で蛍光画像を撮影し、信号強度はImageJソフトウェアで定量化されました。画像は8ビット形式に変換され、ターゲット信号とバックグラウンドノイズを区別するために一貫した閾値が適用されました。 Rectangle ツールを使って希望する細胞領域を選択し、平均蛍光強度27を測定しました。ミトコンドリアを可視化するために、細胞を20 nM MitoTracker Red CMXRosで30分間処理し、その後パラホルムアルデヒド30で固定しました。
TCF/LEF1ルシフェラーゼリポーターキット
A172およびU251細胞内のWnt/βカテニン活性化はTCF/LEF1ルシフェラーゼリポーターキットを用いて評価されました。TCF/LEFレポーターベクターは、TATAボックスおよびT細胞因子/リンパ球増強因子(TCF/LEF)応答要素を含み、緑色蛍光タンパク質(GFP)発現によるβ-カテニン転写活性の間接検出を可能にします。培養したA172およびU251細胞は、5ngのTCF/LEFレポーターベクターで逆トランスフェクトされました。トランスフェクションから16時間後、マイクロプレートリーダーを用いて、それぞれ励起および51 nm(31)の輝き設定で蛍光強度を記録しました。
腫瘍を持つマウス
7週齢、2 ± 2 gのオスのBALB/cヌードマウス10匹は、特定の病原体のない環境(2°C、湿度65%)で標準的な食事と水に制限なくアクセスされていました。すべての手続きは、長江大学第一附属病院倫理審査委員会によって承認されました(2023092なし;承認日:2023年10月18日)。
GBM異種移植モデルを構築するために、A172細胞(4個×10個6 細胞/mL)を血清フリー培地に懸浮させ、各マウスの右脇腹に皮下注射で0.1mLを投与しました。動物はランダムに対照群またはCUM処理群に割り当てられました(n=5名ずつ)。CUM群は経口ガベージで1日60mg/kgのクルクミンを投与し、対照群は同量の生理食塩水を投与しました。腫瘍直径は7日ごとにバーニアキャリパーで記録され、腫瘍容積は長さ×幅2 (mm3)×1/2の式で計算されました。5週間後、マウスは頸部脱臼によって安楽死させられ、腫瘍は無菌条件下で採取され、体重測定32が行われました。
TUNELアッセイ
腫瘍組織は4%パラホルムアルデヒドで24時間固定され、エタノールで脱水され、パラフィンに埋め込まれ、μm厚さで切片されました。切片は脱石・再水和、PBS洗浄、抗原採取のために50分間プロテナーゼKで処理、3%過酸化水素で培養されました。TUNEL反応混合物を1時間塗布し、その後アンチフェード試薬でマウントしました。蛍光画像は顕微鏡で取得され、ImageJソフトウェアを用いて各フィールドごとのTUNEL陽性細胞数を定量化しました。
免疫組織化学
パラフィン埋め込み腫瘍切片は6°Cで焼かれ、キシレンで脱ワックスされ、グレードエタノール系列で再水和されました。抗原回収は加熱されたEDTAバッファーを用いて行われ、その後内因性ペルオキシダーゼ活性の抑制が行われました。スライドは抗Ki-67一次抗体とともに一晩、°Cでインキュベートされました。 二次抗体で20分間インキュベートした後、切片を5分間ジアミノベンジジン(DAB)で染色し、ヘマトキシリンでカウンター染色しました。脱水後、中性樹脂でマウントした後、スライドは顕微鏡で撮影されました。茶黄色沈殿物によって陽性染色が確認され、ImageJ27を用いてKi-67陽性細胞を定量化しました。
ジヒドロエチジウム(DHE)蛍光染色
ROSレベルはDHE蛍光染色を用いて評価されました。凍結腫瘍組織切片はPBSで洗浄されました。背景蛍光を消滅し、各セクションに3分間μM DHEを追加しました。PBS洗浄後、部分は暗闇で封印されました。蛍光は顕微鏡で観察され(励起/放出度:518/605 nm)、各グループに5枚のランダム画像が収集されました。ImageJはROSレベルの定量に使用されました。
Cu2+ コンテンツ検出
GBM細胞および腫瘍組織におけるCu2+ の濃度は比色検出キットを用いて評価されました。処理後のA172およびU251細胞は採取され、1,500 × gで10分間°Cで遠心分離されました。 細胞のペレットは0で再懸濁されました。蒸留水をmL、氷で超音波処理し、再び遠心分離しました。腫瘍組織は蒸留水で均質化され、同様に4°Cで10分間遠心分離されました。上清液(1 μL)を96ウェルプレートに移し、23 μLの染色試薬と混合して密封し、5分間インキュベートしました。マイクロプレートリーダーを用いて58nmで光学密度(OD)を測定し、Cu2+ レベルは14で計算されました。
ウェスタン・ブロット(WB)
タンパク質は培養細胞や腫瘍組織から単離されました。上清液は12,000 × g、4°Cで15分間遠心分離して得られ、タンパク質濃度はBCAアッセイで定量されました。変性後、サンプルはSDS-PAGEで分離され、PVDF膜に移され、5%脱乳で1時間ブロッキングされました。膜はTBSTで洗浄され、FDX1、LIAS、DLAT、DLD、AKT、P-AKT、Wnt3a、GSK-3β、p-GSK-3β、β-カテニン、p-β-カテニン、β-アクチンに対する一次抗体とともに一晩培養されました(材料表参照)14,33。追加のTBST洗浄後、膜はHRP結合二次抗体で1時間インキュベートされ、ECL試薬を用いて化学発光法で可視化されました。ImageJソフトウェアは、Rectangle選択ツールとGels解析機能を使って信号強度を定量化しました。相対タンパク質発現は、ターゲットバンドのグレー値と内部対照(GAPDH)の比率として計算されました。A172およびU251細胞からの核抽出物は、核タンパク質抽出キットを用いて調製されました。βカテニンおよびラミンB1の発現が評価され、ラミンB1が核負荷制御34として機能しました。
統計解析
定量的な結果は、3回の独立した複製の平均を反映しています。すべてのデータは正規分布および分散の均質性を評価しました。一方元ANOVAに続いてTukeyの事後検定を用いて複数グループ間の比較を行いました。データは平均標準偏差(SD)±表示されています。P値が0.05未満の場合は統計的に有意とみなされました。これらの手順はデータの堅牢性を確保し、結論の信頼性を支えるために用いられました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
GBM細胞の生存能力の阻害と誘発された細胞死
まず、2時間、48時間、72時間のCCM介入後にNHA細胞の生存率に有意な変化は見られず(図2A)、これは使用されたCUM濃度が正常細胞に毒性影響を与えないことを示しました。対照的に、GBM細胞株(A172、U251、LN229、SHG-44)は、1 μM≥CUM濃度で有意に生存率が低下しました(P < 0.05-0.001)(図2B-E)。これらの結果に基づき、1μMおよび2μM CUMと4時間の曝露時間が後続の実験に選択されました。CUM処理後、A172、U251、LN229、SHG-44細胞のIC50値はそれぞれ21.62、37.99、66.11、49.2 μMでした(図2F)。そのため、A172およびU251細胞がさらなる研究のために選ばれました。CUMはA172細胞(3....
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
GBMの再発率はその悪性生物学的特徴と関連しています36。CUMは酸化ストレス、アポトーシス、オートファジー、転移、浸潤、主要な分子標的を調節することで抗GBM効果を発揮します37。本研究では、細胞レベルの実験により、CUMがGBM細胞死亡率を有意に増加させ、増殖、コロニー形成、移動、侵入を抑制することが示されました。これは以前の報告と一致する結果です。
クプロプトーシスはGBM30,38を含む様々ながんの進行と関連しています。バイオインフォマティクス解析により、CUMが肝細胞がん39におけるキュプロプトーシスに影響を与える可能性が示唆されていますが、GBM細胞でキュプロトソーシスを誘導する能力はこれまでの研究...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者たちは利益相反がないと宣言しています。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.1%の結晶バイオレット染色溶液 | サービスバイオ | G1014 | 標識セル |
| 4% パラホルムアルデヒド | ビヨタイム | P0099 | 細胞や組織を修復する |
| AKT阻害剤(MK-2206) | Selleck.cn、上海、中国 | S1078 | 特定AKT阻害剤 |
| 抗体(一次抗体および二次抗体) | ABclonal Technology(中国武漢) / abcam(ケンブリッジ、英国) / Servicebio(中国、武漢) / Beyotime(中国、上海) / Cell Signaling(マサチューセッツ州ダンバース、アメリカ合衆国) | A8814、ab32572、GB25303、ab15580、ab108257、ab246917、A8814、AF6708、AA326、4060、ab219412、280376、9322、ab97051、ab229025 | タンパク質発現レベルの検出 |
| 細胞アポトーシス検出キット | サービスバイオ、武漢、中国 | G1021 | アポトーシスの検出 |
| 細胞痕跡CFSE染料 | インビトロジェン、カリフォルニア州カールスバッド、アメリカ合衆国 | C34570 | 細胞増殖検出 |
| 化学発光イメージングシステム | Bio-Rad、カリフォルニア州ヘラクレス、アメリカ合衆国 | ケミドック XRS+ | 超高感度のタンパク質検出 |
| Cu2+比色測定キット | エラブサイエンス、武漢、中国 | E-BC-K300-M | 腫瘍組織およびGBM細胞におけるCu2+の検出 |
| CuCl2 | シグマ・アルドリッヒ、ダルムシュタット、ドイツ | 751944 | クプロプトーシス誘導器 |
| クルクミン(CUM) | 上海ソースリーフ、中国上海 | S19245 | ポリフェノール化合物 |
| DHE検出キット | ベヨタイム、上海、中国 | S0063 | ROSレベルの検出 |
| ジメチルスルホキシド(DMSO) | サービスバイオ | G4101-2 | MTTアッセイ用の溶媒 |
| ECL開発者 | サービスバイオ | G2161 | ウェスタンブロットに使用 |
| エレスクロモール | Selleck.cn | S1052 | クプロプトーシス誘導器 |
| フローサイトメトリー | BDバイオサイエンシズ、ニュージャージー州、アメリカ合衆国 | BD FACSアリアIII | 細胞死およびCFSEアッセイに使用 |
| 蛍光顕微鏡 | オリンパス、東京、日本 | IX73 | 免疫蛍光、ROS、TUNEL、DHE、MMPアッセイに使用 |
| 膠芽腫細胞株A172(RRID: CVCL_0131)、U251(RRID: CVCL_0021)、LN229(RRID: CVCL_0393)、SHG-44(RRID: CVCL_6902) | Punosai Biotechnology有限公司、中国・武漢 | CL-0012、CL-0237、CL-0578、CL-0207 | ヒト膠芽腫細胞株 |
| GraphPad Prism 9.0 ソフトウェア | グラフパッド・ソフトウェア有限責任会社 | バージョン9.0 | 統計解析 |
| ImageJ 1.53kソフトウェア | 国立精神衛生研究所 | バージョン 1.53k | 統計的計算 |
| JC-1の動作解決策 | ソラルビオ、北京、中国 | M8650 | MMPの検出 |
| オスのBALB/cヌードマウス | スラックキングダ実験動物有限公司、湖南省、中国 | マウス実験 | |
| マイクロプレートリーダー | バイオテック、バーモント州、アメリカ合衆国 | ELX-800 | OD450 nmの測定 |
| 顕微鏡 | オリンポス | BX53 | 細胞スクラッチテスト、トランスウェル実験、免疫組織化学アッセイに使用 |
| ミトソックスプローブ | サーモフィッシャー・サイエンティフィック、マサチューセッツ州ウォルサム、アメリカ合衆国 | M36008 | ROS検出に使用 |
| ミトトラッカー レッド CMXRos | サーモフィッシャー・サイエンティフィック | M7512 | 生細胞におけるミトコンドリアの特異的標識 |
| MTT検知キット | サービスバイオ | G4101-1 | 細胞生存能力の検出 |
| 正常なヒト脳のアストロサイトNHA細胞(RRID:CVCL_B0DK) | 華拓バイオテクノロジー有限公司、中国・深圳 | HTX2408 | 対照実験用の細胞株 |
| 核タンパク質抽出キット | ビヨタイム | P0027 | 核タンパク質抽出 |
| タツノオトシゴ細胞エネルギー代謝分析装置 | アジレント、そしてnbsp;北京、中国 | シーホースXF | OCR検出に使用 |
| TCF/LEF1ルシフェラーゼリポーターキット | バイオラボテクノロジー株式会社、北京、中国 | Wnt/&β;-カテニンシグナル伝達経路の活性の検出 | |
| TUNEL検出キット | ビヨタイム | C1088 | 腫瘍組織におけるアポトーシスの検出 |
| Wnt阻害剤(LGK974) | Selleck.cn | S7143 | 特定Wnt阻害剤 |
参考文献
- Weller, M., et al. Glioma. Nat Rev Dis Primers. 10 (1), 33(2024).
- Liang, R., Xiang, Y., Hu, C., Tang, X. Expression and clinical significance of RBBP4 gene in lower-grade glioma: an integrative analysis. Biochem Biophys Rep. 35, 101533(2023).
- Sahoo, O. S., Mitra, R., Nagaiah, N. K. H. The hidden architects of glioblastoma multiforme: glioma stem cells. 3 (1), 66(2024).
- Schaff, L. R., Mellinghoff, I. K. Glioblastoma and other primary brain malignancies in adults: a review. JAMA. 329 (7), 574-587 (2023).
- Singh, D. Nanocage-tethered polymeric hybridome for pDNA delivery: a revolutionary approach for treatment of glioblastoma. J Can Biomol Therap. 2 (1), 133-144 (2025).
- van den Bent, M. J., et al. Primary brain tumours in adults. Lancet. 402 (10412), 1564-1579 (2023).
- Zhou, Y., Shi, F., Zhu, J., Yuan, Y. An update on the clinical trial research of immunotherapy for glioblastoma. Front Immunol. 16, 1582296(2025).
- Ravuluri, J. A. V., et al. Brain-targeted nano-architectures for efficient drug delivery and sensitization in glioblastoma. Curr Pharm Des. 29 (22), 1775-1790 (2023).
- LeBlanc, V. G., et al. Single-cell landscapes of primary glioblastomas and matched explants and cell lines show variable retention of inter- and intratumor heterogeneity. Cancer Cell. 40 (4), 379-392.e9 (2022).
- Zhang, Y., et al. Single-cell RNA sequencing identifies critical transcription factors of tumor cell invasion induced by hypoxia microenvironment in glioblastoma. Theranostics. 13 (11), 3744-3760 (2023).
- Jiang, Y., Huo, Z., Qi, X., Zuo, T., Wu, Z. Copper-induced tumor cell death mechanisms and antitumor theragnostic applications of copper complexes. Nanomedicine (Lond). 17 (5), 303-324 (2022).
- Tsvetkov, P., et al. Copper induces cell death by targeting lipoylated TCA cycle proteins. Science. 375 (6586), 1254-1261 (2022).
- Meena, R., Sahoo, S. S., Sunil, A., Manna, D. Cuproptosis: a copper-mediated programmed cell death. Chem Asian J. 20 (4), e202400934(2025).
- Jin, Y., et al. Baicalein enhances cisplatin sensitivity in cervical cancer cells by promoting cuproptosis through the Akt pathway. Biomed Pharmacother. 179, 117415(2024).
- Ning, S., et al. Type-I AIE photosensitizer loaded biomimetic system boosting cuproptosis to inhibit breast cancer metastasis and rechallenge. ACS Nano. 17 (11), 10206-10217 (2023).
- Chen, Y., Zhang, J., Zheng, W., Xu, H. Cuproptosis-related lncRNAs and genes: potential markers for glioblastoma prognosis and treatment. PLoS One. 20 (2), e0315927(2025).
- Huang, Q. -X., et al. Metal-organic framework nanoagent induces cuproptosis for effective immunotherapy of malignant glioblastoma. Nano Today. 51, 10911(2023).
- Mohamadian, M., Ahmadi, S. S., Bahrami, A., Ferns, G. A. Review on the therapeutic potential of curcumin and its derivatives on glioma biology. Neurochem Res. 47 (10), 2936-2953 (2022).
- Zoi, V., et al. Curcumin and radiotherapy exert synergistic anti-glioma effect in vitro. Biomedicines. 9 (11), 1562(2021).
- Wong, S. C., Kamarudin, M. N. A., Naidu, R. Anticancer mechanism of curcumin on human glioblastoma. Nutrients. 13 (3), 950(2021).
- Sun, X., et al. Protective effect of curcumin on hepatolenticular degeneration through copper excretion and inhibition of ferroptosis. Phytomedicine. 113, 154539(2023).
- Xiang, B., et al. Curcumin ameliorates copper-induced neurotoxicity through inhibiting oxidative stress and mitochondrial apoptosis in SH-SY5Y cells. Neurochem Res. 46 (2), 367-378 (2021).
- Wang, Z., et al. Curcumin suppresses glioblastoma cell proliferation by p-AKT/mTOR pathway and increases the PTEN expression. Arch Biochem Biophys. 689, 108412(2020).
- Jia, F., et al. Matrix metallopeptidase 2-responsive curcumin-loaded nanoparticles-induced signal transducer and activator of transcription 3 inhibition suppresses glioblastoma multiforme growth via enhancing nuclear factor erythroid 2-related factor 2 activity. Int J Biol Macromol. 307 (Pt 2), 141998(2025).
- Su, X., Chen, S., Lu, H., Li, H., Qin, C. Study on the inhibitory effect of curcumin on GBM and its potential mechanism. Drug Des Devel Ther. 15, 2769-2781 (2021).
- Bhagat, N., et al. Self-assembled systems for nose-to-brain delivery of temozolomide in brain tumor therapy. Int J Pharm. 675, 125540(2025).
- Mohajerani, F., et al. CLEC19A overexpression inhibits tumor cell proliferation and migration and promotes apoptosis concomitant suppression of PI3K/AKT/NF-κB signaling pathway in glioblastoma multiforme. BMC Cancer. 24 (1), 19(2024).
- Li, Z., et al. MELK promotes HCC carcinogenesis through modulating cuproptosis-related gene DLAT-mediated mitochondrial function. Cell Death Dis. 14 (11), 733(2023).
- Lin, S., Wu, B., Hu, X., Lu, H. Sirtuin 4 downregulation contributes to chondrocyte senescence and osteoarthritis via mediating mitochondrial dysfunction. Int J Biol Sci. 20 (4), 1256-1278 (2024).
- Wang, W., et al. Ferroptosis inducers enhanced cuproptosis induced by copper ionophores in primary liver cancer. J Exp Clin Cancer Res. 42 (1), 142(2023).
- Wagstaff, M., et al. β-Catenin interacts with canonical RBPs including MSI2 to associate with a Wnt signalling mRNA network in myeloid leukaemia cells. Oncogene. 44 (29), 2490-2503 (2025).
- Liao, C. L., et al. Tetrandrine suppresses human brain glioblastoma GBM 8401/luc2 cell-xenografted subcutaneous tumors in nude mice in vivo. Molecules. 26 (23), 7105(2021).
- Huo, S., et al. ATF3/SPI1/SLC31A1 signaling promotes cuproptosis induced by advanced glycosylation end products in diabetic myocardial injury. Int J Mol Sci. 24 (2), 1667(2023).
- Zhang, Z., et al. Maresin1 suppresses high-glucose-induced ferroptosis in osteoblasts via NRF2 activation in type 2 diabetic osteoporosis. Cells. 11 (16), 2560(2022).
- Wang, H., et al. Targeting Wnt/β-catenin signaling exacerbates ferroptosis and increases the efficacy of melanoma immunotherapy via the regulation of MITF. Cells. 11 (22), 3580(2022).
- Liu, Y., et al. DNA aptamer S11e recognizes fibrosarcoma and acts as a tumor suppressor. Bioact Mater. 12, 278-291 (2022).
- Walker, B. C., Mittal, S. Antitumor activity of curcumin in glioblastoma. Int J Mol Sci. 21 (24), 9435(2020).
- Zhang, B., Xie, L., Liu, J., Liu, A., He, M. Construction and validation of a cuproptosis-related prognostic model for glioblastoma. Front Immunol. 14, 1082974(2023).
- Liu, Z., Ma, H., Lai, Z. The role of ferroptosis and cuproptosis in curcumin against hepatocellular carcinoma. Molecules. 28 (4), 1623(2023).
- Tian, Z., Jiang, S., Zhou, J., Zhang, W. Copper homeostasis and cuproptosis in mitochondria. Life Sci. 334, 122223(2023).
- Prasad Panda, S., Kesharwani, A. Micronutrients/miRs/ATP networking in mitochondria: clinical intervention with ferroptosis, cuproptosis, and calcium burden. Mitochondrion. 71, 1-16 (2023).
- Peng, Y., Wang, Y., Zhou, C., Mei, W., Zeng, C. PI3K/Akt/mTOR pathway and its role in cancer therapeutics: are we making headway. Front Oncol. 12, 819128(2022).
- Precilla, D. S., et al. Wnt/β-catenin antagonists: exploring new avenues to trigger old drugs in alleviating glioblastoma multiforme. Curr Mol Pharmacol. 15 (2), 338-360 (2022).
- Li, C., Yang, J., Wang, W., Li, R. LHPP exerts a tumor-inhibiting role in glioblastoma via the downregulation of Akt and Wnt/β-catenin signaling. J Bioenerg Biomembr. 53 (1), 61-71 (2021).
- Liu, Y. T., et al. Dysregulated Wnt/β-catenin signaling confers resistance to cuproptosis in cancer cells. Cell Death Differ. 31 (11), 1452-1466 (2024).
- Yu, W., et al. Investigation of cuproptosis regulator-mediated modification patterns and SLC30A7 function in GBM. Aging (Albany NY). 16 (4), 3554-3582 (2024).
- Afshari, A. R., et al. Anti-tumor effects of curcuminoids in glioblastoma multiforme: an updated literature review. Curr Med Chem. 28 (39), 8116-8138 (2021).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
この記事は公開されました
動画は近日公開