本プロトコルでは、安定したシングルチャネル記録を行うために、増幅機能を統合した小型化Montal–Mueller平面脂質二重層システムの使用方法について説明します。本手法の実証として、精製された合成K2Pチャネルを再構成し、システムの性能を検証します。
方法論記事
小型化Montal–Mueller平面脂質二重層システムを用いた、合成K2Pチャネル記録のためのシングルチャネル電気生理学
この記事について
サマリー
要約
平面脂質二重層へのイオンチャネルの機能的再構成は、単一分子レベルでチャネル活性を調査するための戦略を提供します。しかし、従来のMontal–Mueller二重層システムは、通常、かさばる実験装置、手動でのチャンバー組み立て、および比較的大きな記録容量を必要とし、それが試薬消費量の増加を招くだけでなく、配線の延長や外部ヘッドステージによる電気的ノイズの追加要因となる可能性があります。本研究では、小型アンプを統合し、試薬消費量を抑え操作を簡略化した、安定した単一チャネル記録が可能な小型で即時利用可能な二重層プラットフォーム(BLMchipMM)を提示します。本プロトコルでは、単一チャネル電気生理学的測定を行うための本システムの利用方法について説明します。本システムを用いて、合成K2Pチャネル(ancTREK1)を再構成し、再構成および単一チャネル記録を検証するための原理実証テストタンパク質として使用しました。単一チャネル記録の結果、Mg2+フリーの対称K+溶液において電流-電圧関係が示され、そのコンダクタンス値はTREK1チャネルについて報告されている値と一致しました。このK2P様チャネルの再構成に成功したことは、人工膜における単一チャネル解析に対する本システムの有用性を実証しています。
概要
ブラックリピッドメンブレン(BLM)としても知られる人工脂質二重層膜へのイオンチャネルの再構成は、単一分子レベルでイオンチャネルの電気生理学的特性評価を行うための確立された手法の一つです1。BLMの利点はその構造にあります。実際に、非極性表面の孔内に平面脂質二重層(PLB)が形成され、2つの液体溶液が隔てられます。このように生物学的膜を模倣することで、膜の脂質組成や電解質または化学化合物の濃度を含む高度に制御された条件下で、かつ両側からアクセス可能な状態でイオンチャネル活性の記録が可能になります。このアクセス容易性により、例えばミセル溶液からの直接挿入や、リポソーム駆動融合によるイオンチャネルの導入も可能になります2,3。
最初に報告された人工膜システムはペインティング法4を用いて構築されたもので、不揮発性有機溶媒に溶解した脂質ドロップレットを、絵筆を用いて小さな開口部に塗布する手法である。その後、開口部の両側に水溶液を加えることで、脂質二重層が自発的に形成される。しかし、この方法の大きな欠点は溶媒の痕跡が残ることであり、それが膜の特性に影響を及ぼす可能性がある。脂質二重層内の残留有機溶媒量を減らすために、フォールディング法5が開発され、「溶媒フリー」のBLMの形成が可能となった。このアプローチでは、揮発性溶媒中の脂質溶液を水面に広げて2つの単分子層を形成させ、開口部上の水相の液面を徐々に上昇させることで、これらの脂質単分子層が開口部をまたいで折り畳まれ、二重層が形成される。しかし、得られたBLMは溶媒フリーと定義されているものの、二重層形成を成功させるには、開口部を不揮発性溶媒の薄い層で前処理する必要がある。これらの実験に必要な核心的要素は、小さな開口部(直径50–250 µm)を持つ親油性セプタムで仕切られた2つの水相コンパートメント(通常、cisおよびtransと呼ばれる)を備えた記録室である(Figure 1)。各コンパートメントには銀/塩化銀 (Ag/AgCl) 電極が挿入される。これらの電極を電解質溶液に浸すと、脂質二重層と記録装置との間に電気化学的な接続が確立される。記録装置はボルテージクランプアンプで構成されており、これにより膜電位の精密な制御と、埋め込まれたポア形成タンパク質を通過するイオン電流の同時測定が可能となる。
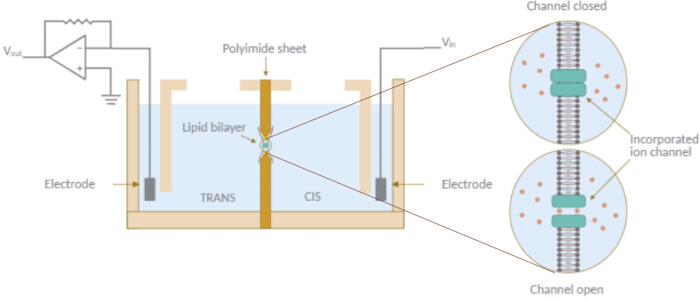
図 1: 平面脂質二重層(PLB)電気生理学セットアップの概略図。 PLB実験に必要な基本構成要素の概略図。記録チャンバーは、脂質二重層が形成される開口部を持つ親油性セプタムによって隔てられた2つの水溶液区画(cis側およびtrans側)で構成される。各区画の電解質溶液には銀/塩化銀(Ag/AgCl)電極が浸漬されている。一方の電極で電圧刺激(例:正弦波、方形波、または三角波)を印加し、接地されたもう一方の電極は、イオン電流を比例した電圧信号に変換する電流-電圧変換器に接続される。この信号は増幅され、必要に応じてフィルタリングされた後、デジタル化され、リアルタイムのモニタリングおよび解析のために記録される。こちらのリンクをクリックして、この図の拡大版を表示してください。
BLMを形成するための他の手法も確立されています。その中でも一般的なアプローチは、パッチクランプピペットの先端に懸垂させた脂質二重層を作成する方法です。それに伴い、チップディップ法6では、空気-水界面にある脂質単分子層にピペット先端を繰り返し浸漬させることで、通過するたびに単一のリーフレットを取り込み、直径約4 µmのガラスマイクロピペットの開口部に溶媒フリーの懸垂脂質二重層を形成させることができます。また、パッチクランプ技術は、脂質二重層におけるシングルチャネル測定にも用いられてきました。例えば、パンチアウト法7では、直径10から80 µmのガラスピペットを使用して、記録室の開口部にあらかじめ塗布された大きな膜をパッチします。あるいは、リポソームパッチ法では、あらかじめ形成されたナノからマイクロサイズの小胞を溶媒フリーのBLMとして利用します8,9。特に、巨大単層小胞(GUV)は、セルアタッチ法や切除パッチ法などのさまざまなパッチクランプ構成によるシングルチャネル記録に広く利用されています10,11。
複数の二重層を並列かつ自動的に形成するためのプラットフォームもいくつか登場しています。その一つのアプローチが液滴界面二重層(DIB)法12であり、これは脂質-溶媒混合液中に水性液滴を配置する方法です。この手法では、液滴の周囲に脂質単分子層が自発的に形成され、2つの液滴が接触したときに二重層が形成されます。一部の構成では、膜の安定性を向上させるためにハイドロゲル上にDIBを形成させることができます13。ガラスピペットの先端でのDIB形成に基づいた別のアプローチに、接触気泡二重層(CBB)法14があり、ここでは2本のマイクロピペットを用いて油相中に水性気泡を導入します。DIBアプローチと同様に、脂質でコーティングされた2つの気泡を接触させると、脂質二重層が自発的に形成されます。もう一つのプラットフォームとしてアレイ化されたBLMシステムがあり、これは格子状に配置された明確なマイクロからナノスケールのポアアレイで構成されています。これらのシステムにおいて、懸垂脂質二重層は、ペインティング法やフォールディング法などの手動操作、あるいはリポソーム小胞の破裂15,16,17によって形成されるか、またはマイクロ流路構造と組み合わせることで、脂質溶液と緩衝液を順次注入することにより自動的に形成されます18,19。
溶媒を用いないBLMを形成するために多くの手法が開発されてきましたが、本研究では、人工脂質二層膜に組み込まれた膜タンパク質の単一チャネル挙動を調査するため、小型化および統合化されたプラットフォーム内で実装されたフォールディング法に焦点を当てます。実験は、Elements Nanopore Reader(eNPRアンプ)とBLMchipMMからなるElementsセットアップを用いて行われました(Figure 2A および Figure 2B)。前者はコンパクトで低ノイズな電位固定アンプであり、完全かつ独立したユニットを形成することでワークスペースを簡素化し、追加の外部デバイスの必要性を排除しています。BLMchipMMは、Montal–Mueller法用に設計された事前組み立て済みの小型システムであり、実験インターフェースとして機能します。これは、プリント回路基板(PCB)と統合された透明なポリメタクリル酸メチル(PMMA)記録チャンバーで構成されており、PCBにはアンプに直接接続するための電極として機能するAg/AgCl線を取り付けるための2つのソケットが含まれています。チャンバーの基本構造は、2つの透明なPMMAコンポーネントの間に封止されたポリイミドセプタムで構成されています。セプタムの厚さは50 µmですが、二層膜の形成を容易にするため、中央の小さな領域(3.78 mm2)のみ厚さが25 µmに減少しています。この薄い領域の中心には、レーザー drillingによってテーパー状のアパーチャが形成されており、これにより脂質二層膜の機械的安定性が向上します20,21。4つのアパーチャ径(50, 75, 100, および 140 µm)が利用可能であり、膜容量の調整が可能です(Table 1)。各PMMAコンポーネントには容量110 µLのC字型キャビティがあり、ポリイミドセプタムの両側に電解質溶液を保持するための2つの流体コンパートメントを形成しています。各PMMAブロックの反対側には2つの傾斜した流体チャネルが設けられており、一方のチャネルはAg/AgCl電極の挿入に使用され、もう一方はピペッティングによるリザーバー内のバッファー液量の手動調整に使用されます。
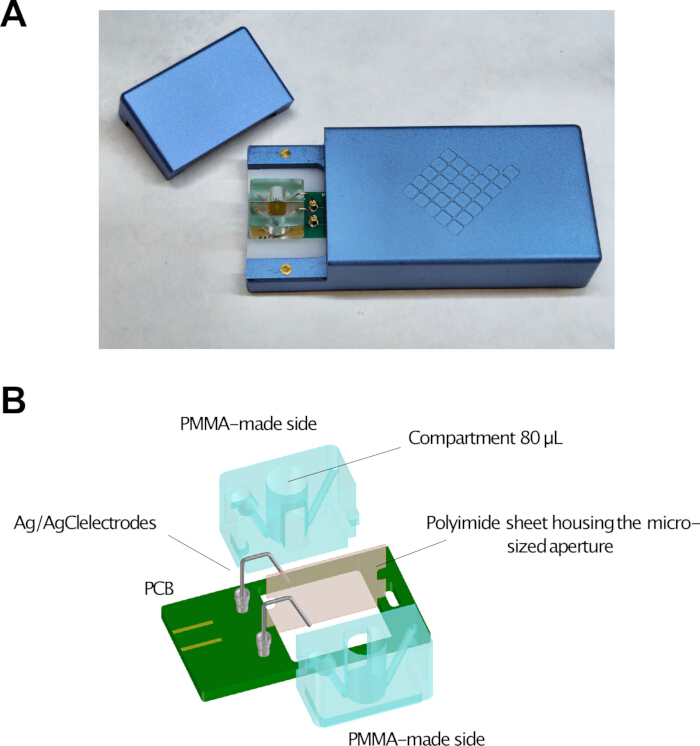
図2Integrated Elements Nanopore ReaderおよびBLMchipMMシステム。 (AElements Nanopore Reader (eNPR)アンプリファイアの専用スロットに挿入されたBLMchipMMを示す写真。BBLMchipMMの構成要素の概略図。ポリメタクリル酸メチル(PMMA)製記録チャンバー、マイクロサイズの開口部を有するポリイミドセプタム、およびAg/AgCl電極用ソケットとチャンバー調整用スロットを備えたプリント基板(PCB)を含む。 この図の拡大版を表示するには、ここをクリックしてください。
| 穴径(µm) | 50 | 75 | 100 | 140 |
| 孔厚(µm) | 25 | 25 | 25 | 25 |
| 標準的な膜容量 (pF) | 20–40 | 40–60 | 60–90 | 90–140 |
表1:利用可能なBLMchipMMアパーチャ形式の特性。50、75、100、および140 µmのアパーチャを持つBLMchipMMデバイスの孔径、アパーチャ領域のセプタム厚、および代表的な膜容量値。膜容量値は、1,2-diphytanoyl-sn-glycero-3-phosphocholine脂質から形成されたバイレイヤーについて示されている。
一般的に、研究室で使用される記録チャンバーは、自作のユニットか市販のデバイスのいずれかです。自作の場合、システムの構築にはさまざまなコンポーネントの組み立てや、セプタムにアパーチャを作成するための信頼性の高い手法の開発が必要であり、多くの研究室にとって導入のハードルとなることがあります。市販のデバイスを使用する場合でも、各実験の前に複数のコンポーネントを手動で統合する必要があることが多くあります。対照的に、BLMchipMMは事前に組み立てられており、日常的な洗浄手順のために実験間で分解する必要はありません。使用する溶媒がデバイスの材質と適合していれば、同じユニットを洗浄して複数の実験で再利用することができ、膜形成の品質を損なうことはありません。これにより、ユーザーによるばらつきが軽減され、手動のシーリング要素に伴う漏れのリスクを最小限に抑えることができます。また、外部に取り付け可能で交換および再生が可能な銀線電極を使用することで、特に電極の消耗が早まる実験条件下において、システムの有効寿命をさらに延ばすことができます。
さらに、自作のデバイスはコンパートメント容積が大きくなる傾向があり、実験に必要な生物学的および化学的成分の量が増加します。対照的に、BLMchipMMの小型化により、実験液量を最小限に抑えることができ、その結果、試薬、タンパク質、およびその他の化合物の消費量を大幅に削減することが可能です。これは、発現が困難な膜タンパク質や収率の低い膜タンパク質を扱う場合や、試験化合物の合成コストが高く、実験全体のコストが増大する場合に特に有利です。重要な点として、BLMchipMMは溶媒量を最小化した脂質二重層の形成を可能にし、各リーフレットを異なる脂質種で構成できる非対称膜構成をサポートしているため5,22、制御された条件下での膜タンパク質の機能研究を促進します。
従来、電流測定はパッチクランプ実験用に設計されたアンプを用いて行われてきました。これらのシステムは、データ収集のための別途のデジタイザーへの接続や、グラフィカルインターフェースによる制御が必要となることが多くあります。また、かさばり高価であるだけでなく、専門外のユーザーにとって設定手順が直感的でない場合が頻繁にあります。さらに、記録チャンバーのサイズや標準的なアンプの設計により、ヘッドステージ入力を静電干渉から保護する内蔵シールドが通常備わっていないため、外部ファラデーケージの使用が必要になることが多くあります。このようなケージの品質や接地状態は、システムのノイズ性能に大きく影響します。BLMchipMMを小型の統合アンプと共に使用することで、外部コンポーネントの必要性が低減し、この構成を簡素化できます。信号のデジタル化はデバイス内で行われ、システムハウジングがシールドとして機能するため、周囲の電磁干渉への感受性が低減します。
本プラットフォームの適用可能性を実証するため、計算的に導出されたTREKサブファミリーの祖先メンバーであるK2P様チャネルancTREK1(付録図1)をテストタンパク質として用い、再構成およびシングルチャネル記録の成功を検証した。K2Pチャネルは、静止膜電位と細胞の興奮性を調節する二量体カリウム漏出チャネルを形成し、その中でもTREKチャネルは十分に特性解析されたサブファミリーである。
プロトコル
本研究では、ヒト参加者、ヒト由来材料、または動物被験者は含まれていません。したがって、施設および国のガイドラインに基づき、倫理承認は不要でした。
1. 電気生理学セットアップの準備
- 装置の校正
システムは工場で設定済みであるため、正式な校正は不要ですが、膜形成前にシステムの正常な機能を検証してください。- 開放回路条件下(すなわち、BLMchipMMを挿入していない状態)で入力抵抗を測定します。測定された抵抗値が≥1 TΩであれば、アンプ入力の完全性が正常であることが確認されます。
- 1 GΩの抵抗器を含むモデルセルを用いて、システムの応答を検証します。測定された抵抗値が±30%以内で1 GΩであれば、組み込み抵抗の許容誤差と一致します。
- 定電圧(0 mV)の開放回路条件下でベースラインノイズを測定します。サンプリングレート10 kHz、帯域幅5 kHzにおいて、RMSノイズが≤300 fAであれば、低ノイズのシステム性能が確認されます。
- Ag/AgCl電極の準備
- 初回使用時は、銀線をエタノールと二回蒸留水で洗浄してください。
- 既に使用した銀線については、極細目の研磨紙を用いて、表面が残渣なく均一に明るい銀色の金属光沢を持つまで、古いAg/AgCl層を銀線表面から除去してください。その後、エタノールと二回蒸留水で洗浄します。
- 銀線の先端部分を1%–5%次亜塩素酸ナトリウム(NaOCl)に浸し、淡い灰色になるまで塩素化します(通常15–30分間)(図3A)。使用中の劣化については、色の変化やベースライン電流のドリフト、またはその両方が現れるため、塩素化された銀線を経時的に監視してください。
注:塩素化には、一般的な家庭用漂白剤(1%–5% NaOCl)を使用できます。
注意:銀線全体を塩素化しないでください。適切な電気接続を確保するため、PCBソケットに挿入する末端部分は塩素化せずに残してください。
注意:PCBのソケットは直径0.5 mmの銀線用に設計されています。他の直径では適切に適合しないか、接続が不安定になる可能性があります。
- BLMchipMMの組み立て
- 2本の銀線の塩素化されていない末端部分をPCBソケットに挿入します。必要に応じてピンセットを使用して正しく配置してください(図3B)。
- 銀線の塩素化された端を、PMMAコンポーネントに掘られた流路に配置します(図3C)。
- BLMchipMMをゆっくりと回転させ、PMMA記録室の底部にある歯を専用のスロットに適合させてPCBに取り付けます(図3D)。
- 銀線の位置を確認し、流路の端まで到達していることを確かめてください。必要に応じて、端がコンパートメントの底に見えるまで銀線をゆっくりと押し込みます(図3E)。
注意:銀線は可能な限りPMMAコンポーネントに近づけて配置してください。過剰に湾曲するとアンプの蓋に接触し、短絡して信号が飽和する原因となります。
- 脂質および記録溶液の準備
- セプタム開口部の前処理用に、100% n-ヘキサンを用いた1% (v/v) ヘキサデカンの溶液を100 µL準備します。この溶液は−20°Cで最大1週間保存可能です。
- 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) 脂質を100% n-ペンタンで再懸濁し、最終濃度を15 mg/mLにします。この溶液は−20°Cで最大24時間保存可能です。
- 1 M KClストック溶液3 mLと、1 M 4-(2-hydroxyethyl)-1-piperazineethanesulfonic acidストック溶液(pHメーターを用いてKOHでpH 7.4に調整)150 µLを混合し、室温(RT; 20°C–25°C)で電解質記録溶液を準備します。二回蒸留水を加えて最終容量を15 mLにします。この溶液は4°Cで最大1週間保存可能です(表2)。
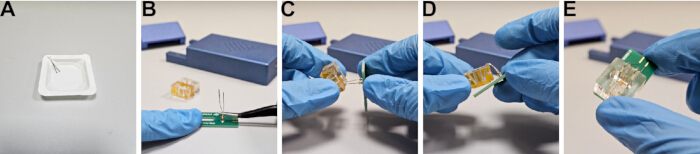
図3BLMchipMMデバイスの組み立て。 (A) 漂白剤への浸漬による銀線(Ag線)の塩素化。 (B) PCBソケットへの銀(Ag)線の挿入。 (C) マイクロ流体チャネル内への銀(Ag)ワイヤの配置 (D) PCBへの記録チャンバーの設置。(E) 流体チャネル内における電極の適切な配置の確認。 この図の拡大版を表示するには、ここをクリックしてください。
| 試薬 | 最終濃度 | 体積 |
| 二回蒸留水 | — | 15 mLまで加える |
| 塩化カリウム (KCl) (1 M) | 200 mM | 3 mL |
| HEPES pH 7.4 (KOH) (1 M) | 10 mM | 150 µL |
表2:電解質記録液。PLB記録に使用した電解質溶液の組成(試薬濃度および調製量を含む)。最終容量は二回蒸留水を用いて15 mLに調整する。記録液は使用前に0.2 µmのシリンジフィルターでろ過する必要がある。
注:記録用溶液は、使用前に0.2 µmのシリンジフィルターでろ過してください。DPhPC脂質は、乾燥粉末またはクロロホルムに溶解した状態で提供される場合があります。酸化を防ぐため、どちらの形態であっても、不活性ガス充填した密閉ガラスバイアルに入れて−20°Cで保存してください。乾燥粉末を使用する場合は、開封前に室温に慣らしてください。乾燥粉末から調製した溶液は新しく作成し、24 h以内に使用してください。クロロホルムストックを使用する場合は、残留クロロホルムが膜を不安定にさせる可能性があるため、再懸濁させる前に窒素気流下で溶媒を完全に蒸発させてください。
2. Montal–Mueller法によるPLBの形成
以下の手順は、モンタル・ミューラー法5(図 4)としても知られるフォールディング法を用いた人工膜の形成について説明する。この手法では、まずセプタムの開口部を1% (v/v) ヘキサデカン/n-ヘキサン溶液の薄層で前処理し、脂質溶液を滴下して気液界面に単分子膜を形成させ、その後、チャンバーの各区画の電解質溶液レベルを順次上昇させることで、単分子膜を開口部に折り畳ませる。
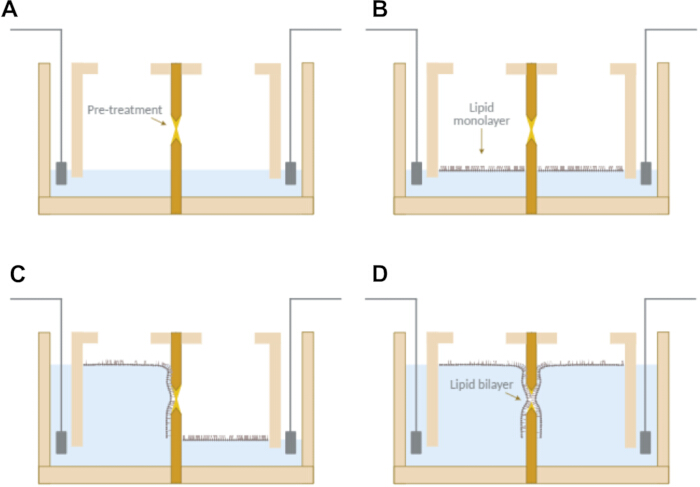
図 4: Montal–Mueller法を用いたPLBの形成。(A>) 1% ヘキサデカンのn-ヘキサン溶液による開口部の前処理、および開口部レベルまでのコンパートメントへの充填。(B>) 気液界面における脂質単分子層の形成。(C> および D>) 各コンパートメントのバッファーレベルを順次上昇させることで、単分子層を折り畳ませ、開口部を横切る溶媒を含まない脂質二重層を形成させる。この図の拡大版を表示するには、ここをクリックしてください。
- 膜の形成
- ピペットチップを用い、セプタムの開口部を1% (v/v) ヘキサデカン n-ヘキサン溶液で前処理する。片側あたり約 2 µL を塗布する(図 4A)。
- 温度 23°C–25°C、相対湿度 45%–50% の条件下で、溶媒を 5 min 間蒸発させる。
- 組み立てた BLMchipMM をアンプに挿入する。
- USB ケーブルでアンプをコンピューターに接続し、データ収集ソフトウェアを開く。
- 電流範囲を 2 nA に設定し、RC 推定ツールを起動して膜容量と抵抗をモニターする。
注:RC 推定設定はデフォルトで構成されているが、必要に応じて調整可能である。 - 各コンパートメントに、開口部の下端まで 30 ± 2 µL の記録液を満たす(図 4A)。
注意:記録液が開口部周辺の領域を濡らさないようにすること。 - 各コンパートメントの水相表面に、脂質溶液 2.5 ± 0.1 µL を滴下して広げる(図 4B)。
- 溶媒を 2 min 間蒸発させる。
- 一方のコンパートメントの底部にピペットチップを約 90° の角度で配置し、80 ± 2 µL の記録液を加える。もう一方のコンパートメントでも同様に行う(図 4C および 図 4D)。
注:溶媒の蒸発時間は、温度 23°C–25°C、静止空気、相対湿度 45%–50% の条件に基づいている。 - ファラデーケージの蓋を閉じ、電流信号をモニターする。膜抵抗値が 200 GΩ を超えていれば、バイレイヤーが正常に形成され、膜の完全性が良好であることを示す。
注:膜の形成が成功すると、ゼロ付近で変動する矩形波状の電流信号が観察され、その振幅は膜容量に比例する(図 5A)。
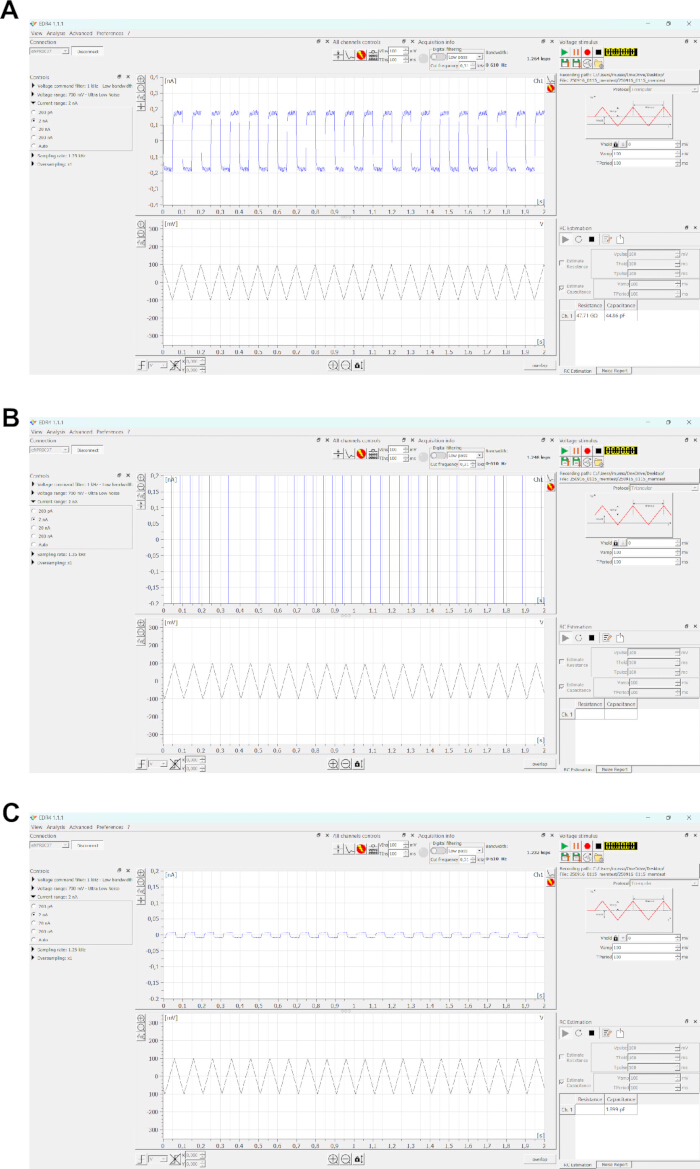
図 5: 収集ソフトウェアインターフェースを用いた膜形成のモニタリング。(A) 膜形成に成功した際の代表的なトレース。三角波電圧(ピーク間 100 mV、10 Hz)により、膜容量(~45 pF)に比例した矩形波の容量性電流が生成される。(B) 電流信号の飽和によって特徴づけられる、膜が形成されなかった際の代表的なトレース。(C) アパーチャが露出している場合など、脂質二重層が形成されていないときの浮遊容量に対応する容量性信号。こちらのリンクをクリックして、この図の拡大版を表示してください。
注:信号が電流範囲の制限間で切り替わる場合は、メンブレンの破損を示しています(図 5B)。
注記:RMSノイズは膜容量に比例して増加するため、開口部のサイズとともに増大します。定電圧条件(0 mV)、サンプリングレート 5 kHz、帯域幅 2.5 kHz で測定された典型的なノイズ範囲は、0.48–2.00 pA (50 µm)、0.74–2.62 pA (75 µm)、1.00–3.52 pA (100 µm)、および 1.59–5.27 pA (140 µm) です。
注:初期の試行で失敗した場合は、一方のコンパートメントのバッファーレベルを下げたり上げたりすることで、膜形成が促進されることがあります。
注:必要に応じて、ピペットチップを用いてアパーチャ上に約5秒間気泡を適用し、バイレイヤー形成を促進してください。
注意:バッファー液の液面をアパーチャーより低くしたり、気泡が混入したりすると、浮遊容量に起因する信号(図 5C)が検出されることがあります。出力が図 5Bのような場合は、前処理が不十分であった可能性があります。前処理溶液と脂質を再度塗布するか、デバイスを洗浄して手順を繰り返してください。
注意:電圧オフセット補正は、必ず膜がない状態で行ってください。膜が存在する場合は、補正前にZAP機能を用いて膜を破裂させてください。
注:実験は標準的な実験台で行うことができますが、必要に応じて防振台を使用しても構いません。
3. BLMchipMMの洗浄
- PCBから記録チャンバーを取り外します。
- 両方のコンパートメントと流路を100%イソプロピルアルコール(IPA)で洗浄します。
注意:IPAへの曝露時間を1分以内にしてください。
注意:アセトンや100%エタノールは、チャンバーの密封材を損傷させる可能性があるため、使用しないでください。
注意:追加の溶剤を使用する場合は、事前にPMMAとの適合性を確認してください。 - 二回蒸留水で十分にすすぎます。
- 圧縮空気の緩やかな気流を用いて、目に見える水滴がなくなるまで記録チャンバーを完全に乾燥させます。
注意:照明付き拡大鏡でチャンバーを点検し、油膜などの残留物がないことを確認してください。必要に応じて、洗浄および乾燥手順を繰り返します。
注意:新しい実験を開始する前に、チャンバーが完全に清潔で乾燥していることを確認してください。
4. 合成イオンチャネル(ancTREK1)の発現および精製
- 発現コンストラクトの調製
以下の手順では、クローニング戦略、Freestyle-293F細胞を用いた異種発現、およびancTREK1タンパク質の精製について説明します。
PCR増幅、制限酵素消化、ライゲーション、および化学的コンピテントEscherichia coli細胞への形質転換を用いて、発現ベクターを構築します23,24。C末端にGFPタグとHis₈タグを含む哺乳類用ベクターを用いてancTREK1配列(Supplementary Figure 1)を発現させ、蛍光ベースの検出25,26と、ニッケル–ニトリロ三酢酸(Ni2⁺-NTA樹脂)27,28,29に続く抗GFPナノボディ樹脂30,31,32を用いた2段階のアフィニティ精製を可能にします。 - PCRによるancTREK1 DNAの増幅
- 滅菌済みの2回蒸留水を用いて、PCRプライマーとDNAテンプレートを最終濃度10 µMおよび~20 ng/µLに希釈します。
- すべての試薬を氷上で解凍します。
- 5×バッファー10 µL、10 µMプライマー各2.5 µL、DNAテンプレート2 µL、10 mM dNTPs 1 µL、高正確性DNAポリメラーゼ0.5 µLを含み、滅菌済み2回蒸留水で定容した50 µLのPCR反応液を調製します(Table 3)。穏やかに混合し、短時間遠心分離します。
- 以下の条件でPCRを行います:初期変性 98°Cで3分;98°Cで30秒、68°Cで30秒、72°Cで30秒を30サイクル;最終伸長 72°Cで3分(Table 4)。
- PCR産物を1% (w/v) アガロースゲル中で1× TAEバッファーを用い、60 Vで90分間電気泳動し、目的のバンドを切り出します。
注意:ゲル抽出法を用いてPCR産物を精製し、260 nmでDNA濃度を測定し、必要に応じて精製済みPCR産物を−20°Cで保存します。
- 制限酵素消化の実施
- PCR産物2 µgおよびプラスミドDNA 2 µgを含む消化反応液を、別々のチューブで調製します。10×バッファー5 µL、EcoRI制限酵素0.5 µLおよびNotI制限酵素0.5 µLを加え、2回蒸留水で50 µLに調整します(Table 5)。
- 穏やかに混合し、37°Cで3時間インキュベートします。
- 65°Cで20分間加熱し、酵素を不活性化します。
- ベクターの消化液にアルカリホスファターゼ1 µLを加え、37°Cで1時間インキュベートします。
- 消化産物を1% アガロースゲルで泳動し、目的のバンドを抽出します。
注意:適切な精製法を用いてDNA断片を精製し、必要に応じて精製済みDNAを−20°Cで保存します。
- ライゲーションおよび形質転換の実施
- ベクターとインサート(モル比 3:1)、10×リガーゼバッファー2 µL、およびリガーゼ酵素1 µLを含む20 µLのライゲーション反応液を調製します(Table 6)。
- 室温で1時間インキュベートします。
- 化学的コンピテントE. coli細胞を氷上で解凍します。
- 50 µLの細胞にライゲーション混合液5 µLを加え、氷上で20分間インキュベートします。
- 42°Cで1分間ヒートショックを与え、その後氷上に2分間戻します。
- LB培地450 µLを加え、37°Cで振盪しながら1時間インキュベートします。
- 3,000 × gで1分間遠心分離し、ペレットを50 µLで再懸濁します。
- 選択アガロースプレートに播種し、37°Cで一晩インキュベートします。
注意:シーケンシングによりクローニングの成功を確認します。
- HEK293F細胞へのトランスフェクション
- 293F細胞を無血清浮遊培地中で0.5 × 10⁶ cells/mLの密度で250 mL播種し、37°C、6% CO₂条件下でインキュベートします。
- 低血清培地で最終容量3 mLとなるように、250 µgのDNAを調製します。
- 水を用いて1 mg/mLのポリエチレンイミン(PEI)750 µgを調製し、NaOHでpHを6.9–7.1に調整し、溶液を滅菌フィルターでろ過した後、低血清培地で最終容量を3 mLにします。
- DNA溶液とPEI溶液を合わせ、穏やかに混合し、室温で10分間インキュベートします。
- 混合液を細胞に滴下して加えます。
- 4時間後に、最終濃度10 mMとなるように酪酸ナトリウムを加えます。
- 48時間後、500 × gで15分間遠心分離して細胞を回収します。
- 細胞ペレットを−80°Cで保存します。
- 膜タンパク質の可溶化
- 100 mLのHEK293培養液からの細胞ペレットを氷上で解凍します。
- 細胞ペレットを1:10 (w/v) の比率でライシスバッファーに再懸濁します(Table 7)。
界面活性剤を加え、最終濃度が1% n-dodecyl-β-D-maltoside (DDM) および 0.1% cholesteryl hemisuccinate (CHS) となるようにします。 - 4°Cで2時間、回転させながらインキュベートします。
- 4°Cにて100,000 × gで1時間遠心分離します。
- 上清を回収します。
注意:すべての工程は、あらかじめ冷却したバッファーを用い、4°Cで実施してください。
- IMAC精製の実施
- 500 µLのNi2⁺-NTA樹脂を重力カラムに充填します。
- 2カラムボリューム(CV)の平衡化バッファー(Table 8)で樹脂を平衡化します。
- サンプルをロードし、10 rpm、4°Cで穏やかに混合しながら3時間インキュベートします。
- カラムを垂直に立て、重力フローでフロースルーを回収します。
- 30 mMイミダゾールを含む洗浄バッファー10 CVで樹脂を洗浄します。
- 300 mMイミダゾールを含む溶出バッファー10 CVでタンパク質を溶出させます。
注意:SDS-PAGE(Figure 6)で分画を分析します。分析用にフロースルーと洗浄分画を保存してください。必要に応じて、タンパク質を4°Cで一晩保存します。
- 抗GFP精製の実施
- 1 mLの抗GFP樹脂を重力カラムに充填します。
- Buffer 1(Table 9)2 CVで樹脂を平衡化します。IMAC溶出液をロードし、10 rpm、4°Cで穏やかに混合しながら3時間インキュベートします。
- カラムを垂直に立て、重力フローでフロースルーを回収します。
- Buffer 1を10 CV、Buffer 2を10 CV、そして再びBuffer 1を10 CVの順に樹脂を洗浄します。
- HRV-3CプロテアーゼをBuffer 1 2 mLで希釈し、プロテアーゼ:タンパク質比を1:50にします。
- HRV-3Cプロテアーゼを添加したBuffer 1を樹脂に加え、穏やかに混合し、垂直静止状態で4°Cで一晩インキュベートします。
- 溶出分画から切断されたタンパク質を回収します。
- 50 kDaカットオフの遠心濃縮器を用い、3,000 × g、4°Cで、最終容量が約500 µLになるまでサンプルを濃縮します。
注意:SDS-PAGE(Figure 7)で分画を分析します。凝集を防ぐため、濃縮中に定期的にタンパク質を再懸濁してください。精製済みタンパク質は急速凍結後、−80°Cで保存します。100 mLの培養液から約60 µgのタンパク質が得られます。
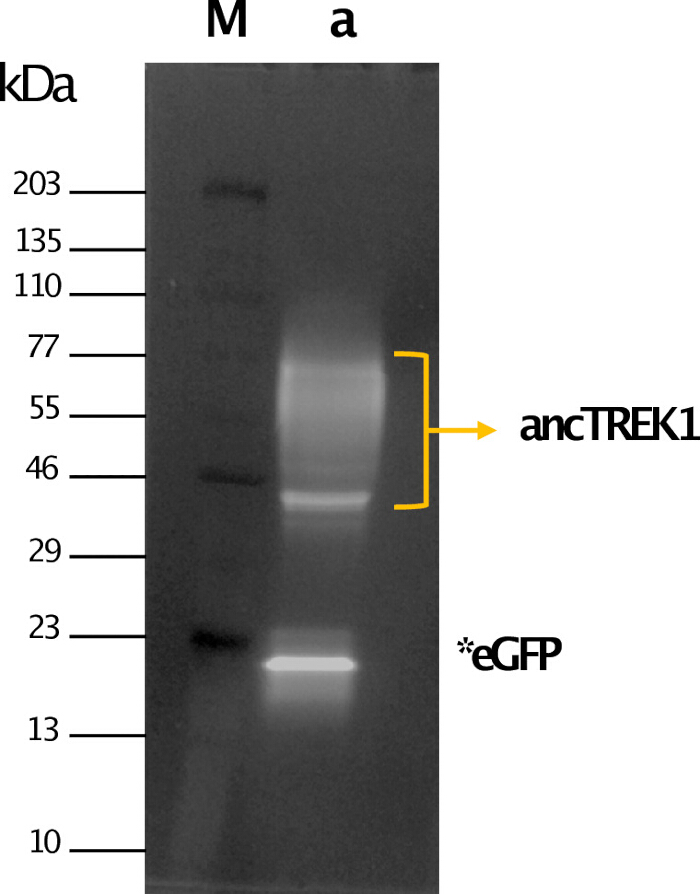
図 6: 固定化金属イオンアフィニティークロマトグラフィー(IMAC)によるancTREK1の精製。蛍光検出を用いたIMAC溶出分画のドデシル硫酸ナトリウム–ポリアクリルアミドゲル電気泳動(SDS-PAGE)分析。レーン M:分子量マーカー。レーン a:緑色蛍光タンパク質(GFP)タグ付きancTREK1(黄色矢印)を示すIMAC溶出分画。自己切断によって生じた遊離GFPを*eGFPで示す。この図の拡大版を表示するには、ここをクリックしてください。
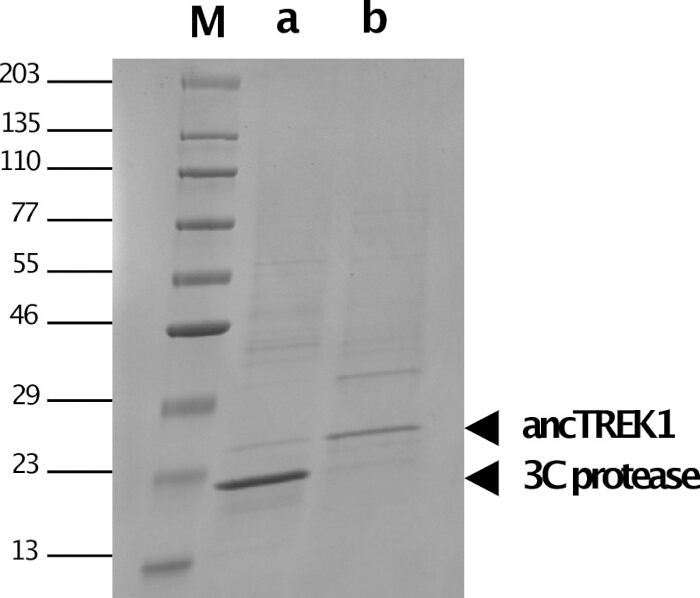
図 7: 抗GFPナノボディアフィニティークロマトグラフィーによるancTREK1の精製。Coomassie Blueで染色した溶出分画のSDS-PAGE分析。レーン M: 分子量マーカー。レーン a: 3Cプロテアーゼの存在を示す抗GFP溶出分画。レーン b: 濃縮後の精製ancTREK1。こちらのリンクをクリックして、この図の拡大版を表示してください。
| 試薬 | 50 µL反応あたりの容量 | 最終濃度 |
| 二回蒸留水 | 50 µLまで加える | — |
| 5× PhusionTM GC buffer | 10 µL | 1× |
| dNTPs (各10 mM) | 1 µL | 各200 µM |
| フォワードプライマー (10 µM) | 2.5 µL | 0.5 µM |
| リバースプライマー (10 µM) | 2.5 µL | 0.5 µM |
| 鋳型DNA (20 ng/µL) | 2 µL | 0.8 ng/µL |
| PhusionTM High-Fidelity DNA polymerase | 0.5 µL | 0.02 U/µL |
表3:ancTREK1増幅のためのポリメラーゼ連鎖反応(PCR)反応系の設定。高正確性DNAポリメラーゼシステムを用いてancTREK1 DNA配列をPCR増幅するために使用した試薬組成、容量、および最終濃度。
| ステップ | 温度 | 時間 | サイクル数 |
| 初期変性 | 98°C | 3 min | 1 |
| 変性 | 98°C | 30 s | 30 |
| アニーリング | 68°C | 30 s | 30 |
| 伸長 | 72°C | 30 s | 30 |
| 最終伸長 | 72°C | 3 min | 1 |
| 保持 | 12°C | 保持 | — |
表4:ancTREK1増幅のためのPCRサイクル条件。変性、アニーリング、伸長、および最終伸長ステップを含む、ancTREK1 DNA配列の増幅に使用したサーマルサイクリングパラメータ。
| 構成要素 | インサートの消化(50 µL) | ベクターの消化および脱リン酸化(50 µL) |
| 二回蒸留水 | ~へ 50 µL | 〜へ 50 µL |
| 10× ANZA Red Buffer | 5 µL | 5 µL |
| DNA | ancTREK1 PCR産物(2 µg) | pEG BacMam C末端 3C eGFP His8 ベクターDNA(2 µg) |
| Anza™ EcoRI | 0.5 µL | 0.5 µL |
| Anza™ NotI | 0.5 µL | 0.5 µL |
| Anza™ アルカリホスファターゼ | — | 1 µL |
表5:ancTREK1クローニングのためのインサートおよびベクターの制限酵素消化EcoRIおよびNotI酵素を用いたancTREK1 PCR産物および発現ベクターの制限酵素消化の反応条件。ベクターの消化には、セルフライゲーションを防ぐためにアルカリホスファターゼを用いた追加の脱リン酸化ステップが含まれています。
| 構成要素 | 量 (20 µL 反応) |
| 2回蒸留水 | ~へ 20 µL |
| 10× T4 DNAリガーゼバッファー | 2 µL |
| ancTREK1 インサート DNA (843 bp) | 10 ng |
| pEG BacMam C-term 3C eGFP His8 ベクターDNA (7673 bp) | 30 ng |
| T4 DNAリガーゼ | 1 µL |
表 6: ancTREK1クローニングにおけるベクター-インサートライゲーション条件。T4 DNAリガーゼを用い、pEG BacMam発現ベクターにancTREK1インサートを1:3のモル比でライゲーションさせるための反応混合液。
| 成分 | 最終濃度 | 量 (5 mLあたり) |
| ddH₂O | — | 5 mLまで |
| KCl (1 M) | 200 mM | 1 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| PMSF プロテアーゼ阻害剤 (100 mM) | 1 mM | 50 µL |
| ロイペプチン プロテアーゼ阻害剤 (1 mg/mL) | 1 µg/mL | 5 µL |
| アプロチニン プロテアーゼ阻害剤 (1 mg/mL) | 1 µg/mL | 5 µL |
| ペプスタチン A プロテアーゼ阻害剤 (1 mg/mL) | 1 µg/mL | 5 µL |
| DNase I (50 mg/mL) | 25 µg/mL | 2.5 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 1% | 500 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.10% | 250 µL |
表7:膜タンパク質抽出用溶解バッファーの組成。塩、緩衝剤、プロテアーゼ阻害剤、ヌクレアーゼ、および界面活性剤を含む、膜タンパク質の可溶化に使用した溶解バッファーの処方。注:バッファーは使用直前に調製すること。
| 平衡化緩衝液(全量10 mL) | ||
| 構成要素 | 最終濃度 | 量 |
| 二重蒸留水 | — | 10 mLまで |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-ドデシル-β-D-マルトシド (DDM, 10%) | 0.05% | 50 µL |
| コレステリルヘミコハク酸 (CHS, 2%) | 0.01% | 50 µL |
| 洗浄バッファー(総量10 mL) | ||
| 構成要素 | 最終濃度 | 量 |
| 2回蒸留水 | — | 10 mLまで |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-ドデシル-β-D-マルトシド (DDM, 10%) | 0.05% | 50 µL |
| コレステリルヘミコハク酸ナトリウム (CHS, 2%) | 0.01% | 50 µL |
| イミダゾール pH 8 (5 M) | 30 mM | 60 µL |
| 溶出バッファー(全量 10 mL) | ||
| 構成要素 | 最終濃度 | 量 |
| ddH₂O | — | 10 mLまで |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-ドデシル-β-D-マルトシド (DDM, 10%) | 0.05% | 50 µL |
| コレステリルヘミコハク酸ナトリウム(CHS, 2%) | 0.01% | 50 µL |
| イミダゾール pH 8 (5 M) | 300 mM | 600 µL |
表8:ancTREK1精製用IMACバッファー組成ancTREK1の固定化金属イオンアフィニティークロマトグラフィー精製に使用した平衡化、洗浄、および溶出バッファーの処方。注:溶液は4°Cで最大6ヶ月間保存可能である。
| バッファー1(全量10 mL) | ||
| 構成要素 | 最終濃度 | 量 |
| 二回蒸留水 | — | 10 mLまで |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-ドデシル-β-D-マルトシド (DDM, 10%) | 0.05% | 50 µL |
| コレステリルヘミコハク酸 (CHS, 2%) | 0.01% | 50 µL |
| 緩衝液2(全量10 mL) | ||
| 構成要素 | 最終濃度 | 量 |
| 2回蒸留水 | — | 10 mLまで |
| KCl (1 M) | 500 mM | 5 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-ドデシル-β-D-マルトシド (DDM, 10%) | 0.05% | 50 µL |
| コレステリルヘミコハク酸 (CHS, 2%) | 0.01% | 50 µL |
表 9:抗GFPナノボディアフィニティークロマトグラフィー用バッファー組成。抗GFPナノボディアフィニティークロマトグラフィーを用いたancTREK1の精製に使用するバッファーの処方。注:溶液は4°Cで最大6ヶ月間保存可能である。
5. イオンチャネル活性の記録
- 膜質の評価
- ファラデーケージの蓋を閉じる。
- 三角波電圧(100 mV, 10 Hz)を印加し、膜容量を評価する。
- 電圧ステップ(±20 mV刻みで±200 mVまで)を印加し、膜抵抗を評価する。
- 電流値およびノイズ値をモニタリングする。
注:特に指定がない限り、サンプリングレートは5 kHz、ローパスフィルタは2.5 kHzを使用する。
- ancTREK1活性の記録
- ancTREK1タンパク質を記録溶液で約2 µg/mLに希釈する。
注:希釈の際、記録溶液への最終希釈前に界面活性剤濃度を臨界ミセル濃度(CMC)以上に維持するため、必要に応じてBuffer 1を用いて段階的に希釈を行う。 - 希釈したタンパク質溶液1 µLを、セプタム開口部付近のcis室に添加する。
注:膜電位はVcis − Vtransと定義される。本研究ではチャネルの配向性を直接的に決定していないため、記録は膜の側性にではなく、印加電圧の極性に基づいて記述する。 - ±20 mV刻みで±120 mVまで電圧ステップを印加する。
- チャネルの挿入イベントをモニタリングする。
注:チャネルの挿入は、閉状態と開状態の間の不連続な電流転移によって示される。挿入が起こらない場合は、タンパク質を追加するか、膜を再形成させる。複数のチャネルが挿入された場合は、膜を破裂させ、タンパク質濃度を下げて再試行する。
- ancTREK1タンパク質を記録溶液で約2 µg/mLに希釈する。
結果
PLB膜の電流–電圧(I–V)特性
バイレイヤー膜(二層膜)の本質的な疎水性により、荷電種は膜を透過できません。しかし、外部電場を印加することでナノメートルサイズの暫定的なポア(孔)の形成が誘導され、それによって膜の透過性とコンダクタンスに影響を及ぼします33。1,2-diphytanoyl-sn-glycero-3-phosphocholineリピッドから形成された人工バイレイヤーの品質を評価するため、タンパク質を挿入しない状態で、膜容量、抵抗、およびI–V特性を評価しました。±20から±200 mVまでの範囲(±20 mV刻み)で一連の電圧ステップを印加し、得られた膜貫通電流を記録しました。データは5 kHzでサンプリングし、2.5 kHzでローパスフィルタ処理を行いました。
膜容量(Cm)および膜抵抗(Rm)は、バイレイヤーの品質を評価するための重要なパラメータです。PLBは等価的な抵抗-容量(RC)回路として記述でき、その中で膜は抵抗と並列に接続された容量コンデンサとして機能します34。容量成分は膜の電荷蓄積能力を反映し、抵抗成分はイオン透過性を反映します。三角波電圧を印加すると、正方形の容量電流応答が生成され、これは以下の式に従って膜容量に比例します:
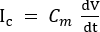 (1)
ここで、Cmは膜容量、Vは印加電圧、tは時間を表します。膜形成後、バイレイヤーの漸次的な薄膜化により、容量値が時間とともに増加することがあります35。膜を平行平板コンデンサとして考えると、容量は膜の面積および厚さと次のように関連しています:
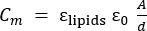 (2)
ここで、εlipidsは脂質コアの誘電率(~2)、ε0は真空の誘電率、Aは膜面積、dは膜厚である36,37。
膜抵抗はオームの法則を用いて決定した33:
 (3)
ここで、Vは印加電圧、Rmは膜抵抗である。イオンチャネルが存在しない場合、膜電流は0 pA付近に留まり、これはギガオーム(GΩ)範囲の抵抗値に相当する33。
75 µmおよび100 µmの開口部を持つBLMchipMMデバイスにおいて、I–V関係は0から±200 mVの間で線形(オーム)挙動を示した。データの線形フィッティングにより、膜抵抗値は75 µm開口部で847 ± 16 GΩ (n = 6) (Figure 8A、円)、100 µm開口部で980 ± 32 GΩ (n = 7) (Figure 8A、正方形)であった。電流トレースの3 sセグメントで測定したRMSノイズ値は、100 µm開口部で3.1 ± 2 pA (n = 7)、75 µm開口部で2.6 ± 0.1 pA (n = 6)であった。膜の安定性は、合計1時間の期間にわたり約2 min間隔で抵抗を測定することで評価した (Figure 8B)。適切に形成された膜は一貫して1時間以上にわたって安定しており、これはほとんどの電気生理学的実験に十分な時間である。膜は通常、±200 mVまでの印加電位に耐え、不安定な兆候は見られなかったが、個々のバイレイヤーに応じて±220から±300 mVの間で破綻が起こった。100 mVでの電流値が≤0.5 pAであり、容量値が75 µm開口部で40から60 pF、100 µm開口部で60から90 pFの範囲にある場合に、膜はタンパク質挿入に適していると判断された。
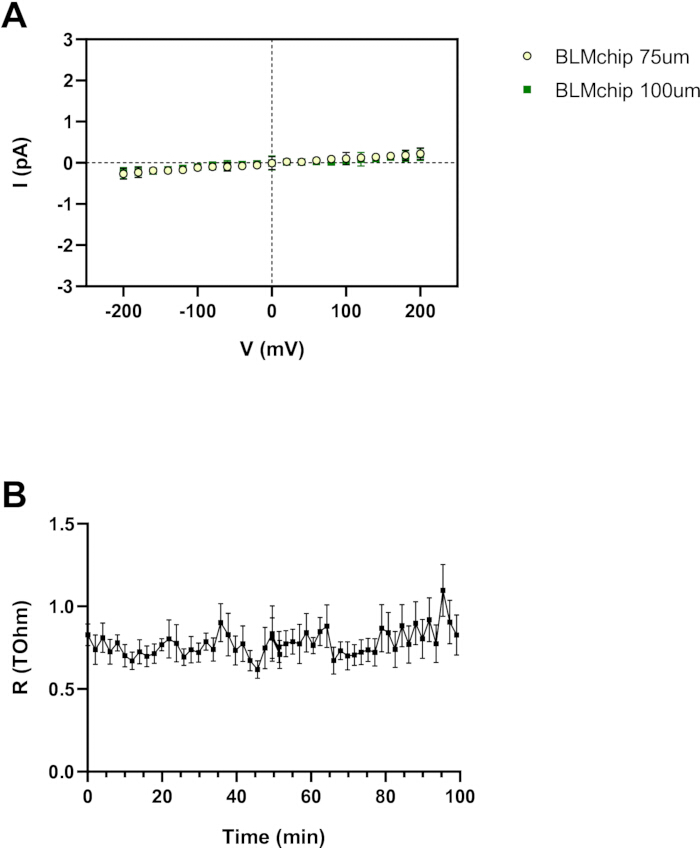
Figure 8: PLBの電気的特性評価。 (A) 75 µmおよび100 µmのアパーチャ上に形成されたバイレイヤーの電流-電圧(I-V)関係。±200 mVの間で線形(オーム)挙動を示している。線形回帰により、膜抵抗値はそれぞれ847 ± 16 GΩ (n = 6)および980 ± 32 GΩ (n = 7)であった。 (B) 2分間隔で1時間にわたり抵抗をモニタリングして評価した膜の安定性。膜は±200 mVまで安定しており、±220から±300 mVの電圧で破綻した。データは平均値 ± 標準誤差(SEM)で示している。ここをクリックして、この図の拡大版を表示してください。
ancTREK1のシングルチャネル挙動の初期特性解析
合成ancTREK1を精製してPLBに再構成し、−120から120 mVまで20 mV刻みの電圧ステッププロトコルを用いて単一チャネル活性をモニターした。単一チャネル記録(図 9Aおよび図 9B)により、K2Pチャネルに特徴的なフリッカリング挙動が認められた38。80 mVにおいて平均電流振幅は13.02 ± 0.78 pA (n = 5) であったが、−80 mVでは電流振幅は−18.72 ± 0.25 pA (n = 5) に増加した(図 9C)。得られたI–V関係は、Mg2+不含の対称200 mMカリウム条件下において、正および負の両電位で測定可能な単一チャネル電流を示した(図 9D)。電流振幅は5 kHzで取得し2.5 kHzでローパスフィルタリングした記録の全点ヒストグラムから推定したため、このI–V関係は網羅的な生物物理学的キャラクタリゼーションではなく、記述的な原理実証として提示している。
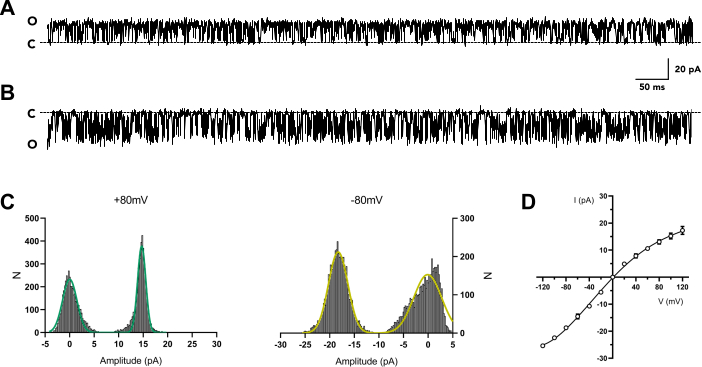
図 9: 合成ancTREK1の単一チャネル活性。(A および B) それぞれ 80 mV および −80 mV で記録された代表的な単一チャネル電流トレース。点線はチャネル閉鎖レベルを示す。(C) 正電位(左)および負電位(右)における全点振幅ヒストグラム。(D) 2価カチオンを含まない対称 200 mM カリウム (K+) 条件下でのancTREK1のI–V関係。曲線は4次多項式を用いてフィッティングされており、コンダクタンス値は ±80 mV における勾配から導出されている。この図の拡大版を表示するには、ここをクリックしてください。
ancTREK1は、哺乳類のTREK1チャネルと比較してN末端およびC末端の延長領域を欠いているが、再構成後も機能的に活性を維持していた。高コンダクタンスモードと低コンダクタンスモード(正電位においてそれぞれ132 ± 5 pSおよび41 ± 5 pS)を示す哺乳類TREK139とは対照的に、ancTREK1は大きなコンダクタンスモードのみを示した。正電位における単一チャネルコンダクタンスは112.8 ± 10.8 pS(80 mV, n = 5)であり、これはTREKチャネルの報告値(対称カリウム条件下で85–130 pS)38,39,40,41と一致していた。負電位では、コンダクタンスは205.6 ± 2.05 pS(−80 mV, n = 5)に増加し、これは以前に報告されたTREK1の挙動39と一致していた。注目すべき点として、ancTREK1は、切り出されたパッチ構成を用いて得られたTREK1の測定値42と比較して、より高い正規化開口確率(NPo)を示した。NPo–電圧関係では、正電位でチャネル活性の増加が見られ、80 mVで0.78 ± 0.02(n = 5)に達した。対照的に、NPoは負電位で減少し、−80 mVで0.53 ± 0.04、−120 mVで0.28 ± 0.03となった(図10)。
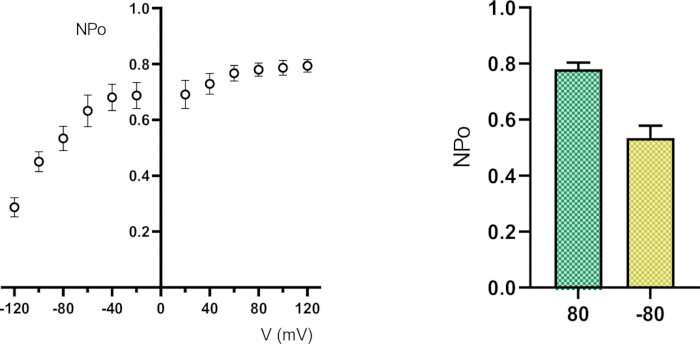
図10: ancTREK1 単一チャネル活性の電圧依存性解析。膜電位の関数としての正規化オープン確率 (NPo) (左) および 80 mV と −80 mV における NPo の比較 (右) を示しており、正の電位でチャネルの開口が増加していることがわかる。この図の拡大版を表示するには、ここをクリックしてください。
補足図1. 合成された祖先型2ポアドメインカリウム(K2P)チャネル(ancTREK1)のアミノ酸配列。電気生理学的記録に使用したancTREK1の全長アミノ酸配列。この配列は、UniProtおよびNCBIデータベースから収集したオルソログ配列を含むTREK/TRAAKファミリーメンバーの精選データセットから、保存されたポアモチーフでフィルタリングし、アライメントを行い、最大尤度系統解析を用いた祖先配列推定によって再構築された。こちらのリンクからファイルをダウンロードしてください。
ディスカッション
本研究では、PLB法を用いて合成K2Pチャネルの電気生理学的特性を単一分子レベルで評価しました。科学文献に記載されている様々な平面脂質モデルの中で、我々はBLMの形成に着目しました。BLMは、2つの水相区画を隔てる垂直な非極性表面に開けられた直径50から140 µmの開口部の上に形成されます。この構成により、脂質膜の調製や電解質組成(例:イオン強度やpH)などの実験パラメータを制御しつつ、細胞膜環境をシミュレートすることが可能です3。我々はMontal–Mueller(フォールディング)法5を用いてBLMを再現しました。この手法では、2つの水溶液の気液界面に事前に展開された2つの脂質単分子層が、水位を上げることで開口部で結合し、膜が自発的に構築されます。
ここで提示する膜形成のプロトコルは非常に直感的ですが、実験の成功に強く影響するいくつかの重要なステップがあります。BLMchipMMとアンプの間の適切な電気的接続を確保するためには、PCBソケットに挿入されるAg/AgCl電極線の端部が塩素化されるのを避けることが不可欠です。BLMchipMMの組み立て時に電線の配置が不適切であると、アンプのケースに接触し、短絡や信号の飽和を招く可能性があります。アパーチャの前処理手順ももう一つの重要な要因です。前処理溶液の塗布時に過度な力を加えると、ポリイミドセプタムを損傷させる可能性があり、また電解質溶液の取り扱いが不適切で、特にアパーチャ領域を浸しすぎると、膜形成が妨げられることがあります。さらに、再現性を確保するためには、BLMchipMM記録チャンバーを丁寧に洗浄することが不可欠です。100% isopropyl alcoholを使用し、その後に十分にすすいで完全に乾燥させることで、残留物が以降の実験に干渉しないようにします。
本プロトコルには、いくつかの変更が可能です。漂白剤への浸漬による塩素化は実用的で広く用いられている手法ですが、電気メッキなどの代替法も採用できます43。同様に、前処理および脂質調製法においても変更が可能です。標準的な前処理溶液は、通常、揮発性炭化水素溶媒に溶解した長鎖アルカンで構成されます36。一般的にn-hexane中の1%ヘキサデカン溶液が使用されますが、他の溶媒が適している場合もあります。また、実験上の要求に応じて、脂質組成を調整することも可能です。DPhPC脂質は最適な膜安定性を提供しますが、天然または合成組成を含む代替脂質混合物を使用することもできます36。フォールディング法によって形成される垂直脂質二重層の主な利点は、各リーフレットが異なる脂質種で構成される非対称膜を生成できることであり5,22、この特徴は膜タンパク質の機能に影響を与えることが知られています。
膜形成のトラブルシューティングでは、一般的に水相の液量調整を行います。最初に膜が形成されない場合は、一方のコンパートメントのバッファー液量を繰り返し下げて上げることで、二層膜の構築を促進できます。それでも成功しない場合は、アパーチャーの上に気泡を導入することで、脂質の再分布と膜形成を促進させることができます。それでも解決しない場合は、通常、前処理や汚染に関連する問題が考えられるため、記録室を洗浄し、実験を最初からやり直すことを推奨します。
このセットアップの主要構成要素は、eNPR 100 kHzコンパクトアンプとBLMchipMMで構成されています。このアンプは小型で低ノイズのボルテージクランプシステムであり、アンプの筐体自体が効果的な電磁シールドを提供するため、外部のファラデーケージを含む追加の外部装置を必要としません。BLMchipMMは、アンプに直接接続するためのPCBが統合された、組み立て済みの小型記録チャンバーです。これは、テーパー状にレーザー穿孔された開口部を持つポリイミドセプタムによって隔てられた2つのC字型コンパートメントで構成されており、この開口部で人工膜が形成されます。コンパートメント容積が約110 µLというシステムの小型化により、試薬の消費量が大幅に抑えられ、固有容量が減少するため、信号品質が向上します。さらに、適切な洗浄手順に従えば、分解することなくデバイスを何度も再利用できるため、ばらつきが抑えられ、実験の再現性が高まります。
これらの利点がある一方で、いくつかの制限事項を考慮する必要があります。現在のセットアップには、温度、圧力、または灌流制御のための統合モジュールが含まれていません。固有の膜張力は、TREK144,45,46などのメカノセンシティブチャネルに影響を与えることが報告されていますが、本セットアップには膜張力の制御的な操作は含まれておらず、本研究でメカニズム的な結論は導き出していません。全体として、このプラットフォームは、人工膜におけるイオンチャネル活性を記録するための堅牢でアクセスしやすいシステムを提供します。本研究では、TREKサブファミリーの計算科学的に導出された祖先チャネルである合成K2PチャネルancTREK1を調査しました。記録されたデータは、PLBに再構成された精製ancTREK1が、報告されているTREK1様コンダクタンス特性と一致する単一チャネル挙動を示すことを実証しています。Mg2+フリーの対称200 mMカリウム条件下において、本チャネルは測定可能なI–V関係を示し、振幅値は80 mVで約13 pA、−80 mVで−19 pAとなりました。さらに、ancTREK1はTREK1チャネルで観察される特徴的な大コンダクタンスモードを示し、正電位(~112.8 pS)と比較して負電位(~205.6 pS)で高いコンダクタンスを示しました。特筆すべき点として、ancTREK1は正電位でNPoが増加し(80 mVで0.78)、負電位でNPoが減少(−80 mVで0.53、−120 mVで0.28)しており、これは切り出しパッチ構成での観察結果42とは異なります。これらの知見は、再構成膜タンパク質の原理実証的な単一チャネル記録における本システムの有用性を支持するものです。
開示事項
F.T.はElements S.r.l.のCEOであり、A.P.はその従業員です。その他の著者は、競合する利益がないことを宣言します。
謝辞
細胞トランスフェクション手順にご協力いただいたSofia Diletta Guzzeloni氏に感謝いたします。また、Elements社のDr. Leon Juarez氏とDr. Michelangelo Paci氏に深く感謝申し上げます。本研究は、イタリアのパヴィア大学分子医学科のDipartimenti di Eccellenza (2023–2027) イニシアチブ、Cariplo財団(#2019-1809)、およびM.L.へのPNRR研究プログラムCN00000013「National Centre for HPC, Big Data and Quantum Computing」による支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1,2-ジフィタノイル-sn-グリセロ-3-ホスホコリン (DPhPC) | Avanti Polar Lipids | 850356P | 人工脂質二重層の形成 |
| 2-プロパノール(≥99.5%) | Honeywell | 24137-5L | BLMchipMMデバイスの洗浄 |
| アガロース | Fisher BioReagents | BP160-500 | アガロースゲルの調製 |
| アガロースゲル水平電気泳動装置 | BTLabSystems | BT102 | DNA断片の分離 |
| アンピシリン | Fisher BioReagents | BP1760-25 | 形質転換菌の選択 |
| 抗GFPナノボディSepharoseレジン(自家製) | — | — | GFPタグ付きタンパク質のアフィニティー精製 |
| Anza アルカリホスファターゼ | Invitrogen | IVGN2208 | ベクターの脱リン酸化 |
| Anza EcoRI | Invitrogen | IVGN0116 | 制限酵素消化 |
| Anza NotI | Invitrogen | IVGN0014 | 制限酵素消化 |
| Anzaレッドバッファー (10×) | Invitrogen | IVGN2008 | 制限酵素消化バッファー |
| アプロチニンプロテアーゼ阻害剤 | Fisher Scientific | 15996008 | タンパク質分解の防止 |
| 卓上遠心機 | Eppendorf | EP5420000164 | 細胞のペレット化およびサンプル調製 |
| BLMchipMM | Elements s.r.l. | — | 平面脂質二重層の形成 |
| コレステリルヘミコハク酸 (CHS) | Anatrace | CH210 | 膜タンパク質の安定化 |
| クマシーブリリアントブルー | Sigma-Aldrich | 1125530025 | タンパク質染色 |
| 一般的な家庭用漂白剤 | — | — | Agワイヤの塩素化 |
| DNase I | Sigma-Aldrich | 11284932001 | ライセート粘性の低減 |
| 二回蒸留水 | — | — | 緩衝液および溶液の調製 |
| エタノール(純度99.9%) | Girelli Alcool s.r.l. | — | Ag/AgCl電極線の洗浄 |
| エチジウムブロマイド | Sigma-Aldrich | 1116080030 | DNA染色 |
| 極細目サンドペーパー | — | — | 電線からのAg/AgClコーティングの除去 |
| eNPR 100 kHz アンプ | Elements s.r.l. | — | 電気生理学的記録 |
| アガロースからのDNA抽出用Gel-Outキット | A&バイオテクノロジー | 023-250 | DNA精製 |
| GeneRuler 1 kb DNAラダー | Thermo Fisher Scientific | SM0311 | DNAサイズリファレンス |
| フリースタイル™ 293-F | Thermo Fisher Scientific | R79007 | ancTREK1タンパク質の発現 |
| HEPES (≥99.5%) | Sigma-Aldrich | H3375-500G | 緩衝剤 |
| ヘキサデカン (≥99%) | Sigma-Aldrich | H6703-100ML | 開口部の前処理 |
| ヘキサン (≥99%) | Sigma-Aldrich | 139386-100ML | 脂質溶媒 |
| 自家製 5× DNAローディングダイ | — | — | DNAサンプル調製 |
| 自家製 6× Laemmli SDSバッファー(還元剤含有) | — | — | タンパク質試料の調製 |
| 自家製脱染色液 | — | — | SDS-PAGEゲルの脱染色 |
| 自家製HRV-3Cプロテアーゼ | — | — | 融合タンパク質の切断 |
| 自家製SDS-PAGEランニングバッファー(10×) | — | — | SDS-PAGE電気泳動バッファー |
| イミダゾール | Alfa Aesar | A10221 | Hisタグ付きタンパク質の溶出 |
| バッチ内精製カラム | — | — | タンパク質精製ワークフロー |
| Innova44振盪インキュベーター | New Brunswick Innova | M1282 | 細胞培養増殖 |
| KCl | Honeywell | 31248-1KG | 電解質および緩衝液の調製 |
| LBブロス(レノックス) | Condalab | 1231 | 細菌培養 |
| ロイペプチンプロテアーゼ阻害剤 | Thermo Scientific | 78435 | タンパク質分解の防止 |
| 塩化マグネシウム六水和物 | Acros Organics | 447700010 | 緩衝液成分 |
| NanoDrop分光光度計 | DeNovix | DS-11 | DNAおよびタンパク質の定量 |
| n-ドデシル-βn-ドデシル-β-D-マルトシド (DDM) | NeoBiotech | NB-19-0056-25G | 膜タンパク質の可溶化 |
| Ni Sepharose High Performance レジン | Cytiva | 17526801 | IMAC精製 |
| ノートパソコン | — | — | 装置制御およびデータ収集 |
| Optima LE-80K 超遠心機 | Beckman | 365668 | 膜画分の単離 |
| ペンタン(≥99%) | Sigma-Aldrich | 236705-100ML | 脂質溶媒 |
| ペプスタチンAプロテアーゼ阻害剤 | Thermo Scientific | 78436 | タンパク質分解の防止 |
| Phusion GCバッファー (5x)×) | Thermo Fisher Scientific | F519 | PCRバッファー |
| Phusion 高正確性 DNA ポリメラーゼ | Thermo Fisher Scientific | F530S | PCR増幅 |
| PMSFプロテアーゼ阻害剤 | Thermo Scientific | 36978 | ライシス中のタンパク質保護 |
| ポリエチレンイミン (PEI) | 臨床科学 | 24765-100 | トランスフェクション試薬 |
| ProteinEle プレキャスト Tris-Glycine ゲル (4%–20%) | TransGen Biotech | DG101-01-V2 | タンパク質分離 |
| SDS-PAGEゲル電気泳動システム | Bio-Rad | 1658002FC | タンパク質電気泳動 |
| 酪酸ナトリウム | Fisher Scientific | A11079 | タンパク質発現増強剤 |
| T4 DNAリガーゼ | Thermo Fisher Scientific | EL0011 | DNAライゲーション |
| T4 DNAリガーゼバッファー (10×) | Thermo Fisher Scientific | B69 | ライゲーションバッファー |
| サーマルサイクラー (Mastercycler Nexus) | Eppendorf | 6331000025 | PCR増幅 |
| トリス塩基 | Sigma-Aldrich | T1503-1KG | 緩衝液の調製 |
| レシチンおよびポリソルベート80添加トリプトーゼ大豆カゼイン酵母酵母抽出物寒天培地 | HiMedia | M449-5KG | 細菌の平板塗抹 |
| 2本の銀線 | Elements s.r.l. | — | 電気生理学用電極 |
| 超遠心濃縮器(分画分子量 50 kDa) | Merck Amicon | UFC8050 | タンパク質濃度 |
| pEG BacMam発現ベクター | Addgene | 160687 | タンパク質発現 |
| USBケーブル | — | — | アンプとコンピュータの接続 |
参考文献
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
再版と許可
