タイムラプスイメージングを用いて、 ヒドラ 球体の再生過程を完全に追跡できます。このプロトコルでは 、ヒドラ 球体の生成方法を説明し、さまざまな取り付け戦略を論じ、回転ディスク共焦点顕微鏡および光シート蛍光顕微鏡を用いた長期ライブイメージングの実施方法を詳述します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
ハイドラは その卓越した再生能力で知られています。驚くべきことに、 ヒドラ 組織の小さな再生断片である ヒドラ 球体は 、新たに組織化する組織体を形成することができます。確立されると、この組織は周囲の組織を適切な口腔構造へと誘導します。数日以内に球状体は小さく、しかし完全に模様のあるポリプに発達します。このプロセスの比較的短い時間スケールにより、プロセス全体の連続したタイムラプス撮影が可能となり、再生の時空間的ダイナミクスを研究するユニークな機会を提供します。ここでは、再生中の ヒドラ 球体のタイムラプスデータセットを生成するための詳細なワークフローと代表的な結果を示します。プロトコルには球状体生成の詳細な手順と、画像診断に最適なサンプル選択のガイドラインが含まれています。本研究では、生体サンプルの長期イメージングに適したマウント戦略について論じ、回転円盤コフォーカス顕微鏡とライトシート顕微鏡の両方を用いたイメージング手法を実演します。ここで述べた原理は、長期イメージングを用いて動的な形態形成過程を研究できる他のモデルシステムにも広く適用可能です。
概要
ヒドラは小さな淡水性ポリプで、その卓越した再生能力で最もよく知られています。体の中央から切り取られた組織断片は折りたたまれ、ヒドラの二つの上皮層である外胚葉と内胚葉からなる中空の球状体になります。再生中、これらのヒドラ球体は新たなオーガナイザーを形成します。約3日以内に体の軸が伸び、頭と足の末端の細胞が分化します。この比較的短い時間枠のおかげで、再生プロセス全体をライブイメージングで記録できます。タイムラプスデータセットは、ヒドラ球体が再生2期に経験する特徴的な膨張と縮縮のサイクルを明らかにするのに重要な役割を果たしています。これらの浸透圧駆動の機械的振動によって生じる組織の伸縮は、オーガナイザー3の局在化に寄与します。
長期のライブイメージングを成功させるには、動きのアーティファクトを避けるために迅速な画像取得が必要であり、同時に試料の光損傷を防ぐために光の照射を最小限に抑える必要があります。従来の単点走査共焦点顕微鏡はこれらの要件を満たしていません。しかし、高度な技術も開発されています。本プロトコルでは、スピニングディスク共焦点顕微鏡(SDCM)とライトシート蛍光顕微鏡(LSFM)という2つの広く人気のあるモダリティに焦点を当てます。SDCMはピンホール4の配列を備えた高速回転ディスクを利用します。この設計により、共焦点性を保ちつつ、試料内の複数の点を同時に励起・検出することが可能です。この並列取得によりイメージングが大幅に加速し、動くサンプルの動きを使わずにキャプチャすることが可能になります。さらに、露光時間の短縮は光毒性を大幅に低減します。それでも、画像深さが限られているため、大きな構造物のライブイメージングは困難です。
LSFMの名前は、この平面5内でのみ蛍光色体を励起させるために使われる薄い光のシートに由来しています。ピンホールが検出される放射光を制限して軸方向の分解能を生み出すのに対し、ライトシート顕微鏡は励起体積を制限することで軸方向の分解能を確立します。検出用物は直交に配置され、蛍光を光シートに対して90°の角度で集めます。これにより、カメラは照明面全体から蛍光信号を一度の露光で収集でき、獲得速度が向上し、光毒性を最小限に抑えられます。1つまたは2つの水平に配置された検出目標物を中心に構成される一般的なLSFMジオメトリは、同じ試料を複数の角度から画像化できるという追加の利点があります。顕微鏡に2つの検出対象物を装備していれば、試料を同時に2面からイメージングできます6。あるいは、サンプルを回転させて複数の角度から見ることもできます。
生きたヒドラの研究に用いられる画像技術は近年大きく進歩し、再生に関連する形態変化をニューロン活動動態7,8,9,10まで観察できるようになりました。ここでは、既に発表されたプロトコル6,11を拡張し、再生中のヒドラ球体のライブイメージングにおける多様なアプローチの実証に焦点を当てます。小さな組織断片からヒドラ球体を生成する方法を説明し、適切に折りたたまれたサンプルを特定するためのガイドラインを提供します。ライブイメージングでよく使われる3つの取り付け方法について、ステップバイステップの説明をまとめています。逆立顕微鏡でのイメージング(SDCMの一般的な形状)では、球体は通常アガロースウェルに取り付けられます。これにより、彼らは視野内に留まりながら自由に動き回ることができます。フルオロエチレンプロピレン(FEP)は、屈折率(1.34)が水(1.33)に近いため、取り付けに一般的に使用されます。FEPホイルは特定の実験ニーズに合わせてカスタムイメージングチャンバーに熱成形可能です。同様に、アガロースに球体をガラス毛細血管内に埋め込むことはLSFMの標準的なアプローチです。この技術は毛細管あたりのサンプル数を制限しますが、マルチビュー検出に必要な回転を容易にします。最後に、SDCMとLSFMの両方を用いたライブイメージングの実施方法を示し、実験目的に応じて適切な技術を選択する際の重要な考慮点について議論します。このプロトコルはHydra向けに最適化されていますが、その基礎原理は、長期イメージングで動的な形態形成過程を研究する他のモデルシステムにも広く適用可能です。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
記載されたすべての手順は、スイスの動物研究に関する国家規則の倫理ガイドラインに従って実施されました。実験を始める前に、ハイドラは週3回、少なくとも2週間は正常に与えるべきです。実験に使われるヒドラは健康であるべきで、性器官もなく芽も出ない。最近芽が出たヒドラも避けるべきで、群れ内の他のヒドラに比べて体長が短いため識別されます。
1. ヒドラ 球体の調製(図1)
- まず解離培地(DM;レシピは 表1参照)で皿を準備します。実験中はDMは室温に置くべきです。
- 作業スペースの残りの準備:10cmの細胞培養皿の蓋をステレオスコープの下に置き、 ヒドラ 培地(HM;レシピは 表1参照)を一層敷きます。細胞培養皿自体は残存する ヒドラ 組織の採取に利用できます。最後に、 ヒドラ を集めてステレオスコープの近くの皿に入れます。
- ガラス製のパスツールピペットを使って、 ヒドラ をステレオスコープの蓋の下まで動かします。パスツールピペットは鈍らせることが推奨されています。これを達成するには、先端を素早く炎で持ち上げます。
- しばしば ヒドラ はメディアの表面に浮かんでいます。 ヒドラ をピペットで蓋の底まで沈めるまで再ピペットしてください。
- ヒドラを二分し、B2とB3の間に単一の直線的な切断を作ります(図1A,B参照)。球体を切り取る部位は一貫性を保つことが重要で、球体の挙動に大きな影響を与えます。
注意:特定の部位を切断する必要がない場合は、体の軸の中央から球状体を使ってください。表現型が強い動物(例:異所性頭部が多い動物)では、体の軸の中央に最もよく似た部位を探してください。 - ヒ ドラ が完全にリラックスするまで待て。必要に応じて、浮遊する体の部位を再びピピペットで沈め直してください。
- 切断された組織が弛緩した後も、切断端は腫れたままです。腫れが止まった場所に2回目の切り込みを入れて、組織の輪を作ります(図1C)。ヒ ドラ の半分それぞれから組織リングを切り取ることができます。
- 蓋から残りのヘッドエンドとフットエンドを外します。これらの残った体の部位は再生に任せることができます。 ヒドラ が適切に再生し、少なくとも2週間は餌を与えられたら、他の実験に再利用できます。
- 組織の輪を切り開けてください。開いたリングを複数の組織の断片に切り分けます(図1D)。長方形の組織片は~100〜150μm×~300〜500μmを目指す。
注意:1枚のリングでカットできるピースの数は変動します。例えば、105系統の ヒドラ は通常、AEP系統の ヒドラ よりもかなり細いです。組織リングが2つの適切な組織片を作れない場合は、開いたリングをトリミングして適切な大きさの組織片を1つ生成し、もう1つの小さな片を廃棄します。 - 組織の断片を室温のDMに移し、組織の断片と一緒に移動するHMの量を最小限に抑えてください。
- 球体はDMで3〜4時間折りたたまれさせておきましょう。球体が正しく折りたたまれているかを評価してください。成功した折りたたみ球体は丸みを帯び、外胚葉に完全に覆われているべきです(図2A-D)。
注意:半数以上の球体がまだ成功して折りたたまれていない場合は、さらに30分間DMに残しておいてください。 - 直径250〜350μmの折りたたみ球体を選びます(図2E-H)。プラスチック繊維などの外因性物質に汚染された球状体は避けてください。選択した球体をHMに移動させてから取り付けます。
注意:実験が補完培地(例:薬物治療)で行われる場合は、球状体を直ちにその培地に移してください。球体がHMに移動すると、振動が始まることを覚えておいてください。
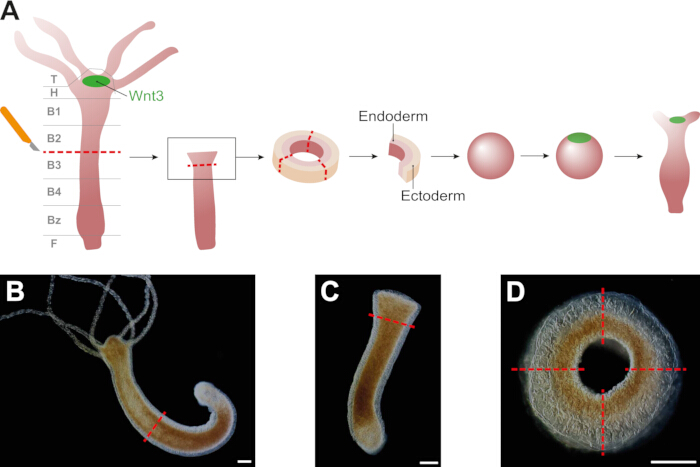
図1: ヒドラ 球体調製。 (A) ヒドラ 球体の生成を示す回路図。球体は、軸の形成、伸長、分化を駆動するWnt3+オーガナイザーを再確立することで対称性を破ります。(B)最初の切断は、B2とB3の境界である中央部で行われ、(A)に示されています。(C)各半分は腫れた部分のすぐ下で再度切断されます。(D) 生成された組織リングは切り開き、リングの大きさに応じて2〜4個の組織片に分割されます。スケールバー:250μm。 この図の拡大版はこちらをクリックしてください。
| メディア | 作曲 | 保管温度 | ||
| 解離媒体(DM) | 3.6 mM KCl、6 mM CaCl2、1.2 mM MgSO4、6 mM クエン酸ナトリウム、6 mM ピルビン酸ナトリウム、4 mM グルコース、12.5 mM TES(pH 6.9) | 4°C | ||
| ハイドラ ・ミディアム(HM) | 1 mM CaCl2、0.2 mM NaHCO3、0.02 mM KCl、0.02 mM MgCl2、0.2 mM トリスHCl(pH 7.4) | 室温 | ||
表1:メディアの構成と保管。
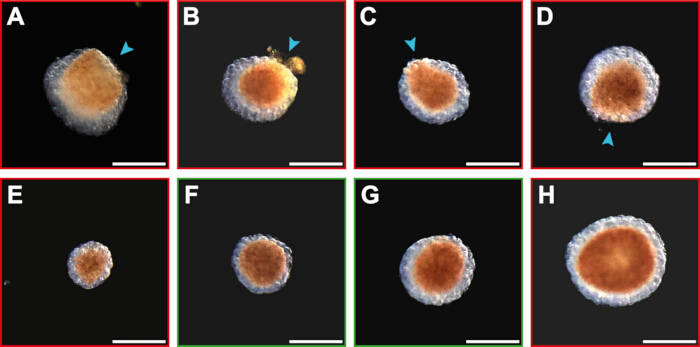
図2:展開および折りたたまれた球体の概要。 (A-D) 展開された球体は、最も折りたたまれないものからほぼ完全に折りたたまれたものまで配置されています。折りたたみのない球体は、外胚葉が内胚葉を覆っていない領域(青い矢じりで示される)で識別されます。(E) 小さすぎる球体の例。(F-G)最適サイズ(250〜350μm)の折りたたみ球体。(H) 大きすぎる球体の例。画像は、EchoのRevolveハイブリッド顕微鏡(RVL2-K)を用いて4ウェルガラス底イメージングプレートで取得され、逆モードで4.0倍対物レンズと透過光カメラ(カラー)を用いました。スケールバー:250μm。 この図の拡大版はこちらをクリックしてください。
2. マウント戦略
注:顕微鏡のレイアウトと実験設計の組み合わせによって、実験に最適な取り付け戦略が決まります。ここでは、さまざまな用途に用いられる取り付け技術について説明します。
- アガロース井戸での取り付け(図3A)
- アガロース1%をHMで煮沸し、アガロースが完全に溶けるまで準備します。
注意:1%アガロースのストックは事前に準備し、密閉したガラス瓶に1か月間保存できます。アガロースを5回以上加熱しないことを推奨しています。ただし、アガロースウェルは実験当日に準備しておくべきです。 - アガロースがまだ液体のまま、4孔ガラス底イメージングプレートの底面に厚さ2mmの層を完全に塗布します。
注:画像設定や検査条件の数によっては、他のイメージングプレートも適している場合があります。処理を使った実験では、アガロースの分を補うようにしてください。熱安定性のある化学物質を直接アガロースに混ぜることができます。2%のアガロース溶液を作り、沸騰後に目的の化学物質の2倍溶液と混ぜます。通常通り、アガロースに1x溶液をかぶせます。化学物質が熱安定性でない場合は、イメージングプレート内のアガロースの体積を考慮して濃度を調整し、この溶液でアガロースを覆います。 - アガロースは完全に固まらせてください。次に、アガロースに井戸を作ります。各井戸の間に少なくとも10mmのアガロースを残し、構造的な完全性を確保してください。
- プランジャーを押したまま、P1000ピペットの先端をアガロースに押し込み、イメージングプレートの底に触れるまで続けます。
注:アガロースウェルのサイズは、例えば異なるサイズの先端やスタンプを使うことで調整可能です。サンプルが動くのに十分なスペースがあることが重要です。 - ピペットをまっすぐ上に持ち、イメージングプレートの底面とフラッシュします。次に、ピペットの先端を動かして回転させてアガロースを切ります。
- ピペットのプランジャーを離し、同時にピペットの先端をアガロースからゆっくりと上に動かして取り除きます。
- プランジャーを押したまま、P1000ピペットの先端をアガロースに押し込み、イメージングプレートの底に触れるまで続けます。
- 井戸掘りの工程を繰り返し、十分な井戸が作られるまで続けます。ピペットがあまりにも早く取り除かれたり、アガロースが完全に切断されていなかったりすると、ウェルの底にアガロースが残ることがあります。これらのウェルの使用は避けてください。画像画質に影響を与えるためです。
- アガロースの上に薄くHMを塗ります。培地の蒸発を防ぐために、蓋付きのイメージングプレートを使用します。
- アガロースウェル内にできた気泡は、P20ピペットの先端で空気泡に触れて排出します。
- ヒドラの球体を一つずつイメージングプレートに移動させろ。球体がすぐに井戸に落ちない場合は、ピペットでそっと押し込んで球体を井戸の方向に誘導します。
注:2つの球体が同じ井戸に入ることもあります。両方の球体を吸引で取り外し、再度取り付けを試みてください。球状体を再吸気すると球体やアガロース井戸に損傷を与える可能性があるので注意してください。もしそうなったら、異なる井戸や新しい球体を使い続けてください。 - 逆立顕微鏡で試料を画像化してください(図4A)。
- アガロース1%をHMで煮沸し、アガロースが完全に溶けるまで準備します。
- FEPウェルへの取り付け(図3B)
- FEPウェルから気泡を除去するためのカスタムガラスピペットを準備してください(補足図1)。
- ガラス製パスツールピペットを、先端がまだ持てる場所で炎で加熱します。均一に加熱するためにピペットを回し続けてください。
- ガラスが柔らかくなり始めたら、ピペットの先端を素早く伸ばしつつ、ピペットを炎から取り出します。
- 薄くなった部分を割って、約0.4〜0.5mmの新しいピペットチップを作ります。ピペットの先端を素早く炎に当てて鈍らせる;これでピペットが閉じないようにしてください。
- ピペットが広がる部分でガラス製パスツールピペットを加熱します。ピペットを回転させず、ピペットの先端がたるみ始めたら炎から離してください。ピペットがL字型に硬化するまで水平に持つ。
- カスタムアルミ型の上にFEPホイルを真空熱成形してFEPチャンバーを作成します。6.型の寸法は、異なるサンプルサイズや顕微鏡チャンバーに合わせて調整可能です。 ヒドラ 球体には直径0.5mmの井戸が最も適しています。
- FEPホイルを15×15cmのシートに切ります。FEPホイルを熱成形機の中でクランプし、8分間加熱します。
- アルミ型をホイルの下に置きます。真空状態で型の周りにホイルを30秒ほど形成します。
- 熱成形FEP箔からチャンバーを手動で切り出してください。
- FEPチャンバーを缶入りの空気で粉塵フリーにしてください。FEPチャンバーをHMで満たしてください。
注意:通常、FEPチャンバーには蓋がありません。つまり、画像撮影中に一部の媒体が蒸発することを意味します。もし培地の蒸発が問題を引き起こすなら、閉じられるチャンバーを設計してください - 事前に準備されたガラスピペットを使ってウェルから気泡を放出します。ピペットの先端で空気の泡を井戸から押し出す動作ですくい上げます。
- すべての井戸に気泡が消えたら、 ヒドラ 球体を一つずつFEPチャンバーに移動させます。球体が井戸に落ちない場合は、ピペットでそっと押し込みます。
注意:2つの球体が同じ井戸に落ちた場合は、ピペット吸引で両方を取り出し、再マウントしてください。FEPウェルの設計によって、イメージングに使用する顕微鏡の種類が決まります。一般的に、1つまたは複数の水平に配置された検出対象物を持つ顕微鏡が適しています(図4B)。
- FEPウェルから気泡を除去するためのカスタムガラスピペットを準備してください(補足図1)。
- ガラス毛細管におけるアガロース埋め込み取り付け(図3C)
- 低融点アガロースを1%をHMで沸騰させ、低融点アガロースが完全に溶けるまで準備します。液体アガロース1mLをマイクロ遠心分離機のチューブに移します。
注:1%の低融点アガロースを事前に準備し、密閉したガラス瓶に1か月間保存できます。必要に応じて、アガロースを37°Cで保温することで液体状態に保つことができます。 ただし、サンプルを加えたらすぐにアガロースを加熱しないでください。この段階でアガロースに処理(プロトコルステップ2.1.2参照)や蛍光ビーズを補うのを検討してください。ビーズはマルチビュー再構築に使用できます。 - 2〜4個の球体をアガロースに移します。ピストンロッドをガラス毛細管に完全に挿入します。ピストンロッドはぴったり合うはずです。
- 毛細血管の端をアガロースに挿入し、ピストンロッドをゆっくり引き上げてアガロースを毛細血管内に引き上げます。まず球体を使わずにアガロースを吸引し、止めずにアガロースを毛細血管に注入します。
注:最良の画像診断を得るためには、個々の球体は十分に分離され、アガロースカラムの下部に配置されるべきです(図3C)。
- 低融点アガロースを1%をHMで沸騰させ、低融点アガロースが完全に溶けるまで準備します。液体アガロース1mLをマイクロ遠心分離機のチューブに移します。
- アガロースから毛細血管を取り出し、外側をティッシュペーパーで拭き取ってください。毛細血管を水平に保ち、アガロースが硬化するまで回転させます。これにより球体がアガロース柱の中央に位置するのを助けられます。
- アガロース充填毛細血管をHMに入れてサンプルを水分補給します。ガラス毛細管に埋め込まれた試料は、1つまたは複数の水平に位置した検出対物レンズを備えた顕微鏡で画像化する必要があります(図4C)。
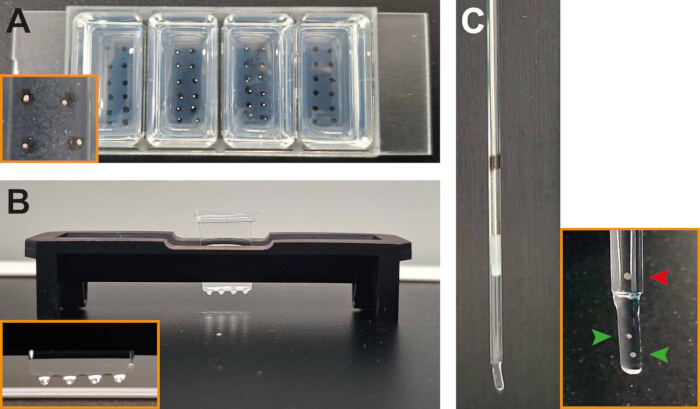
図3:ライブイメージングのための ヒドラ 球体の取り付け。 (A) (中央の2つの部屋)と(外部の部屋)を持つアガロース井戸。(B) FEPウェルに搭載された球体。(C) アガロースに埋め込まれ、ガラス毛細管内に埋め込まれた球体。画像診断では、アガロース柱がガラス毛細血管からわずかに押し出されます。したがって、球体はアガロース柱(緑色の矢じり)の下部近くに配置しつつ、十分に分離して配置すべきです。底部から遠すぎる球状体(赤い矢じり)は効果的に画像化できません。 この図の拡大版はこちらをクリックしてご覧ください。
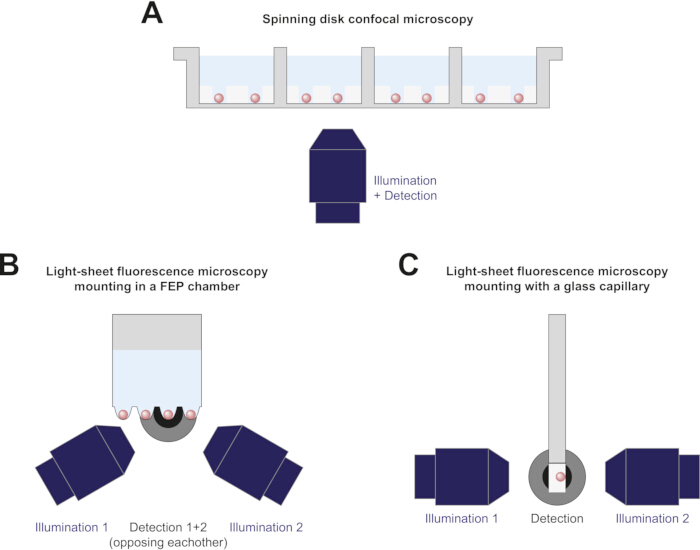
図4:記載されたマウント戦略に適したイメージングセットアップの回路図。 (A) アガロースウェルにマウントされ、逆回転円盤共焦点顕微鏡で画像化された球体。(B) FEPチャンバーに搭載され、多孔イメージングに適したライトシート蛍光顕微鏡でイメージングされた球体6.明確化のために、2つ目の検出目標は検出目標1の反対側に配置されており、表示されていません。(C) アガロースに埋め込まれ、ガラスキャピラリーに取り付けられた球体で、(B)とは異なる構成の顕微鏡を用いた光シート蛍光顕微鏡。 この図の拡大版はこちらをクリックしてご覧ください。
3. 回転ディスク共焦点顕微鏡法
- 回転ディスクユニットを備えた逆立顕微鏡で試料をイメージしてください。顕微鏡チャンバーの温度を18〜21°Cに設定します。 顕微鏡を冷やせない場合は、部屋を冷やしてください。
- サンプル全体をカバーできる視野のある対物レンズを選びましょう。アガロース井戸に埋め込まれた試料の場合、理想的には視野角が井全体を覆うべきです。
注:特に複数のサンプルを持つタイムラプスデータセットでは、ドライ対物レンズの使用が推奨されます。 - サンプルホルダーを顕微鏡ステージに置きます。透過光をオンにして露出時間を設定します。
- 試料中の蛍光色素のレーザー波長、レーザー出力、露出時間を選択します。光毒性のリスクを減らすためにレーザー出力と露光時間の組み合わせを選びつつ、良好な信号対雑音比を得るために十分な量を選びましょう。
注意:生体サンプルは画像診断時に大きく動く可能性があります。可能な限り、2台のカメラを用いて蛍光と透過光の同時取得、すなわちデュアルレーザー蛍光を行ってください。2つ以上のチャネルがイメージされている場合は、正確な重複が最も重要なチャネルの同時取得を優先してください。 - すべてのサンプルを見つけて複数のイメージング位置に設定します。各サンプルに対して、目標に最も近い平面から始まり、最初のピントが合わない平面で終わるzスタックを作成します。 ヒドラ 球体の場合は2μmのステップサイズが推奨されます。
注:zスタックの作成は必ずしも必要とは限りません。例えば、再生中の ヒドラ 球体の振動挙動を調べる際には、試料の赤道面に焦点を合わせた単一の平面で十分です。 ヒドラ のサンプルがアガロース井戸の底に適切に沈み、適切な対物レンズが選ばれた場合、この平面は対物レンズの作業範囲内に位置するはずです。 - タイムラプスのパラメータを設定してください。ヒ ドラ 球体の完全な再生を撮影するには、10分ごとに撮影し60〜70時間の時間が適しています。画像診断を始めてください。
4. ライトシート蛍光顕微鏡法
- 水平に検出対物を配置したライトシート顕微鏡で試料を画像化します。
- 始める前に、照明用対物レンズで作られるライトシートを合わせてください。顕微鏡チャンバーの温度を18〜21°Cに設定します。 顕微鏡を冷やせない場合は、部屋を冷やしてください。
- 完全なサンプルを視野内に収められる検出対象物を選びます。サンプルに移動可能な空間があれば、それに対応する検出目標を選びます。
- サンプルホルダーを顕微鏡に入れてください。試料をガラス毛細管に取り付けている場合は、ピストンを押し下げて試料がガラスから出て、アガロースを通してのみイメージングできるようにします(図3C)。
- 透過光、蛍光、多位置、タイムラプスの設定をセクション3(回転ディスク共焦点顕微鏡)で設定します。
- 顕微鏡に複数の検出対象物が搭載されていない場合は、マルチビュー検出を設定して複数の角度から試料を検出します。1つのzスタック内でサンプルの半分以上を検出できる場合、180°の角度で2つのビューを分けて見ることができます。あるいは、3〜5ビューを使うのも良いでしょう。
- 適切なステップサイズでZスタックを設置してください。 ヒドラ 球体の場合は2μmのステップサイズが推奨されます。Zスタックはサンプル全体を完全にカバーしているはずです。FEPウェル内で自由に動くサンプルを撮影する際は、ウェル全体を覆うZスタックを作成します。画像診断を始めてください。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
回転円盤共焦点顕微鏡(SDCM)と光シート蛍光顕微鏡(LSFM)の両方を用いて 、ヒドラ 球体の再生のための長期タイムラプスデータセットを成功裏に生成しました。再生は両方の画像設定で正常に起こり、球体は対称性を破り、伸長し、触手と足を3日以内に発達させました(図5A、 図6A、 補足映像1、補足映像2)。長時間の画像撮影の後、再生した動物は動きが鈍くなり、焦点が合わず、視野から完全に外れて動くようになりました(図5A)。
蛍光マーカーを用いて、 ヒドラ の再生に不可欠な動的な細胞プロセスを可視化しました。例えば、 ヒドラ 球体はアクチン線維を急速に再編成します。アクチン組織の多くは遺伝しますが、組織の両端...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
SDCMとLSFMはどちらも再生中のヒドラ球体の長期タイムラプスデータセットを生成するのに適しています。各技術の光学原理は異なり、それぞれ独自の利点と制約があります(表2)。サンプルの完全かつ高解像度の表示が不要な場合、SDCMが好まれます。複数のサンプルを1つの実験で画像化できるため、薬物治療など様々な条件の試験に特に有用です。さらに、SDCMデータセットは処理・解析が容易であり、この手法がより高速でアクセスしやすいものです。しかし、包括的な空間的概要が不可欠な場合、LSFMが好まれるアプローチです。また、LSFMは高光感度の試料のイメージングにも有利です。SDCMは単点走査共焦点顕微鏡に比べて光毒性を大幅に低減しますが、試料全体を繰り返し照射します。LSFMは薄い光学面のみを励起し、光の露光と光損傷を最小限に抑えます13,14。しかし、LSFMは学習曲線が急です。マルチビューレジストレーションや融合...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者たちは利益相反がないと宣言しています。
謝辞
FMI先端イメージング・顕微鏡施設のローレ・プランタールさんの貴重なご意見に感謝申し上げます。この研究はノバルティス研究財団の支援を受けました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 20×/0.8 Plan-Apochromat objective | Zeiss | 440640-9903-000 | スピンディスク共焦点顕微鏡用 |
| 20x/1.0 W Plan-Apochromat water dipping objective | Zeiss | 421452-9700-000 | Zeiss Lightsheet 7の検出レンズとして使用 |
| 3DプリントされたFEPチャンバー用ホルダー | カスタムメイド | ||
| 4ウェルガラス底イメージングプレート(#1.5H) | Ibidi | 80427 | |
| アガロース | Carl Roth | 3810.4 | |
| FEPチャンバー用アルミニウムモールド | カスタムメイド | ||
| 塩化カルシウム | Sigma-Aldrich | C4901 | |
| 缶入りエア | Durable | POWERCLEAN STANDARD 400 | |
| 細胞培養プレート(6cm) | Thermo Fisher Scientific | 150288 | |
| D-(+)-グルコース | Sigma-Aldrich | G8769 | |
| FEPフォイル(127μm厚) | Adtech Polymer Engineering | ||
| FluoSpheres カルボキシレート改質(0.2μm、ダークレッド) | Thermo Fisher Scientific | F8807 | |
| ガラスキャピラリー | Brand | 701904 | |
| ガラス製パスツールピペット(150mm) | VWR | 612-1701 | |
| Hydra vulgaris | |||
| イメージングソフトウェア | Visitron | VisiView | スピンディスク共焦点顕微鏡用 |
| 倒立光学顕微鏡 | Zeiss | Axio observer 7 | スピンディスク共焦点顕微鏡用 |
| ライトシート顕微鏡 | Leica | Viventis Deep LS2 | |
| ライトシート顕微鏡 | Zeiss | Lightsheet 7 | |
| 低融点アガロース | Thermo Fisher Scientific | R0801 | |
| 塩化マグネシウム | Sigma-Aldrich | M8266 | |
| 硫酸マグネシウム | Sigma-Aldrich | M2643 | |
| マイクロスカルペル | pfm medical | 200300745 | |
| ピペットバルブ | |||
| ピストンロッドトランスファーペット | Brand | 701932 | |
| 塩化カリウム | Sigma-Aldrich | P9333 | |
| 安全バーンナー | INTEGRA Biosciences | FIREBOY plus | |
| sCMOSカメラ | Photometrics | Prime 95B | スピンディスク共焦点顕微鏡用 |
| 重炭酸ナトリウム | Fluka Analytical, Sigma-Aldrich | 71630 | |
| クエン酸ナトリウム二水和物 | Sigma-Aldrich | W302600 | |
| ピルビン酸ナトリウム | Sigma-Aldrich | P2256 | |
| スピンディスク共焦点スキャンユニット(50μmのピンホール) | Yokogawa | CSU-W1 | スピンディスク共焦点顕微鏡用 |
| ステレオスコープ | Leica | M80 | |
| TES | Sigma-Aldrich | T1375 | |
| 熱成形機 | Yuyao Jintai Machine Factory | Jintai JT-18 | |
| 組織培養皿(10cm) | VWR | 734-2321 | |
| Tris-HClバッファー | Roche Diagnostics | 10812846001 |
参考文献
- Bode, P. M., Bode, H. R. Formation of pattern in regenerating tissue pieces of hydra attenuata: I. Head-body proportion regulation. Dev Biol. 78 (2), 484-496 (1980).
- Fütterer, C., Colombo, C., Jülicher, F., Ott, A. Morphogenetic oscillations during symmetry breaking of regenerating hydra vulgaris cells. Europhys Lett. 64 (1), 137(2003).
- Weevers, S. L., et al. Mechanochemical patterning localizes the organizer of a luminal epithelium. Sci Adv. 11 (26), eadu2286(2025).
- Oreopoulos, J., Berman, R., Browne, M. Chapter 9 - Spinning-disk confocal microscopy: present technology and future trends. Meth Cell Biol. 123, 153-175 (2014).
- Stelzer, E. H. K., et al. Light sheet fluorescence microscopy. Nat Rev Meth Primers. 1 (1), 73(2021).
- Moos, F., et al. Open-top multisample dual-view light-sheet microscope for live imaging of large multicellular systems. Nat Meth. 21 (5), 798-803 (2024).
- Soriano, J., Colombo, C., Ott, A. Hydra molecular network reaches criticality at the symmetry-breaking axis-defining moment. Phys Rev Lett. 97 (25), 258102(2006).
- Livshits, A., Shani-Zerbib, L., Maroudas-Sacks, Y., Braun, E., Keren, K. Structural inheritance of the actin cytoskeletal organization determines the body axis in regenerating hydra. Cell Rep. 18 (6), 1410-1421 (2017).
- Hanson, A., et al. Automatic monitoring of neural activity with single-cell resolution in behaving hydra. Sc Rep. 14 (1), 5083(2024).
- Escobar, A., et al. Terminal differentiation precedes functional circuit integration in the peduncle neurons in regenerating hydra vulgaris. Neural Dev. 19 (1), 18(2024).
- Ferenc, J., Tsiairis, C. D. Studying Mechanical Oscillations During Whole-Body Regeneration in Hydra. Whole-Body Regenerat. 2450, 619-633 (2022).
- Bossert, P., Galliot, B. How to use hydra as a model system to teach biology in the classroom. Int J Dev Biol. 56 (6-8), 637-652 (2012).
- Jemielita, M., Taormina, M. J., Delaurier, A., Kimmel, C. B., Parthasarathy, R. Comparing phototoxicity during the development of a zebrafish craniofacial bone using confocal and light sheet fluorescence microscopy techniques. J Biophotonics. 6 (11-12), 920-928 (2013).
- Icha, J., Weber, M., Waters, J. C., Norden, C. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 39 (8), 1700003(2017).
- Ravichandran, Y., Vogg, M., Kruse, K., Pearce, D. J. G., Roux, A. Topology changes of hydra define actin orientation defects as organizers of morphogenesis. Sci Adv. 11 (3), eadr9855(2025).
- Maroudas-Sacks, Y., Garion, L., Suganthan, S., Popović, M., Keren, K. Confinement modulates axial patterning in regenerating hydra. PRX Life. 2 (4), 043007(2024).
- Bailles, A., et al. Anisotropic stretch biases the self-organization of actin fibers in multicellular hydra aggregates. Proc Natl Acad Sci. 122 (32), e2423437122(2025).
- Luu, P., Fraser, S. E., Schneider, F. More than double the fun with two-photon excitation microscopy. Comm Biol. 7 (1), 364(2024).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
