本研究は、統合バイオインフォマティクスと実験的検証を通じて、2型糖尿病および動脈硬化性心血管疾患の基盤となる共通遺伝子、生物学的経路、免疫関連、潜在的な治療標的を特定しました。
この記事について
サマリー
要約
本研究では、2型糖尿病(T2DM)と動脈硬化性心血管疾患(ASCVD)の併存メカニズムを調査し、治療対象となる可能性のある対象を特定しました。T2DMとASCVDの間で共通する差異発現遺伝子(C-DEGs)をGSE78721およびGSE12288データセットから抽出しました。Gene Ontology(GO)および京都Genes and Genomes百科事典(KEGG)経路の濃密解析、タンパク質間相互作用(PPI)ネットワーク構築、ハブ遺伝子同定、薬物-遺伝子相互作用データベース(DGIdb)解析が実施されました。ハブC-DEGと免疫浸透細胞との関連はCIBERSORT法を用いて解析されました。ハブC-DEGの発現レベルはqRT-PCRおよびウェスタンブロット解析で定量化されました。合計32のC-DEGが同定され、そのうち20のアップレギュレーション遺伝子と12のダウンレギュレーション遺伝子が含まれていました。C-DEGは主にウイルス性心筋炎、不整脈性右心室心筋症、肥厚性心筋症、拡張型心筋症などの主要経路で豊富化していました。PPI解析により29ノードと39エッジが確認され、両データセットで8つのハブC-DEG(HSP90B1、PLAU、SLPI、TOP3A、NCF4、PRF1、TUBA1C、CS)が特定されました。さらに、ハブC-DEG(TOP3A、SLPI、NCF4、PRF1、PLAU)は免疫浸潤細胞レベルと有意な相関を示しました。これらのハブC-DEGを標的とした薬剤は、T2DMおよびASCVDの治療に有望な候補となっています。さらに、mRNAおよびタンパク質レベルの両方でのハブC-DEG発現がT2DMおよびASCVD患者において検証されました。統合バイオインフォマティクス解析により、T2DMおよびASCVDの治療対象、メカニズム、薬剤のスクリーニングが可能となり、これらの疾患に対する分子療法に関する新たな知見がもたらされました。
概要
糖尿病(DM)は、遺伝的および環境的要因に影響を受ける複雑な病因を持つ慢性疾患であり、現在世界中で約4億6300万人に影響を及ぼしており、2045年までに7億人に増加すると予測されています。2型糖尿病(T2DM)は、β細胞不全に起因するインスリン抵抗性と相対的なインスリン欠乏を特徴とする多因子疾患であり、高血糖および脂質異常を引き起こし、DM症例の90%を占めます。インスリン抵抗性は、動脈硬化性心血管疾患(ASCVD)の発症を促進する多くの心血管代謝異常の重要な前駆体であり、その予後に影響を与える可能性があります。6,7。冠動脈疾患(CAD)は主に動脈硬化性物質の蓄積が進行することに起因し、それにより腔内狭窄や血流障害が生じます8。動脈硬化は高コレステロール血症や糖尿病など複数の要因によって引き起こされます。T2DMおよびCADに伴う重大な人的・経済的負担、そして長期的な管理上の課題は、効果的な予防戦略の緊急性を浮き彫りにしています。
CADと併発T2DMの患者は、心臓イベントのリスクが著しく高まる11。心血管疾患(CVD)はT2DMの一般的な合併症であり、T2DM患者の死亡率の主要な原因であり、CVD12は約32.2%を占めています。LoDoCo2サブスタディは、慢性CAD集団におけるT2DMが主要な心血管有害事象のリスク増加と相関していることを確認しました13。T2DM患者はASCVDのリスクが高い14,15であり、糖尿病も併発する慢性CAD患者は心血管イベントのリスクが有意に高まる16であり、革新的な治療法の未充足の重要性を強調しています。
増加する研究グループが、さまざまなデータベースからのトランスクリプトミクスデータの包括的解析を通じて、T2DMおよびASCVDにおける新規差別発現遺伝子(DEGs)のスクリーニングを行っています。これらの疾患の関連性を解明し、効果的な生物学的機能を特定することに取り組みが焦点が当てられています。最近のバイオインフォマティクス研究では、T2DMを他の疾患との関連で探求しています。例えば、SongらはT2DMと変形性関節症の間に共通のDEGsを特定しました17、Castillo-Velázquezらはアルツハイマー病とDM18の関係を予測し、T2DMと多嚢胞性卵巣症候群の重要な遺伝子や経路はバイオインフォマティクス解析により認識されました19。しかし、T2DMとASCVDを結びつける分子メカニズムは依然として十分に解明されておらず、両疾患の進行を治療するための新たな治療標的を特定することが重要であることが浮き彫りになっています。
本研究は、T2DMおよびASCVDの共有分子経路および潜在的な治療標的を体系的に同定し、GSE78721(T2DM)およびGSE12288(ASCVD)データセットのトランスクリプトミクスデータを統合的にバイオインフォマティクス解析することで特定することを目的としています。これらのデータセットは、各疾患に対して患者と対照のマッチングサンプルを提供し、比較可能なマイクロアレイプラットフォームを用いて堅牢な比較解析を可能にするために選ばれました。現在のアプローチは、一般的なDEGs(C-DEGs)の同定、機能豊化およびタンパク質相互作用解析の実施、免疫浸潤との関連評価、相互作用薬剤の予測を含んでいました。さらに、予備的な実験検証も実施されました。本研究は、T2DMとASCVDの併存症を理解するための新たな知見と候補的ターゲットを提供します。
プロトコル
本研究プロトコルは寧夏医科大学倫理機関審査委員会(内部審査委員会参照番号:倫理[2023]-YCSKT-002)によって審査・承認され、ヘルシンキ宣言の原則に準拠しています。参加前に、研究に関与したすべての患者から書面による同意が取得されました。
T2DMおよびASCVDの発現データの出典
T2DMおよびASCVDの遺伝子発現データは、それぞれGEOデータベースから取得したGSE78721データセットとGSE12288データセットから取得されました。両データセットは、[PrimeView] Affymetrix ヒト遺伝子発現アレイおよび[HG-U133A] Affymetrix ヒトゲノムU133Aアレイプラットフォームのマイクロアレイデータを活用しています。GSE78721データセットには68人のT2DM患者と62の正常サンプルの発現データが含まれていました(詳細は 補足表1に記載)、GSE12288データセットは110件のASCVDサンプルと112件の正常対照群からの発現データで構成されていました(詳細は 補足表2参照)。遺伝子プローブはプラットフォームの注釈情報に基づいて対応する遺伝子シンボルに変換されました。
T2DMおよびASCVDにおける差異発現遺伝子の同定
GEOデータベースからデータをダウンロードした後、「limma」ソフトウェアパッケージを用いてT2DMおよびASCVDの生の式行列を補正・正規化し、DEGを識別しました。DEGスクリーニングにはP < 0.05の閾値を適用しました。微分表現結果は、それぞれ「ヒートマップ」と「ggplot2」Rパッケージを用いてヒートマップと火山プロットを生成して可視化しました。T2DMとASCVDの間のC-DEGはベン図 を用 いて同定されました。
遺伝子オントロジー(GO)機能解析および京都遺伝子・ゲノム百科事典(KEGG)経路富掘解析に関するC-DEGの解析
生物学的機能と経路はGOおよびKEGG経路濃縮解析によって決定されました。Rパッケージ組織です。Hs.eg.dbはC-DEG名を遺伝子IDに変換するために用いられ、RパッケージのclusterProfiler、enrichplot、ggplot2、GOplotを用いてGO富集解析が行われ、C-DEGの共通生物学的機能を探求しました。その後、T2DMとASCVDの併存の分子メカニズムに関与する共通の有意な経路を特定するためにKEGG解析が行われました。GOおよびKEGGの濃縮結果は、遺伝子数、機能記述、 P 値を示す棒グラフで示され、統計的 有意< 0.05と定義されました。
C-DEGのタンパク質間相互作用(PPI)ネットワーク解析
本研究ではC-DEGとハブ遺伝子が共有遺伝子として定義されました。これらの共有遺伝子間の機能的関連を評価するために、STRINGデータベース(https://string-db.org)を用いてPPIネットワークを構築しました。解析は、「SEARCH」機能で「Multiple proteins」を選択し、C-DEG名を入力しつつ種を「Homo sapiens」と指定することから始まりました。C-DEGの基本パラメータはPPI調節ネットワークを表示するように設定されました。PPIネットワークの可視化はCytoscapeソフトウェア(バージョン3.9.1)(https://apps.cytoscape.org/)を用いて行われ、C-DEG間の相互作用をグラフィカルに表現しました。Hub C-DEGは、Degreeランキングアルゴリズムに基づきCytoScapeのCytoHubbbaプラグインを用いてPPIネットワーク内で特定されました。
免疫細胞浸透解析
T2DM群と正常対照群の免疫細胞浸潤の違いを調べるため、CIBERSORT法を用いて様々な免疫浸透細胞の存在量を評価しました。その後、Wilcoxonテストアルゴリズムを用いて、T2DMと対照サンプル間のこれらの侵入免疫細胞の割合を比較し、観察された差異の評価を容易にしました。データの可視化はバイオリンプロットによって行われました。C-DEGと免疫浸潤細胞の相関を検証するために、limma、scales、tidyverse、ggplot2などのRパッケージを用いてSpearman相関係数を計算しました。このステップでは、C-DEGの発現と免疫細胞浸潤レベルの関係を定量化し、その結果をヒートマップとして示しました。 P値が0.05未満の場合は統計的に有意とみなされました。
潜在的な標的薬剤とハブC-DEGの相互作用解析
薬物-遺伝子相互作用データベース(DGIdb)は、承認済みおよび潜在的な治療薬剤の薬物-遺伝子相互作用および遺伝プロファイルの包括的なカタログを提供します。本研究では、ハブC-DEGのリストをデータベースに入力し、ハブC-DEGと潜在的な標的薬剤間の相互作用情報を取得し、Cytoscapeソフトウェアで可視化しました。
臨床サンプルによるコア遺伝子の実験的検証
コア遺伝子を実験的に検証するために、臨床被験者から末梢血液サンプルを採取しました。研究コホートには実験群と対照群が含まれていました。実験群は、T2DMとASCVDの両方と診断された15名の患者で構成され、併存疾患を表しています。対照群は、糖尿病、心血管疾患、その他の主要な全身疾患の既往がない、年齢と性別が一致した健康なボランティア10名で構成されていました。実験群のすべての患者は、T2DMおよびASCVDの確立された臨床ガイドラインに従って確定診断されました。
定量的リアルタイムポリメラーゼ連鎖反応(qRT-PCR)
TRIzol試薬を用いて全RNAを単離し、逆転写システムキットで第一鎖cDNAを合成しました。その後、cDNAはSYBR-green PCRマスターミックスを用いてqRT-PCR用に希釈され、内部対照としてGAPDHが使用されました。発現の相対的な折りたたみ変化は2−ΔΔCt法で計算されました。解析に使用されたプライマーは以下の通りです:TUBA1C前方:5′-GACCTCGTGTGTTGGACCGAAT-3′、逆方向:5′-CGAGGTGAACCCACACAAGAG-3′;NCF4前方:5′-CTAAGTTTCAAAGCTGGAGATGTG-3′、逆方向:5′-GAATTCCTGAAGGCTCCTG-3′;PRF1-前方:5′-CCCAGTGACACACAAGGTT-3′、後退:5′-TCGTTGGGGATGTACGAG-3′;SLPI前進:5′-CCCTTCGTGTGTGTGTT-3′、後退:5′-CCTCCTTGTGTGTGTGTGT-3′;HSP90B1前:5′-CCGAAGAAGAACCTGAAGAGAG-3′、後方:5′-CATCTGTTCCCACATCCATT-3′;プラウ前方:5′-GGGGAGATGAGTGTGTGGTG-3′、後退:5′-GCAATGTCGTTGTGGTGAGC-3′;GAPDH前方:5′-CAGGGCTGCTTTTAACTGGGG-3′、後退:5′-GGGTGGAATCATATTGGAACA-3′。
ウェスタン・ブロット分析法
全タンパク質を単離し、ローディングバッファーで希釈し、10%のSDS-PAGEで分離した後、PVDF膜へ移管しました。膜はブロックされ、抗TUBA1C(1:1000、ab222849)、抗HSP90B1抗体(1:1000、ab238126)、抗NCF4抗体(1:1000、14648-1-AP)、抗PRF1抗体(1:1000、ab256453)、抗SLPI(1:1000、ab46763)、抗PLAU(1:1000、17968-1-AP)、抗GAPDH(1:5000、10494-1-AP)などを用いた。ホースラディッシュ過酸化酵素(HRP)(1:2000、ab6721)と結合した二次抗体を適用し、強化化学発光(ECL)基質を用いたバンドを可視化しました。
統計解析
統計解析はGraphPadプリズムソフトウェアを用いて行われ、データは平均標準差±表示されました。グループ間の差は学生の t検定を用いて評価し、 P値が0.05未満であれば統計的に有意とされました。
結果
DEGの識別
本研究では、バイオインフォマティクス解析にGSE78721とGSE12288の2つのデータセットが使用されました。GSE78721年には、T2DM患者と正常サンプルの間で合計2,266のDEGが同定され、1,209のアップレギュレーション遺伝子と1,057のダウンレギュレーション遺伝子が含まれていました(図1A)。GSE12288年には、ASCVD患者と対照群の間で924のDEGが検証され、そのうち403個が過剰発現、521個がダウンレギュレーションされていました(図1C)。両データセットで特定された上位50のDEGは、図1B,Dに示されたヒートマップで示されています。これら2つのデータセットを交差させることで、20のアップレギュレーション遺伝子と12のダウンレギュレーション遺伝子からなる32のC-DEGが同定されました(図2A,B)。
C-DEGのGOおよびKEGG濃縮
32のC-DEGに関連する生物学的機能と主要経路を明らかにするため、GOおよびKEGG解析が実施されました。C-DEGにおける生物学的プロセス(BP)、細胞成分(CC)、分子機能(MF)に関連する上位10の用語は 図3Aに示されています。BPの機能は主にプラズミノーゲン活性化の調節、線維溶解析の調節、心細胞分化の正の調節、タンパク質結合の負の調節、心芽細胞分化を含みます。CC機能はセリン型エンドペプチダーゼ複合体、細胞-マトリックス接着に関与するタンパク質複合体、凝縮染色体、特異顆粒膜、PML体に関わります。MFは細胞骨格の構造的成分、超酸化物生成のNADPH酸化酵素活性化活性、分子内トランスフェラーゼ活性(リンホスホトランスフェラーゼ)、セリン型エキソペプチダーゼ活性、IgG結合を含みます(図3A)。KEGG解析の観点から、C-DEGは主にウイルス性心筋炎、不整脈性右心室心筋症、補体および凝固カスケード、前立腺がん、肥厚性心筋症、拡張型心筋症、アポトーシス、ファゴソーム、および小胞体におけるタンパク質処理などの重要な経路に関与していました(図3B)。
PPIネットワークの構築とハブ遺伝子スクリーニング
32のC-DEGのうち、3つの遺伝子はSTRINGデータベース内の他のC-DEGとの既知の相互作用を示しず、PPIネットワーク構築から除外されました。STRINGプラットフォームは残りの29個のC-DEGのPPI解析に用いられ、29ノードと39個のエッジからなるネットワークが明らかになり、Cytoscapeを用いて可視化されました(図4A)。その後、連結度に基づいて8つのハブC-DEG(HSP90B1、PLAU、SLPI、TOP3A、NCF4、PRF1、TUBA1C、CS)が特定されました(図4B)。
免疫細胞浸透の違いとハブC-DEGとの相関
本解析はT2DMデータセット(GSE78721)のみに焦点を当て、T2DMとハブ遺伝子との関係の文脈における免疫微小環境の変化を予備的に調査しました。バイオリンプロットを用いて、T2DMデータセットと22種類の免疫細胞の浸潤レベルとの関係を可視化しました(図5A;詳細は 補足表3参照)。免疫細胞浸潤解析では、T2DM群で活性化樹状細胞の割合が対照群より高く(P = 0.049)、一方でT2DM群では安静状態の樹状細胞の割合が有意に低かった(P = 0.023)。さらに、8つのハブC-DEGの発現レベルと22種類の異なる免疫細胞タイプの浸潤レベルとの関係をヒートマップ(図5B)を用いて可視化しました。特に、TOP3A発現は調節T細胞(Tregs)の浸潤レベルと強い正相関を示しました(P < 0.001)、SLPI発現はガンマデルタT細胞浸潤と強い正相関を示しました(P < 0.001)。逆に、NCF4発現は活性化されたNK細胞の浸潤レベルと強い負の相関を示しました(P < 0.001)、PRF1発現はM2マクロファージの浸潤レベルと強い負の相関を示しました(P < 0.001)、PLAU発現は未生B細胞の浸潤レベルと強い負の相関を示しました(P < 0.001)。
ハブC-DEGの候補薬剤標的ネットワーク
8つのハブC-DEGのうち、CSおよびTOP3AはDGIdbデータベースの既知の薬剤標的として記載されておらず、その後の候補薬剤標的ネットワーク解析から除外されました。T2DMおよびASCVDにおける治療的役割を果たす可能性のある薬剤を特定するため、残りの6つのハブC-DEGはDGIdbデータベースに提出されました(詳細は補足表4参照)。その後、CytoscapeはハブC-DEGと候補標的薬剤との関連を示す候補薬物標的ネットワークを構築するために用いられました(図6)。このネットワークは6つのハブC-DEGs、136の分子薬物、137のエッジで構成されていました。具体的には、TUBA1C、NCF4、PRF1、SLPI、HSP90B1、PLAUに対してそれぞれ82、5、3、4、42の候補標的薬剤が同定され、その大多数は抗腫瘍薬、抗炎症薬、抗血栓薬に分類されました。
ハブC-DEGs表現の検証
DGIdbデータベースにCSおよびTOP3Aが候補薬剤標的として存在せず、またそれらの生物学的機能がT2DMおよびASCVD研究の治療戦略と直接的に関連していないため、本研究は残りの6つのハブC-DEGs(HSP90B1、PLAU、SLPI、NCF4、PRF1、TUBA1C)を実験的検証のために集中させました。これらのハブC-DEGの役割をさらに探るために、qRT-PCRおよびウェスタンブロットアッセイを実施し、異なるグループ間でコア遺伝子の発現レベルを評価しました(図7および 図8)。TUBA1C、NCF4、SLPI、HSP90B1、PLAUの発現レベルは、T2DMおよびASCVD患者で健康な対照群と比較して有意にアップレギュレーションされ、PRF1発現はダウンレギュレーションされました。これらの発見は、これらのコア遺伝子がT2DMおよびASCVD患者の進行に重要な役割を果たす可能性を示唆しています。
データの利用可能性:本研究でバイオインフォマティクス解析に用いられた遺伝子発現データセットGSE78721およびGSE12288は、公開されているNCBI GEOデータベースから入手可能です。 本研究で生成された実験検証部分の生データは 補足ファイル1に提供されています。
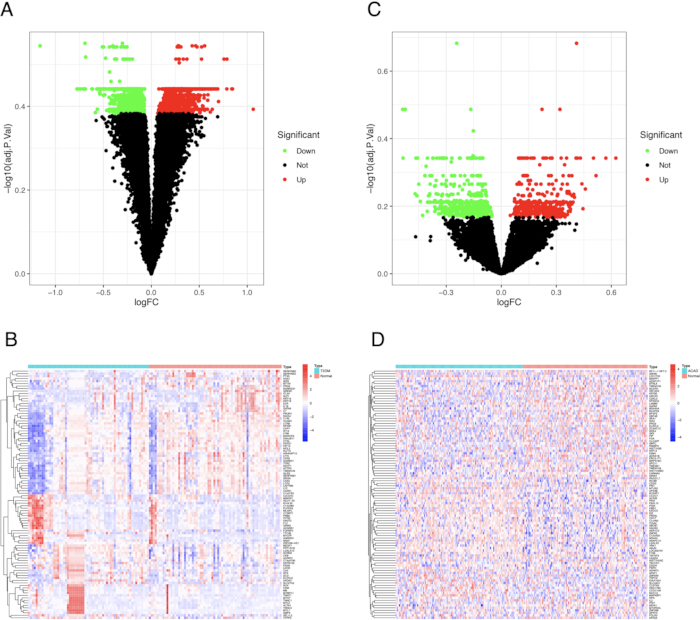
図1:データセットGSE78721およびGSE12288におけるDEGの同定。(A,C)それぞれGSE78721年とGSE12288年のDEGsの火山プロット。|logFC|≥ 0.5およびP < 0.05がスクリーニング閾値として定められました。アップレギュレーションされた遺伝子は赤、ダウンレギュレーションされた遺伝子は緑とマークされました。(B,D)GSE78721とGSE12288のトップ50 DEGのヒートマップです。この図の拡大版はこちらをクリックしてご覧ください。
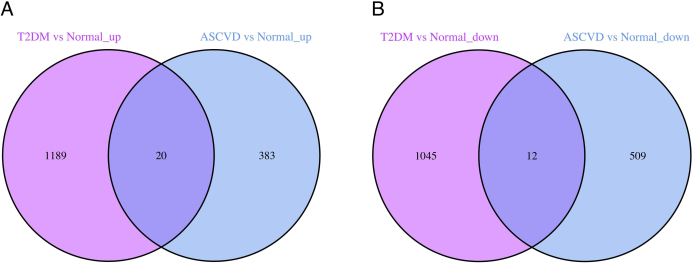
図2:2つのデータセットからのC-DEGのベン図。(A) GSE78721およびGSE12288データセットにおけるT2DMおよびASCVDによる上型C-DEGのベン図。(B) GSE78721およびGSE12288データセットにおけるT2DMおよびASCVDによるダウンレギュレーションされたC-DEGのベン図。 この図の拡大版はこちらをクリックしてご覧ください。
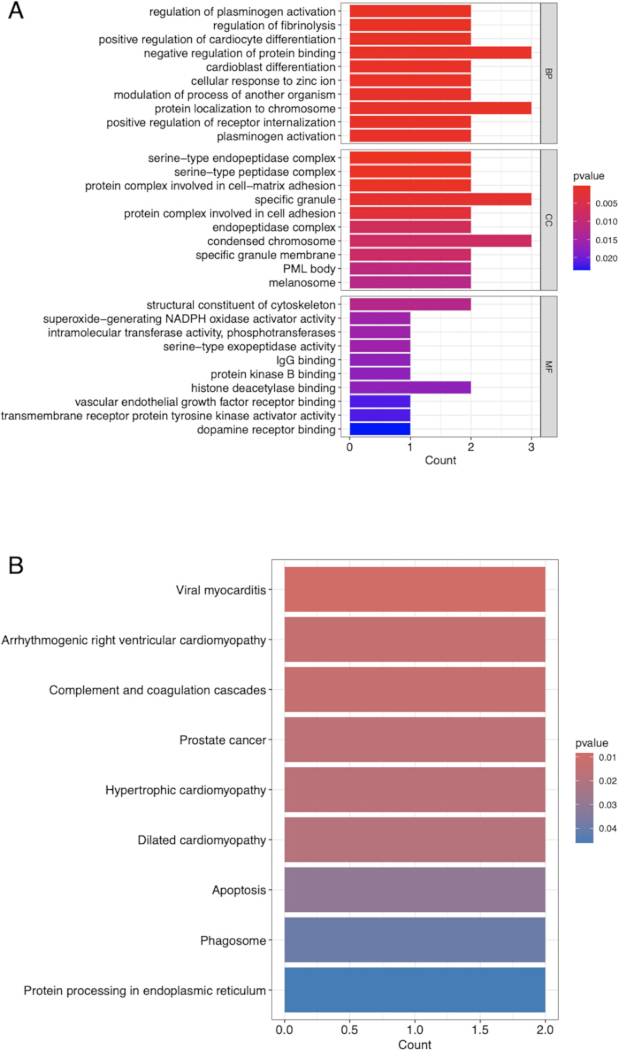
図3:C-DEGの機能的および経路富集解析。GO(A)およびKEGG(B)の濃縮解析の棒グラフ。垂直座標は異なるGO項目やKEGG経路の記述を示し、水平座標は濃縮されたC-DEGの数を示します。 この図の拡大版はこちらをクリックしてご覧ください。
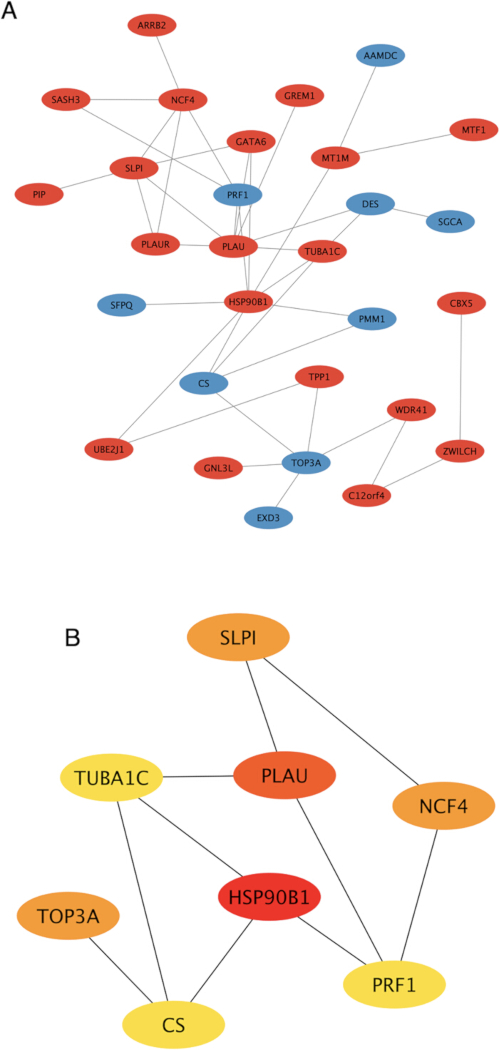
図4:C-DEGのPPIネットワークおよびハブ遺伝子スクリーニング。(A) C-DEGのPPIネットワーク。赤と青はそれぞれ上位・ダウンレギュレーションされたC-DEGを表します。(B) C-DEGの中から8つのハブ遺伝子が同定されました。ノードはC-DEGを表し、エッジはC-DEG間の相互作用を表します。 この図の拡大版はこちらをクリックしてご覧ください。
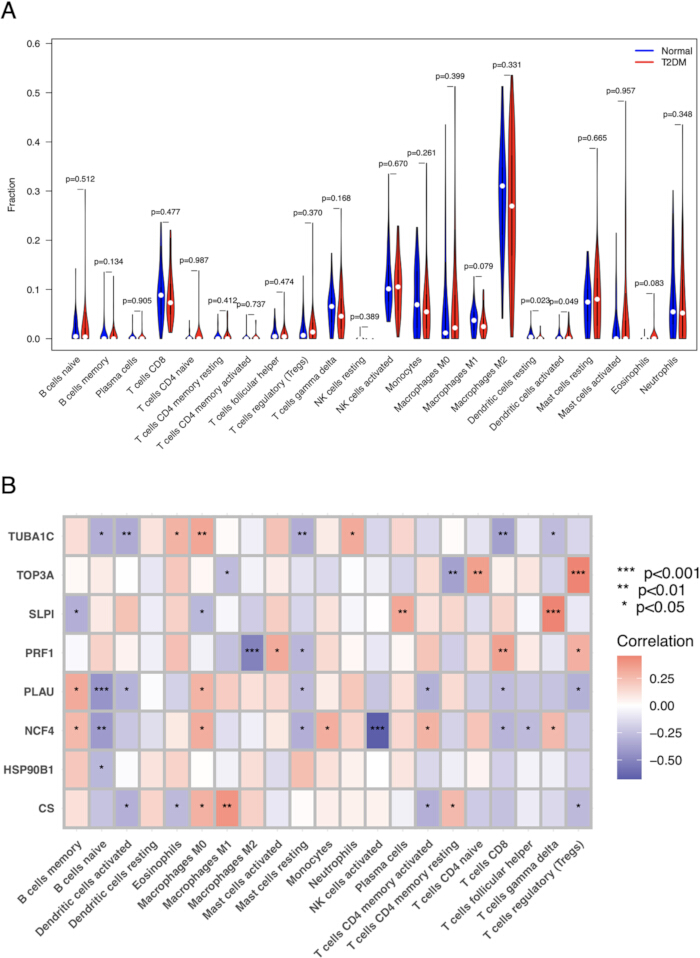
図5:免疫細胞浸潤解析。(A) T2DM群と対照群間の22種類の免疫細胞の浸潤の違い。水平軸:免疫細胞の亜型;縦軸:免疫細胞の相対浸潤レベル。(B) 8つのハブC-DEGの発現と22種類の免疫細胞の浸潤レベルの相関ヒートマップ。赤い四角:正の相関;青い四角:負の相関。色が濃いほど相関が強いことを示します。 この図の拡大版はこちらをクリックしてご覧ください。
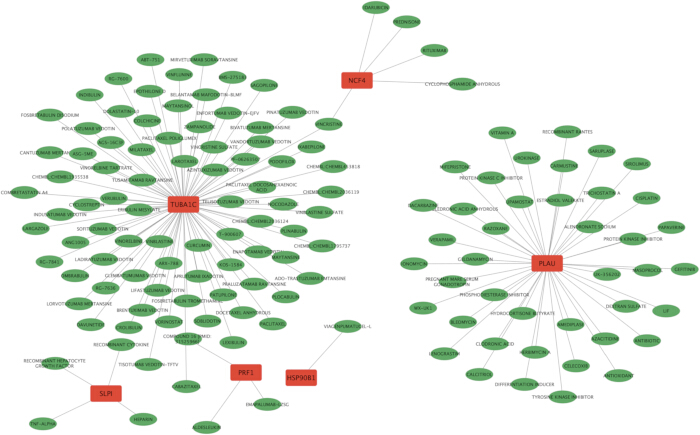
図6:6つのハブC-DEGの候補薬剤標的ネットワーク。赤いノードはハブC-DEGを表し、緑のノードは候補標的薬剤、それらの間のエッジは相互作用ペアを表します。 この図の拡大版はこちらをクリックしてご覧ください。
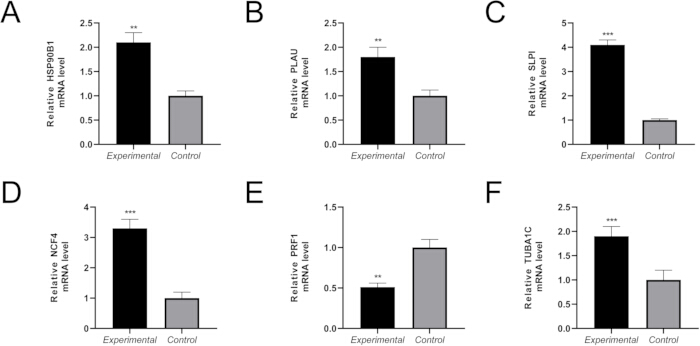
図7:qRT-PCRによるT2DMおよびASCVD患者におけるコア遺伝子発現の検証。qRT-PCRにより、HSP90B1(A)、PLAU(B)、SLPI(C)、NCF4(D)、PRF1(E)、TUBA1C(F)のmRNA発現レベルを検出しました。 この図の拡大版はこちらをクリックしてご覧ください。
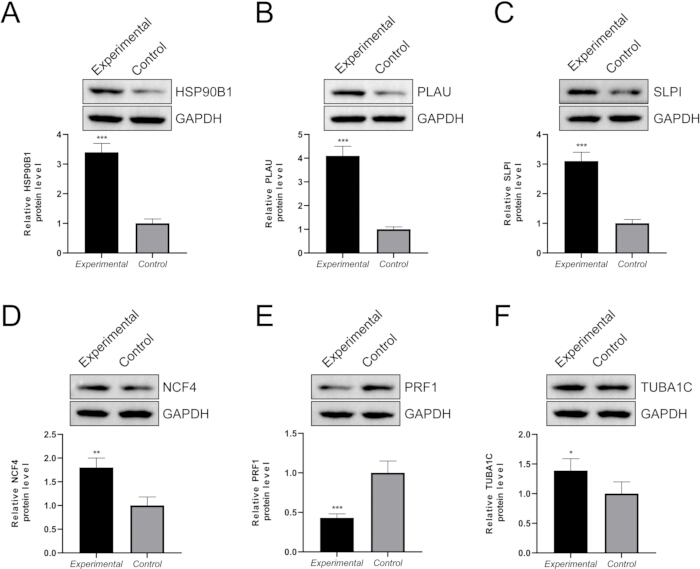
図8:ウェスタンブロットによるT2DMおよびASCVD患者におけるコア遺伝子発現の検証。ウェスタンブロットアッセイにより、HSP90B1(A)、PLAU(B)、SLPI(C)、NCF4(D)、PRF1(E)、TUBA1C(F)のタンパク質発現レベルを検出しました。 この図の拡大版はこちらをクリックしてご覧ください。
補足表1。 本研究のT2DMトランスクリプトミクス解析に使用されたGSE78721データセットの遺伝子発現マトリックス。このファイルをダウンロードするには、こちらをクリックしてください。
補足表2。 本研究のASCVDトランスクリプトミクス解析に使用されるGSE12288データセットの遺伝子発現マトリックス。このファイルをダウンロードするには、こちらをクリックしてください。
補足表3:GSE78721データセットにおける免疫細胞浸透解析。このファイルをダウンロードするには、こちらをクリックしてください。
補足表4:ハブ共通差発遺伝子の候補薬剤-標的相互作用。このファイルをダウンロードするには、こちらをクリックしてください。
補足ファイル1:本研究で生成された実験検証部分の生データ。このファイルをダウンロードするには、こちらをクリックしてください。
ディスカッション
T2DMとASCVDは複雑な疾患であり、両者の間に有意な関連性を示す新たな証拠が示されています。インスリン抵抗性は、T2DMを含むさまざまな心血管代謝異常の重要な前駆体であり、これらがASCVDの発症に寄与し、予後に影響を与える可能性があります。6,7。さらに、DMは動脈硬化20の進行にも関与しています。T2DMの患者はCAD21のリスクが高まりますが、併存症の根本的なメカニズムについては疑問が残ります。本研究は、これら二つの疾患の関係とメカニズムを探るとともに、バイオインフォマティクス解析と実験的検証を通じて潜在的なバイオマーカーを特定することを目的としています。
本研究では、T2DMとASCVDの間で合計32のC-DEGが同定され、そのうち20のアップレギュレーション遺伝子と12のダウンレギュレーション遺伝子が含まれていました。GOおよびKEGGの濃縮解析により、これらのC-DEGは主にCADおよびT2DMに密接に関連する重要な代謝経路で濃縮されていることが明らかになりました22,23。8つのハブC-DEG(HSP90B1、PLAU、SLPI、TOP3A、NCF4、PRF1、TUBA1C、CS)が2つの条件でスクリーニングされました。特に、ハブC-DEG(TOP3A、SLPI、NCF4、PRF1、PLAU)は免疫細胞の浸潤レベルと有意に関連していました。HSP90B1がん進行に関与していることが示されており、T2DM25とも関連している可能性があります。PLAUはT2DMに関連する早期血管老化の予防に関与することが示されており、動脈硬化性プラークの進行に重要な役割を果たし、早期警告バイオマーカーの知見やCAD進行のメカニズム解明に寄与しています。SLPIの発現は進行性代謝機能障害とともに増加し、C-DEGとしてグルコース耐性障害およびT2DMと関連付けられている。NCF4はCAD30との関連を確立し、NADPH酸化酵素活性およびインフラマソーム活性化の調節に寄与しています。PRF1は免疫モニタリングと調節において重要な役割を果たしており、診断力を有し、心筋梗塞と安定したCADを区別する能力を持っています。さらに、PRF1は肥満関連インスリン抵抗性において重要な免疫調節の役割を果たします34。TUBA1Cはがんとも関連しており、腫瘍微小環境内の免疫浸潤とも関連しています。これは冠動脈性心疾患の感受性遺伝子として特定されています。しかし、ASCVDとT2DMの関係はまだ十分に解明されていません。
KEGG解析により、これらの候補遺伝子が「補体および凝固カスケード」や「小胞体におけるタンパク質処理」などの経路に関与していることが明らかになりました。これらの経路内の主要遺伝子、特に線維分解と凝固に関与するセリンプロテアーゼであるPLAUおよびHSP90B1(小胞体シャペロン)の実験的検証により、当モデルのT2DMモデルにおける調節異常が確認されました。これらの発見は、私たちの研究を特定の分子的枠組みの中に位置づけ、小胞体ストレス応答や血栓溶解経路の不均衡が糖尿病病理に不可欠であり、広く認識されている炎症過程を超えて及んでいる可能性を示唆しています。
広範な研究により、糖尿病患者における免疫応答の機能障害が記録されています。異常な免疫細胞活性化はT2DMの進行において重要な役割を果たします38,39。免疫浸潤解析では、T2DMにおける樹状細胞区画に有意な変化が認められ、活性化樹状細胞の割合が増加し、安静状態の樹状細胞が減少することが特徴となりました(図5A)。これはT2DMにおける抗原提示と免疫活性化の強化状態を示し、標的組織における慢性炎症損傷に寄与している可能性があります。さらに、特定のハブ遺伝子(例:活性化されたNK細胞とNCF4、M2マクロファージとPRF1)間の強い相関が観察されており(図5B)、代謝組織における遺伝子発現と局所免疫微小環境構成との機構的関連を示唆し、免疫調節介入の新たな標的を特定しています。
さらに、T2DMおよびASCVDの治療対象、基礎メカニズム、薬剤を予測するために薬物標的ネットワーク解析も実施されました。この候補薬剤標的ネットワークは、6つのハブC-DEGs、136の分子ドラッグ、137のエッジを含んでいました。解析の結果、TUBA1C、NCF4、PRF1、SLPI、HSP90B1、PLAUに対してそれぞれ82、5、3、4、1、42の候補標的薬剤が検出されました。これらの薬の大半は、抗腫瘍薬、抗炎症薬、抗血栓薬に分類されています。特に、リツキシマブ、プレドニゾン、抗酸化剤、ベラパミル、抗生物質、コルヒチン、ヘパリンなどは、T2DM 15,40,41,42,43,44,45,46およびCAD 15,47,48,49,50の両疾患で治療効果を示している。 51,52,53,54,55であり、T2DMおよびCAD患者における治療効果の可能性を示しています。さらに、アレンドロネートナトリウム、カルシトリオール、セレコキシブ、マソプロコール、ミフェプリストーン、クルクミンなどの複数の薬剤が、T2DM 56,57,58,59,60,61,62,63において治療的機能を示すことが示されていますASCVDにも有益である可能性があります。これらのハブC-DEGのT2DMおよびASCVDにおける発現の検証も実施されました。
この研究にはいくつかの制限があります。第一に、検証実験内の臨床サンプルサイズが不十分であり、拡大すべきです。第二に、T2DMとASCVDの関連性について貴重な洞察を提供するためにさらなる実験的研究が必要です。今後の研究では、より大規模な臨床コホートでの検証や、これら二つの疾患を結ぶ分子メカニズムと病理経路を解明するためのより包括的な実験研究の実施が予定されています。実験検証セクションでは、T2DMおよびASCVD患者のサンプルを統合し、健康な対照群と比較しました。この設計は併存疾患における同定されたコアC-DEGsの全体的な発現変化の検証を容易にしましたが、これらの発現変化がT2DM、ASCVDに特有なのか、あるいは両者に共有されるのかを区別していません。今後の研究では、T2DM患者、ASCVD患者、ASCVD併存のT2DM患者群を比較し、これらの遺伝子が個々の疾患と併存状態における特定の役割をより正確に明確にするべきです。さらに、免疫細胞浸透解析はT2DMデータセット(GSE78721)のみで行われ、ASCVDデータセット(GSE12288)では並行して行われていません。したがって、ハブC-DEGと免疫細胞浸潤レベル(例:TregsのTOP3A、ガンマデルタT細胞とのSLPIの相関)の報告は、T2DMの病理的文脈における潜在的な免疫調節役割のみを反映しています。もう一つの制約は、予測される薬物-標的相互作用の機能的検証が不十分であることです。今後の研究では、結合親和性を評価する分子ドッキングシミュレーションや、動物モデルを用いた 生体内 実験を組み合わせてこれらの候補薬剤の治療効果を評価するべきです。
結論として、この統合バイオインフォマティクス解析は予備的な実験的検証を補完し、T2DMとASCVD間の複数の共有ハブ遺伝子および経路を特定し、これらの遺伝子を標的とする潜在的な薬剤候補を提案しました。これらの発見は、T2DMとASCVDの複雑な相互作用のさらなるメカニズム的かつ治療的探求のための新しい仮説と候補標的を提供します。
開示事項
著者たちは競合する利害関係を一切認めていない。
謝辞
著者らは、寧夏自然科学基金プログラム(助成金番号2023AAC03498)および銀川科学技術イノベーションプロジェクト(助成金番号2024SF005)からの資金支援に感謝いたします。また、著者たちはこの研究を可能にしたすべての参加者と研究者に感謝します。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| Anti-HSP90B1 | Abcam | ab238126 | |
| Anti-NCF4 | Proteintech | 14648-1-AP | |
| Anti-PLAU | Proteintech | 17968-1-AP | |
| Anti-PRF1 | Abcam | ab256453 | |
| Anti-SLPI | Abcam | ab46763 | |
| Anti-TUBA1C | Abcam | ab222849 | |
| CIBERSORT | Stanford University | https://cibersortx.stanford.edu | |
| clusterProfiler (R パッケージ) | Bioconductor | http://www.bioconductor.org/packages/release/bioc/html/clusterProfiler.html | |
| CytoHubba (Cytoscape プラグイン) | Cytoscape Consortium | https://apps.cytoscape.org | |
| Cytoscape (バージョン 3.9.1) | Cytoscape Consortium | http://cytoscape.org/ | |
| DGIdb (Drug-Gene Interaction Database) | Washington University | http://www.dgidb.org/ | |
| Enhanced chemiluminescent (ECL) 基質 | Thermo Fisher Scientific | 34080 | |
| enrichplot (R パッケージ) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/enrichplot.html | |
| Gel イメージングシステム | Bio-Rad | ChemiDox XRS | |
| GEO データベース (データセット: GSE78721, GSE12288) | NCBI | https://www.ncbi.nlm.nih.gov/geo/ | |
| ggplot2 (R パッケージ) | CRAN | https://ggplot2.tidyverse.org | |
| GOplot (R パッケージ) | CRAN | https://cran.r-project.org/web/packages/GOplot/index.html | |
| GraphPad Prism(バージョン 9.1.2) | GraphPad Software | https://www.graphpad.com/scientific-software/prism/ | |
| limma (R パッケージ) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/limma.html | |
| ローディングバッファー | Bio-Rad | 1610737 | |
| org.Hs.eg.db (R パッケージ) | Bioconductor | https://bioconductor.org/packages/release/data/annotation/html/org.Hs.eg.db.htm | |
| PVDF 膜 | Bio-Rad | 1620177 | |
| R ソフトウェア (バージョン 4.0.2) | R Foundation | https://www.r-project.org/ | |
| リアルタイム PCR システム | Bio-Rad | CFX-96 | |
| 逆転写システムキット | Takara | D6110A | |
| scales (R パッケージ) | CRAN | https://CRAN.R-project.org/package = scales | |
| SDS-PAGE ゲル | Bio-Rad | 4561085 | |
| 二次抗体 | Abcam | ab6721 | |
| STRING データベース | STRING Consortium | https://string-db.org/ | |
| SYBR-green PCR マスターミックス | Vazyme Biotech | Cat #Q311-02 | |
| tidyverse (R パッケージ) | CRAN | https://cran.r-project.org/web/packages/tidyverse/index.html | |
| Trans-Blot 転移システム | Bio-Rad | 1704150 | |
| TRIzol 試薬 | Thermo Fisher Scientific | #1559602 |
参考文献
- Artasensi A, Pedretti A. Type 2 diabetes mellitus: a review of multi-target drugs. Molecules. 2020;25(8):1986.
- Saeedi P, Petersohn I, Salpea P, Malanda B, Karuranga S, Unwin N, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Chatterjee S, Khunti K, Davies MJ. Type 2 diabetes. Lancet. 2017;389(10085):2239-2251.
- Wu J, Yang K, Fan H, Wei M, Xiong Q. Targeting the gut microbiota and its metabolites for type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2023;14:1114424.
- Holman N, Young B, Gadsby R. Current prevalence of Type 1 and Type 2 diabetes in adults and children in the UK. Diabet Med. 2015;32(9):1119-1120.
- Mancusi C, de Simone G. Myocardial mechano-energetic efficiency and insulin resistance in non-diabetic members of the Strong Heart Study cohort. Cardiovasc Diabetol. 2019;18(1):56.
- Hill MA, Yang Y, Zhang L, Sun Z, Jia G, Parrish AR, et al. Insulin resistance, cardiovascular stiffening and cardiovascular disease. Metabolism. 2021;119:154766.
- Trigka M, Dritsas E. Long-term coronary artery disease risk prediction with machine learning models. Bioengineering (Basel). 2023;23(3):1193.
- Nowbar AN, Gitto M, Howard JP, Francis DP, Al-Lamee R. Mortality from ischemic heart disease. Circ Cardiovasc Qual Outcomes. 2019;12(6):005375.
- Mensah GA, Roth GA, Fuster V. The global burden of cardiovascular diseases and risk factors: 2020 and beyond. J Am Coll Cardiol. 2019;74(20):2529-2532.
- Tian R, Liu H, Feng S, Wang H, Wang Y, Wang Y, et al. Gut microbiota dysbiosis in stable coronary artery disease combined with type 2 diabetes mellitus influences cardiovascular prognosis. Nutr Metab Cardiovasc Dis. 2021;31(5):1454-1466.
- Ma CX, Ma XN, Guan CH, Li YD, Mauricio D, Fu SB. Cardiovascular disease in type 2 diabetes mellitus: progress toward personalized management. Cardiovasc Diabetol. 2022;21(1):74.
- Mohammadnia N, Los J, Opstal TSJ, Fiolet ATL, Eikelboom JW, Mosterd A, et al. Colchicine and diabetes in patients with chronic coronary artery disease: insights from the LoDoCo2 randomized controlled trial. Front Cardiovasc Med. 2023;10:1244529.
- Einarson TR, Acs A, Ludwig C, Panton UH. Prevalence of cardiovascular disease in type 2 diabetes: a systematic literature review of scientific evidence from across the world in 2007-2017. Cardiovasc Diabetol. 2018;17(1):83.
- Huang J, Li N, Li Z, Hou XJ, Li ZZ. Low-dose unfractionated heparin with sequential enoxaparin in patients with diabetes mellitus and complex coronary artery disease during elective percutaneous coronary intervention. Chin Med J (Engl). 2018;131(7):764-769.
- Knuuti J, Wijns W, Saraste A, Capodanno D, Barbato E, Funck-Brentano C, et al. 2019 ESC Guidelines for the diagnosis and management of chronic coronary syndromes. Eur Heart J. 2020;41(3):407-477.
- Song S, Yu J. Identification of the shared genes in type 2 diabetes mellitus and osteoarthritis and the role of quercetin. J Cell Mol Med. 2024;28(4):18127.
- Castillo-Velázquez R, Martínez-Morales F, Castañeda-Delgado JE, García-Hernández MH, Herrera-Mayorga V, Paredes-Sánchez FA, et al. Bioinformatic prediction of the molecular links between Alzheimer's disease and diabetes mellitus. PeerJ. 2023;11:14738.
- Zhang J, Zhang FJ, Zhang L, Xian DX, Wang SA, Peng M, et al. Identification of key genes and molecular pathways in type 2 diabetes mellitus and polycystic ovary syndrome via bioinformatics analyses. Eur Rev Med Pharmacol Sci. 2023;27(8):3255-3269.
- Sun H, Ma X, Ma H, Li S, Xia Y, Yao L, et al. High glucose levels accelerate atherosclerosis via NLRP3-IL/MAPK/NF-κB-related inflammation pathways. Biochem Biophys Res Commun. 2024;704:149702.
- Hasbani NR, Westerman KE. Type 2 diabetes modifies the association of CAD genomic risk variants with subclinical atherosclerosis. Circ Genom Precis Med. 2023;16(6):004176.
- Vernon ST, Tang O, Kim T, et al. Metabolic signatures in coronary artery disease: results from the BioHEART-CT study. J Am Heart Assoc. 2021;10(5):019852.
- Colosimo S, Mitra SK, Chaudhury T, Marchesini G. Insulin resistance and metabolic flexibility as drivers of liver and cardiac disease in T2DM. Diabetes Res Clin Pract. 2023;206:111016.
- Huang X, Zhang W, Yang N, Zhang Y, Qin T, Ruan H, et al. Identification of HSP90B1 in pan-cancer hallmarks to aid development of a potential therapeutic target. Mol Cancer. 2024;23(1):19.
- Sims-Robinson C, Zhao S, Hur J, Feldman EL. Central nervous system endoplasmic reticulum stress in a murine model of type 2 diabetes. Diabetologia. 2012;55(8):2276-2284.
- Wan Y, Liu Z, Wu A, Khan AH. Hyperglycemia promotes endothelial cell senescence through AQR/PLAU signaling axis. Int J Mol Sci. 2022;23(5):2677.
- Song C, Qiao Z, Chen L, Ge J, Zhang R, Yuan S, et al. Identification of key genes as early warning signals of acute myocardial infarction based on weighted gene correlation network analysis and dynamic network biomarker algorithm. Front Immunol. 2022;13:879657.
- López-Bermejo A, Ortega FJ, Castro A, Ricart W, Fernández-Real JM. The alarm secretory leukocyte protease inhibitor increases with progressive metabolic dysfunction. Clin Chim Acta. 2011;412(11-12):1122-1126.
- Songtao Y, Fangyu L, Jie C, Li Y. Identification of claudin-2 as a promising biomarker for early diagnosis of pre-diabetes. Front Pharmacol. 2024;15:1370708.
- Wang Y, Liu T, Liu Y, Chen J, Xin B, Wu M, et al. Coronary artery disease associated specific modules and feature genes revealed by integrative methods of WGCNA, MetaDE and machine learning. Gene. 2019;710:122-130.
- Li L, Mao R, Yuan S, Xie Q, Meng J, Gu Y, et al. NCF4 attenuates colorectal cancer progression by modulating inflammasome activation and immune surveillance. 2024;15(1):5170.
- Chen J, Yu L, Zhang S, Chen X. Network analysis-based approach for exploring the potential diagnostic biomarkers of acute myocardial infarction. Front Physiol. 2016;7:615.
- Zhang L, Wang Q, Xie X. Identification of biomarkers related to immune cell infiltration with gene coexpression network in myocardial infarction. Dis Markers. 2021;2021:2227067.
- Revelo XS, Tsai S, Lei H, Luck H, Ghazarian M, Tsui H, et al. Perforin is a novel immune regulator of obesity-related insulin resistance. Diabetes. 2015;64(1):90-103.
- Zou Y, Wang G. Comprehensive multiomic analysis identified TUBA1C as a potential prognostic biological marker of immune-related therapy in pan-cancer. 2022;2022:9493115.
- Yan X, Huang Y, Wu J. Identify cross talk between circadian rhythm and coronary heart disease by multiple correlation analysis. J Comput Biol. 2018;25(12):1312-1327.
- Rubinstein MR, Genaro AM, Wald MR. Differential effect of hyperglycaemia on the immune response in an experimental model of diabetes in BALB/cByJ and C57BL/6J mice: participation of oxidative stress. Clin Exp Immunol. 2013;171(3):319-329.
- Donath MY, Shoelson SE. Type 2 diabetes as an inflammatory disease. Nat Rev Immunol. 2011;11(2):98-107.
- Zhou J, Zhang X, Ji L. Identification of potential biomarkers of type 2 diabetes mellitus-related immune infiltration using weighted gene coexpression network analysis. 2022;2022:9920744.
- Su Z, Ma C, Zhao R, Jiang Y, Cai Y, Yong G, et al. Heterogeneity of circulating CXCR5−PD-1hi Tph cells in patients with type 2 and type 1 diabetes in the Chinese population. 2023;60(6):767-776.
- Banerjee M, Vats P. Reactive metabolites and antioxidant gene polymorphisms in type 2 diabetes mellitus. Redox Biol. 2014;2:170-177.
- Leh HE, Lee LK. Lycopene: a potent antioxidant for the amelioration of type II diabetes mellitus. 2022;27(7):2335.
- Wu X, Gong H, Hu X, Shi P, Cen H, Li C. Effect of verapamil on bone mass, microstructure and mechanical properties in type 2 diabetes mellitus rats. BMC Musculoskelet Disord. 2022;23(1):363.
- Chen YS, Weng SJ, Chang SH. Evaluating the antidiabetic effects of R-verapamil in type 1 and type 2 diabetes mellitus mouse models. PLoS One. 2021;16(8):e0255405.
- Chu L, Su D, Wang H. Association between antibiotic exposure and type 2 diabetes mellitus in middle-aged and older adults. 2023;15(5):1290.
- Guan J, Abudouaini H, Lin K, Yang K. Emerging insights into the role of IL-1 inhibitors and colchicine for inflammation control in type 2 diabetes. Diabetol Metab Syndr. 2024;16(1):140.
- Armitage JD, Montero C, Benner A, Armitage JO, Bociek G. Acute coronary syndromes complicating the first infusion of rituximab. Clin Lymphoma Myeloma. 2008;8(4):253-255.
- Ribichini F, Joner M, Ferrero V, Finn AV, Crimins J, Nakazawa G, et al. Effects of oral prednisone after stenting in a rabbit model of established atherosclerosis. J Am Coll Cardiol. 2007;50(2):176-185.
- Bastani A, Rajabi S, Daliran A, Saadat H, Karimi-Busheri F. Oxidant and antioxidant status in coronary artery disease. Biomed Rep. 2018;9(4):327-332.
- Sotoudeh Anvari M, Mortazavian Babaki M, Boroumand MA, Eslami B, Jalali A, Goodarzynejad H. Relationship between calculated total antioxidant status and atherosclerotic coronary artery disease. Anatol J Cardiol. 2016;16(9):689-695.
- Winniford MD, Jansen DE, Reynolds GA, Apprill P, Black WH, Hillis LD. Cigarette smoking-induced coronary vasoconstriction in atherosclerotic coronary artery disease and prevention by calcium antagonists and nitroglycerin. Am J Cardiol. 1987;59(4):203-207.
- Muhlestein JB. Antibiotic treatment of atherosclerosis. Curr Opin Lipidol. 2003;14(6):605-614.
- Nelson K, Fuster V, Ridker PM. Low-dose colchicine for secondary prevention of coronary artery disease: JACC review topic of the week. J Am Coll Cardiol. 2023;82(7):648-660.
- Fiolet ATL, Nidorf SM, Mosterd A, Cornel JH. Colchicine in stable coronary artery disease. Clin Ther. 2019;41(1):30-40.
- Aimo A, Pascual-Figal DA, Barison A, Cediel G, Vicente ÁH, Saccaro LF, et al. Colchicine for the treatment of coronary artery disease. Trends Cardiovasc Med. 2021;31(8):497-504.
- Ikeda T, Manabe H, Iwata K. Clinical significance of alendronate in postmenopausal type 2 diabetes mellitus. Diabetes Metab. 2004;30(4):355-358.
- Wang Y, Huang M, Xu W, Li F, Ma C, Tang X. Calcitriol-enhanced autophagy in gingival epithelium attenuates periodontal inflammation in rats with type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2022;13:1051374.
- Cheng S, So WY, Zhang D, Cheng Q, Boucher BJ, Leung PS. Calcitriol reduces hepatic triglyceride accumulation and glucose output through Ca2+/CaMKKβ/AMPK activation under insulin-resistant conditions in type 2 diabetes mellitus. Curr Mol Med. 2016;16(8):747-758.
- Tian F, Zhang YJ, Li Y, Xie Y. Celecoxib ameliorates non-alcoholic steatohepatitis in type 2 diabetic rats via suppression of the non-canonical Wnt signaling pathway expression. PLoS One. 2014;9(1):e83819.
- Reed MJ, Meszaros K, Entes LJ, Claypool MD, Pinkett JG, Brignetti D, et al. Effect of masoprocol on carbohydrate and lipid metabolism in a rat model of type II diabetes. Diabetologia. 1999;42(1):102-106.
- Fleseriu M, Biller BMK, Findling JW, Molitch ME, Schteingart DE, Gross C. Mifepristone, a glucocorticoid receptor antagonist, produces clinical and metabolic benefits in patients with Cushing's syndrome. J Clin Endocrinol Metab. 2012;97(6):2039-2049.
- Chuengsamarn S, Rattanamongkolgul S, Luechapudiporn R, Phisalaphong C, Jirawatnotai S. Curcumin extract for prevention of type 2 diabetes. Diabetes Care. 2012;35(11):2121-2127.
- Bozkurt O, Kocaadam-Bozkurt B. Effects of curcumin, a bioactive component of turmeric, on type 2 diabetes mellitus and its complications: an updated review. 2022;13(23):11999-12010.