2サンプルメンデルランダム化および媒介解析を用いて、本研究は橋本甲状腺炎に因果関係のある32の免疫細胞表現型と9種類の血漿代謝物を特定し、部分的なCD39+Treg-イソバレリルカルニチン(C5)-HT免疫代謝軸を支持します。予備的なフローサイトメトリーおよびメタボロミクスデータは、この経路と整合する初期の生物学的妥当性を提供します。
この記事について
サマリー
要約
橋本甲状腺炎(HT)は甲状腺の自己免疫疾患です。免疫細胞はその病因に関与していますが、その具体的な役割はまだ完全には解明されていません。免疫細胞形質(ebi-a-GCST90001391からebi-a-GCST90002121)、血漿代謝物(GCST90199621-9020102)、HT(ebi-a-GCST90018855)に関する大規模な公開データセットからのゲノムワイド関連研究(GWAS)要約統計を統合した2標本メンデルランダム化(MR)解析を実施しました。因果効果は、MR-Egger、加重中央値、リーブワンアウト解析を用いて多面性および堅牢性を評価するために、逆分散加重(IVW)法を用いて推定しました。双方向および媒介型MR解析をさらに適用し、方向性の検証や代謝物介在経路の特定に用いられました。末梢血サンプルでCD3⁺CD4⁺CD25⁺CD39⁺Treg細胞をフローサイトメトリーを用いて定量しました。イソバレリルカルニチン(C5)は液体クロマトグラフィータンデム質量分析法で測定されました。IVW解析により、HTリスクと有意に関連する32の免疫細胞表現型が確認されました(FDR 矯正後のP<0.05)。逆MR解析では、HTが2つの免疫特性と正の因果関係を示し、4つの免疫特性(すべて P < 0.05)がHTと逆相関していることが示されました。感度解析では水平多面性や異質性は認められませんでした。さらに、IVW法はリスクを高めるC5(OR = 1.120、95% CI: 1.032-1.215, P = 0.006)および保護性エルゴチオネイン(OR = 0.958、95% CI: 0.927-0.990, P = 0.010)を含む9つの血漿代謝物をHTと因果関係として同定しました。2段階のMRメディエーションでは、C5がCD3⁺ CD39⁺ TregとHTを結びつける候補メディエーターとして特定されました(メディエーション比率8.89%、95%信頼区間:2.34%-15.4%、 P = 0.008)。フローサイトメトリーでは、HT患者でCD39/Treg値および血漿C5が上昇し、C5はCD39/Treg細胞の割合と正の相関を示しました。本研究は免疫細胞表現型とHTとの新たな因果関係を確立し、特にC5を中心とした血漿代謝物がHTの病因発生における潜在的な媒介因子であることを強調しています。これらの発見は自己免疫性甲状腺疾患のメカニズム的理解を深め、今後のバイオマーカーや治療標的の発見を指針とする可能性があります。
概要
橋本甲状腺炎(HT)は、免疫系が甲状腺を攻撃し、甲状腺機能低下症を引き起こす一般的な自己免疫疾患です。最近の研究では、HTの発生率が毎年着実に増加していると報告されています。中国では、その有病率は0.2%から1.3%の範囲と推定されています。HTの正確な原因は不明ですが、その病因には遺伝的、環境的、免疫系の複雑な相互作用が関与していると考えられています4,5。
HTの発症は免疫系に大きく影響されます 6,7,8。異常な免疫反応は甲状腺組織を標的とし、抗甲状腺ペルオキシダーゼ(抗TPO)や抗甲状腺素(抗Tg)を含む自己抗体の産生を引き起こします9。これらの自己抗体は甲状腺細胞と相互作用し、免疫媒介細胞死や炎症反応を引き起こし、甲状腺機能障害を引き起こします10。免疫細胞機能障害を引き起こす代謝の手がかりなど、特定の病原性経路はまだ完全には解明されていません。調節性T細胞(Treg)、特にCD39を発現する細胞は、細胞外ATPを加水分解して免疫抑制アデノシンに変換することで免疫寛容を維持する上で重要な役割を果たします。Tregの機能や代謝環境の乱れは自己耐性の崩壊を引き起こすことがありますが、特定のTregサブセットとHTの因果関係はまだ解明されていません。11,12,13,14,15,16。
従来の観察研究は交絡変数や逆因果の可能性により制限されることが多く、免疫細胞表現型とHT17の決定的な因果関係を特定するのが難しくなります。さらに、HTはさまざまな免疫サブセットや代謝中間体の影響を受ける全身性疾患であるため、個々の候補に狭く注目すると新たな病原性ドライバーを見落とす可能性があります。したがって、HTに寄与する免疫代謝因子の偏りのない包括的な状況を提供するためには、大規模なスクリーニングアプローチが必要です。ゲノムワイド関連研究(GWAS)の最近の進展により、免疫細胞表現型や血漿代謝物に関する包括的なデータが得られ、HT19の根本的なメカニズムを探る新たな道が開かれました。メンデルランダム化(MR)は、メンデル配偶子および自由結合のランダム割り当ての原則に従い、単一塩基多型(SNP)を計器変数(IV)として活用して曝露がアウトカムに与える潜在的な因果効果を推定します。この方法は、従来の観察研究をしばしば複雑にする交絡因子の影響や因果関係の逆転を緩和するのに役立ちます(16,22)。
これらの動きを踏まえ、本研究の目的は二つあります。まず、2サンプルMRフレームワークを用いて、731の免疫細胞表現型と1,400の血漿代謝物を体系的にスクリーニングし、新たな候補リスク因子を特定しました。次に、イソバレリルカルニチンなどの特定代謝物が調節T細胞とHTリスクを結びつける経路における特定の媒介的役割を評価する仮説駆動型調査へと移行しました。したがって、本研究は大規模なMRスクリーニングと媒介解析および予備的な臨床検証を統合し、推定される免疫代謝フレームワーク(Treg–代謝物–HT)と整合する遺伝的に裏付けられた証拠を提供するとともに、これらの発見の探索的性質を強調しています。これらの正確な因果連鎖を特定することで、甲状腺自己免疫の代謝調節に関する新たな視点が得られ、将来の治療的標的化のための有力な候補が示されます。
プロトコル
この研究は内モンゴル医科大学付属病院の医療倫理委員会によって承認されました。すべての手続きはヘルシンキ宣言および関連する倫理ガイドラインに従って実施されました。研究関連の手続き開始前に、すべての参加者から書面によるインフォームドコンセントが取得されました。この研究には、橋本甲状腺炎群(HT、n = 10)と健康な対照群(健康、n = 10)の2つのグループが含まれていました。2つのグループは年齢と性別でマッチングされました。すべての末梢血液サンプルは外来患者または定期健康診断を受ける個人から採取され、夜間断食後の朝に採血されました。
研究デザイン
本研究では、2サンプルMR解析と媒介解析を用いて、731の免疫細胞表現型(7グループ)とHTの因果関係を評価し、この関係における血漿代謝物の調節的役割の可能性を探りました。分析ワークフローは5つの連続したステップで構成されていました:(1) 免疫表現型の曝露GWASデータセットの選択;(2) HTのためのアウトカムGWASデータセットの選択;(3) 計器変数の識別と調和;(4) 一次2標本MR解析および双方向検証;および(5)二段階の媒介MR解析。研究デザインの概略的な概要は 補足図1に示されています。MR解析では、遺伝的変異が変化可能な曝露の代理指標として機能します。有効な因果推論のためには、計道変数(IV)が3つの基本的な基準を満たす必要があります:(1) 関心のある曝露と強く関連していること;(2) 露出や結果に影響を与える交絡因子とは独立している。(3) 結果は曝露自体によってのみ影響し、代替の因果経路は存在しない。
HTデータソースのGWAS
データセットの整合性を確保し、集団層化を最小限に抑えるために、すべてのGWAS要約統計は主にヨーロッパ系の個人から導き出されました。GWASデータベース(https://gwas.mrcieu.ac.uk/)がHTアウトカムデータを提供し、ebi-a-GCST90018855データセットが使用されました。本研究では、品質管理および補間後、395,640人のヨーロッパ人(N例 =15,654例、N例= 379,986)に対してGWASを実施し、24,146,037件のSNPが解析されました。HT特有の交絡因子(性別、年齢など)については、元のGWAS(ebi-a-GCST90018855)はこれらの共変量をモデルに含み、GWASパイプラインの標準として含まれていました。
免疫細胞のGWASデータソース
免疫細胞形質に関連するGWASの要約統計は、ebi-a-GCST90001391からebi-a-GCST90002121までの登録番号(https://www.ebi.ac.uk/gwas/ で公開)を含むデータセットから取得されました。分析には合計731の免疫表現型が含まれ、相対細胞数(n=192)、形態パラメータ(MP)(n=389)、活性化係数(AC, n = 118)、および表面抗原23の度を表す平均蛍光強度(MFI, n = 389)が含まれていました。サルデーニャ人の3757人の免疫細胞表現型に約2200万の多型が与えた影響は、初期のGWASによって免疫細胞に及ぼしたことが記録されました。
血漿代謝物に関するGWASデータソース
GWASカタログ(https://www.ebi.ac.uk/gwas/studies/GCST90199621-90201020)から合計1,400種類の血漿代謝物のGWAS要約データを取得し、1,091の個別代謝物濃度と309の代謝物比率形質を含みました。本研究でMR解析に用いられたGWASデータセットは、ヨーロッパ系の個人から派生しています。使用された血漿代謝物GWASデータの詳細な特徴は 補足表1に示されています。
免疫細胞表現型(サルデーニャ・コホート)、HT(FinnGen/EBI-a-GCST90018855)、血漿代謝物(ヨーロッパ・コホート)のGWASデータセットは、それぞれのコンソーシアムの出版物によって確認されており、サンプルの重複はなく独立しています。これは2標本MRの独立性仮定を満たします。
計器変数(IV)の選択
IVは曝露と強く関連していると仮定されつつ、結果変数とは独立していました。さらに、曝露因子のみが結果に直接影響を与えると仮定されました。適切なIVを特定するため、曝露因子に関連するSNPを有意水準5×10⁻⁸に設定して選択しました。連鎖不平衡(LD)を考慮するために、SNPは10,000キロベース(kb)のウィンドウサイズ内でR2 閾値0.001を用いて凝集されました。この距離内でペアワイズR2 >0.001を示すバリアントは除外し、選択された計器変数の独立性を確保し、LD相関の可能性を排除しました。異質性検定ではF統計量<10の有意な異質SNPを除外しました。最後に、IVに対する交絡因子の影響を制御するために、回文SNPおよび不適合SNPを除去するために P < 1×10⁻⁵ を用い、有効なSNPは計器変数として保持しました。
2標本メンデルランダム化解析
免疫細胞表現型とHTの双方向因果関係を評価するために、2標本メンデルランダム化(MR)解析および媒介MR解析の両方が実施されました。具体的には、2サンプルMRを用いて複数の免疫細胞関連形質を評価するために適用されました。これらの解析には、逆分散重み付け(IVW)24、MR-Egger回帰25、加重中央値推定量(WME)26、モードベース単純推定27、加重モードベース推定など、いくつかの補完的なMR手法が用いられました。その中で、IVWが主要な分析アプローチに指定され、統計的 有意< 0.05と定義されました。IVW法は、精度とバランスの取れた多面性の仮定との最適なバランスから、主要なMR推定量として選ばれました。IVW法は分散が小さいSNPにより大きな重みを割り当てることで精度を高め、より信頼性の高い因果推定を得られます。MR-エッガー回帰は多重性評価に用いられ、これは遺伝子が複数の表現型に影響を与える過程です。切片が有意な水平多面性(P > 0.05)なしを示した場合、このアプローチは多面性を測定するために切片評価を組み合わせたものであった。異質性はMR-Egger法およびIVW法のQ統計量を用いて評価されました。これは遺伝的変異が表現型にどの程度影響を与えるかを測るもので、 P > 0.05が遺伝的変異の影響に有意な異質性がないことを示した場合です。ボンフェローニ調整閾値を適用し、731の免疫表現型(P < 6.84 × 10⁻⁻)および1,400の代謝物(P < 3.57 × 10⁻⁻)を考慮しました。特に注意がない限り、重要な結果は修正を経ても存続しました。さらに、逆因果性を同じMR法で評価し、免疫細胞特性がHTの影響を受けるかどうかを調べました。逆MR試験では、HTが曝露因子とされ、異なる免疫細胞特性が結果として考慮されました。
本研究では、2段階のMRフレームワークを用いて媒介解析を行い、血漿代謝物が免疫細胞表現型とHTを結びつける因果経路の仲介者として機能するかどうかを調査しました。このアプローチにより、免疫細胞表現型のHTに対する因果全効果を、直接的な効果と、特定された代謝中間体を介して伝達される間接的な効果に分割できます。免疫細胞がHTに与える総効果が最初に推定され、その後、免疫細胞が代謝物(β1)に与える影響(β2)、およびメディエーター効果(β1×β2)が推定され、直接効果は総効果からメディエーター効果を引いたものとして計算されました。トータル効果(βトータル)=直接効果(β直接)+間接効果(β間接);間接効果 = β1 × β2;媒介率の割合(%) = (β1 × β2)/βtotalは100%×、β1は免疫細胞表現型が血漿代謝物に及ぼす因果効果、β2は血漿代謝物がHTに及ぼす因果作用です。デルタ法を用いて間接効果の95%信頼区間を推定しました。さらに、逆中間MR解析を実施し、HTが代謝物および免疫細胞に与える因果効果を調査し、順方向MRの結果を補完し因果推論の信頼性を高めました。すべての解析は統計計算環境と関連するMR関連ソフトウェアパッケージによって実施され、これらは 材料表に記載されています。
CD3+CD4+CD25+CD39+ Treg検出
抗凝固全血50μLを試管内で十分に混合し、CD3、CD4、CD25、CD39の標的モノクローナル抗体それぞれ10μLを投与しました。混合物は光から保護され、室温で15分間維持されました。その後、1:10希釈されたFACS溶解液2mLを追加しました。チューブは溶解中に光から保護されたまま室温でさらに10分間培養されました。チューブは~300 x g で5分間遠心分離し、上清液を除去しました。リン酸緩衝液(PBS)を2 mL追加した後、チューブは再び~300 x g で5分間遠心分離されました。上澄液を除去し、検出のために500μLのPBSを追加しました。検出はマルチレーザーフローサイトメーターを用いて行われ、付属の取得・解析ソフトウェアによって解析され、CD3+CD4+CD25+TregsおよびCD39発現サブセット(CD3+CD4+CD25+CD39+Tregs)を得ました。
イソバレリルカルニチン(C5)レベルの測定
患者のC5レベルに関するデータは、内モンゴル医科大学病院臨床検査部門から取得されました。具体的には、C5は標準化された検査手順と品質管理プロトコルに従い、通常の液体クロマトグラフィー-タンデム質量分析(LC–MS/MS)の一環として測定されました。
統計解析
すべての統計解析は統計ソフトウェア環境を使用して実施されました。正規分布データにはStudentの t検定 、非正規分布データにはWilcoxonランク和検定を用いて連続変数を比較しました。カテゴリ変数はカイ二乗検定を用いて分析しました。相関解析にはピアソン相関解析が用いられました。 p値<0.05は統計的に有意とされました。
結果
免疫細胞表現型がHTに与える遺伝的因果
交絡因子の除外および水平多面性(P > 0.05)の不在を踏まえ、免疫細胞表現型がHTリスクに与える因果効果を評価するために2標本MR解析が実施されました。曝露として用いられる各免疫細胞表現型について、F統計量を計算して計器変数の強さを評価しました。すべての機器が従来の閾値F>10を超え、弱い機器バイアスが最小限であることを示しました。本文で論じられている主要な免疫特性の詳細なF統計は補足表2に示されています。合計で32の免疫関連表現型がHTリスクと有意な関連を示しました(P < 0.05)(図1)。これらの発見の堅牢性は散布図解析(補足図2A,B)およびリーブワンアウト法を用いた感度解析(補足図3A,B)によって支持されました。
主要所見の中で、Treg表現型が最も広範な関与を示し、CD3のCD3がTregを分泌していました(OR = 1.063;95%信頼区間:1.023–1.105;P = 0.002)およびCD39+活性化Treg%活性化Treg(OR = 1.081;95%信頼区間:1.008–1.161;P = 0.030)が、その後メディエーション分析の優先順位付けがされた主要なリスク関連特徴として浮上しました。T細胞の成熟段階では、CM CD8brに対するCD3はリスク関連特徴の中で最も大きな効果を示しました(OR = 1.094;95%信頼区間:1.040–1.150;P < 0.001)、一方TD DN(CD4⁻CD8⁻)ACは顕著な保護関連を示しました(OR = 0.930;95%信頼区間:0.881–0.982;P = 0.009)。B細胞表現型において、HLA-DR発現骨髄細胞サブセットは一貫してリスクを高める効果を示し、CD33dim HLA DR+ CD11b⁻に対するHLA DRはOR = 1.095に達しました(95%CI: 1.032–1.162;P = 0.003)。6つの免疫細胞カテゴリー(cDC、Tレグ、T細胞成熟段階、TBNK、単球、B細胞、骨髄細胞の表現型)すべてにわたる完全な結果は図1にまとめられています。
感度分析により結果がさらに検証されました。関連する統計的評価に基づく異質性および水平多面性の有意な証拠は検出されなかった(補足表3および補足表4)。これらの結果は「リーブ・ワン・アウト」分析によって裏付けられました。
HTが免疫細胞に与える因果関係
その結果、HTは2つの免疫特徴と正の因果関係を持つことが明らかになりました。すなわち、分泌するCD4調節T細胞(1.143: 1.023-1.277;P = 0.018)および単球性骨髄由来抑制細胞(1.373: 1.058-1.782; P = 0.017)。対照的に、HTは4つの免疫特徴に負の因果関係を示しました。活性化されたCD4調節T細胞(0.818: 0.679-0.987; P = 0.036)、活性化されたCD4+調節T細胞(0.790: 0.676-0.924;P = 0.003)、活性化および安静状態のCD4調節T細胞(0.871: 0.780-0.974; P = 0.015)およびCD25++ CD4+ T細胞(0.855: 0.747-0.980; P = 0.017)(図2)。これらの発見は、HTとTreg活性化状態の間に相互関係があることを示唆しており、疾患による免疫再構築を反映している可能性があります。散布図(補足図4)および「リーブワンアウト法」(補足図5)により、結果の安定性が検証されました。感度解析も結果を検証しました。これらの結果の強さは、異質性と水平多重度の評価によって裏付けられました(補足表5 および 補足表6)。これらの結論は「リーブ・ワン・アウト」分析によって裏付けられています。
血漿代謝物がHTに与える遺伝的因果関係
適切な計測変数を選択し、連鎖の不均衡や弱い計器を除外した結果、血漿代謝物に関連する合計34,843のSNPが特定され、最小F統計量は19.50に達しました(補足表7)。IVW法を用いると、9種類の血漿代謝物がHTと因果関係であることが予備的に確認されました。そのうち4つの代謝物がHTリスク増加と正の関連を示しました:グルコース対マルトス比(1.195: 1.082-1.319; P < 0.001)、タウロコール酸(1.190: 1.073-1.321; P = 0.001)、5-ヒドロキシメチル-2-フロイルカルニチン(1.127: 1.046-1.215;P = 0.002)、およびC5(1.120: 1.032-1.215; P = 0.006)(表1)。
逆に、エルゴチオネインを含む5つの代謝物はHTのリスクと負の関連がある可能性があります(0.958: 0.927-0.990; P = 0.010)、カルニチンとプロピオニルカルニチン(C3)比率(0.895: 0.825-0.970; P = 0.007)、アデノシン5'-ジリン酸(ADP)とN-アセチルニューラミン酸の比率(0.890: 0.823-0.963; P = 0.004)、アルギニンとグルタミン酸の比率(0.882: 0.802-0.968; P = 0.009)、および1-(1-エニルパルミトイル)-2-リノレオイル-GPE(p-16:0/18:2)(0.873: 0.798-0.955; P = 0.003)。
感度解析も結果を検証しました。これらの結果の強さは、異質性と水平多重度の評価によって確認されました(補足表8 および 補足表9)。これらの結論は「リーブ・ワン・アウト」分析によって裏付けられています。
血漿代謝物による免疫細胞-HTリスクの媒介
既に特定された免疫細胞表現型および血漿代謝物を基に、2サンプルMR戦略を用いて潜在的な媒介効果を推定しました。第一段階では、32種類の免疫細胞表現型を曝露として、9種類の血漿代謝物をアウトカムとして用いてMR解析を行い、10種類の免疫細胞表現型と8種類の血漿代謝物に12の有意な因果関係が明らかになり、それに対応する効果推定は免疫細胞から代謝物へのβ1となりました。その中で、CD3がCD39+を分泌するTreg細胞とC5レベルとの関連が最も顕著であることが確認されました(1.050: 1.016-1.085; P = 0.004)。第二段階では、C5を曝露として、HTを結果として扱いました。MR解析を実施し、MR-PRESSOの外れ値検出や異質性および水平多面性の評価も行いました。外れ値SNPや異質性、多面性の証拠は検出されず(表2)、血漿代謝物からHT(β2)への因果効果を推定することができました(補足図6)。
MR解析の最終段階では、免疫細胞表現型の因果効果が血漿代謝物を介して媒介されているかどうかを明らかにするために媒介解析が行われました。結果は、C5のレベル上昇がCD39+分泌Treg細胞のCD3を結びつける経路の媒介者として作用し、HT発症リスクの増加を招いたことを示しました(補足図7および図3)。MR-PRESSOの外れ値検出、異質性、多面性検定では、バイアスされたSNPはなく、異質性や水平多面性の兆候も認められませんでした(表3、補足表10、補足表11)。その中で、C5レベルの媒介率は8.89%(2.34%から15.4%)でした(P = 0.008)。最後に、逆媒介MR解析を実施し、方向性仮定を厳密に検証しました。免疫細胞への代謝物については、逆MR(CD39+分泌中のTregでC5レベルをCD3に移行)は有意な因果効果を示さず(ボンフェローニ補正後のIVW P>0.05)、単方向性を支持しました(表4)。代謝物へのHTでは、逆MR(HTからC5レベルへの変換)で因果関連は認められず(ボンフェローニ補正後のIVW P >0.05)、仮定の方向性を支持しました(表5)。双方向MRにおける全体的な効果は控えめで相互エビデンスが見られないため、これらの媒介結果は探索的なものとみなすべきです。
フローサイトメトリーアッセイ CD3+CD4+CD25+CD39+ Treg検出
メタボロミクス解析の結果を検証するため、CD39+ Tregおよび血漿C5の発現特性を評価するin vitro実験検証が行われました。フローサイトメトリーを用いて、HT患者および健康対照群の末梢血中のTreg細胞(CD3⁺CD4⁺CD25⁺)およびそのCD39⁺サブセット(CD3⁺CD4⁺CD25⁺CD39⁺)を定量しました。図4A–Cに示されているように、Treg細胞(CD3⁺CD4⁺CD25⁺)およびCD39⁺ Tregサブセットは、健康な人と比較してHT患者で有意に上昇していました(P < 0.001)。タンデム質量分析を用いた標的血漿メタボロミクスプロファイリングでは、HT群でC5レベルが著しく高くなっていることが示されました(P < 0.001、図4D)。さらに、ピアソン相関解析により、血漿C5レベルとCD39⁺Tregサブセットの頻度との間に正の関連が示されており(図4E)、これはMRで特定された推定CD39⁺Treg-C5-HT経路と一致しています。しかし、断面設計とサンプルサイズの少ないため、これらのデータだけで因果推論を行うことは困難です。
データの利用可能性:
橋本甲状腺炎のゲノムワイド関連研究(GWAS)の要旨統計はGWASカタログ(ebi-a-GCST90018855; https://gwas.mrcieu.ac.uk/)から取得されました。免疫細胞形質の要約統計はGWASカタログ(ebi-a-GCST90001391からebi-a-GCST90002121; https://www.ebi.ac.uk/gwas/)から取得されました。血漿代謝物GWASデータはGWASカタログ(GCST90199621-GCST90201020; https://www.ebi.ac.uk/gwas/studies/GCST90199621-90201020)から取得されました。本研究の結果を裏付けるデータは 補足ファイル1に提供されています。
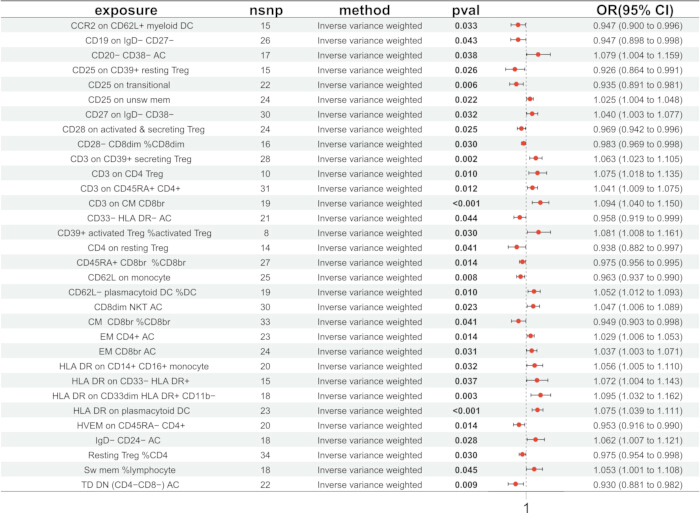
図1:フォレストプロットで、免疫細胞形質が橋本甲状腺炎に与える因果関係を示す。 本研究で評価されたすべての免疫細胞形質の橋本甲状腺炎(HT)に対する因果効果をまとめたフォレストプロット。略称:nsnp(単一塩基多型(SNP)の数;pval、P値;OR、オッズ比;信頼区間(CI)。この図の拡大版はこちらをクリックしてご覧ください。
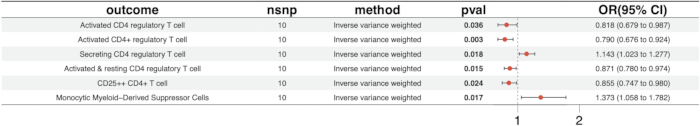
図2:橋本甲状腺炎が免疫細胞表現型に与える因果関係を示す森林プロット。 HTがさまざまな免疫細胞表現型に与える因果関係をまとめた森林プロット。略称:nsnp(SNPの数);pval、P値;OR、オッズ比;信頼区間(CI)。この図の拡大版はこちらをクリックしてご覧ください。
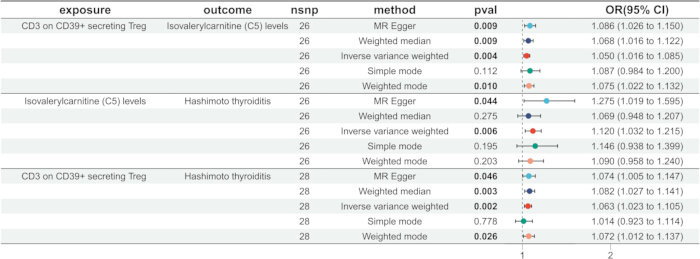
図3:CD39+と橋本甲状腺炎の間の血漿イソバレリルカルニチン(C5)の媒介効果を示す森林プロット。 CD39+とHTの関連を媒介する血漿C5の因果効果をまとめた森林プロット。略称:OR、オッズ比;信頼区間(CI)。この図の拡大版はこちらをクリックしてご覧ください。
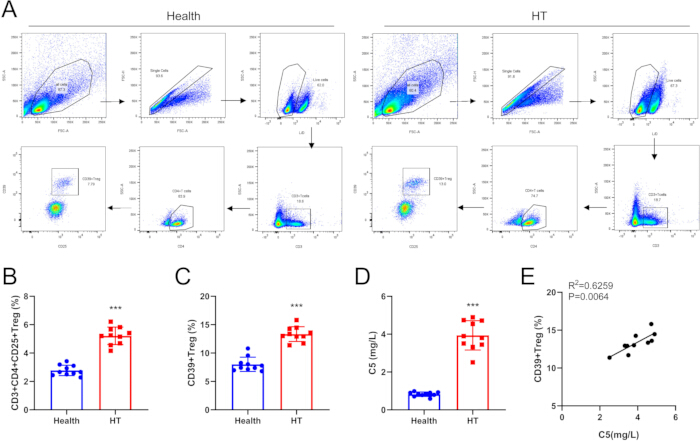
図4:橋本甲状腺炎患者におけるCD39+調節T細胞および血漿イソバレリルカルニチン(C5)レベルの発現。 (A) 調節T(T)に対するフローサイトメトリーゲーティング戦略;CD3+CD4+CD25+)細胞およびCD39+Treg細胞。(B) 総Treg細胞レベル。(C) CD39+ Treg細胞レベル。(D) 血漿イソバレリルカルニチン(C5)レベルをタンデム質量分析法で測定。(E) 血漿イソバレリルカルニチン(C5)レベルとCD39+ Treg細胞の割合とのピアソン相関解析。略称:SSC-A、サイド散乱領域;FSC-A、前方散乱領域;FSC-H、前方散乱高度。P < 0.001 と健康な対照群の比較。この図の拡大版はこちらをクリックしてご覧ください。
表1:橋本甲状腺炎に対する9種類の有意に関連する血漿代謝物の因果関係。 このファイルをダウンロードするには、こちらをクリックしてください。
表2:橋本甲状腺炎(β₂)に対するイソバレリルカルニチン(C5)レベルの因果関係 このファイルをダウンロードするには、こちらをクリックしてください。
表3:CD3+CD39+調節T細胞が橋本甲状腺炎に与える因果関係 このファイルをダウンロードするには、こちらをクリックしてください。
表4:イソバレリルカルニチン(C5)レベルがCD3+CD39+調節T細胞に与える因果関係。 このファイルをダウンロードするには、こちらをクリックしてください。
表5:橋本甲状腺炎がイソバレリルカルニチン(C5)レベルに与える因果関係 このファイルをダウンロードするには、こちらをクリックしてください。
補足図1:研究設計と分析ワークフロー。 このファイルをダウンロードするには、こちらをクリックしてください。
補足図2:32の免疫細胞形質と橋本甲状腺炎との関連の因果推定を示す散布図。 このファイルをダウンロードするには、こちらをクリックしてください。
補足図3:橋本甲状腺炎に対する32の免疫細胞形質の因果効果の堅牢性を評価するリーブワンアウト解析。 このファイルをダウンロードするには、こちらをクリックしてください。
補足図4:橋本甲状腺炎が6つの免疫細胞表現型に及ぼす原因を示す散布図。 このファイルをダウンロードするには、こちらをクリックしてください。
補足図5:橋本甲状腺炎の6つの免疫細胞表現型に対する因果的影響の堅牢性を評価するリーブワンアウト解析。 このファイルをダウンロードするには、こちらをクリックしてください。
補足図6:イソバレリカルニチン(C5)レベルと橋本甲状腺炎リスクとの因果関係。 (A) イソバレリルカルニチン(C5)レベルがHTリスク(β₂)に与える因果関係を示す森林プロット。(B) 各SNPの因果効果推定値を示す散布図。(C) C5レベルがHTリスクに与える影響に関するメンデルランダム化(MR)推定値の異質性を評価するファンネルプロット。(D) リーブワンアウト分析:全体のリスク推定値が個々のSNPによって大きく影響を受けていないことを示す。このファイルをダウンロードするには、こちらをクリックしてください。
補足図7:CD3+CD39+調節性T細胞と橋本甲状腺炎リスクとの因果関係。 (A) CD3+CD39+調節T細胞がHTリスクに与える総合因果効果を示すフォレストプロット。(B) 各SNPの因果効果推定値を示す散布図。(C) CD3+CD39+調節T細胞がHTリスクに与える影響のMR推定値の異質性を評価するファンネルプロット。(D) リーブワンアウト分析:全体のリスク推定値が個々のSNPによって大きく影響を受けていないことを示す。このファイルをダウンロードするには、こちらをクリックしてください。
補足表1:メンデルランダム化解析で用いられる血漿代謝物のゲノムワイド関連研究データセットの特徴。 このファイルをダウンロードするには、こちらをクリックしてください。
補足表2:メンデルランダム化解析における曝露として用いられる主要な免疫細胞表現型の計道変数(SNP)およびF統計量の特徴 このファイルをダウンロードするには、こちらをクリックしてください。
補足表3:橋本甲状腺炎における免疫細胞表現型のメンデルランダム化解析における多面性評価。 このファイルをダウンロードするには、こちらをクリックしてください。
補足表4:橋本甲状腺炎における免疫細胞表現型のメンデルランダム化解析における異質性評価。 このファイルをダウンロードするには、こちらをクリックしてください。
補足表5:橋本甲状腺炎のメンデル無作為化解析における多面性評価。 このファイルをダウンロードするには、こちらをクリックしてください。
補足表6:免疫細胞表現型における橋本甲状腺炎のメンデル無作為解析における異質性評価。 このファイルをダウンロードするには、こちらをクリックしてください。
補足表7:血漿代謝物に関連する単一塩基多型。 このファイルをダウンロードするには、こちらをクリックしてください。
補足表8:橋本甲状腺炎における血漿代謝物のメンデルランダム化解析における多数力評価。 このファイルをダウンロードするには、こちらをクリックしてください。
補足表9:橋本甲状腺炎における血漿代謝物のメンデルランダム化解析における異質性評価。 このファイルをダウンロードするには、こちらをクリックしてください。
補足表10:免疫細胞表現型–橋本甲状腺炎の関連性を血漿代謝物による媒介解析のための多数性評価。 このファイルをダウンロードするには、こちらをクリックしてください。
補足表11:血漿代謝物による免疫細胞表現型–橋本甲状腺炎との関連の媒介解析における異質性評価。 このファイルをダウンロードするには、こちらをクリックしてください。
補足ファイル1:本研究の知見を裏付けるデータ。このファイルをダウンロードするには、こちらをクリックしてください。
ディスカッション
本研究では、メンデルランダム化を用いて、免疫細胞表現型が橋本甲状腺炎(HT)に与える因果的影響を調査し、血漿代謝物の媒介的役割の可能性を探りました。樹状細胞、調節T細胞、T細胞成熟期、B細胞、骨髄細胞を含む32の免疫表現型がHTリスクと関連していることが判明し、リスク促進効果と保護効果の両方を持ちます。さらに、9種類の血漿代謝物はHTとの因果関係を示し、C5がCD39⁺分泌Treg細胞のCD3発現とHTの関連を部分的に媒介している可能性も観察しました。これらの発見は、直接的な機構的確認ではなく、遺伝的機器から推定される因果効果の証拠として解釈されるべきです。
cDC表現型では、CD62L-形質細胞質DC%DCおよびHLA DRが形質細胞質DC上でHTリスク増加と関連し、一方でCD62L+骨髄DC上のCCR2、CD39+活性化Treg%活性化Treg、CD62Lが単球で増加しました。特定の免疫細胞表現型とHTとの関連性は、疾患の病因に新たな洞察をもたらします。例えば、HTリスクはHLA DRの形質細胞質DCおよびCD62L型形質細胞質DCの特性と相関していることが判明し、これらの細胞型が甲状腺に対する自己免疫反応の開始または維持に不可欠である可能性を示しています。多くの研究により、HLA DR+の甲状腺上皮細胞がHT 28,29,30,31の患者の甲状腺内で免疫応答を積極的に刺激することが示されています。この研究では、HLA DRが形質細胞質に対して与えられたこととHTのリスク上昇との相関関係が明らかになり、HLA DRがHLAによる形質細胞質のホルモンの因果要因である可能性が示されました。これまでの研究では、バイオインフォマティクス手法によりHTの診断精度が高い枢要遺伝子が特定されており、免疫解析では単球浸潤が枢軸遺伝子発現と負の相関があることが示されています。Xuら32は、単球におけるCD62L発現のレベルが高いことがHTリスクの低下と関連していることを報告し、これは現在の研究結果と一致しています。具体的には、CD62L+骨髄樹状細胞のCCR2や単球細胞のCD62Lなどの表現型が保護効果と関連しており、甲状腺自己免疫を緩和する調節または抑制的役割の可能性を示しました。
多くの証拠が、HT33,34の進行においてTh17とTreg細胞バランスが重要な役割を果たしていることを示しています。この調査では、HTといくつかのTreg特性との因果関係が特定されました。具体的には、HT発症リスクはCD39+安静調節T細胞におけるCD25発現と逆相関し、Th17/Treg比率はHT35の進行とともに上昇することが観察されました。免疫耐性の維持と自己免疫疾患の回避における調節T細胞の複雑な機能は、異なるTreg表現型がHTリスクの上昇と低下の両方に強い相関があることからも明らかです。トレッグ細胞は二重であり、あるサブセットは自己免疫反応を悪化させる可能性があり、他は抑制します。これは、HTにおける彼らの役割を正確に定義するためのさらなる研究の必要性を強調しています。
さらに、T細胞成熟段階、TBNK、単球、B細胞群において、免疫表現型の一部がHTリスクの上昇と関連し、他は保護効果をもたらすという一貫したパターンが観察されました。32,36,37,38。これは免疫細胞がHTの発生に深く関与していることを強調しています。逆MR解析も行われ、HTが免疫細胞の特徴に与える影響を調べました。解析の結果、HTはCD4調節T細胞や単球性MDSCの分泌など特定の免疫細胞表現型の増加と関連し、特に活性化されたCD4調節T細胞やCD25+ CD4+ T細胞の低下と関連していることが明らかになりました。
特に、メディエーション解析では、免疫細胞表現型からHT発育への進行におけるC5レベルの因果関係が強調されています。過去の研究では、血漿C5レベルが糖尿病末梢神経障害の発症に寄与していることが示されており、39 は肉減少症および骨格筋指数の低下と相関しています40。さらに脂質代謝の観点からは、虚弱表現型41の個人でイソバレリルカルニチンの濃度が低いことが観察されています。本研究で観察された介質比率8.89%は、C5がCD39+ Treg–HT経路における仮定的なメカニズム的関連を示す可能性を示唆し、前向きな実験および臨床試験における候補バイオマーカーおよび治療標的としてのさらなる研究が価値あるものである。
この研究は貴重な洞察を提供しますが、いくつかの制限点には考慮が必要です。まず、MRアプローチは、使用される計測変数が妥当であり、交絡因子や多面性(42,43,44)の影響を受けていないという前提に依存しています。第二に、主要なMR解析はヨーロッパ系のGWASデータに基づいており、免疫細胞のGIWASはサルデーニャの創始集団から派生しており、その独特な連鎖不平衡構造が一般化を制限する可能性がある。多様な非ヨーロッパ系コホートでの今後の研究が、集団特異的な適用性を確認する必要があります。第三に、媒介分析ではC5が探索的関連を示す要因として特定されました。今後、より多様なコホートを取り入れた研究がこれらの関連性を確認し、集団特異的な効果の可能性を探るために必要です。最後に、フローサイトメトリーおよび血漿検証実験がMRの所見を支持する証拠を提供しました。しかし、サンプル数は比較的限られていました。これらの免疫代謝相互作用を検証し、CD39⁺Treg細胞や関連する代謝経路を標的とした治療法がHTに新たな治療的機会をもたらす可能性があるかどうかを探るためには、より大規模な実験的および臨床的研究が必要です。
結論
結論として、本研究は免疫細胞表現型、特にCD39+ TregsとHTの因果関係に関する新たな洞察を提供し、探索的媒介解析に基づきC5がこの経路の候補メディエーターとして特定されました。これらの発見は新たな免疫代謝軸を明らかにし、自己免疫性甲状腺疾患におけるバイオマーカー開発および治療的介入のためのメカニズム的洞察と潜在的な標的を提供します。今後の大規模な前向きコホート研究でこれらの発見がさらに検証され、HT治療における免疫調節の応用価値が探られる可能性があります。
開示事項
著者らは、この研究は潜在的な利益相反と解釈される可能性のある商業的または財務的関係が一切ない状態で行われたと述べています。
謝辞
公開されたGWAS要約データを公開してくださったすべての研究に感謝しています。この記事は内モンゴル自治区専門地域医療センターの資金提供を受けています。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| CD25-PEモノクローナル抗体 | BDバイオサイエンシズ | 340938 | ヒトCD25検出用フローサイトメトリー抗体 |
| CD39-PE-Cy7モノクローナル抗体 | BDバイオサイエンシズ | 567526 | ヒトCD39検出用フローサイトメトリー抗体 |
| CD4-FITCモノクローナル抗体 | BDバイオサイエンシズ | 340133 | ヒトCD4検出用フローサイトメトリー抗体 |
| D3-APCモノクローナル抗体 | BDバイオサイエンシズ | 555333 | ヒトCD3検出用フローサイトメトリー抗体 |
| FACS溶解溶液 | BDバイオサイエンシズ | 349202 | フローサイトメトリーサンプル調製用赤血球溶解バッファー |
| フローサイトメーター | BDバイオサイエンシズ | FACSCanto II | 免疫表現型検出用多色フローサイトメトリー機器 |
| フローサイトメトリー分析ソフトウェア(FACSDiva) | BDバイオサイエンシズ | — | フローサイトメトリーデータの取得と分析用のソフトウェア |
| gwasglueパッケージ | Rパッケージ | — | GWASデータセットの調和 |
| ieugwasrパッケージ | Rパッケージ | — | IEU GWASデータベースへのインターフェース |
| 液体クロマトグラフィー&ndash;連続質量分析システム(LC&ndash;MS/MS) | サーモフィッシャーサイエンティフィック | — | 血漿イソバレリルカルニチン(C5)の定量に使用 |
| リン酸緩衝生理食塩水(PBS) | サーモフィッシャーサイエンティフィック | AM9624 | 洗浄と再懸濁に使用する無菌PBS、pH 7.4 |
| Rソフトウェア | オープンソースソフトウェア | バージョン4.4.1 | 統計解析環境 |
| TwoSampleMRパッケージ | Rパッケージ | — | メンデル型無作為化分析パッケージ |
| VariantAnnotationパッケージ | Bioconductor | — | 変異データアノテーション |
参考文献
- Koca SB, Seber T. Factors affecting thyroid elastography in healthy children and patients with Hashimoto’s thyroiditis. J Clin Res Pediatr Endocrinol. 2023;15(1):7-15.
- Zhao T, et al. Comparison of various ultrasound-based malignant risk stratification systems on an occasion for assessing thyroid nodules in Hashimoto's thyroiditis. Int J Gen Med. 2023;16:599-608.
- Chen P, et al. Effect of large dosage of Prunella on Hashimoto's thyroiditis: a protocol of systematic review and meta-analysis of randomized clinical trials. Medicine (Baltimore). 2020;99(50):e23391.
- Won JH, et al. Thyroid nodules and cancer in children and adolescents affected by Hashimoto's thyroiditis. Br J Radiol. 2018;91(1087):20180014.
- Liu Y, et al. The impact of coexistent Hashimoto’s thyroiditis on central compartment lymph node metastasis in papillary thyroid carcinoma. Front Endocrinol (Lausanne). 2021;12:772071.
- Weetman AP. An update on the pathogenesis of Hashimoto's thyroiditis. J Endocrinol Invest. 2021;44(5):883-890.
- Ihnatowicz P, et al. The importance of nutritional factors and dietary management of Hashimoto's thyroiditis. Ann Agric Environ Med. 2020;27(2):184-193.
- Ragusa F, et al. Hashimoto's thyroiditis: epidemiology, pathogenesis, clinic and therapy. Best Pract Res Clin Endocrinol Metab. 2019;33(6):101367.
- Janicki L, et al. Prevalence and impact of BRAF mutation in patients with concomitant papillary thyroid carcinoma and Hashimoto's thyroiditis: a systematic review with meta-analysis. Front Endocrinol (Lausanne). 2023;14:1273498.
- Hwangbo Y, Park YJ. Genome-wide association studies of autoimmune thyroid diseases, thyroid function, and thyroid cancer. Endocrinol Metab (Seoul). 2018;33(2):175-184.
- Hu Y, et al. Effect of selenium on thyroid autoimmunity and regulatory T cells in patients with Hashimoto's thyroiditis: a prospective randomized-controlled trial. Clin Transl Sci. 2021;14(4):1390-1402.
- Ralli M, et al. Hashimoto's thyroiditis: an update on pathogenic mechanisms, diagnostic protocols, therapeutic strategies, and potential malignant transformation. Autoimmun Rev. 2020;19(10):102649.
- Pyzik A, et al. Immune disorders in Hashimoto's thyroiditis: what do we know so far? J Immunol Res. 2015;2015:979167.
- Zhang QY, et al. Lymphocyte infiltration and thyrocyte destruction are driven by stromal and immune cell components in Hashimoto's thyroiditis. Nat Commun. 2022;13(1):775.
- Zheng H, et al. A global regulatory network for dysregulated gene expression and abnormal metabolic signaling in immune cells in the microenvironment of Graves' disease and Hashimoto's thyroiditis. Front Immunol. 2022;13:879824.
- Guo J, et al. Treg cells as a protective factor for Hashimoto's thyroiditis: a Mendelian randomization study. Front Endocrinol (Lausanne). 2024;15:1347695.
- Xu D, Wu B. Association between systemic lupus erythematosus and osteoporosis: a Mendelian randomization analysis. BMC Rheumatol. 2024;8(1):17.
- Moon G, Park JH, Lee T, Yoon JH. A machine learning-based model for preoperative assessment and malignancy prediction in patients with atypia of undetermined significance thyroid nodules. J Clin Med. 2024;13(24):7769.
- Yan J, et al. Gut microbiota's role in glioblastoma risk, with a focus on the mediating role of metabolites. Front Neurol. 2024;15:1386885.
- Portilla-Fernandez E, et al. Genetic and clinical determinants of abdominal aortic diameter: genome-wide association studies, exome array data and Mendelian randomization study. Hum Mol Genet. 2022;31(20):3566-3579.
- Bowden J, Holmes MV. Meta-analysis and Mendelian randomization: a review. Res Synth Methods. 2019;10(4):486-496.
- Luo H, et al. Causal relationships between CD25 on immune cells and hip osteoarthritis. Front Immunol. 2023;14:1247710.
- Zha B, et al. Distribution of lymphocyte subpopulations in thyroid glands of human autoimmune thyroid disease. J Clin Lab Anal. 2014;28(3):249-254.
- Burgess S, et al. A review of instrumental variable estimators for Mendelian randomization. Stat Methods Med Res. 2017;26(5):2333-2355.
- Bowden J, et al. Mendelian randomization with invalid instruments: effect estimation and bias detection through Egger regression. Int J Epidemiol. 2015;44(2):512-525.
- Bowden J, et al. Consistent estimation in Mendelian randomization with some invalid instruments using a weighted median estimator. Genet Epidemiol. 2016;40(4):304-314.
- Hartwig FP, et al. Robust inference in summary data Mendelian randomization via. the zero modal pleiotropy assumption. Int J Epidemiol. 2017;46(6):1985-1998.
- Zhao Z, et al. Causal role of immune cells in Hashimoto's thyroiditis: Mendelian randomization study. Front Endocrinol (Lausanne). 2024;15:1352616.
- Wang C, et al. Causal role of immune cells in schizophrenia: Mendelian randomization study. BMC Psychiatry. 2023;23(1):590.
- Aichinger G, et al. In situ immune complexes, lymphocyte subpopulations, and HLA-DR-positive epithelial cells in Hashimoto thyroiditis. Lab Invest. 1985;52(2):132-140.
- Yu M, et al. Discordant expression of Ii and HLA-DR in thyrocytes: a possible pathogenetic factor in Hashimoto's thyroiditis. Endocr Pathol. 1998;9(3):201-208.
- Xu B, et al. Comprehensive analysis of hub biomarkers associated with immune and oxidative stress in Hashimoto's thyroiditis. Arch Biochem Biophys. 2023;745:109713.
- Fang J, et al. The changes in peripheral blood Th17 and Treg ratios in Hashimoto's thyroiditis are accompanied by differential PD-1/PD-L1 expression. Front Endocrinol (Lausanne). 2022;13:959477.
- Wang W, et al. Leptin receptor antagonist attenuates experimental autoimmune thyroiditis in mice by regulating Treg/Th17 cell differentiation. Front Endocrinol (Lausanne). 2022;13:1042511.
- Liu Y, et al. Th17/Treg cells imbalance and GITRL profile in patients with Hashimoto's thyroiditis. Int J Mol Sci. 2014;15(12):21674-21686.
- Cai YJ, et al. Hashimoto's thyroiditis induces neuroinflammation and emotional alterations in euthyroid mice. J Neuroinflammation. 2018;15(1):299.
- Raoof IB, et al. The prevalence role of monocyte chemoattractant protein-1 in Hashimoto's thyroiditis via .various stimuli mechanisms. J Pharm Bioallied Sci. 2021;13(2):244-247.
- Krysiak R, Okopien B. The effect of levothyroxine and selenomethionine on lymphocyte and monocyte cytokine release in women with Hashimoto's thyroiditis. J Clin Endocrinol Metab. 2011;96(7):2206-2215.
- An Z, et al. Correlation between acylcarnitine and peripheral neuropathy in type 2 diabetes mellitus. J Diabetes Res. 2022;2022:8115173.
- Meng L, et al. Specific lysophosphatidylcholine and acylcarnitine related to sarcopenia and its components in older men. BMC Geriatr. 2022;22(1):249.
- Meng L, et al. Specific metabolites involved in antioxidation and mitochondrial function are correlated with frailty in elderly men. Front Med (Lausanne). 2022;9:816045.
- Valencia-Hernández CA, Del Greco MF, Sundaram V, Portas L, Minelli C, Bloom CI. Asthma and incident coronary heart disease: an observational and Mendelian randomisation study. Eur Respir J. 2023;62(5):2301788.
- Li W, et al. Assessment of the relationship between telomere length and atherosclerosis: a Mendelian randomization study. Medicine (Baltimore). 2023;102(46):e35875.
- Morgan RA, et al. Carbonyl reductase 1 catalyzes 20β-reduction of glucocorticoids, modulating receptor activation and metabolic complications of obesity. Sci Rep. 2017;7(1):10633.