本レビューは、代謝機能障害に関連するステアトーシス肝疾患およびその炎症性線維化表現型(MASH)における腸-肝免疫代謝軸を明確にし、炎症性活性化への障壁の失敗にまたがるものを明らかにし、多標的天然産物およびバイオマーカー層別戦略を評価して正確な介入を行います。
この記事について
サマリー
要約
代謝機能障害関連ステアトーシス肝疾患(MASLD)およびその炎症性線維化表現型(MASH)は、顕著な免疫代謝結合を示します。本レビューは、上皮のタイトジャンクションおよび腸血管障壁(GVB)の不具合からTLR4–MyD88/TRIF–NF-κB増幅およびNLRP3インフラマソーム活性化に至るまで、腸-肝軸に沿った証拠を総合し、腸由来曝露スペクトル—リポ多糖(LPS)、内因性エタノール、胆汁酸(BAs)、短鎖脂肪酸(SCFA)、トリメチルアミン N—の論理を概説します-酸化物(TMAO)。BA-FXR/TGR5、SCFAs-GPR41/43、AMPK/Nrf2を炎症閾値をリセットし、段階依存的な薬物効果をもたらす上流・下流の調節因子として位置づけます。ノードから経路へのマッピングに基づき、ベルベリン(BBR)、屈石花油(QSHY)、大柴胡煎じ(DCHD)、および多糖類(例:黄耆、霊芝)の機構と翻訳シグナルをまとめ、「腸第一」の作用を支える薬理動態および曝露部位の制約を強調します。我々は、最小限の伴随バイオマーカーセット—LBP/sCD14、FGF19–C4動態を持つBAプロファイル、IL-1β/GSDMD-N—を階層的イメージングゲート(≥30%の相対MRI-PDFF減少)と組み合わせることを提案します。MRE/ELF)を用いて、レスポンスタイプやGO/NOGOの判断を支えています。最後に、重要なギャップ(直接ヒトGVB表示、臨床アウトカムと結びつく縦断的マルチオミクス)を指摘し、MASLD/MASHにおける多標的伝統医学介入の適応的かつ階層化された開発のためのバイオマーカー駆動型多腕多段階(MAMS)経路を概説します。
概要
代謝機能障害関連ステアトーシス肝疾患(MASLD)およびその炎症性線維化表現型MASHは、孤立した代謝障害ではなく、免疫代謝の連鎖異常によって引き起こされる全身的状態としてますます捉えられています。収束する証拠は、腸-肝軸が疾患の進化の中心であると示しています。腸のバリアの完全性が緩むと、腔内病原体に関連する分子パターンや代謝信号が門脈循環により容易にアクセスし、肝内の自然免疫応答を開始・増幅します1。機構的には、バリア機能障害は上皮の狭接合部の再構築と腸血管関壁(GVB)の破壊を含み、これらが共に微生物や食事由来の門脈供給を促進し、肝臓の自然免疫の活性化閾値を下げます。
上皮の下には、腸血管関門(GVB)が血液脳関門に類似した選択原理を持つ第二のチェックポイントとして機能します。実験的および翻訳的データは、GVBの不安定化が明らかな脂肪性肝炎に先行することがあり、バリア安定化が門脈炎症負荷の減少と機構的に関連していることを示しています。
循環中のエンドトキシン(リポ多糖、LPS)は、MASLDからMASHへの進行および進行した線維化と最も一貫した正の関連を示し、腸由来分子負荷と肝損傷との集団レベルの関連を確立しています1。「自動醸造」ルートも因果関係であり、高アルコール産生の クレブシエラ・肺炎 菌はMASLDと関連し、実験的な定着は外因性エタノール2が存在しないと脂肪肝を誘発します。追加の腸由来代謝物(例:胆汁酸、SCFAs、TMAO)は宿主免疫代謝トーンを形成し、疾患の経路や治療反応における個体間の異質性に寄与する可能性があります。
受容体および経路レベルでは、正弦波の門脈入力をTLR4/MD-2によって感知され、MyD88/TRIF→IKKを通じてNF-κBを活性化し、TNF-α、IL-1β、CCL2をアップレギュレートし、白血球浸潤および実質損傷を促進します。TLR4は肝星状細胞におけるTGF-β偽受容体BAMBIをさらにダウンレギュレーションし、線維原性シグナル伝達を感作し、CCL2/CCR2軸を通じて単球をリクルートすることで炎症から線維症4,5へと橋渡しします。下流では、NLRP3インフラマソームはNF-κB媒介によるプライミング(シグナル1)と、ミトコンドリアROS(ATP–P2X7)、またはコレステロール結晶(シグナル2)からの活性化手がかりを伴い、カスパーゼ1を活性化し、IL-1β/IL-18を放出し、ピロプトーシスを実行します。薬理学的阻害(例:MCC950)は複数のモデルで効果的ですが、高脂肪・高コレステロールの文脈では組織学的利益は均一ではなく、DAMPの組成とタイミング6,7,8によって「薬剤的効果」が制約されていることを示しています。並行して、BA–FXR/TGR5、SCFA–GPR41/43、AMPK/Nrf2経路が脊椎の複数層で調節し、炎症閾値をリセットし、ステージ依存的な応答性を付与します。9,10,11。
このフレームワークは、マルチターゲット介入のための実行可能なノードを明確に示します。ベルベリン(BBR)は、細菌性BSHを阻害し、BAプールを再構築し、回腸のFXR–FGF15軸を活性化して肝内免疫代謝指標を「遠隔的に」再調整する低全身曝露戦略の例です12,13;そのイオン複合体BUDCA/HTD1801は第2相ランダム化比較試験(RCT)でMRI-PDFFを還元しました14。Qushihuayu(QSHY)のような処方は、多中心ランダム化において肝酵素や線維症の代替物の改善とともに、マイクロバイオームと代謝物の協調応答を示しました15。大柴胡煮込み薬(DCHD)および多糖類(例:黄耆、霊芝)は、それぞれGVBの安定化および粘膜免疫/炎症体可塑性にマッピングされます(16,17,18)。しかし、MASLD/MASHにおける伝統中国医学(TCM)の証拠的状況は依然として不均一であり、異質な評価項目と報告の質にばらつく少数のランダム化試験と、より多くの前臨床および仮説形成の研究にとどまっています。
したがって、本レビューの中心的な目標は、堅牢なヒトデータと前臨床的推論を分離し、試験設計、バイアスリスク、効果量、安全性シグナル、反応の持続性を評価する、構造的かつ重要なTCMエビデンスを統合することです。さらに、TCM介入において特に重要な実用的なトランスレーショナル制約、例えば製品の標準化、バッチ間整合性、Qマーカーフレームワーク、さらに開発や臨床採用の証拠閾値を規定する規制上の考慮事項も強調します。
このような背景の中で、レビューは三つの方向性を追求しています。まず、上皮細胞/GVBの機能不全からTLR4–NF-κBおよびNLRP3の活性化までの連続体をたどり、人間、動物、細胞レベルにわたる重要な証拠を統合します。次に、バリア–受容体–インフラマソーム脊椎およびその免疫代謝クロストークを標的としたTCM由来およびその他の自然因子に関するシステム薬理学および代表的な臨床・翻訳データを統合し、薬理動態学、曝露、メカニズムの明示的な整合性を行います。第三に、これらの経路と組み合わせて、MASLD/MASHコホートにおける解釈可能性と外部再現性を向上させるための測定可能なバイオマーカーおよび応答型分けスキームを概説します。介入および定量的な結果とメカニズムを結びつけることで、腸-肝免疫軸は検証可能な翻訳フレームワークに変換され、将来の階層化治療に役立てられます(図1)。最近の合成は、マイクロバイオーム中心の戦略をMASLD/MASHにおける主要な翻訳軸として位置づけており、食事ベースの調節、前・プロ/シンバイオティクス、糞便マイクロバイオータ移植、そして遺伝子操作細菌やバクテリオファージなどの新興アプローチにまたがっていることを示しており、腸標的介入の臨床的意義を強化している19。
レビューと展望
腸-肝軸:バリアの破綻からインフラマソームの活性化まで
上皮関門の不平衡と細胞外漏れの増加
腸上皮関門は、腔内MUC2ベースの粘液層と頂端タイトジャンクション(TJ)複合体によって維持されています。ZO-1、オクルディン、および複数のクラウディンは細胞外選択性を定義し、腔内微生物関連分子パターンと上皮性自然免疫受容体との直接的な接触を制限します。代謝炎症状態では、腫瘍壊死因子α(TNF-α)がNF-κB依存性プログラムに関与し、ミオシン軽鎖キナーゼ(MLCK)をアップレギュレーションし、オクルジンエンドサイトーシスおよび接合部アクトマイシン再編成を促進し、「リーク」経路を作り出します。この効果はin vivoおよびin vitroモデルの両方で示されています20,21。
これらの機構的観察は臨床表現型と一致しています。ヒト研究では、MASLDにおける腸の透過性が一貫して増加し、これはステアトーシスおよび炎症の重症度と相関しています。生検連動生理学的研究では、非アルコール性脂肪肝疾患(現在はMASLD枠組み内)の患者は、 51Cr-EDTAの透過性が増加し、TJ異常および小腸細菌の過剰増殖が認められ、透過性はステアトーシスおよび炎症活性と正の相関を示しました。その後の二重糖浸透性試験の系統的レビューでは、MASLDの小腸透過性が健康な対照群に比べて有意に高いことが確認され、上皮膜損傷が再現可能な集団レベルの特徴として確立されました。この文脈では、腔内PAMPsや代謝信号が門脈循環により容易にアクセスし、肝臓のTLR4–NF-κBシグナル伝達を活性化しNLRP3インフラマソーム活性化を許可する上流の入力を提供します。
恒常性およびMASLD/MASHにおける腸内細菌叢–バリア結合
生理学的条件下では、腸内細菌叢は粘液、密接合部、粘膜免疫に対する調整された効果を通じてバリア維持に寄与します。共生群集構造は粘液の障壁特性に影響を与え、上皮細胞と微生物の相互作用はタイトジャンクションリモデリングや上皮通過性を形成するため、恒常性下での微生物産物の転座を制限します。微生物発酵によって産生されるSCFAはシグナル伝達代謝物として作用し、上皮バリアプログラムを支援し炎症性転写応答を緩衝し、バリア破壊に対する機能的レジリエンスを提供します23,25。
MASLD/MASHでは、細菌群の不全や微生物機能出力の変化がこれらの安定化プログラムを侵食し、バリア機能障害を増幅させることがあります。透過性の変化と微生物産物の転座は門廊への曝露を増加させ、肝臓の自然免疫活性化の閾値を下げることで、ディスバイオシスからバリアの破綻および炎症増幅へのフィードフォワード軸を形成します23。機構的に直接的な例として、高アルコール産生のクレブシエラ肺炎による内因性エタノール産生が挙げられます。これは外因性アルコールなしで脂肪肝の表現型を駆動し、特定の微生物機能と宿主の代謝損傷および下流の炎症感受性を結びつけます。
本節は「腸内細菌群→バリアトーン→門廊曝露」の関連を統合し、バリア回復や腸内細菌群の再構築を主張する腸近位TCM介入の解釈に明確な入り口を提供します。
腸の血管関門の破壊と早期門脈露出
上皮の下に位置する腸血管関門(GVB)は、粘膜下毛細血管内皮細胞とその接合複合体によって形成されます。機能的には血液脳関門に類似し、細菌や高分子が腸壁を通って門脈循環へと移動するのを制限します。実験的脂肪肝炎モデルは、GVBの破壊が肝炎症に先行し、内皮のFXR–β-カテニンシグナル伝達の薬理学的強化が門脈炎症負荷を緩和することを示しています。
これらの発見は、層状インターセプションモデル「GVB→門脈曝露→上皮バリア」を運用化し、GVBをMASLD/MASH 28における扱いやすい初期病理学的結節として指名します。機械的には、GVBの整合性はWnt/βカテニン経路とFXR経路間のクロストークを反映します。形質体小胞関連タンパク質(PLVAP/PV-1)のアップレギュレーションはフェネスラルの開口を示し、漏れと相関しています26,27。上皮および血管バリアの結合的低下は、炎症性手がかりの門脈伝達を効果的に促進し、肝内感知と増幅の閾値を下げます27。
腸由来分子のフラックスと肝の正弦波曝露の風景
集団レベルでは、循環内毒素(LPS)がMASLD進行と最も一貫して関連している分子シグナルです。最近のメタアナリシスでは、MASLDのLPSレベルが対照群よりも高く、疾患の段階や炎症性指標と相関していることが示されており、「内毒素血症→肝炎症→バリアの破綻」という証拠連鎖を支持しています。内因性エタノールは第二の重要な要素として挙げられます。中国のMASLDコホートでは高アルコール産生のクレブシエラ肺炎が濃縮され、経口定植は外因性エタノールが存在しない中で脂肪肝を誘発するのに十分であり、特定の株とその代謝物と肝損傷の間に因果関係が確立されます2。他の腸由来代謝物(例:胆汁酸やSCFAs)は炎症閾値を調節しますが、ここでは一次曝露ドライバーではなく文脈的調節因子として扱います(29,30,31)。
肝臓のTLR4–MyD88/TRIF–NF-κBカスケードの活性化およびエフェクタープログラム
門脈入力が肝正弦波に到達すると、Kupffer細胞、肝細胞、肝正弦波内皮細胞のTLR4/MD-2複合体がLPSと脂質配位子を感知し、MyD88またはTRIFアダプターを導入してIKK複合体に関与させ、NF-κB核転座を促進し、TNF-α、IL-1β、CCL2を誘導し、最終的に単球-マクロファージ浸潤および実質損傷を引き起こします3,32。
TLR4シグナル伝達はまた、化学性および線維原性軸を通じて損傷を増幅します。CCL2/CCR2経路は骨髄由来の単球を肝臓に誘導し、薬理学的または遺伝的CCR2遮断はLy6C/単球の浸潤を減少させ、食事型MASHモデルにおける炎症および線維化を弱めます。肝星状細胞では、TLR4はTGF-β偽受容体BAMBIをダウンレギュレーションし、細胞をTGF-βに感作し、自然免疫活性化を経路を通じて線維形成プログラムに結合させます5。したがって、TCM介入を評価する際には、TLR4–NF-κB–CCL2軸の減衰(および下流線維素性感作)の証拠は、一般的な炎症マーカーの単独変化よりも機構的に高い価値として扱われます。
NLRP3インフラマソームの二重シグナル活性化とピロプトーシス
TLR–NF-κBシグナル伝達はNLRP3およびプロIL-1β/IL-18のプライミングステップ(シグナル1)を提供し、一方でミトコンドリアのROS、ATP–P2X7活性化、遊離または結晶性コレステロールは活性化手がかり(シグナル2)として働き、NLRP3–ASC–カスパーゼ-1複合体を組み立て、成熟したIL-1β/IL-18およびガスデルミン-D(GSDMD)の孔形成を促し、ピロプトーシスを実行し炎症性線維化進行を推進します33.MASHモデルおよびヒト組織全体で、NLRP3の過剰活性化は炎症性および線維性の重症度と共に追跡し、コレステロール結晶は脂肪性肝炎6,34における主要なDAMPおよびシグナル2の源を構成しています。
疾患の段階やモデルの文脈は重要な条件です。高脂肪・高コレステロール(HFHC)環境では、Nlrp3欠損症またはMCC950治療のいずれかで組織学的エンドポイントの改善が見られず、DAMP組成と投与ウィンドウがインフラマソームの薬剤性を決定することを示しています。したがって、MASLD/MASHの自然史において、NLRP3は普遍的なレート制限ステップではなく、重要な増幅器として捉えるのが最適であり、層別介入や組み合わせ介入に直接的な影響を与えます8,35。この病期依存性は、(i)前臨床的なインフラマソーム標的請求と、(ii)インフラマソームの読み取り結果(例:IL-1β/IL-18、GSDMD-N)を臨床的に関連性のあるエンドポイントに結びつけるヒト証拠を明確に分離することを促します。
変調クロストーク経路
BA–FXR/TGR5、SCFA–GPR41/43、AMPK/Nrf2経路は、このカスケードを通じて炎症閾値を調節します。これらの経路を詳細に拡張するのではなく、バリア–TLR4–NLRP3スパインの段階依存的な薬剤性に影響を与える調節層として保持します。9,27。
上皮および血管の防御が連続して機能しなくなると、腸由来分子が肝内の自然免疫シグナル伝達を増幅し、最終的には炎症体駆動のピロプトーシスと線維化進行へと至ります。6,27,36。この効率的な機構的足場は、以下のセクションでTCM介入を評価するための基盤となっています(表1参照)。
| 軸ノード(解剖学的レベル) | コア機構イベント | インフラマソームの活性化と炎症への寄与 | 翻訳表示 | 代表的な研究 |
| 腸内細菌叢の生態系 | ディスバイオシスは微生物産物(エンドトキシン負荷、エタノール産生、胆汁酸変換、SCFA排出量)を変化させます | 門脈炎症負荷を増加させ、肝の自然免疫活性化閾値を下げる | 便マイクロバイオーム(16S/メタゲノミクス);便代謝;循環するLBP/sCD14 | Yuanら、2019年、2;Tilg ら、2016年37頁 |
| 粘液層と上皮の狭接合部 | TNF–NF-κB–MLCK依存のTJリモデリング;オクルジン・エンドサイトーシス;クローディン-2孔形成 | 細胞側透過性の向上によりPAMP転座(シグナル1プライミング)が促進されます | ZO-1/オクルディン発現;二重糖の透過性試験、51Cr-EDTA;LBP/sCD14 | Ye ら、2006年、38頁;Marchiando ら、2010年、21頁 |
| 腸血管関門(GVB) | Wnt/β-カテニンおよびFXR依存性経路による内皮の漏れ;PLVAP/PV-1のアップレギュレーション | 微生物および代謝性炎症性サインの門経路伝達を増幅します | PLVAPの染色、対対の門道/炎症マーカー;曝露連動画像指標 | Mouriesら、2019年、27頁 |
| 門脈分子曝露 | 循環内毒素上昇;内因性エタノール、変わりたBA/SCFAの環境 | TLR4プライミングを強化します。インフラマソームの許容性を調節します | LPS(方法依存);LBP;sCD14;学士号のプロフィール;SCFAの定量化 | Farhadiら、2008年、39頁;Yuan ら、2019年2号 |
| 肝TLR4シグナル伝達 | TLR4–MyD88/TRIF–NF-κB活性化;バンビの規制ダウン;CCL2誘導 | NLRP3の信号1プライミング;化学走性;星状細胞のTGF-β感作 | 肝TLR4/NF-κB標的;CCL2;α-SMA;コラーゲン転写 | Sekiら、2007年、5頁;Sharifnia ら、2015年3頁 |
| NLRP3インフラマソーム活性化 | NF-κBプライミング(信号1)+DAMPトリガー(ROS、ATP–P2X7、コレステロール結晶)(信号2) | カスパーゼ1の活性化;IL-1β/IL-18の放出;ピロプトティック増幅 | IL-1β;IL-18;カスパーゼ1活性;GSDMDの切断 | Wree ら、2014年、40頁;Mridha ら、2017年7 |
| 代謝免疫クロストーク結節 | BA–FXR/TGR5;SCFA–GPR41/43;AMPK/Nrf2経路 | 炎症閾値とステージ依存性の薬剤性をリセットする | FGF19–C4;BA署名;SCFAレベル;AMPK/Nrf2ターゲット | Neuschwander-Tetriら、2015年、9頁;Kimura ら、2013年25頁 |
表1:MASLD/MASHにおける障壁の失敗と肝臓炎症体活性化を結びつける機構的チェックポイント。
TCM介入のシステム薬理学および分子メカニズム
マルチオミクス検証を備えたシステム薬理学フレームワーク
システム/ネットワーク薬理学を仮説生成装置として用い、「化合物–標的–経路」の関係をMASLD/MASHの病理生物学に投影し、マルチオミクスとクロススケール実験でループを閉じることは、再現性のある機構的請求への実用的な道筋を提供します。
しかし、本レビューではシステム薬理学は確定的ではなく仮説生成として明示的に扱われています。ネットワーク由来の推論は、(i) ヒト臨床データ、(ii) 用量曝露の妥当性、(iii) 解剖学的に一貫した作用部位、(iv) 再現性のある経路の読み取り値と一致している場合にのみ、翻訳的アンカリングされているとみなされます。
データベース駆動型スクリーニングとエンリッチメント単独では偽陽性率が過大になりやすいです。したがって、提案されたネットワークは説明モデルとして推進される前に、線量-曝露制約、部位および作用時点、臨床的連鎖に対してストレステストを受ける必要があります。
このワークフローはすでにベルベリン(BBR)のパラダイムレベルのサポートを受けています。経口投与のBBRは微生物胆汁塩加水分解酵素(BSH)を阻害し、タウロコール酸(TCA)などのルミナル共役胆汁酸を増加させ、回腸のFXR–FGF15軸を活性化し、肝脂質取り込みプログラム(例:Cd36)をダウンレギュレーションし、肝脂質処理を改善し、下流の腸・肝炎症負荷を軽減します12,13.統合動物–オミクス研究では、推定されるBSH→TCA→FXR/FGF15カスケードが肝臓の転写応答と一致しており、高全身曝露による有効性ではなく腸内での作用を示唆しています(12,43,44)。
公式レベルでの証拠が浮かび上がりつつあります。二重盲検ランダム化試験において、Qushihuayu(QSHY)は肝酵素および代理線維症指標を改善し、腸内マイクロバイオームおよび代謝物プロファイルの協調的な変化を伴い、「ネットワーク→マルチオミクス→臨床評価項目」検証トライアドの実現可能性を支持しました15,45。しかし、MASLD/MASHにおけるTCM介入において、十分な検出力を持つRCTの数は限られており、評価項目はしばしば代理母に依存し、割り当て隠蔽・盲検療法および併用治療の報告は異なり、エビデンスの強さを体系的に評価する必要があります。
エビデンス評価とバイアスリスクの側面。異質性に対応し構造化された統合を可能にするために、エビデンスを4つのレベルに分類します:レベル1、あらかじめ指定されたエンドポイントを持つランダム化比較試験、レベル2、対照的な非ランダム化または観察対象のヒト研究;レベル3は動物モデル;レベル4では、in vitro、計算、またはネットワークベースの推論46,47。検討されるリスクオブバイアス次元には、ランダム化および割り当ての隠蔽、盲検、エンドポイント階層と多重性、追跡期間、事前登録、離脱率、遵守率、背景療法の管理が含まれます。研究の種類だけでなく、本レビューにおける証拠の強さは、(i) 研究デザインの階層、(ii) 内部妥当性とバイアスリスク領域、(iii) 独立研究間の一貫性、(iv) メカニズティックなノード結合と臨床評価点の整合性、(v) 標的曝露の薬物動態的妥当性の複合的な複合として解釈されます。ヒトエンドポイントアラインメントなしの機構的整合性は仮説生成とみなされ、経路の整合性を欠く臨床シグナルは非特異的効果として慎重に解釈されます。この統合的評価は、以下で述べるすべての中医学介入に適用されます。
腸・肝免疫脊椎に沿った介入マッピング
バリア層では、初期のMASLD/MASHは腸上皮および腸血管関門(GVB)の破壊を特徴とし、PAMPの門脈負荷を高めます。FXR作動は内皮Wnt/β-カテニンシグナルを通じてGVBを安定化させ、下流の肝被曝および炎症活性化を減少させます。これは食事用MASHモデル27,48で検証されています。伝統中国医学(TCM)介入において、多糖類はZO-1/オクルディンの発現を増加させ、透過性を低下させ、門脈内毒素の流入を減少させるため、上流の「デエクスポージャー」戦略を構成しています。バリア保護に関する主張のほとんどは、人間の透過性測定やポータル/曝露代理指標と臨床評価項目の組み合わせで裏付けられない限り、レベル3のエビデンスにとどまります。
TLR4–MyD88–NF-κBモジュールは、肝炎症促進および化学性プログラムの開始増幅器として機能します。肝星状細胞では、TLR4シグナル伝達がTGF-β偽受容体BAMBIをダウンレギュレーションし、細胞をTGF-β感作し、炎症から線維化への移行を促進します。この結節を標的としたことと一致し、黄耆多糖類(APS)は腸および肝臓の両方でTLR4およびリン-NF-κBを抑制し、下流のTNF-α/IL-6の出力を低下させ、「障壁→TLR4」連続体49に沿った連帯阻害を示しています。翻訳推論においては、経路一貫した読み取り値(例:線維症代理遺伝子を伴うTLR4–NF-κB–CCL2軸減衰)が、一般的な炎症マーカー51,52,53の単独変化よりも重み付けが加えられます。
セカンドヒットプラットフォームとして、NLRP3インフラマソームはNF-κB依存的なプライミング(NLRP3およびプロIL-1βアップレギュレーション)と、脂肪毒性、ROS、コレステロール結晶からの活性化手がかりを必要とします。臨床サンプルおよび複数のマウスMASHモデルにおいて、NLRP3の抑制または活性化の阻害は肝炎症および線維症を減少させますが、効果の大きさは食事や代謝の文脈によって異なり、DAMPの組成とタイミングが薬剤適性の決定要因であることを示唆しています7,40。TCM関連の研究では、APSはNLRP3シグナル伝達およびIL-1β/IL-18の成熟/放出を減少させ、プライミングと活性化の二重抑制に相当します。ガノデルマ由来の多糖類は微生物叢を再構築し、低度度の内毒素血症を弱めることで、間接的にNLRP3を引き起こす傾向を低下させます49,54。これらの発見は主にレベル3の証拠であり、ヒト線維症のエンドポイントや画像検査への関連は依然として乏しく、慎重に解釈されるべきです。経路のクロストークレベルでは、BA–FXR/TGR5とSCFA–GPR41/43が共同で免疫代謝の結合を調整しています。SCFAは受容体を活性化させてエネルギーと免疫恒常性を安定化させ、肝脆弱性を調節します。これらの結節を統合することで、バリア表示(ZO-1/オクルディン、透過性、LBP/EAA)、炎症促進出力(TNF-α、IL-6および関連する走化学軸)、インフラマソーム出力(IL-1β/IL-18、カスパーゼ1/GSDMD)、および核受容体/代謝指標(FXR/TGR5ターゲットを用いたBAプロファイル;GPR41/43を含むSCFAは、メカニズム的推論の外部妥当性を強化するためにマルチオミクス層間で共登録できます。本レビューでは、このような共同登録を機構的な整合性の評価に用いていますが、人間のエンドポイントアラインメントが証拠の強さの主要な決定要因として残っています。
機構的推論における薬力動態および曝露部位の制約
ラットにおけるベルベリンの絶対口腔バイオ利用能(BBR)は~0.36%〜0.68%であり、腸内ファーストパスクリアランスおよびP-gp排出によって制限されます。組織分布は、血漿レベルが低い55、56、57にもかかわらず肝臓の高度分布を示しています。これらの特徴により、BBRは局所的な腸–肝軸モジュレーターとして定義されており、その腔内露出はBSH→BA→FXR/FGF15カスケード55,57を作動させるのに十分です。全身への曝露を著しく増加させる戦略は、主要な行動地点や安全ウィンドウを移動させる可能性があります。したがって、機構的主張は門脈濃度および全身濃度を曝露-反応関係とともに報告すべきです。
全身曝露が少なくても、局所的な微生物叢–胆汁酸–核受容体軸を通じた門脈PAMP入力を減少させたり、肝臓のTLR4/NLRP3活性化傾向を低下させることを妨げるものではありません。これらの結果は、複数オミクスおよびセグメント特異的実験によって繰り返し支持されています(12,13,58)。対照的に、多糖類/オリゴ糖は経口投与後も大部分が発酵性を保ち、その効果はバリア修復および微生物発酵産物(SCFAs)によって促進されます。その効果はルミナルの達成可能量、発酵速度、二次胆汁酸およびSCFAの時間的期間に依存します。したがって、時系列BA/SCFAメタボロミクスとバリアタンパク質および透過性指標の組み合わせにより、帰属25,59,60の適切な表示が得られます。薬理動態的妥当性(ルミナル曝露、発酵速度論、時間的代謝物ウィンドウ)を統合できないことは、中医学研究における機構帰属の繰り返しの弱点であり、再現性の制限に寄与しています。
エビデンスの階層、伴随バイオマーカー、品質管理
翻訳シグナルは複数のレベルで現れています。ベルベリン–ウルソデオキシコール酸イオン複合体(HTD1801/BUDCA)の第2相ランダム化比較試験では、代謝パラメータの改善とともにMRI-PDFFが有意に減少し、BA–FXR連鎖免疫代謝調節の集団レベルの可搬性と一致しました14,61。公式レベルでは、二重盲検多中心RCTのQushihuayu(QSHY)は腸内マイクロバイオームと代謝物プロファイルの一致した変化、肝酵素およびFIB-4の改善を示し、伴随バイオマーカーが臨床指標の因果解釈性を強化することを強調しました15。利用可能な場合、レベル1エンドポイント(画像に基づく脂肪または線維症の代替物)が生化学的のみの結果よりも優先されます。
選択的な報道を緩和するために、中立的かつ否定的な調査結果を含めるべきです。MASLDのサブセットでは、肝酵素や脂質に関してはベルベリンが対照群を上回らず、異質性はベースラインの代謝表現型、透過性の状態、併用薬剤、用量・曝露の違いによって推測される。これは今後の試験で事前指定された反応型とバイオマーカー主導の層化を支持している。2024年の更新された臨床メタアナリシスでは、ベルベリンによる肝酵素、脂質、インスリン感受性の全体的な改善が報告されていますが、研究の異質性や集団境界を定義するための質の高いRCTの必要性を強調しています。介入を横断する際、研究デザイン、代理評価項目の選択、追跡期間、背景療法の変動が試験間比較を複雑にします。効果量はしばしば控えめであり、バイアスリスクドメインの報告も一貫性に欠けます。
再現性のために、品質マーカー(Qマーカー)およびエンドツーエンド品質管理—物質基盤と in vivo での薬理力学的曝露を結びつける—がTCM研究の標準化の基礎要素として提案されています。システム/ネットワーク薬理学およびマルチオミクス検証の進歩と組み合わせることで、この枠組みは外部再現性と臨床翻訳可能性を向上させることができます。標準化、バッチ間の整合性、規制の整合性は、スケーラビリティとクロススタディ比較性の重要な決定要因であり、ここでは付随的な考慮ではなく、翻訳的信頼性の不可欠な要素として扱います。総合的に見て、現在の証拠はバリア–TLR4–NLRP3脊椎に沿った複数のTCM介入の生物学的妥当性を支持しています。しかし、画像診断を支持するヒト評価項目を持つレベル1基準を満たすのは、ベルベリン系製剤や選択された処方試験など一部のものであり、これらも効果量の控えめさと異質性によって制約されています。特にインフラマソーム調節やGVB安定化に関する経路レベルの主張の大半は、主にレベル3の前臨床データによって支持されており、機構的には整合性があるものの臨床的には暫定的と見なすべきです。
代表的な介入:障壁–TLR4–NLRP3軸に沿った翻訳的証拠
ベルベリンは腸の障壁機能を回復し、NLRP3-インフラマソームシグナル伝達を弱めます
経口投与のベルベリンは全身曝露が低く、高い腔内利用率を示します。齧歯類では、絶対口腔バイオアラビリティは~0.36%〜0.68%であり、腸内ファーストパスクリアランスおよびP-糖タンパク質排出により制限されます55,57。腸内細菌叢はBBRをジヒドロベルベリンに還元し、より吸収性の高い形態に変換し、「腸優先、肝臓二次」の曝露軌跡と一致します64。これらの薬理動態および生体形質転換の特徴は、BBRを腸-肝の上流プロセスを調節し、下流の肝炎症性伝達を形成する役割を担っています。
バリア界面では、BBRはエンドトキシン/炎症性サイトカイン誘発のZO-1/オクルディン/クラウジンの誤局所を緩和し、NF-κB–MLCK軸の阻害を通じて細胞外漏れを減少させます。これにより間接的に門脈LPS負荷と肝正弦波曝露が減少します。BBRはまた、大腸粘膜および固有膜マクロファージにおけるNF-κB活性を抑制し、TNF-αとIL-6を減少させ、さらにTLR4–MyD88–NF-κBカスケードを抑制します66,67。これらの障壁およびTLR4軸効果は主にレベル3(動物)エビデンスによって支持されており、ヒトMASLDコホートにおける直接透過性の定量は限定的である。
インフラマソーム結節では、BBRは栄養・脂毒性ストレスモデルにおいてNLRP3活性化およびピロプトーシスを抑制します。これは、プライミングと活性化の手がかりを統合するROS–TXNIP軸をダウンモディチュールすることで、カスパーゼ1の活性化とIL-1β/IL-18の放出68を減少させることでもあります。機構学的には整合性があるものの、これらの炎症体所見は主に前臨床段階であり、ヒト線維症や画像診断の評価点に対する検証が必要です。
BBRはさらに胆汁酸(BA)内分泌軸を通じて作用し、微生物胆汁塩加水分解酵素(BSH)の阻害により、特にタウロコール酸などの管腔共役BAが増加し、回腸のFXR–FGF15経路を活性化し、Cd36などの肝脂質吸収プログラムをダウンレギュレーションし、代謝再プログラミングと炎症体感受性の低下を結びつけます12。このBA–FXRメカニズムは、スケールを越えた効果の生物学的妥当性を提供しますが、それだけで臨床的有効性を確立するものではありません。
臨床試験では、ベルベリン–ウルソデオキシコール酸イオン複合体(BUDCA/HTD1801)の第2相RCTでMRI-PDFFの有意な減少が示され、プラセボと比較して代謝的利益が伴い、腸–BA–FXR軸から肝臓の脂肪毒性/炎症指標へのクロススケール翻訳性が一致しました14。最近のメタアナリシスでは、ALT/ASTおよび肝脂肪症の全体的な効果量は中程度であると報告されており、投与量、製剤、登録プロファイルにおいてRCT間で異質性が指摘されており、伴随バイオマーカーおよび反応型層別化の必要性を強調しています。63,69。バイアスリスクの考慮事項には、可変盲検、短い追跡期間、代理エンドポイント依存性が含まれます。安全性データは概ね良好ですが、長期的な肝毒性監視および薬物間相互作用プロファイリング(例:CYP/P-gp調節)は依然として完全には解明されていません。
翻訳設計においては、透過率指数、LBP、MRI-PDFFが合理的伴随マーカーを提供します。今後の試験では、あらかじめ指定された反応型分けと効果サイズの報告をベースライン透過性またはインフラマソーム活性化状態に階層化することで有益となるでしょう。全体として、ベルベリンはレベル1画像に基づくエビデンスによって支持される数少ない中医学由来の介入の一つであり、効果量は中程度で、製剤間で異質性があり、組織学的確証も限定的です。胆汁酸/FXR調節以外の機構的主張、特にインフラマソーム抑制は主に前臨床段階であり、翻訳的に妥当とみなされるべきですが、まだ臨床的に確立されていません。
Qushihuayu(QSHY):バリア–胆汁酸–TLR4軸に沿った多施設臨床および多オミクスの証拠
前臨床試験では、QSHYおよびその前身化学式QHDが大腸のタイトジャンクションを回復し、LPSの転座を制限します。大腸リンプロテオミクスのプロファイリングは、MAPKシグナルが上流の調節因子であることを示しており、「障壁修復→門脈PAMP負荷の減少→肝TLRシグナルの減衰」と一致しています70。肝細胞レベルでは、QHDがAMPKを活性化し、CPT-1A依存性β酸化を促進し、脂毒性ドライブおよび二次炎症入力を減少させます71,72。マルチオミクス解析では、腸内細菌叢と血清脂質/代謝物プロファイルの同時進行の再構築が示されており、介入が腸・肝代謝インターフェースの複数のノードにまたがることを示しています73。これらの発見は主にレベル3のメカニズム的証拠であり、生物学的妥当性を支持しますが、ヒトにおける臨床効果の大きさや耐久性を定義するものではありません。
臨床的には、2024年の多施設二重盲検二重ダミーRCT(n=246)でVCTE-LFCおよびALTを共同主要評価項目として用い、QSHYがALT、AST、FIB-4の対照群より優れていることが認められました。マイクロバイオームおよび代謝物のシグネチャーは臨床反応を追跡し、「マイクロバイオータ代謝物」シフトをトランスアミナーゼおよびエラストグラフィーの読み取りに結びつけています15ですが、解釈は代理エンドポイント、すなわち24週間の期間に依存しているため制約があります。 および生活習慣の共介入による潜在的な残留交絡。いくつかの二次画像診断項目への効果は限定的であり、被験者間の異質性(ベースライン透過性や炎症状態を含む)がシグナルを希釈し、後の試験で透過性/炎症に基づく層化を支持した可能性があります。利用可能な場合、割り当ての隠蔽、遵守、プロトコルの逸脱の報告は、観察された効果量のバイアスリスクを文脈化するために不可欠です。
以下に二つの翻訳的優先事項があります。まず、伴随バイオマーカーおよびあらかじめ指定された層について:ベースラインLBPが上昇、糞便二次胆汁酸比率が異常、またはIL-1βが高い患者は、理論的にはバリア–BA–TLR4軸15に沿った協調的な阻害の恩恵を受けやすい。第二に、品質と曝露のトレーサビリティ:指紋ベースのQマーカー(代表的なフラボノイド/フェノール酸)を採用し、生体内曝露および薬理力学的効果にマッピングします。QSHYの式ベースの性質を踏まえ、バッチ間の一貫性と有効成分の透明な特性評価は、クロススタディの比較可能性と規制グレードの開発の前提条件です74,75。組み合わせ戦略は解剖学的かつ機序的に相補的であり、resmetiromは主に肝細胞脂質処理/線維症エンドポイントを標的とし、GLP-1受容体作動薬は体重とインスリン抵抗性に作用するため、QSHYとの共同開発はより広範な応答カバレッジへの合理的な道筋となります76,77。このような組み合わせは、あらかじめ定められた安全性モニタリングと相互作用を意識した背景療法の文書を用いて評価されるべきであり、特にMASLDおよびMASHコホートで併用代謝薬が一般的な場合に顕著です。まとめると、QSHYは生化学的およびエラストグラフィーに基づくアウトカムのレベル1エビデンスによって支持されていますが、その効果の大きさや持続性は、より長期的で画像診断中心または組織学に基づく試験で確認される必要があります。ほとんどの機構的ノードマッピング請求はレベル3のままで、規制の進展は独立したコホート間の標準化と再現に依存します。
大柴壺(DCHD):腸の血管関門を維持し、PPARα/AMPK–NF-κBのクロストークを再調整する
DCHDはHFD-MASLDモデルにおける脂質、インスリン抵抗性、肝組織学を改善し、腸内細菌叢および血清代謝の再構築を伴い、上流関門および肝内免疫代謝結節での協調作用と一致します16,78。「第二の障壁」である腸血管関門(GVB)では、DCHDが腸肝相互作用モデルにおける栄養過剰負荷下でも内皮の完全性を維持し、病原性分子の門脈フラックスを減少させ、肝転座イベントを減少させることで、PLVAP/PV-1および内皮接合部の可塑性を強調しています。腸・肝転移の文脈で得られたものの、これらの発見はGVB安定化のレベル3機構的支援を提供し、透過性/内毒素関連エンドポイントを持つMASLD関連環境での検査を促します。肝シグナル伝達ハブでは、DCHDの効果はPPARα/AMPK–NF-κB交差点の調節と一致し、免疫代謝結合に対するシステムレベルの影響を示しています79。全体として、DCHDの現時点での証拠は主に前臨床および仮説形成にとどまり、レベル1–2のヒトデータは経路一致の結果に直接結びついています。
証拠の強さに関しては、2024年のシステマティックレビューでは、DCHDがトランスアミナーゼ、脂質、および一部の画像検査において全体的な利益をもたらすと示唆されていますが、研究の質やエンドポイントの異質性の制限が強調されています。利用可能な臨床試験は設計が異様で、しばしば代理評価項目に依存し、限られた階層化されたアウトカム報告(MRI-PDFF/ELF/MRE)を提供しているため、効果量や持続性に関する推論が制限されています80。バイアスリスクの懸念には、変動する盲検化/割り当て隠蔽、背景療法の管理、遵守率および離脱率の不完全な報告が含まれ、これらは試験間の比較を複雑にします。次のトランスレーショナルステップとして、GVBと上皮バリアエンドポイント(例:糞便・血清透過性・エンドトキシンマーカーとPDFF/ELF)を二重標的とし、高い門脈PAMP負荷を持つ参加者を前向きに濃縮し、経路整合の臨床的利益検出確率を高めるメカニズム強化RCTです。MASLD/MASHコホートにおける代謝薬(例:スタチン、メトホルミン)の併用可能性を考慮すると、相互作用を意識した文書化と事前定めの安全性モニタリングを試験設計に組み込むべきです。総合すると、DCHDは現在主にレベル3のメカニズムデータと異種的な臨床信号に基づいています。GVB調節介入としての位置づけは生物学的に整合性がありますが、経路と整合したヒトのエンドポイント検証が待つため臨床的仮定的なままです。
伝統中国医学の多糖類(黄耆、霊芝):粘膜免疫の強化とTLR4–NF-κB–NLRP3の協調的な抑制
TCM多糖類は主に光にさらされており、粘膜免疫バリアプログラムや微生物叢と代謝物の相互作用に作用するのに適しています。黄耆多糖類(APS)はHFD-MASLDモデルにおける胆汁酸恒常性と微生物叢–BAの結合を再構築し、肝脂肪症および炎症性の読み取りを改善し、「バリア–BA–肝」橋を越えた活性を示します18,81。ガデルマ多糖体は分泌中のIgAを増加させ、ゴブレット細胞やタイトジャンクションを回復し、免疫抑制環境でTLR2/4/6転写産物をアップレギュレーションします。これは粘膜免疫・障壁–TLRトーンの上流の「ノイズリダクション」と一致します。肝臓内では、ガノデルマ多糖類がNLRP3インフラマソームを抑制し、IL-1β/IL-18の出力を低下させ、ピロプトーシス–線維症リレー17の中断を支えます。最近の総合では、多糖類が腸-肝軸を通じてMASLDを改善する多次元メカニズムをカタログ化し、Qマーカーの定義および曝露効果マッピングの標準を提案しました83。これらのデータは主にレベル3(前臨床)エビデンスであり、画像診断や線維症中心のエンドポイントを用いたレベル1–2の堅牢なヒト研究は依然として限られています。
いくつかの制約点を明確にする必要があります。ほとんどの多糖類研究は前臨床または初期段階にとどまります。製造の不均質性や分子量分布は大きく異なり、バッチごとの一貫性を持つin vivoで達成可能な濃度は繰り返しボトルネックとなります。この異質性は再現性を複雑にし、「多糖類」とはしばしば分子量スペクトル、純度、生体活性が異なる混合物を指すためです。画像診断や炎症のエンドポイントに関して中立的な結果が現れ、これらは製剤の違い、最適でない期間、併用薬剤によって推測される可能性が高いです。したがって、否定的または中立的な結果は報告・組み入れて、出版バイアスや有効性の過大評価を軽減する必要があります。臨床翻訳においては、バリア優位の応答スキーマ—透過率の上昇、高いLBP、低sIgA—と階層化されたエンドポイント(sIgA/マイクロバイオータ/SCFAs→LBP/16S rDNA→MRI-PDFF/ELF)を組み合わせることで、監査可能な帰属連鎖を提供します。一方、多糖フィンガープリントや分子量スペクトルは曝露および薬理力学的効果に整合したQマーカーのプリミティブとして機能します(84,85).さらに、化学的・構造的特徴付け(例:単糖組成、グリコシド連鎖プロファイリング、分子量分布)により、粗い「多糖成分」測定86,87を超えたトレーサビリティや規制レベルの標準化が強化されます。レスメチロムやGLP-1受容体作動薬との併用戦略は機構的に相補的であり、前者は肝細胞脂質処理と線維症の読み取りを重視し、後者は体重とインスリン抵抗性を重視します。このような組み合わせは、特に複数の代謝因子を投与される集団において、事前に定められた安全性監視と慎重な背景療法の記録をもって評価されるべきです。
4つの介入クラスにおいて、障壁–TLR4–NLRP3脊椎に沿ったアンカリングノードは、薬理動態や作用部位、マルチオミクスの読み取り、集団のエンドポイントに至るまで、エビデンスフローにおいて明確でありながら収束しています。ベルベリンは高管曝露とBA–FXRシグナル伝達を介して作用します。QSHYはバリア–胆汁酸–TLR4軸の協調制御を提供します。DCHDはGVBと上皮関門に免疫代謝再調整を促し、二重防御を確立します。多糖類は粘膜免疫・障壁・インフラマソーム回路を通じて上流ノイズを低減します。機構的マーカー(透過率/LBP、sIgA、BAプロファイル、IL-1β/IL-18)と段階的な画像診断エンドポイント(可能な限りMRI-PDFFおよびELF/MRE)をあらかじめ指定された層別化器に昇格させることで、解釈可能性が向上し、異質性を低減できます。これらをQマーカー駆動の品質管理および曝露効果連鎖に組み込むことは、再現性と規制グレードの翻訳性に不可欠です。今後の試験では、障壁/GVB指数とMRI-PDFF/ELF/MREを組み合わせ、先験的に「高透過性–炎症」サブグループを濃縮してシグナル・トゥ・アウトカム経路を明確にする階層的エンドポイントを固定すべきです。したがって、多糖類はバリアリンパ節およびインフラマソーム結節を越えて強力な免疫調節的コヒーレンスを示す一方で、現時点でのエビデンス基盤は主に前臨床段階にとどまっています。有効性に関する確固たる結論を導くには、標準化された製剤、再現可能なQマーカー、階層化された画像診断エンドポイントを用いた臨床検証が必要です。
介入ごとに証拠の強さは均一ではありません。ベルベリンベースの製剤は現在、最も強力なヒト画像診断支持データを持っていますが、QSHYは主に代理エンドポイントに対する多施設RCTの支持が新たに実証されています。DCHDおよび多糖類は機構的に整合性を保っていますが、主に前臨床的または異質な臨床的証拠によって支持されています。この非対称性は、広範な翻訳的主張が推進される前に構造化されたグレーディング、再現性、標準化された定式化の重要性を強調しています( 表2参照)。
| 介入クラス | 脊椎の一次結節 | 主な機構的主張 | オリジナル研究における報告された翻訳的結果 | ヒト証拠の現状 | 証拠レベル | 代表的な研究 |
| ベルベリン/ベルベリン系製剤(HTD1801/BUDCA) | バリア/BA–FXR;下流のTLR4/NLRP3(主に前臨床) | 微生物BSH阻害→↑タウロ結合BA(例:TCA)→回腸のFXR–FGF15活性化→↓肝Cd36;障壁/TLR4軸減衰およびインフラマソーム抑制の提案 | 画像診断:MRI-PDFF;生化学的:ALT/AST、代謝パラメータ;機構:回腸FXR/FGF15ターゲット、BAプロファイル | MRI-PDFF減少(代謝アウトカムを含む)を用いた第2相プラセボ対照RCT(代謝アウトカム付近) | 画像診断/生化学的エンドポイントのレベル1–2;インフラマソーム請求はレベル3 | ハリソン、et.al、2021年14頁;et.al 日、2017年12件;ネジャティ、et.al 年、2022年62頁;聶 et.al、2024年63 |
| Qushihuayu(QSHY)/QHDの前身 | バリア;BA/AMPK関連の代謝調整;TLR4軸(機械論的) | TJの復元とLPS転座の減少;MAPK関連の上流規制(前臨床);AMPK/CPT-1A連鎖FAOおよび代謝再プログラム;微生物叢–脂質ドームの再構築 | 人間:ALT/AST、FIB-4;VCTE-LFC(ALTと共同小学校);マイクロバイオーム/代謝物のシグネチャーによる反応の追跡;前臨床:AMPK/CPT-1A/FAOの数値;マイクロバイオーム+リピドミクスの変化 | 多施設二重盲検、二重ダミーRCT(共主発評価項目(VCTE-LFC + ALT)、二次線維症代理治療 | 代理臨床評価項目+オミクス関連のレベル1;メカニスティックノード請求のレベル3 | リウ、et.al 年、2024年15頁;Feng, et.al, 201371;2022年 et.al 日72 |
| 大柴胡煎水(DCHD) | GVB;上流のバリア;PPAR/AMPK–NF-κBクロストーク(前臨床期) | 過栄養条件下でGVBの完全性(PLVAP/PV-1連結)を保ちます。門脈フラックス/転座イベントの減少;NAFLDモデルにおける代謝および炎症表現型の改善 | 前臨床:組織学、脂質/IR測定;腸内細菌叢+血清代謝学;GVBの完全性マーカー(PLVAP/PV-1) | 臨床証拠は主に異質な研究から得られ、システマティックレビューでまとめられています。限定的なイメージング層エンドポイント | 主にレベル3;臨床信号の異質性 | 崔氏、et.al 年、2020年16人;Wang, et.al, 202378;Mou, et.al, 202480 |
| TCM多糖類(黄耆、ガノデルマ) | 粘膜免疫/バリア;TLR4–NF-κB;NLRP3(主に前臨床) | バリア強化(TJタンパク質)、粘膜免疫調節(sIgA);内毒素血症の減少;インフラマソーム抑制が報告された。NAFLDモデルにおける微生物叢/細菌叢の結合 | 前臨床期:TJタンパク質(ZO-1/オクルディン)、sIgA、サイトカイン;腸内細菌叢の構成;BAホメオスタシス(経路に焦点を当てた読み出しを含む);肝臓:インフラマソームマーカー(損傷モデルにおけるIL-1β/IL-18/NLRP3) | ロバストヒト画像診断/線維症中心試験は限定的;主に機構的・前臨床的なエビデンス | 主にレベル3 | 鄭、et.al、2024年18頁;Ying, et.al, 202082;中、et.al、2022年49頁 |
表2:バリア–TLR4–NLRP3軸にマッピングされ、翻訳結果を報告した代表的な介入。
腸・肝免疫脊椎に結びついたバイオマーカーと応答型
最小バイオマーカーパネルと閾値定義
「バリア–TLR4–NLRP3」脊椎の運用には、画像診断および臨床評価項目を追跡する最小限の生体内再現パネルが必要です。腸由来分子負荷に関しては、系統的レビューとメタアナリシスにより、循環中のリポ多糖はMASLDからMASH、進行線維症までスペクトル全体で上昇し、層化や近接曝露の読み取り値1,90,91として利用されることが示されています。LPSの定量は方法論的に異質であるため、研究ではLPS結合タンパク質と可溶性CD14(sCD14)を代替として用いることが多く、両者ともLPS活性と相関していますが特異性に欠け、食後の変動に敏感であり、ペア断食ベースラインと標準化された食後サンプリングを推奨し、明示的なタイミングと解釈の注意書きを付けています(1,92)。さらに、脂質Aの構造的多様性はTLR4の閾値に影響を与えるため、クロススタディ比較ではLPSの供給源とアッセイ形式を明確にし、「同じ名前・異なる分子」バイアスを避けるべきです。
したがって、TCM志向の臨床試験では、バイオマーカーの選択は理論的完全性よりもアッセイの再現性とクロスコホート比較性を優先し、すべての曝露結果には方法論的透明性が伴うべきです。
胆汁酸プロファイリングはBA–FXR/TGR5の調節不全を観察する窓を提供します。MASHでは、糞便および血漿のBA総量および特定の種(例:コリン酸、ケノデオキシコール酸)が頻繁に上昇し、線維化段階やインスリン抵抗性と関連し、「BA–FXR優位」サブタイプ94を支持します。血漿中では、7α-ヒドロキシ-4-コレステン-3-1(C4)はBA合成を反映し、通常は逆方向に回腸FXR–FGF19フィードバックを追跡します。FGF19とC4を統合した読み取り値は動的FXR状態の解明に役立ち、BA–FXR–ターゲット的介入への反応度を測るために用いられます。短鎖脂肪酸(SCFA)の場合、ステアトーシスや線維症との関連は食事や生態に方向的に依存します。糞便または血漿のSCFAをメタゲノム機能能力(SCFA生合成経路)および受容体読み取り(GPR41/43)と組み合わせることで外部妥当性が向上します98。
BAおよびSCFAの測定は食事摂取量、マイクロバイオーム生態系、LC-MSプラットフォームの変動性に敏感であるため、これらのマーカーがTCM試験の相棒バイオマーカーとして機能するためには、事前に指定されたサンプリングプロトコルと分析パイプラインが不可欠です。
「透水率」の直接的な測定は依然として未解決です。ヒトゾヌリンは前ハプトグロビン-2に対応しますが、一般的に使われるELISAは特異性に欠け、適切なセルディンや他の「ゾヌリンファミリー」メンバーと交差反応し、コホート間で不安定な結果をもたらすことがあります。ゾヌリンは探索的として扱い、機能的透過性試験やバリア転写署名と交差検証して偽陽性ガイダンスを最小限に抑えるのが最適です。細菌転座(循環型または肝臓の16S rDNA)の分子的証拠は本質的にバイオマスが少なく、試薬やバッチ汚染の危険があります。厳格な否定対照および除染パイプラインは必須であり、代謝性・肥満肝組織で差異が報告されても因果解釈には慎重であるべきです。
閾値画像診断および線維症の読み取りは、標準化された「ゴー/ノーゴー」ゲートを提供します。MRI-PDFFの相対的な≥30%の相対的減少は組織学的反応(NAS改善/MASH解決)と相関し、4〜12週間の中間意思決定およびサンプルサイズ計画に適しています102,103。肝線維症(ELF)の閾値9.8および11.3は、長期的なリスク階層化および監視トリガーを支持しています。磁気共鳴エラストグラフィー(MRE)による肝硬さ約3.3 kPaと、MEFIBルールとしてFIB-4≥1.6を組み合わせることで、≥F2線維症を高信頼性で高信頼性で濃縮し、高リスク集団の迅速な特定と登録104の指針となります。TCMの発達においては、近位免疫マーカー(例:LBP、IL-1β)と階層化された画像診断閾値を組み合わせることで、生化学的代理物単独への依存を減らす階層的枠組みを提供します。
免疫脊椎に固定された反応型
「epithelium/GVB → LPS–TLR4–NF-κB → NLRP3」という配列を組織基盤として用いることで、MASLD/MASHは介入対応可能な3つのサブタイプに運用的に分割できます。バリア優位表現型は、空腹時血糖値の上昇または食後の標準化されたLBP/sCD14、一次・二次胆汁酸比率の増加、粘膜免疫バランスの乱れを特徴とします。画像診断では通常、MRI-PDFFが高いものの、MRE/ELFは依然として低〜中リスク範囲にあり、上皮およびGVBの完全性を強化し、腸叢を再構築し、胆汁酸プールを正規化する第一選択戦略が推奨されます。早期反応は、LBP/sCD14の連動低下とPDFFの減少によって判断されます。1,92。
このサブタイプは、障壁安定化や微生物叢の再構築を重視するTCM戦略(例:多糖類やQSHY様式)に特に関連性が高く、障壁標的試験における濃縮の合理的な基盤を提供します。インフラマソーム優位の表現型は、血液または肝臓中のIL-1βが上昇し、転写本/タンパク質レベルでのNLRP3およびピロプトーシス(GSDMD-N)シグネチャーが陽性であり、線維症の読み取り値が同時に悪化する特徴があります。ヒト組織および動物モデルは、GSDMD-Nが疾患活動や線維化とともに増加し、選択的NLRP3阻害は肝炎と線維化を減少させる一方で、ステアトーシスへの影響は限定的であることを示しており、脂肪減少が炎症性・線維化性の改善に結びつかないミスマッチリスクを浮き彫りにしています。このサブタイプでは、NLRP3–カスパーゼ1–IL-1β阻害とAMPK/Nrf2誘導代謝再プログラミングを組み合わせることで、反応の確率が高まる可能性があります7,36。
TCMの文脈では、この表現型はインフラマソームシグナル伝達を調節すると報告されている薬剤(例:BBR、APS)と機構的に一致し、「脂肪のみ」のエンドポイントが経路と一致する利益を捉えられないリスクを強調しています。BA–FXR調節異常表現型は、糞便・血漿BA組成の異常とFGF19/C4の動態の乱により示され、腸・肝のBA–FXR/TGR5回路の非生理的状態が示唆されます。バリア/微生物叢の測定を超えて、このサブタイプはFXR/TGR5の応答性と安全マージンの明確な評価が必要です。有効性は、生理学的再調整とPDFFおよびMRE94,95における一致した改善によって判断されるべきです。胆汁酸プールやFXR活性に影響を与えるTCM介入においては、このサブタイプは安全マージンと標的外胆汁酸効果が監視される限り、生物学的に整合した濃縮戦略を提供します。
層別アライメントと縦断的追跡
個人レベルでバイオマーカー→アウトカム→メカニズムを翻訳するためには、3つの時点の枠組みが推奨されます。すなわち、ベースライン→中間期(4〜12週)→アウトカム≥24〜48週)です。ベースライン検査には、最小限のパネル(LBP/sCD14、BAプロファイリング、そして参考になる場合はSCFAsおよび厳格に除染された16S rDNA)、MRI-PDFF/MREによる画像診断、リスク分類(例:MEFIB)が含まれ、3クラススキーマ105に基づく共通およびサブタイプ特異的二次評価点を事前に指定しました。その間、MRI-PDFFはゴー/ノーゴーのシグナルとして機能します。4〜12週間以内に≥30%の相対的な減少とLBP/sCD14の同期的な低下は、バリアアームが効果的に作用していることを示しています。PDFFが減少してもIL-1β/GSDMD-NやELF/MREが改善しない場合、このパターンはインフラマソーム優性の不一致を示唆し、追加またはNLRP3–カスパーゼ-1誘導戦略への切り替えを促すべきです(102,103)。
アウトカムウィンドウは≥24〜48週間のMRE/ELFおよび臨床評価項目を優先し、線維化の動態を捉えています。ELF閾値9.8/11.3とMREゲート約3.3 kPa、さらにMEFIBルールのFIB-4≥1.6)は、リスクの再階層化および事象裁定104を支持しています。多オミクスに基づく固定リスク層化の実現可能性を支持するものとして、肝硬変における最近の糞便マイクロバイオームメタボローム研究は、合併症依存的な微生物および代謝の特徴を良好な診断性能と臨床マーカーとの相関で特定し、腸由来オミクスが臨床的に意味のあるアウトカムと結びつく方法を示しました78.本質的にバイオマスが低いアッセイでは、ネガティブコントロールおよび除染パイプラインを開示しなければなりません。ゾヌリンは探索的であり、機能的透過性検査や上皮バリアの特徴と相互検証して誤陽性ガイダンス101を避けるべきです。
この枠組みの中で、最小限バイオマーカーパネルと階層的な画像診断閾値は、応答型付けと追跡のための一貫したシステムを支えています。バリア優位、インフラマソーム優位、BA–FXR調節不全群は、実用的な戦略に対応する—上皮細胞/GVB保護と腸内細菌叢–BAリモデリング;代謝再調整を伴うNLRP3–カスパーゼ1阻害;それぞれFXR/TGR5の変調を用いており、LBP/sCD14、BAプロファイル、IL-1β/GSDMD-N、MRI-PDFF/MRE/ELFの協調的な変化による検証が行われました。このようにして、免疫脊椎は試験1,103における暫定停止規則、強化、監視の対象となる「誰が利益を得るか」の検査可能な基準となります。サブタイプ、介入クラス、階層的エンドポイントを明示的に結びつけることで、免疫スパインは検証可能な「受益者」基準に変換され、臨床試験の効率向上、異質性の低減、因果帰属強化が可能となります。
バイオマーカー誘導設計の例示的でプロトコルレベルの実例
提案されたバイオマーカーおよび適応設計コンセプトの実装可能性を高めるため、仮説的なパラメータ選択ではなく、発表済みの試験デザインや検証済みの画像/バイオマーカー閾値に根ざした2つのプロトコルレベルの作業例を提供します。目的は、あらかじめ指定されたエンドポイント、中間決定ルール、再現可能なアッセイを用いて、メカニスティックなサブタイピングをどのように操作化できるかを示すことです。
作業例1:障壁濃縮式試験(QSHY)で、画像ゲートと線維症の読み取り結果付き。
障壁優位スキーマの実践的な実装は、既存の多施設・二重盲検・二重ダミー無作為化試験デザインであるQushi Huayu(QSHY)をNAFLD集団で活用できます。QSHYでは、肝脂肪含有量に整合した共一次評価項目を振動制御の過渡性エラストグラフィーと24週のALTで用いました。強化プロトコルでは、MRI-PDFFによる基礎ステアトーシス(例:≥10%)および障壁関連曝露(LBPおよび/またはスクリーニング対象コホートの上位三位数/四位位を超える)の上昇を事前に指定しつつ、実現可能性と解釈可能性のために同じ盲検および比較対象構造を維持できます。12週目の中間決定はMRI-PDFFをゲートとして用い、メタ分析的証拠に基づく≥30%の相対的な減少を早期反応シグナルとして定義し、この閾値を組織学的反応およびNASH解決102 、線維症回帰オッズ103と結びつけます。参加者は線維症に焦点を当てたアウトカム(ELFおよび/またはMRE)を優先し、確立された予後ELF層(例:<9.8 vs ≥11.3)を用いてリスク再分類およびアウトカム解釈を行い、24週から48週まで継続しました104。線維症の濃縮が望ましい場合、MEFIBルールイン(MRE ≥3.3 kPa plus FIB-4 ≥1.6)は、基準線で適格層または線維症関連推論のパワー強化のためのキーサブグループとして事前に指定できます。伴随バイオマーカー(LBP/sCD14、探索用IL-1β/GSDMD-N)はベースラインおよび12週目に採取され、経路結合の検証および不協和画像/生化学的軌跡の機構的解釈を支持します。
作業例2:BA–FXR強化介入試験(ベルベリンベースの製剤)でPDFFゲートおよび代謝の共同評価項目を用いる。
BA–FXR調節不全の実装は、ベルベリンウルソデオキシコール酸(HTD1801/BUDCA)の第2相プラセボ対照試験に結びつき、2型糖尿病14型の推定NASHにおいてMRI-PDFFの有意な減少と代謝改善が示されました。実現可能なプロトコルは、基礎BAプロファイルおよび/またはFGF19–C4ダイナミクス(論文で説明されている通り)を用いてBA軸濃縮を事前に指定しつつ、MRI-PDFFを主要な初期画像診断エンドポイントとして保持します。12〜18週間の中間ゲートは、初期段階の証拠102と整合し、実行/拒否の意思決定とサンプルサイズ計画を支援するために、≥30%相対PDF減少閾値を再び採用する可能性があります。ベルベリン産物の臨床シグナルは異質性を示すため(NAFLDのサブセットにおける肝酵素や代謝指標に対する中立的な影響を報告するRCTも含む)、プロトコルは応答型付けや計画された異質性解析を事前に指定すべきであり、帰無信号を事後的な驚きとして扱うべきではない。最近のメタアナリシスでは、ベルベリン試験間で製剤、用量、患者プロファイルにばらつきがあることが明らかになり、伴随バイオマーカーと層別解釈の必要性を支持しています。安全性モニタリングは、代謝治療コホートにおける消化管の耐容性および薬物間相互作用の可能性に特に注意を払い、HTD1801試験で報告された有害事象パターンに沿った前向きな定義を行うべきです14。
実装テンプレート:簡略化されたバイオマーカー駆動MAMS
実用的な多腕多段階アプローチは、高度にパラメータ化された適応プラットフォームではなく、臨床的によく知られた3つの事前に指定されたゲートとして捉えることができます。ステージ1はエビデンスに基づくゲート102を用いて早期肝脂肪反応(MRI-PDFF≥30%相対減少)による介入を選択します。第2段階では、ELFおよび/またはMRE(オプションでMEFIB濃縮を含む)を用いて線維症動態を24〜48週間評価します。104,105;ステージ3では、事前に指定された複合素材の成果と安全性プロファイルにより耐久性が確認されます。報告は、アダプティブ設計のCONSORT拡張(ACE)に従い、事前計画された適応、停止ルール、タイプIエラー制御106の透明性を確保しなければなりません。この「実行テンプレート」は、伴随バイオマーカー(LBP/sCD14、BA/FGF19–C4、IL-1β/GSDMD-N)を通じて機構的濃縮を維持しつつ、フレームワークの実装性を保ちます。
結論
上皮および腸の血管障壁機能不全、門脈分子流入、TLR4–NF-κB増幅、NLRP3介在のピロプトーシスという連続した一連の現象を通じて、現在の証拠はMASLD/MASHの免疫代謝疾患の構造を示しています。上皮のタイトジャンクションの再編成とGVB漏れは、正弦波型自然免疫の活性化閾値を下げます。腸由来の入力—LPS、内因性エタノール、異常胆汁酸プロファイル—は肝臓のTLR4によって感知され、炎症カスケードを通じて伝播し、最終的にNLRP3–カスパーゼ-1–IL-1β/IL-18シグナル伝達に収束して炎症と線維化を引き起こす26,27,33。このスパインはBA–FXR/TGR5、SCFA–GPR41/43、AMPK/Nrf2回路と階層的に結合しており、代謝と免疫の双方向調整を可能にします。この生物学的文脈において、多標的自然因子はバリア、受容体–シグナル結節、代謝閾値への「同軸」介入を可能にします。ベルベリンは細菌のBSHを阻害し、胆汁酸プールを再構築し、回腸FXR–FGF15軸を活性化することで、肝内免疫代謝指標に対して低全身曝露制御を行い、イオン複合体の第2相試験においてMRI-PDFFを還元します12,13.フォーミュラベースの療法や多糖類は、バリア修復およびインフラマソーム抑制のための翻訳シグナルを追加します15,17。腸軸と肝軸は、メカニズム、バイオマーカー、臨床エンドポイントを単一の座標系内で整合させる実用的な基盤を提供します。
この知識を成果に結びつけるには、3つの重要な発展が必要です。まず、GVBの直接的な人間の証拠と再現可能な機能的測定値が必要です。協調した上皮–内皮の破破(空腹時の時間系列プロファイリング)と、FGF19/C4の胆汁酸合成および回腸フィードバックの動態に結びついた標準化された食後LBP/sCD14の複合指標を、縦断画像および臨床追跡に組み込むことで、長期画像および臨床フォローアップに組み込まれた「臓器曝露→バリア」鎖→検証可能なものを確立します26,27.第二に、マルチオミクスから階層的エンドポイントへの橋渡しを明確にすべきです。すなわち、前向きメタゲノミクス/トランスクリプトミクスを血漿および糞便BAスペクトルとSCFAを画像閾値に整合させること(中間ゲートとして12〜24週での相対MRI-PDFF減少≥30%、線維症および予後層化のために24〜48週にELF(9.8/11.3)を伴うMRE(~3.3–3.5 kPa)を用い、機構的シグナルが構造的およびアウトカムの読み取りと同じ枠組みを占めるようにすること102。105。第三に、層化仮説はあらかじめ特定され反証可能であるべきです。空腹時または標準化された食後LBP/sCD14の上位四分位数に属する人は、バリア/GVB保護と微生物叢–バリアの正規化を合わせて≥30%のPDFF減少を達成する可能性が高く、それに伴いLBP/sCD14の減少も一致するはずです。IL-1βまたはNLRP3/ピロプトーシス(GSDMD-N)シグネチャーが上昇している人は、NLRP3–カスパーゼ-1阻害をAMPK/Nrf2再調整と結合した際にELF/MREの改善を優先的に示すべきです。インフラマソーム優位生物学における障壁単独戦略への依存は、筋維症なしのステアトーシス減少というよく知られたミスマッチのリスクがあります。利益は17,102です。
方法論的には、多腕多段階およびバイオマーカー駆動の適応設計は、多機構プログラムにおける効率性と再現性を高めることができます。初期段階ではMRI-PDFFの低下≥30%で制限され、低確率群のトリアージが可能です。第二段階では、ELF/MREを組み込み、バリア優勢、インフラマソーム優勢、BA–FXR調節異常層におけるランダム化を更新できます。第3段階では、48週間の臨床・画像診断複合アウトカムを評価することができます。ゲートの閾値、停止ルール、α割り当ては事前登録され、透明性を保つべきです。低バイオマスアッセイ(例:循環型または組織16S rDNA)は厳格なネガティブコントロールおよび除染パイプラインを必要とし、Qマーカーは材料ベース、生体内曝露、薬理力学的読み取り101,106におけるバッチの一貫性とトレーサビリティを確保する必要があります。バリア–自然免疫–代謝脊椎をあらかじめ指定された層、階層的評価点、適応的試験と統合することで、多標的介入を概念実証から定義された集団における持続的な利益へと移行させ、MASLD/MASHにおける生物学的異質性を明らかにし、正確かつ翻訳可能な併用療法のための運用的枠組みを提供します。
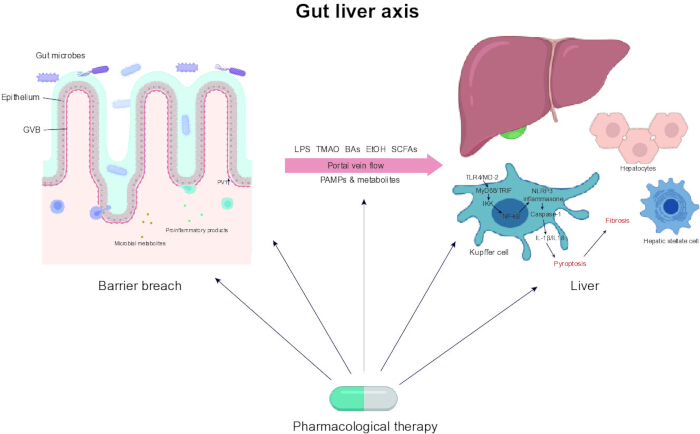
図1:MASLD/MASHにおける腸-肝軸の図的要約。この図は、MASLDにおける腸-肝軸の主要なメカニズムと治療的意味合いと、それがMASHに進行する過程をまとめています。腸由来物質(例:LPS、BAs、SCFAs、TMAO)が腸関門静脈を介して肝臓に移動し、免疫反応(例:TLR4–NF-κB、NLRP3インフラマソーム)を活性化し、炎症、肝細胞損傷、線維化を引き起こす様子を示しています。また、この枠組みは多標的療法を強調し、MASLD/MASHにおけるバイオマーカー誘導型の層別介入戦略を支えています。略称:MASLD = 代謝機能障害関連ステアトーティック肝疾患;MASH = 代謝機能障害に関連する脂肪性肝炎;LPS = リポ多糖;BAs = 胆汁酸;SCFAs = 短鎖脂肪酸;TMAO = トリメチルアミンN-酸化物;TLR4 = Toll様受容体4;NF-κB = 核因子カッパB;NLRP3 = NOD-、LRR-、ピリンドメインを含むタンパク質3。この図の拡大版はこちらをクリックしてご覧ください。
開示事項
著者には開示すべき利益相反はありません。
謝辞
この活動は浙江省中医科学技術プログラム(番号2024ZL1181)および金華市科学技術プログラム、社会開発重点プロジェクト(番号2024-3-071)の支援を受けました。
参考文献
- Soppert, J., et al. Blood endotoxin levels as biomarker of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 21, 2746-2758 (2023).
- Yuan, J., et al. Fatty liver disease caused by high-alcohol-producing Klebsiella pneumoniae. Cell Metab. 30, 675-688.e7 (2019).
- Sharifnia, T., et al. Hepatic TLR4 signaling in obese NAFLD. Am J Physiol Gastrointest Liver Physiol. 309, G270-G278 (2015).
- Miura, K., Yang, L., van Rooijen, N., Ohnishi, H., Seki, E. Hepatic recruitment of macrophages promotes nonalcoholic steatohepatitis through CCR2. Am J Physiol Gastrointest Liver Physiol. 302, G1310-G1321 (2012).
- Seki, E., et al. TLR4 enhances TGF-beta signaling and hepatic fibrosis. Nat Med. 13, 1324-1332 (2007).
- Wree, A., et al. NLRP3 inflammasome activation results in hepatocyte pyroptosis, liver inflammation, and fibrosis in mice. Hepatology. 59, 898-910 (2014).
- Mridha, A. R., et al. NLRP3 inflammasome blockade reduces liver inflammation and fibrosis in experimental NASH in mice. J Hepatol. 66, 1037-1046 (2017).
- Ioannou, G. N., et al. Genetic deletion or pharmacologic inhibition of the Nlrp3 inflammasome did not ameliorate experimental NASH. J Lipid Res. 64, 100330(2023).
- Neuschwander-Tetri, B. A., et al. Farnesoid X nuclear receptor ligand obeticholic acid for non-cirrhotic, non-alcoholic steatohepatitis (FLINT): a multicentre, randomised, placebo-controlled trial. Lancet. 385, 956-965 (2015).
- Thomas, C., et al. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metab. 10, 167-177 (2009).
- Gao, W., et al. Dissecting the crosstalk between Nrf2 and NF-κB response pathways in drug-induced toxicity. Front Cell Dev Biol. 9, 809952(2021).
- Sun, R., et al. Orally administered berberine modulates hepatic lipid metabolism by altering microbial bile acid metabolism and the intestinal FXR signaling pathway. Mol Pharmacol. 91, 110-122 (2017).
- Tian, Y., et al. Berberine directly affects the gut microbiota to promote intestinal farnesoid X receptor activation. Drug Metab Dispos. 47, 86-93 (2019).
- Harrison, S. A., et al. A phase 2, proof of concept, randomised controlled trial of berberine ursodeoxycholate in patients with presumed non-alcoholic steatohepatitis and type 2 diabetes. Nat Commun. 12, 5503(2021).
- Liu, Q., et al. Efficacy and safety of Qushi Huayu, a traditional Chinese medicine, in patients with nonalcoholic fatty liver disease in a randomized controlled trial. Phytomedicine. 130, 155398(2024).
- Cui, H., et al. Da-Chai-Hu decoction ameliorates high fat diet-induced nonalcoholic fatty liver disease through remodeling the gut microbiota and modulating the serum metabolism. Front Pharmacol. 11, 584090(2020).
- Chen, Y. S., Chen, Q. Z., Wang, Z. J., Hua, C. Anti-inflammatory and hepatoprotective effects of Ganoderma lucidum polysaccharides against carbon tetrachloride-induced liver injury in Kunming mice. Pharmacology. 103, 143-150 (2019).
- Zheng, N., Wang, H., Zhu, W., Li, Y., Li, H. Astragalus polysaccharide attenuates nonalcoholic fatty liver disease through THDCA in high-fat diet-fed mice. J Ethnopharmacol. 320, 117401(2024).
- Saeed, H., et al. Microbiome-centered therapies for the management of metabolic dysfunction-associated steatotic liver disease. Clin Mol Hepatol. 31, S94-S111 (2025).
- Al-Sadi, R., Guo, S., Ye, D., Rawat, M., Ma, T. Y. TNF-α modulation of intestinal tight junction permeability is mediated by NIK/IKK-α axis activation of the canonical NF-κB pathway. Am J Pathol. 186, 1151-1165 (2016).
- Marchiando, A. M., et al. Caveolin-1-dependent occludin endocytosis is required for TNF-induced tight junction regulation in vivo. J Cell Biol. 189, 111-126 (2010).
- Jakobsson, H. E., et al. The composition of the gut microbiota shapes the colon mucus barrier. EMBO Rep. 16, 164-177 (2015).
- Allam-Ndoul, B., Castonguay-Paradis, S., Veilleux, A. Gut microbiota and intestinal trans-epithelial permeability. Int J Mol Sci. 21, 6402(2020).
- Takiishi, T., Fenero, C. I. M., Câmara, N. O. S. Intestinal barrier and gut microbiota: shaping our immune responses throughout life. Tissue Barriers. 5, e1373208(2017).
- Kimura, I., et al. The gut microbiota suppresses insulin-mediated fat accumulation via the short-chain fatty acid receptor GPR43. Nat Commun. 4, 1829(2013).
- Spadoni, I., et al. A gut-vascular barrier controls the systemic dissemination of bacteria. Science. 350, 830-834 (2015).
- Mouries, J., et al. Microbiota-driven gut vascular barrier disruption is a prerequisite for non-alcoholic steatohepatitis development. J Hepatol. 71, 1216-1228 (2019).
- Di Tommaso, N., Santopaolo, F., Gasbarrini, A., Ponziani, F. R. The gut-vascular barrier as a new protagonist in intestinal and extraintestinal diseases. Int J Mol Sci. 24, 1470(2023).
- Vinolo, M. A., Rodrigues, H. G., Nachbar, R. T., Curi, R. Regulation of inflammation by short chain fatty acids. Nutrients. 3, 858-876 (2011).
- Corrêa-Oliveira, R., Fachi, J. L., Vieira, A., Sato, F. T., Vinolo, M. A. Regulation of immune cell function by short-chain fatty acids. Clin Transl Immunology. 5, e73(2016).
- Larabi, A. B., Masson, H. L. P., Bäumler, A. J. Bile acids as modulators of gut microbiota composition and function. Gut Microbes. 15, 2172671(2023).
- Kim, S. Y., et al. Pro-inflammatory hepatic macrophages generate ROS through NADPH oxidase 2 via endocytosis of monomeric TLR4-MD2 complex. Nat Commun. 8, 2247(2017).
- Yu, L., et al. The NLRP3 inflammasome in non-alcoholic fatty liver disease and steatohepatitis: therapeutic targets and treatment. Front Pharmacol. 13, 780496(2022).
- Wang, L., Hauenstein, A. V. The NLRP3 inflammasome: mechanism of action, role in disease and therapies. Mol Aspects Med. 76, 100889(2020).
- Liang, J. Q., et al. Dietary cholesterol promotes steatohepatitis related hepatocellular carcinoma through dysregulated metabolism and calcium signaling. Nat Commun. 9, 4490(2018).
- Xu, B., et al. Gasdermin D plays a key role as a pyroptosis executor of non-alcoholic steatohepatitis in humans and mice. J Hepatol. 68, 773-782 (2018).
- Tilg, H., Cani, P. D., Mayer, E. A. Gut microbiome and liver diseases. Gut. 65, 2035-2044 (2016).
- Ye, D., Ma, I., Ma, T. Y. Molecular mechanism of tumor necrosis factor-alpha modulation of intestinal epithelial tight junction barrier. Am J Physiol Gastrointest Liver Physiol. 290, G496-G504 (2006).
- Farhadi, A., et al. Susceptibility to gut leakiness: a possible mechanism for endotoxaemia in non-alcoholic steatohepatitis. Liver Int. 28, 1026-1033 (2008).
- Wree, A., et al. NLRP3 inflammasome activation is required for fibrosis development in NAFLD. J Mol Med (Berl). 92, 1069-1082 (2014).
- Panossian, A. Trends and pitfalls in the progress of network pharmacology research on natural products. Pharmaceuticals (Basel). 18, 538(2025).
- Li, L., et al. Network pharmacology: a bright guiding light on the way to explore the personalized precise medication of traditional Chinese medicine. Chin Med. 18, 146(2023).
- Stroeve, J. H., et al. Intestinal FXR-mediated FGF15 production contributes to diurnal control of hepatic bile acid synthesis in mice. Lab Invest. 90, 1457-1467 (2010).
- Song, L., et al. Hepatic FXR-FGF4 is required for bile acid homeostasis via an FGFR4-LRH-1 signal node under cholestatic stress. Cell Metab. 37, 104-120.e9 (2025).
- Lan, Q., et al. Hepatoprotective effect of Qushihuayu formula on non-alcoholic steatohepatitis induced by MCD diet in rat. Chin Med. 16, 27(2021).
- Sterne, J. A. C., et al. 2: a revised tool for assessing risk of bias in randomised trials. BMJ. 366, 14898(2019).
- Sterne, J. A., et al. ROBINS-I: a tool for assessing risk of bias in non-randomised studies of interventions. BMJ. 355, i4919(2016).
- Verbeke, L., et al. The FXR agonist obeticholic acid prevents gut barrier dysfunction and bacterial translocation in cholestatic rats. Am J Pathol. 185, 409-419 (2015).
- Zhong, M., et al. Astragalus mongholicus polysaccharides ameliorate hepatic lipid accumulation and inflammation as well as modulate gut microbiota in NAFLD rats. Food Funct. 13, 7287-7301 (2022).
- Bhattacharyya, S., et al. Toll-like receptor 4 signaling augments transforming growth factor-β responses: a novel mechanism for maintaining and amplifying fibrosis in scleroderma. Am J Pathol. 182, 192-205 (2013).
- Ali, A. A., Fouda, A., Abdelaziz, E. S., Abdelkawy, K., Ahmed, M. H. The promising role of CCL2 as a noninvasive marker for nonalcoholic steatohepatitis diagnosis in Egyptian populations. Eur J Gastroenterol Hepatol. 33, e954-e960 (2021).
- Menzel, A., et al. Common and novel markers for measuring inflammation and oxidative stress ex vivo in research and clinical practice-which to use regarding disease outcomes. Antioxidants (Basel). 10, 414(2021).
- Trubnikov, A., et al. Effectiveness and safety of a shorter treatment regimen in a setting with a high burden of multidrug-resistant tuberculosis. Int J Environ Res Public Health. 18, 4121(2021).
- Chang, C. J., et al. Ganoderma lucidum reduces obesity in mice by modulating the composition of the gut microbiota. Nat Commun. 6, 7489(2015).
- Liu, Y. T., et al. Extensive intestinal first-pass elimination and predominant hepatic distribution of berberine explain its low plasma levels in rats. Drug Metab Dispos. 38, 1779-1784 (2010).
- Tan, X. S., et al. Tissue distribution of berberine and its metabolites after oral administration in rats. PLoS One. 8, e77969(2013).
- Chen, W., et al. Bioavailability study of berberine and the enhancing effects of TPGS on intestinal absorption in rats. AAPS PharmSciTech. 12, 705-711 (2011).
- Roy, S., et al. Hepatic NLRP3-derived Hsp70 binding to TLR4 mediates MASLD to MASH progression upon inhibition of PP2A by harmful algal bloom toxin microcystin, a second hit. Int J Mol Sci. 24, 16354(2023).
- Zeng, H., Umar, S., Rust, B., Lazarova, D., Bordonaro, M. Secondary bile acids and short chain fatty acids in the colon: a focus on colonic microbiome, cell proliferation, inflammation, and cancer. Int J Mol Sci. 20, 1214(2019).
- Visekruna, A., Luu, M. The role of short-chain fatty acids and bile acids in intestinal and liver function, inflammation, and carcinogenesis. Front Cell Dev Biol. 9, 703218(2021).
- Di Bisceglie, A. M., et al. Pharmacokinetics and pharmacodynamics of HTD1801 (berberine ursodeoxycholate, BUDCA) in patients with hyperlipidemia. Lipids Health Dis. 19, 239(2020).
- Nejati, L., Movahedi, A., Salari, G., Moeineddin, R., Nejati, P. The effect of berberine on lipid profile, liver enzymes, and fasting blood glucose in patients with non-alcoholic fatty liver disease (NAFLD): a randomized controlled trial. Med J Islam Repub Iran. 36, 39(2022).
- Nie, Q., et al. The clinical efficacy and safety of berberine in the treatment of non-alcoholic fatty liver disease: a meta-analysis and systematic review. J Transl Med. 22, 225(2024).
- Feng, R., et al. Transforming berberine into its intestine-absorbable form by the gut microbiota. Sci Rep. 5, 12155(2015).
- Gu, L., et al. Berberine ameliorates intestinal epithelial tight-junction damage and down-regulates myosin light chain kinase pathways in a mouse model of endotoxinemia. J Infect Dis. 203, 1602-1612 (2011).
- Yan, F., et al. Berberine promotes recovery of colitis and inhibits inflammatory responses in colonic macrophages and epithelial cells in DSS-treated mice. Am J Physiol Gastrointest Liver Physiol. 302, G504-G514 (2012).
- Zhang, H., et al. Berberine suppresses LPS-induced inflammation through modulating Sirt1/NF-κB signaling pathway in RAW264.7 cells. Int Immunopharmacol. 52, 93-100 (2017).
- Mai, W., et al. Berberine inhibits Nod-like receptor family pyrin domain containing 3 inflammasome activation and pyroptosis in nonalcoholic steatohepatitis via the ROS/TXNIP axis. Front Pharmacol. 11, 185(2020).
- Wei, X., Wang, C., Hao, S., Song, H., Yang, L. The therapeutic effect of berberine in the treatment of nonalcoholic fatty liver disease: a meta-analysis. Evid Based Complement Alternat Med. 2016, 3593951(2016).
- Leng, J., et al. Amelioration of non-alcoholic steatohepatitis by Qushi Huayu decoction is associated with inhibition of the intestinal mitogen-activated protein kinase pathway. Phytomedicine. 66, 153135(2020).
- Feng, Q., et al. Qushi Huayu decoction inhibits hepatic lipid accumulation by activating AMP-activated protein kinase in vivo and in vitro. Evid Based Complement Alternat Med. 2013, 184358(2013).
- Sun, Q., et al. Qushi Huayu decoction attenuated hepatic lipid accumulation via JAK2/STAT3/CPT-1A-related fatty acid β-oxidation in mice with non-alcoholic steatohepatitis. Pharm Biol. 60, 2124-2133 (2022).
- Ni, Y., et al. Qushi Huayu decoction ameliorates non-alcoholic fatty liver disease in rats by modulating gut microbiota and serum lipids. Front Endocrinol (Lausanne). 14, 1272214(2023).
- Yang, W., et al. Approaches to establish Q-markers for the quality standards of traditional Chinese medicines. Acta Pharm Sin B. 7, 439-446 (2017).
- Xiong, H., Yu, L. X., Qu, H. Batch-to-batch quality consistency evaluation of botanical drug products using multivariate statistical analysis of the chromatographic fingerprint. AAPS PharmSciTech. 14, 802-810 (2013).
- Mousa, A. M., Mahmoud, M., AlShuraiaan, G. M. Resmetirom: the first disease-specific treatment for MASH. Int J Endocrinol. 2025, 6430023(2025).
- Dahiya, K., Palkar, M., Sharma, S. Unlocking the potential of THR-β agonist therapies: resmetirom's chemistry, biology, and patent insights. Naunyn Schmiedebergs Arch Pharmacol. 398, 9703-9720 (2025).
- Wang, R., et al. Dachaihu decoction inhibits hypernutrition-induced liver metastasis from colorectal cancer by maintaining the gut vascular barrier. Cancer Pathog Ther. 1, 98-110 (2023).
- Xu, S., et al. Da-Chai-Hu-Tang protects from acute intrahepatic cholestasis by inhibiting hepatic inflammation and bile accumulation via activation of PPARα. Front Pharmacol. 13, 847483(2022).
- Mou, Z., et al. The efficacy and safety of Dachaihu decoction in the treatment of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Front Med (Lausanne). 11, 1397900(2024).
- Chen, Y., et al. Polysaccharides from traditional Chinese medicines: extraction, purification, modification, and biological activity. Molecules. 21, 1705(2016).
- Ying, M., et al. Ganoderma atrum polysaccharide ameliorates intestinal mucosal dysfunction associated with autophagy in immunosuppressed mice. Food Chem Toxicol. 138, 111244(2020).
- Chen, X., et al. Research progress on the therapeutic effect of polysaccharides on non-alcoholic fatty liver disease through the regulation of the gut-liver axis. Int J Mol Sci. 23, 11710(2022).
- Bergheim, I., Moreno-Navarrete, J. M. The relevance of intestinal barrier dysfunction, antimicrobial proteins and bacterial endotoxin in metabolic dysfunction-associated steatotic liver disease. Eur J Clin Invest. 54, e14224(2024).
- Yu, M., et al. Multiple fingerprints and spectrum-effect relationship of polysaccharides from Saposhnikoviae Radix. Molecules. 27, 5278(2022).
- Swackhamer, C., Jang, S., Park, B. R., Hamaker, B. R., Jung, S. K. Structure-based standardization of prebiotic soluble dietary fibers based on monosaccharide composition, degree of polymerization, and linkage composition. Carbohydr Polym. 367, 123949(2025).
- Zhu, Y., et al. Monosaccharide composition and glycosidic linkages analysis by ultra high performance liquid chromatography-triple quadrupole tandem mass spectrometry-case study of plant polysaccharides. Int J Biol Macromol. 281, 136471(2024).
- Zhu, B., et al. Characterization and comparison of bioactive polysaccharides from Grifola frondosa by HPSEC-MALLS-RID and saccharide mapping based on HPAEC-PAD. Polymers. 15, 208(2022).
- Suvarna, R., Shetty, S., Pappachan, J. M. Efficacy and safety of resmetirom, a selective thyroid hormone receptor-β agonist, in the treatment of metabolic dysfunction-associated steatotic liver disease (MASLD): a systematic review and meta-analysis. Sci Rep. 14, 19790(2024).
- An, L., et al. The role of gut-derived lipopolysaccharides and the intestinal barrier in fatty liver diseases. J Gastrointest Surg. 26, 671-683 (2022).
- Lau, H. C., Zhang, X., Yu, J. Gut microbiome in metabolic dysfunction-associated steatotic liver disease and associated hepatocellular carcinoma. Nat Rev Gastroenterol Hepatol. 22, 619-638 (2025).
- Hoshiko, H., et al. An observational study to evaluate the association between intestinal permeability, leaky gut related markers, and metabolic health in healthy adults. Healthcare (Basel). 9, 1583(2021).
- Mohr, A. E., Crawford, M., Jasbi, P., Fessler, S., Sweazea, K. L. Lipopolysaccharide and the gut microbiota: considering structural variation. FEBS Lett. 596, 849-875 (2022).
- Caussy, C., et al. Serum bile acid patterns are associated with the presence of NAFLD in twins, and dose-dependent changes with increase in fibrosis stage in patients with biopsy-proven NAFLD. Aliment Pharmacol Ther. 49, 183-193 (2019).
- Pattni, S. S., Brydon, W. G., Dew, T., Walters, J. R. Fibroblast growth factor 19 and 7α-hydroxy-4-cholesten-3-one in the diagnosis of patients with possible bile acid diarrhea. Clin Transl Gastroenterol. 3, e18(2012).
- Walters, J. R., et al. The response of patients with bile acid diarrhoea to the farnesoid X receptor agonist obeticholic acid. Aliment Pharmacol Ther. 41, 54-64 (2015).
- Schumacher, N., et al. Cell-autonomous hepatocyte-specific GP130 signaling is sufficient to trigger a robust innate immune response in mice. J Hepatol. 74, 407-418 (2021).
- Li, X., et al. Short-chain fatty acids in nonalcoholic fatty liver disease: new prospects for short-chain fatty acids as therapeutic targets. Heliyon. 10, e26991(2024).
- Scheffler, L., et al. Widely used commercial ELISA does not detect precursor of haptoglobin2, but recognizes properdin as a potential second member of the zonulin family. Front Endocrinol (Lausanne). 9, 22(2018).
- Tripathi, A., et al. Identification of human zonulin, a physiological modulator of tight junctions, as prehaptoglobin-2. Proc Natl Acad Sci U S A. 106, 16799-16804 (2009).
- Salter, S. J., et al. Reagent and laboratory contamination can critically impact sequence-based microbiome analyses. BMC Biol. 12, 87(2014).
- Stine, J. G., et al. Change in MRI-PDFF and histologic response in patients with nonalcoholic steatohepatitis: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 19, 2274-2283.e5 (2021).
- Tamaki, N., et al. Clinical utility of 30% relative decline in MRI-PDFF in predicting fibrosis regression in non-alcoholic fatty liver disease. Gut. 71, 983-990 (2022).
- Saarinen, K., et al. Enhanced liver fibrosis test predicts liver-related outcomes in the general population. JHEP Rep. 5, 100765(2023).
- Jung, J., et al. MRE combined with FIB-4 (MEFIB) index in detection of candidates for pharmacological treatment of NASH-related fibrosis. Gut. 70, 1946-1953 (2021).
- Dimairo, M., et al. The adaptive designs CONSORT extension (ACE) statement: a checklist with explanation and elaboration guideline for reporting randomised trials that use an adaptive design. BMJ. 369, m115(2020).