思春期前の脳でウイルスベクターを発現させる能力は、脳の発達における細胞および回路のメカニズムを研究する上で不可欠です。ここでは、出生後11日または12日目(P11-P12)における乳児マウスにおける立体走行ウイルス手術を行うプロトコルを説明し、術後ケアのガイドラインを示します。
この記事について
サマリー
要約
出生後の発達、細胞、回路のプロセスを理解することは、脳の発達の複雑さとそれが行動や社会的成熟に与える影響を明らかにする上で極めて重要です。乳児から成人への移行には、認知能力、感情調整、社会的相互作用に不可欠なシナプス剪定や髄鞘化など、重要な神経生物学的変化が伴います。思春期前のマウスの脳発達を研究することで、健康な脳成長を支える重要な時期を特定し、神経発達障害に対するタイムリーな介入策を確立することが可能になります。脳機能を正確に解剖するために、立体誘導手術は神経科学研究において重要な技術であり、関心のある脳領域を標的化し、ウイルス因子の送達を可能にする比類なき精度を実現しています。成マウスにおける立体誘導手術は神経生物学の研究室で広く実施されていますが、思春期前のマウスでの立体誘導手術や、乳児が母親や兄弟に正常に再導入されるようにするための重要な術後ケアに関するガイドラインは非常に限られています。ここでは、乳児(P11-P12)マウスにおける立体走位手術およびウイルス注射のプロトコルを説明し、麻酔および鎮痛の投与、術後ケアの考慮事項、成人における立体走位手術との違いを強調します。このプロトコルは、望ましいターゲット座標を更新することで、関心のある脳領域に実装でき、出生後発達の後期段階、例えば若年期(P15-P30)での脳ターゲット化にも修正可能です。全体として、このプロトコルは出生後の脳の発達と機能の研究の入り口を提供します。
概要
乳児期および思春期は脳の発達にとって重要な出生後期であり、髄鞘化、シナプス形成、シナプス剪定が特徴で、回路の精細化を促進します1,2。交尾、攻撃性、社会的遊びなどの社会的行動の出現は思春期前期(P28-40)に起こり、循環するステロイドホルモンによって厳しく調節されます。成人の社会行動の細胞基盤を解析するツールが大きく進歩しているにもかかわらず、出生後発達における社会的行動の出現の神経メカニズムについてはほとんど知られていません。発達する社会回路の理解不足の理由には、1) 乳児マウスでの手術を行う際の課題(若いマウス向けに設置されていない立体誘導装置を含む)、2) 手術中の鎮痛と麻酔の安全性と有効性のバランス6) 3) 術後の乳児の乳児の受け入れ問題などがあります。さらに、子宮内電気穿孔7、新生マウス脳への脳内膜内膜室ウイルス注入(P0-P10)、または組換えドライバーおよび-応答性遺伝子交配9など、出生後早期の遺伝的構造を送達するために用いられている現在の方法は、正確な標的化が欠け、胚やP0標的に焦点を当てているため理想的とは言えません。
ここでは、乳幼マウス(P11-P12)における立体定位手術と術後ケアのための簡単なプロトコルを提供し、ダムや兄弟姉妹との成功した再統合を支援します。このプロトコルは、成人マウス10用の現行立体誘導プロトコルを活用しており、立体誘導のセットアップにわずかな変更のみで済みます。また、術後のケアや乳児マウスの麻酔・鎮痛の成功に関する詳細な指導も提供しています。P11-12の手術時点を選びました。ウイルス発現には2週間の潜伏期間があるため、マウスは思春期前(P28-40)前のP24から体内で試験が可能だからです。しかし、このプロトコルは後の立体走行手術にも使用可能です。私たちは発達中の内側扁桃体(MeA)に焦点を当てます。これは多様な社会行動群に関与する扁桃体の細分化です。特に、Foxp2(MeAFoxp2)13というフォークヘッドボックス転写因子を発現するMeAサブポピュレーションを調査します。これらの細胞が出生後発生期にわたり、雄マウスの生体内でオスの感覚手がかりを処理するために独自にハードワイヤードされていることが明らかになったからです。さらに、MeAFoxp2サブポピュレーションは雄の領域攻撃性を双方向に調節する必要があります。全体として、現在のプロトコルは神経科学者がウイルス因子を出生後の重要な脳発達段階の標的脳領域に正確に届け、思春期から成人期にかけての社会的および親和的行動の細胞および回路の基盤を研究することを可能にします。
プロトコル
この手順はNIEHS動物ケア・使用委員会によって承認され、国立衛生研究所(NIH)の動物使用およびケアに関するガイドラインに準拠していました。手術中および動物のいる場で、手袋、マスク、使い捨てガウン、ヘアネット、靴カバーなどの適切な個人防護具が使用されました。
1. マウス立体走位装置の準備と調整(図1)
- 乳児マウス用の立体誘導装置を準備し、非ラプチャーイヤーバーのペア、改造ガス麻酔ヘッドホルダー、P12乳児用の口蓋バーなど、立体誘導装置を用意します。
- すべての手術用器具はガラスビーズ滅菌器(250°C、小型器具は30秒、大きい器具は1分)で消毒してください。滅菌後は滅菌された道具を無菌のカーテンの上に置きます。無菌器具は手術中ずっと無菌フィールドに置いておきましょう。
- 立体誘導装置の温熱パッドにもう一枚の無菌ドレープを敷き、手術中ずっと乳児を温度管理し続けます。手術中は温熱パッドの温度を常に監視してください。
2. マウス手術準備、立体定位、レベリング、開頭手術
- 適切な鎮痛剤の投与量を提供するために体重を測定してください。
- マウスを酸素流量0.9 L/minの3%イソフルラン充填誘導チャンバーに入れます。マウスの呼吸が~1呼吸/秒に減少し、ペダルの離脱反射をテストした後も反応がないか確認してください。イソフルラン/酸素の流れを立体型に切り替え、イソフルラン濃度を2%に下げます。
注意:十分な麻酔は、手術中5分ごとにペダル撤退反射への反応がないことが確認される必要があります。手術中ずっとマウスの呼吸パターンを注意深く観察してください。手術中はイソフルラン濃度を調整し、深部麻酔を維持し、麻酔の過剰投与を防ぐために最低の割合を使いましょう。 - マウスを改造された立体誘導装置に取り付け、乳児マウス用の立体誘導アクセサリーを付けます。非穴開きイヤーバーをマウスの頭の側面に設置し、イヤーバー定規を両側に対して立体定規に対して等間隔に整列させます。P11の乳児には、立体定規を5mmに設定してください。
注意:P11の乳児は通常、まだ目を開けていないため、目の潤滑剤は必要ありません。P12までには、一部の乳児が目を開けています。乳児の目が開いている場合は、手術中必要に応じて眼軟膏を塗布し、再塗布してください。 - 1 mLのシリンジと27Gの針を使い、皮下(s.c.)経路から5 mg/kgのメロキシカムを注射します。
- 0.5%ブピバカイン(5 mg/mL)を生理食塩水で希釈し、0.5 mg/mL(1:10)にして頭部皮膚下(例:5gの乳児なら0.05 mL)に注射します。
注意:ステップ2.6から3.15は滅菌手袋を着用して行うべきです。 - 頭部の中央ラインに沿って小さなハサミで1.5cmの切開を行います。
- ベタジンを使って、滅菌綿棒で頭蓋骨表面の軟組織を慎重に取り除いてください。
- ガラスピペットホルダーに引き抜いたガラス毛細管(長さ~0.8mm)を置きます。ホルダーを垂直立体アームに取り付けます。
注意:ステップ2.9から3.10は解剖顕微鏡の下で行うべきです。 - 頭蓋骨表面の前後角を水平にします:
- 毛細血管を背側洞(RCS)の前端合流点(図2)に移動させます(Chanら15参照)。
- 2倍倍の顕微鏡で、立体誘導器のデジタル表示コンソールを使って、毛細血管が頭蓋骨のRCS点にわずかに接触している場合、X(内側-外側)、Y(前後側)、Z(背側-腹側)座標をゼロにします。
- 毛細血管をラムダ(Y = -7.30 mm)に移動させ、毛細血管を頭蓋骨にわずかに触れるように下げます(図2)。
- Z座標の値を確認し、立体誘導リグで前後角を水平にして頭部の傾き角を変えます。ステップ2.9.1から2.9.3まで繰り返し、RCSとλのZ座標の差が<0.02 mmになるまで続けます。
- 頭蓋骨表面の内側側角を水平にします:
- 毛細血管をRCSポイントに移動させます。
- 毛細血管がRCS点で頭蓋骨にわずかに触れているとき、X(内側-外側)とY(前後)座標がゼロになります。
- 頭の後背面MeA(MeApd)座標を使って頭部を水平にするには、毛細血管が頭蓋骨にわずかに触れるので、X = +2.50 mm、Y = -4.20 mm、そして0 Z(背腹側)に移動します。
- 毛細血管をX=-2.50mm、Y=-4.20mmに移動させ、毛細血管を少し下げて頭蓋骨に触れさせます。
- Zの値を確認し、ステレオタキシックリグの内側-外側軸を調整して頭部の傾き角度を変えます。右半球と左半球のZ値の差が<0.03mmになるまで、ステップ2.10.1から2.10.4まで繰り返します。
- キャピラリーホルダーを取り外し、垂直立体アームのドリル立体ホルダーに#75ドリルビット付きのマイクロドリルを取り付けます。
- ドリルビットの先端をRCS点の上に置き、X座標(内側-外側)とY座標(前後)をゼロにします。X=±2.03mm、Y = -4.20mmに移動して、P11乳児のMeAPDをターゲットにします。
- 頭蓋骨に直径0.5mmの開頭手術を開けます。
- 頭蓋骨表面は、繊細なタスクワイプと綿棒を使って滅菌生理食塩水で丁寧に洗浄してください。
注意:頭蓋骨表面を水分補給するために、定期的に滅菌生理食塩水を投与してください。
3. ウイルス注射
- マイクロフィルフレキシブル針を使って新しい毛細血管にミネラルオイルを充填します。
- ナノリットルインジェクターに毛細管を取り付けて締めます。
- マイクロドリルを取り外し、ナノリットルインジェクターを垂直立体アームに取り付けます。
- 手術に必要なウイルス量の少なくとも2倍(ここでは400 nL)を、10 nL/sのペースで抽出してください。
注:関心のあるAAVウイルスは、機関承認後にウイルス注射に使用できます。このプロトコルでは、AAV2-DIO-mCherry(BSL-1、2.5 E+13 vg/mL、3 μl/チューブ、-80°Cで保存し、手術のために氷に移管)を使用しました。 - 毛細管をRCS点に移動させ、X座標とY座標をゼロにします。
- 毛細血管を目標の脳領域、ここではMeApd(座標:X = ±2.03 mm、Y = -4.20 mm、Z=-5.08 mm)に移動します。
- 毛細血管を頭蓋骨の表面まで下げ、Z座標をゼロにします。
- 毛細血管を望む深さまで下げ、毛細血管を脳から引き抜いて経路を作ります。
- 脳に戻す前に、毛細血管が詰まっていないか確認するために~8 nLのウイルスを注入してください。詰まった場合は、タスクワイパーに滅菌生理食塩水を加え、毛細血管の側面と底を優しく拭いて詰まりを取り除く。
- 毛細血管をもう一度希望の深さまで下げ、所望のウイルス量(この場合は150 nLのウイルス)を20 nL/分の速度で注入します。
- 終わったら、5分待ってからゆっくりと毛細血管を抜きます。
- 必要に応じて、3.4-3.11の手順を繰り返してウイルスを反対側半球に注射します。
- ナノリットルインジェクターから毛細管を除去してください。使用済みの毛細血管とウイルスチューブは、10%漂白剤を使った50mLの円錐形チューブに捨てました。
注意:各検査機関は、機関生物学・生物安全部門の廃棄物処理、流出管理、バイオセーフティ遵守ガイドラインをすべて遵守すべきです。 - 吸収性の7-0縫合糸で皮膚を縫合します。縫合時は髪を持ち上げて縫合線が隠れないようにしてみてください。
注意:通常、3〜4縫合で十分です。私たちの手では、7-0縫合糸が乳児をケージに戻した際にダムが縫合糸を破るのを防ぐのに最も効果的です。 - 縫合部を3%の過酸化水素で拭き、その後滅菌綿棒で生理食塩水を拭きます。
注:手術は通常、注入したウイルスの数によりますが、1時間から2時間かかります。ウイルスは通常、完全な発現には最低2週間かかります。
4. 術後ケア
- 赤ちゃんを立体型フレームから取り出し、清潔なケージの上、温熱パッドの上に置きます。脱水を防ぐために、無菌生理食塩水の注射が推奨されます。
- 赤ちゃんが動けるようになるまでモニタリングしてください。
- 赤ちゃんがケージの周りを動けるようになったら、新しい清潔なケージにダムを入れて~2分間過ごします。
- 赤ちゃんを元の家庭ケージに、兄弟姉妹と一緒に置きましょう。巣や寝具で巣の素材で、巣のケージからすべての赤ちゃんを丁寧に拭き取り、巣の中に戻してください。ダムをケージに戻します。
- ダムと幼児を注意深く監視してください。ダムが巣に戻り、手術中の幼児をグルーミングするが、縫合糸は引き抜かないことを確認する。
- 1時間経っても乳母が手術乳児を受け入れない場合は、フォスターダムを使いましょう。もし乳母がすでに乳児を受け入れていることを示しているなら、その母を次の子犬に使う(最初の子犬で幼児を受け入れた後の受け入れ率は100%)。
- 手術後24時間後、切開部を確認し、メロキシカム(5 mg/kg、S.C.)を投与します。
- 術後ケアが成功した後は、手術用マウスを乳母と同胞に置き、P21で離乳するまで放置します。手術後10〜14日以内に目に見える縫合糸はすべて除去してください。
注:手術マウスは同兄弟対照群と比較して、食事摂取量、体重、運動行動に有意な差は期待されません。
乳児は手術後少なくとも2日間毎日、その後は週に少なくとも2回経過観察されます。人道的評価基準:術後2時間経過時点で乳児が歩行可能でない場合、人道的に安楽死されます。手術後に体重や移動能力が低下した場合、人道的に安楽死されます。
結果
乳児手術におけるイソフルラン、ブピバカイン、メロキシカムの併用の安全性
乳児マウスに対する麻酔および鎮痛の使用の安全性は依然として不明です。したがって、乳児マウスを対象に麻酔と鎮痛の組み合わせを試験し、生存率を決定しました。P11(体重=6.09 ± 0.90 g、最低体重3.9 g;n=13)の乳幼マウスを誘導室に入れ、初期麻酔のために3%イソフルランを酸素濃度0.9 L/minに投与しました。乳児が麻酔され足筋離脱反射に反応しなくなった後、立体誘導装置に移され、イソフルラン麻酔は0.9 L/min酸素(41.23 ± 2.28°C)で1.5〜2%のイソフルランに減らされました。乳児を立体誘導装置に置いた後、鎮痛剤を肩甲間(5 mg/kg)メロキシカム投与し、頭部皮膚下に外麻酔(0.05 mg/mL ブピバカイン)を投与しました。30分後、私たちは赤ちゃんたちをステレオタキシック装置から取り出し、きれいなケージに入れました。鎮痛剤投与後30分で100%生存率(13/13)を観察しました。さらに、術後24時間および72時間、成人期に至るまでの合併症は観察されませんでした。これらの結果は、局所麻酔と非ステロイド性抗炎症薬の併用が乳児マウスにとって安全であり、痛みや苦痛を軽減できることを示しています。
MeAへの正確かつ正確なウイルス送達
乳児立体誘導手術中のウイルス投与の正確性と精度を確認するため、AAV2-hSyn-DIO-mCherryをFoxp2cre+/-オスマウスのP11のMeApdに両側投与しました(図3A)。マウスはP21で離乳させました。P45では、マウス脳を免疫組織化学および画像解析のために採取しました。これは、我々のグループ14および他の16が以前に記述したものであった(図3B,C)。マウスには1×PBSを30mL投与し、その後4%PFAを10mL/分で30mL投与しました。脳は4°Cで4%PFAで一晩後固定され、30%ショ糖でクライオプロテクトされ、O.C.T.に埋め込まれ、50μmでクライオスタットで切片されました。3区画ごとに、前述の免疫組織化学処理が行われ、14区画が行われました。遊離切片は10%正常なドンキー血清でブロッキングし、一次抗体と一晩培養、洗浄、二次抗体と4時間培養、再度洗浄、DAPI含有培地でマウントした後、カバースリップしました。脳切片はFoxp2抗体とAlexa Fluor 488 AffiniPure Donkey Anti-Rabbit IgG(H+L)で染色されました。
標的効率を確認するために、MeA内のmCherry+ とFoxp2+ 細胞の共発現を測定し、集団間で90.2%±2.1細胞の重複を観察しました。これはmCherryの発現がクレ依存的にFoxp2+細胞に限定されていることを示しています(図3D)。この結果は、このプロトコルを用いたウイルス注射の高い効率を示しています。さらに、全領域におけるmCherry+細胞の割合とMeApd内のmCherry細胞の割合を分析し、ウイルス注射の精度を調査しました。mCherry+ 細胞の93.7%±1.4%がMeApd内に存在していることが観察され、ウイルスの空間的発現は我々の関心領域に限定されていることが示されました(図3E)。

図1:乳児立体定位手術のセットアップ。(A) 立体タキシック装置。(B) 破裂しない耳バー。(C)P12乳児用のガス麻酔ヘッドホルダーと口蓋バー。(D)ビーズ滅菌器。(E) ウォーミングパッドコントローラー。(F)立体型腕。(G)ナノリットルインジェクター。 この図の拡大版はこちらをクリックしてご覧ください。

図2:P11マウス頭蓋骨の主要なランドマーク。(A) 乳児の頭蓋骨の主要なランドマークの概略図。 (B) 乳児の頭部は、破裂防止イヤーバー、改造ガスヘッドホルダー、P12マウス用のペレットバーなど、特殊な立体誘導アクセサリーで固定されます。略称:RCS = 副鼻腔の吻側合流、SSS = 上矢状洞、RRV = 前端鼻静脈、SOS = 上嗅静脈。 この図の拡大版はこちらをクリックしてご覧ください。
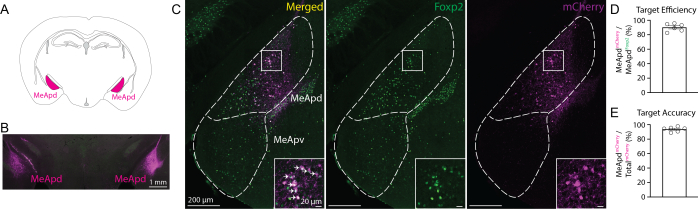
図3:乳児立体定位手術後のMeApdにおける標的ウイルス発現。(A) MeApdの概略図(コロナビュー)。(B) Foxp2抗体(緑色)およびmCherry+細胞(マゼンタ)の両側発現を示す代表的な組織学画像。(C) 統合チャネルおよび個別チャネルの両方からMeAの拡大ビュー。白い矢印は共標識されたFoxp2抗体およびmCherry+細胞を示します。(D) 注入効率。(E) 注入精度。(D,E) n=3匹のマウス、左右半球/マウス。略語:MeApd = 後背側内側扁桃体;MeApv = 後腹側内側扁桃体。この図の拡大版はこちらをクリックしてご覧ください。
| 方法 | メリット | デメリット | 参考文献 |
| 子宮内電気穿孔 | より大きなプラスミドトランスフェクション | 正確なターゲティングや毒性の欠如、高度なスキルが必要です | Wangら 、Methods Mol Biol. (2013年)。 |
| 脳室内ウイルス注射 | 速く、簡単で、経済的です | 正確な標的を絞り込めない、幼児殺害のリスク | キム ら、J Vis Exp. (2014)。 |
| P0における立体定位微量注射 | 正確なターゲット設定、母体拒絶のリスク低減 | ウイルスによる細胞毒性、思春期後の研究には理想的ではありません | チェン ら、J Vis Exp. (2018) |
| 組換え系遺伝子交配 | 非侵襲的 | 正確なターゲティングが不足し、コストも高い | Robertson ら、Nat Neurosci. (2013年)。 |
表1:齧歯類の細胞および回路の胚発生および出生後発生を研究するために用いられた過去の手法の概要。
ディスカッション
出生後の発達における社会的行動の神経メカニズムを研究することは、その出現だけでなく、環境要因や神経発達障害によってどのように妨げられるかを理解するために不可欠です。本研究では、P11-12乳幼マウスの脳にウイルスを正確かつ効率的に届けるための立体誘導手術の詳細なプロトコルを記述しています。したがって、このプロトコルはウイルス戦略を用いて思春期前後に分子的に定義された神経細胞サブポピュレーションの操作、記録、回路解析を可能にします。術前および術後の修正とケア、乳幼マウスがよく耐えられる安全な麻酔薬と鎮痛剤の組み合わせを強調します。
乳児の立体定位手術の重要かつ困難な部分の一つは、乳児を母犬や兄弟姉妹と共に自宅のケージに再導入することに成功することです。ケージに戻す際に適切な乳児ケアを確保するために、ダムは乳児を回収しグルーミング(過剰なグルーミングはせず)し、ネグレクトの兆候があれば注意深く監視してください。乳児の切開や縫合により、ダムが頭部を過度に整備し、縫合糸の断裂や抜脱につながる可能性があります。これは有害であり、手術後の乳児に対するダムの行動を監視することが生存を確実にするために重要です。術後の乳児のダム受容を高めるために、縫合後に過酸化水素と生理食塩水を用いて皮膚や毛に残った血痕を除去し、成人よりも薄い縫合糸(7-0)を使用することを推奨します(5-0)。これら2つの戦略により、ダムは手術後の幼生マウスを受け入れることができました。
さらに、本研究は乳児手術における麻酔および鎮痛の安全な使用に関する指針も提供しています。これは非常に重要であり、新生児や乳幼マウスは成人ほど鎮痛や麻酔の投与量に耐えられず、呼吸器や心臓に悪影響を及ぼす可能性があります6。経口麻酔であるイソフルランと、メロキシカムおよびブピバカイン鎮痛剤の併用を皮下(それぞれ鼻尖内および頭部皮膚下)投与することで、乳児は良好に耐容し、長期生存につながったことが観察されました。さらに、乳児マウスにおける立体誘導手術は、手術後2週間で同種マウスに対する研究期間が手術を受けなかった年齢一致対照群と比較して類似していることを示しました。したがって、これらの結果は乳児マウスにおいて手術後に十分な回復と顕在性の運動障害が見られないことを示しています。ちなみに、手術中は血中酸素濃度を測定しませんでした。低酸素症17を防ぐために、血中酸素濃度はパルスオキシメーターで監視する必要があります。
このプロトコルのもう一つの重要な要素は、矢状面正中線15のラムダとRCSに基づく立体座標系の使用です。RCSは、矢状静脈洞上位洞と上嗅洞接合部が矢状体正中線に沿った接合部によって定義されるランドマークです。このランドマークは、頭部の全体整列後、他の背側ランドマークよりも一貫して位置変動が低いことが示されています。これは、RCS/ラムダ間の分離距離がブレグマ/ラムダと比べて増加することで、動物間水平角度15の安定性と再現性が高まるためです。
これまでの神経発達研究方法は胚時点やP0時点のウイルス戦略、あるいは関心細胞の運命マッピングのための遺伝的交配に焦点を当ててきました(表1)。子宮内電気穿孔術や脳室内ウイルス注射のような技術は、正確な標的を絞り出していません。P018に標的ウイルス注射を行うことで、ウイルス構造体を正確に関心領域に注入することでこの問題を克服します。しかし、ウイルスの構成体は数週間後に細胞毒性を帯び、細胞死を引き起こすことがあります。したがって、新生児の脳にウイルス構造体を注入して、成人期まで続く可能性のある縦断的な思春期研究は理想的とは言えないかもしれません。したがって、私たちのアプローチでは、出生後1週間半以内にウイルス注射を行うことで、思春期の細胞毒性リスクを低減します。
私たちのアプローチの利点があるにもかかわらず、いくつかの考慮点が残っています。まず、乳児マウスで使われる脳の座標を成体から変える必要があります。例えば、P11の幼生マウスでは、MeApdをターゲットにする座標を用います:X= +2.03 mm、Y= -4.20 mm、Z=-5.08 mm;一方、成体で使われる座標はX=+2.15mm、Y=-5.00mm、Z=-5.10mmです。残念ながら、思春期前のマウスの脳アトラスに関する参考文献は成マウスよりも少ないです(Allen Mouse Brain Atlas, mouse.brain-map.org and atlas.brain-map.org)20,21。したがって、MeA以外の脳領域で正しいウイルス標的化を達成するためには、座標の十分な情報に基づく推定と座標検査を行う必要があります。次に、AAVの孵化期間を考慮する必要があります。AAVをin vivoで発現させる最適な潜伏期間は少なくとも2〜3週間です。本プロトコルでは、乳児マウスでP11で立体視手術を行うことを考えると、研究者は最適なAAV潜伏期間を経てP25からしか手術後のマウスの検査を開始できません。
全体として、このプロトコルはウイルスベクターを用いて乳児マウスで関心のある脳領域を高精度で標的化するための詳細なガイドラインを提供します。この方法は非常に有利で、非常に柔軟で、市販またはカスタムメイドのAAV構成体を注入することができます。したがって、関心のある細胞亜集団の分子構造や、その解剖学的回路、神経動態、細胞の役割を、社会的行動の出現と一致する重要な時間帯の思春期前後に研究することを可能にします。さらに、このアプローチはここに示すように扁桃体だけでなく、視床下部や皮質領域など他の皮質下構造にも有効です。
開示事項
著者側には利益相反を申告する必要はない。
謝辞
国立環境健康科学研究所(NIEHS/NIH)比較医学部門(CMB)のアンドリュー・ゴーマン博士、ドナ・ウェッブ博士、デイビッド・グールディング博士の皆様に、齧歯類手術における麻酔および鎮痛のベストプラクティスに関する貴重な議論をいただき、感謝いたします。また、NIEHSのCMBの全メンバー、動物被験者への最大限の配慮、そして神経行動回路グループの全メンバーに感謝いたします。この研究は国立衛生研究所(NIEHS/NIH)の学内研究プログラム(ZIA ES103403)(J.E.L.)によって支援されました。NIHの著者による貢献はアメリカ合衆国政府の著作とみなされます。本論文で提示された調査結果および結論は著者個人のものであり、必ずしもNIHや米国保健福祉省の見解を反映するものではありません。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| #75 ドリルビット | ドリルビットシティ | 10WS75-850FL | |
| 27G針 | コヴェトルス | 60757 | |
| 過酸化水素3% | スワン | NDC 0809-0871-43 | |
| 32% パラホルマルデヒド | 電子顕微鏡科学 | 15714 | |
| AAV2-hSyn-DIO-mチェリー | アッドジーネ | 50459-AAV2 | |
| Alexa Fluor 488 AffiniPure Donkey(1:1000)抗ウサギIgG(H+L) | ジャクソン免疫研究 | 711-545-152 | |
| 分析的均衡 | サルトリウス | 1102--15 | |
| ベタジン | アヴリオ薬局 | NDC 67618-155-15 | |
| ブピバカイン | ホスピラ | NDC 0409-1163-18 | |
| クライオスタット | ライカ | CM1950 | |
| 解剖顕微鏡 | ツァイス | 2149-629 | |
| 眼軟膏 | デクラ獣医 | プラルーベ | |
| DAPIによるフルオロマウントマウンティングメディア | サーモフィッシャー・サイエンティフィック | 00-4959-52 | |
| Foxp2抗体(1:1000) | アトラス抗体/コスモバイオ | HPA000382 | |
| Foxp2cre+/-マウス | ジャクソン研究所 | 30541 | |
| P12子犬用のガス麻酔ヘッドホルダーと口蓋バー | デイヴィッド・コップ・インストゥルメンツ | 1934-C | |
| ガラスビーズ滅菌器 | フィッシャー・サイエンティフィック | 10-000-632 | |
| ガラス毛細管 | ワールド・プレシジョン・インスツルメンツ | 504949 | |
| ガラスピペットホルダー | デイヴィッド・コップ・インストゥルメンツ | 1975-1.2-A | |
| ヒートパッド | ケント・サイエンティフィック 法人 | RT-0520 | |
| イソフルラン | ピラマル集中治療 | NDC 66794-017-10 | |
| メロキシカム | ピベタル獣医供給 | NDC 46066-937-13 | |
| マイクロドリル | デイヴィッド・コップ・インストゥルメンツ | モデル1911ドリル | |
| マイクロフィルフレキシブルニードル | ワールド・プレシジョン・インスツルメンツ | MF28G67-5 | |
| 顕微鏡スライド | サーモフィッシャー・サイエンティフィック | 12-550-15 | |
| ミネラルオイル | シグマ・オルドリッチ | M5904-500ML | |
| ナノリットルインジェクター | ワールド・プレシジョン・インスツルメンツ | NANOLITER2020 | |
| 非吸収性縫合 | AD外科 | S-N718SP13 | |
| 非ラプチャーイヤーバー | デイヴィッド・コップ・インストゥルメンツ | 1921年-A | |
| ノーマル・ドンキー血清 | ジャクソン免疫研究 | 017-000-121 | |
| O.C.T.コンパウンド | さくら | 4583 | |
| ステレオタキシック・リグ | デイヴィッド・コップ・インストゥルメンツ | 1900 | |
| 滅菌綿棒 | ウリネ | S-21102 | |
| 無菌ドレープ | ブッセ病院使い捨て用品 | 696 | |
| 無菌生理食塩水 | ホスピラ | NDC 0409-1966-02 | |
| 無菌水 | ホスピラ | NDC 0409-4887-24 | |
| ショ糖 | フィッシャー・ケミカル | S5-500 | |
| 注射器 | フィッシャー・サイエンティフィック | 50-252-2568 |
参考文献
- Andersen, S. L. Trajectories of brain development: Point of vulnerability or window of opportunity. Neurosci Biobehav Rev. 27 (1-2), 3-18 (2003).
- Zeiss, C. J. Comparative milestones in rodent and human postnatal central nervous system development. Toxicol Pathol. 49 (8), 1368-1373 (2021).
- Bell, M. R. Comparing postnatal development of gonadal hormones and associated social behaviors in rats, mice, and humans. Endocrinology. 159 (7), 2596-2613 (2018).
- Auger, A. P., Olesen, K. M. Brain sex differences and the organisation of juvenile social play behaviour. J Neuroendocrinol. 21 (6), 519-525 (2009).
- Barkley, M. S., Goldman, B. D. A quantitative study of serum testosterone, sex accessory organ growth, and the development of intermale aggression in the mouse. Horm Behav. 8 (2), 208-218 (1977).
- National Research Council (US) Committee on Guidelines for the Use of Animals in Neuroscience and Behavioral Research. Guidelines for the care and use of mammals in neuroscience and behavioral research. , The National Academies Press. (2003).
- Wang, C., Mei, L. In utero electroporation in mice. Methods Mol Biol. 1018, 151-163 (2013).
- Kim, J. Y., Grunke, S. D., Levites, Y., Golde, T. E., Jankowsky, J. L. Intracerebroventricular viral injection of the neonatal mouse brain for persistent and widespread neuronal transduction. J Vis Exp. (91), e51863(2014).
- Robertson, S. D., Plummer, N. W., De Marchena, J., Jensen, P. Developmental origins of central norepinephrine neuron diversity. Nat Neurosci. 16 (8), 1016-1023 (2013).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Prakash, N., Abu Irqeba, A., Corbin, J. G. Development and function of the medial amygdala. Trends Neurosci. 48 (1), 22-32 (2025).
- Raam, T., Hong, W. Organization of neural circuits underlying social behavior: A consideration of the medial amygdala. Curr Opin Neurobiol. 68, 124-136 (2021).
- Lischinsky, J. E., et al. Embryonic transcription factor expression in mice predicts medial amygdala neuronal identity and sex-specific responses to innate behavioral cues. Elife. 6, e21012(2017).
- Lischinsky, J. E., et al. Transcriptionally defined amygdala subpopulations play distinct roles in innate social behaviors. Nat Neurosci. 26 (12), 2131-2146 (2023).
- Chan, E., Kovacević, N., Ho, S. K., Henkelman, R. M., Henderson, J. T. Development of a high resolution three-dimensional surgical atlas of the murine head for strains 129s1/svimj and c57bl/6j using magnetic resonance imaging and micro-computed tomography. Neuroscience. 144 (2), 604-615 (2007).
- Tu, L., et al. Free-floating immunostaining of mouse brains. Methods Mol Biol. 176, 1-12 (2021).
- Thal, S. C., Plesnila, N. Non-invasive intraoperative monitoring of blood pressure and arterial pCO during surgical anesthesia in mice. J Neurosci Methods. 159 (2), 261-267 (2007).
- Chen, S. -Y., Kuo, H. -Y., Liu, F. -C. Stereotaxic surgery for genetic manipulation in striatal cells of neonatal mouse brains. J Vis Exp. (137), e57270(2018).
- Kronman, F. N., et al. Developmental mouse brain common coordinate framework. Nat Commun. 15 (1), 9072(2024).
- Dong, H. W. The Allen reference atlas: A digital color brain atlas of the C57BL/6J male mouse. , John Wiley & Sons. (2008).
- Paxinos, G., Franklin, K. B. The mouse brain in stereotaxic coordinates. , Academic Press. (2004).
再版と許可
この記事は公開されました
動画は近日公開