本プロトコルは、健康なマウスおよび腫瘍を持つマウスの肺組織から高品質な単細胞懸濁液を分離する詳細な方法を提示します。このプロトコルはscRNA-seq、フローサイトメトリー解析、一次細胞分離にも適用可能です。
この記事について
サマリー
要約
NSCLCは肺がんの約85%を占めており、カーステンラット肉腫(KRAS)はNSCLCで最も頻繁に変異する遺伝子です。近年、NSCLCの管理は著しく進歩しましたが、その異質性と可塑性は依然として完全には解明されていません。単一細胞RNAシーケンシング(scRNA-seq)は、肺のような複雑な組織における細胞の異質性を解明する重要なツールとなっています。しかし、腫瘍を保有する肺組織から高品質な単細胞懸濁液を生成することは困難であり、特に組織が線維化し異質化する腫瘍形成時には困難です。scRNA-seqの成功に不可欠な要件は、処理によるストレスや損傷を最小限に抑えた生存可能な単一細胞の調製です。ここでは、KrasG12Dにおける健康なマウス肺組織および腫瘍を持つマウス肺組織から高品質な単一細胞懸濁液を分離するための詳細なステップバイステッププロトコルを示します。tdTomatoリポーターマウスモデル。この手技には組織灌流、酵素の制御された消化、穏やかな機械的解離、赤血球溶解、ろ過、生存可能性評価が含まれ、scRNA-seq前に>85%の生存細胞を達成します。最後に、tdTomato+ 腫瘍細胞はFACSによって効率的に分離され、このプロトコルを用いたscRNA-seqによって独立したクラスターとして検出できます。
概要
肺がんは、世界中のがん関連死亡の主な原因の一つです。大まかに2つのサブタイプに分類できます:小細胞肺がん(SCLC)と非小細胞肺がん(NSCLC)1。NSCLCは全肺がん症例の約85%を占めており、腺癌は最も一般的な組織学的サブタイプ2です。NSCLCの治療戦略は過去数十年で大幅に改善されましたが、肺がんの死亡率は依然として高いままです。化学療法と免疫療法は臨床現場で主に用いられる治療法の二つです。しかし、多くの患者は薬剤耐性を経験したり免疫療法に反応しなかったりします。
腫瘍微小環境(TME)は、腫瘍の開始、進行、治療抵抗性において重要な役割を果たします。増え続ける証拠は、TMEの組成が時間とともに動的に変化することを示唆しています7,8。抗腫瘍免疫細胞は通常、腫瘍形成の初期段階でTME内に濃縮されますが、腫瘍の発達に伴い免疫抑制性およびがん関連細胞群が優勢になります。したがって、肺がん進行中のTMEの異質性と可塑性を理解することは、疾患のメカニズムを解明し治療効果を向上させるために不可欠です。
単細胞RNAシーケンシング(scRNA-seq)は、個々の細胞レベルで遺伝子発現の高解像度プロファイリングを可能にし、複雑な組織トランスクリプトームの包括的な特徴付けを可能にします。この技術は、細胞の異質性の研究や肺がんにおける腫瘍進行および薬剤耐性のメカニズムを特定するために欠かせないものとなっています11。高品質な単一細胞懸濁液の準備は、scRNA-seqの成功に不可欠な要素であり、解離時の細胞ストレスや損傷が不正確な結果につながる可能性があります(12,13)。
このプロトコルにより、腫瘍を抱える肺全体から精製されたすべての単一細胞からRNAのシーケンスが可能で、細胞の大きさに依存せず、生細胞のサブポピュレーションを一切捨てずに行えます。これまでの多くの研究では、腫瘍細胞と廃棄されたCD45+細胞に焦点を当てた単一細胞シーケンス(14,15,16)や、免疫細胞や他の特定の細胞タイプ(17)と廃棄された腫瘍細胞に焦点を当てた単一細胞シーケンスが報告されています。このプロトコルは、すべての細胞タイプをマウス腫瘍を持つ肺組織から効率的に解離しつつ、悪性細胞の放出と正常な細胞の生存能力の維持を図ります。すべての生単細胞を含めることで、このプロトコルはがん関連マクロファージ様細胞(CAML)を含む腫瘍を抱える肺微小環境内のすべての関連細胞タイプの研究を可能にします18。特定の細胞群の品質管理および濃縮のために、オプションの蛍光活性化細胞選別(FACS)ステップも含まれています。抗体染色、4'6-ジアミジノ-2-フェニリンドール(DAPI)標識、即時選別が困難な場合の短期固定手順に関する追加の指針も提供されています。
このプロトコルの潜在的な制約は、早期腫瘍を含む肺組織および腫瘍負荷が40%未満の場合に最適化・検証されていることです。高グレード腫瘍を含む肺や腫瘍負荷が50%を超える肺では、密度の高い間質成分や広範な線維化の存在により解離効率が低下し、悪性細胞の完全な放出を阻害する可能性があります。
プロトコル
すべての動物関連実験は、スクリップス研究の動物ケア・利用ガイドラインに従って実施され、スクリップス研究機関動物ケア・利用委員会のプロトコル#10-0019のもとで承認されました。クラスLSL-G12D/+;TdTomato+/-マウスは、KrasLSL-G12D/+マウスとTdTomatoレポーターマウスを交配して生成されました。生後9〜10週間のKrasLSL-G12D/+;肺がんモデルとしてTdTomato+/-マウスが使用されました。彼らは気管内からCreリコンビナーゼを発現するレンチウイルスに感染し、マウスあたり5個×10個のプラーク形成単位でウイルス濃度を保っています。25週後に腫瘍を含む肺組織を採取しました。消化の問題やトラブルシューティングの可能性があるため、補足表1に記載されています。試薬および使用機器は材料表に記載されています。
1. バッファーの準備
- DMEM/F12培地:DMEM/F12培地に2%(v/v)の熱不活化FBSを準備します。
- セルウォッシュバッファー:Ca+/Mg+遊離PBS(pH 7.4)に2%(v/v)熱不活化FBSを準備します。
- 灌流バッファー:事前に冷却された遊離Ca+/Mg+ 遊離PBS(pH7.4)。
- 酵素ストック溶液:10 mg(1600 U/mg)のコラーゲナーゼIVを1 mLのDMEM/F12培地に溶かし、16000 U/mLのコラーゲナーゼIVストック溶液を得る。42 mg(1.19 U/mg)のDispase IIを1 mL DMEM/F12培地に溶解し、50 U/mLのDispase IIストック溶液を得る。DNase Iを1 mLのDMEM/F12培地に溶かし、5 mg/mLのDNase Iストック溶液を得ます。
- 消化培地:コラーゲナーゼIV250μL、ディスパーゼII200μL、DNaseIストック溶液100μLを5mLのDMEM/F12培地に混合し、最終濃度は800 U/mLのコラーゲナーゼIV、2 U/mLのディスパサーゼII、0.1 mg/mLのDNase Iとなります。
- 再懸濁バッファー:0.5 M EDTA(10 μM)1 μL、熱不活化FBS(2% v/v)1 mLを50 mL Ca+/Mg+ 遊離PBS(pH 7.4)に混合します。
- BSAストック溶液:0.5 gのBSAを100 mLのCa+/Mg+ 遊離PBSに溶解し、0.5%(w/v)のBSAストック溶液を得る。
- FACSバッファー:1 M HEPES 2.5 mLと0.5 M EDTA 200 μLを100 mL BSAストック溶液に混合し、最終濃度25 mM HEPESと1 mM EDTAを得ます。
2. マウス肺組織の採取
注:すべての手術器具はサンプル間に70%エタノールで消毒されます。各工程の間はサンプルを氷に保管し、すべてのプラスチック製品はDNase/RNaseフリー認証を受けています。
- CO2チャンバーでマウスを安楽死させます(機関で承認されたプロトコルに従い)。ネズミを解剖パッドの上に仰向けに置き、足を固定します。70%エタノールをたっぷり散布してください。
- 下腹部の皮膚と筋肉に幅2〜3cmの中間線切開をします。胸を慎重に開け、肺や心臓を切らないようにしてください。
- 安全マルチフライの21G針を50mLの注射器に取り付け、30mLの灌流バッファーを吸引します。
- 左心室に針を刺し、鋭くまっすぐなハサミで右心房に小さな切開を開けます。
- 全身21 に15mLの灌流バッファーを灌流してください。
注:肝臓の白化は全身灌流が完了したことを示しています。 - 肺を胸部から取り除き、肺に付着した余分な組織を切除します。肺を10mLの予備冷却されたCa+/Mg+ フリーPBSに入れて余分な血液を洗い流します。
- 肺を500μLの氷のように冷たいDMEM/F12を含む1.5mLのチューブに移します。
3. 肺単細胞懸濁液の準備
- 肺組織を細い細い直線ハサミで2〜3分間、1〜2 mm3に切り分けます。
- 挽いた肺組織を5mLの消化培地を含む6cmの皿に移します。
- 6cmの皿をサーモスタットシェーカーに50回転で25分間、37°Cで置きます。 1mLピペットで8分ごとに懸濁液を混ぜます。
- 100μmのメッシュストレーナーを10cmの皿に入れます。1mLのDMEM/F12培地で濾しをあらかじめ湿らせます。
- 消化した懸濁液をストレーナーに移します。滅菌シリンジプランジャーのゴム製の端で組織をストレーナーに押し込みます。
- 70μmのメッシュストレーナーを50mLの遠心分離機チューブの上に置きます。1mLのDMEM/F12培地で濾しをあらかじめ湿らせます。
- 細胞懸濁液をストレーナーでろ過し、5 mLのDMEM/F12培地でストレーナーをすすいでください。
- 遠心分離機で400gの細胞懸濁液を4°Cで10分間ろ過し、上清液を慎重に除去します。細胞ペレットを1 mLの赤血球溶解緩衝液に室温で2分間再懸濁します。
- 14mLの細胞洗浄バッファーを加え、400gで遠心分離機で4°Cで10分間処理します。
注意:洗ってもペレットがまだ赤い場合は、ステップ8と9を繰り返します。 - 上清液を廃棄し、細胞を20 mLの再懸濁バッファーに再懸濁させます。
- 10μLの単一細胞懸濁液と同量のトリパンブルーを混合し、10μLを細胞計数室スライドに加えます。細胞カウンターを使って生細胞の生存率、細胞数、単一細胞の状態を確認してください。
4. フローサイトメトリー解析
- 細胞を氷のように冷たいFACSバッファーに再懸濁し、100μLの細胞懸濁液を1μLのFcブロック抗体(1:100)を含む1.5mLチューブに移します。サンプルを氷で15分間培養します。
- 遠心分離機で500gで5分間サンプルを取ってから、上澄液を捨てます。細胞をCD326-APC抗体200μL(1:100)に再懸浮させ、4°Cの暗闇で45分間インキュベークします。
- 遠心分離機で500gで5分間サンプルを取ってから、上澄液を捨てます。細胞をDAPI染色を含むFACSバッファー500μL(1:5000)に再懸濁します。
- すべてのサンプルをFACSチューブに移し、光から保護してください。
- フローサイトメーターでサンプルを分析します。使用された蛍光色素はDAPI-V450、Tdtomato-YG585、CD326-APC。ゲート戦略は 図1に示されています。
結果
この最適化されたプロトコルを用いて製製した単一細胞懸濁液では高い細胞生存率が達成されました。腫瘍を持つ肺の細胞生存率を向上させた変更には、酵素濃度の最適化(補足表2)、振る、37°Cでの培養中のサンプル混合が含まれます。 さらに、6段階で追加の40μmメッシュストレーナーを使用せず、細胞損傷の可能性を高める機械的せん断応力を低減しました。追加のストレーナーを含めると、多重状の形成を減らす可能性があります。平均して細胞生存率は85%を超え、最適化前の80%未満と比べて増加しました(表1)。細胞濃度の変動は主に、レプリケート間で肺の大きさや使用される懸濁培地の違いに起因するとされました。
このKrasG12D駆動のマウスモデルでは、腫瘍結節が存在し、腫瘍開始23週後25週間で腫瘍負荷は10%から40%の範囲です。2つの全肺単細胞懸濁液を10x Genomicsプラットフォーム上でscRNA-seq処理しました。Cell Rangerの品質評価では、2つのサンプルからそれぞれ23,488および21,436の推定細胞が特定されました(表2)。バーコードプロットは周囲のRNA汚染が最小限であることを示しており、高い細胞生存率を反映していると考えられます(図2A,B)。
主成分解析(PCA)および一様多様体近似・投影(UMAP)により、主要な肺細胞タイプがすべて含まれた明確なクラスターが明らかになりました(図3A)。代表的なマーカー遺伝子の点描画により、標準バイオマーカーが対応する細胞型で高度に発現していることが確認されました(図3B)。さらに、TdTomato+ 細胞は上皮関連クラスターで濃縮され、TdTomato+/EpCAM+ 細胞はFACSによって成功裏に分離されました(図1)。
まとめると、この最適化されたプロトコルにより、マウス腫瘍を担う肺組織の効率的な解離が可能となり、高い細胞生存率、低いRNA汚染、包括的な細胞表現を実現しています。
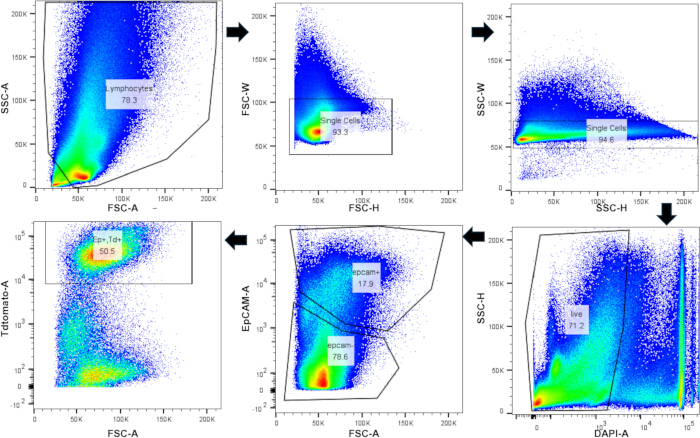
図1:フローサイトメトリーによるTdTomato+/CD326(EpCAM+)細胞の分離。 マウス肺単細胞懸濁液のためのフローサイトメトリーゲーティング戦略。 この図の拡大版はこちらをクリックしてご覧ください。
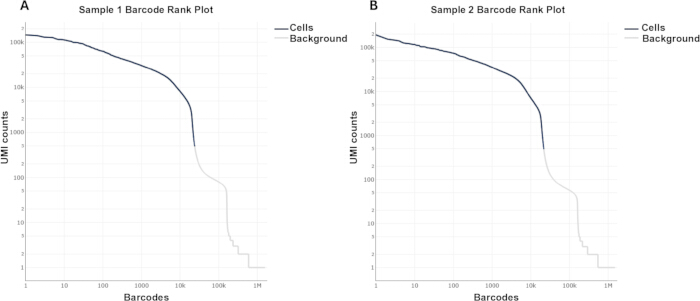
図2:マウス腫瘍搭載肺のScRNA-seqバーコードランクプロット。 クラスLSL-G12D/+;TdTomato+/-マウス肺はレンチウイルス感染後25週間後に採取されました。(A,B)Cellranger分析による腫瘍搭載肺バーコードランクプロット この図の拡大版を見るにはこちらをクリックしてください。
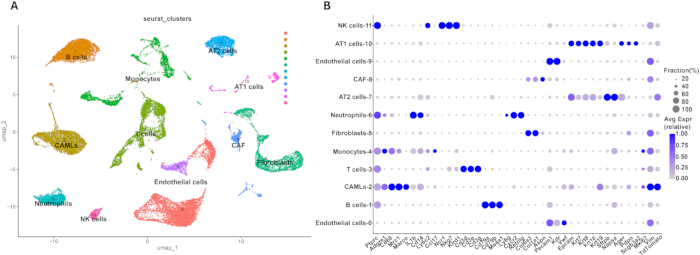
図3:マウス腫瘍搭載肺の単細胞トランスクリプトミクス解析。 (A) 腫瘍搭載肺全体のUMAPプロジェクション。(B) クラスタ注釈に用いられる古典遺伝子の点図。 この図の拡大版はこちらをクリックしてご覧ください。
| 最適化前 | 最適化後 | |||
| 繰り返し1 | 繰り返し2 | 繰り返し1 | 繰り返し2 | |
| 総セル番号 | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| 生細胞 | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| 生細胞の割合 | 76% | 77% | 83% | 89% |
表1:最適化前後の腫瘍搭載肺単細胞懸濁細胞の生存率。 このプロトコルを使用する前後で測定された細胞濃度と生細胞の割合。
| サンプル1 | サンプル2 | |
| 推定細胞数 | 23,488 | 21,436 |
| セルごとの平均読み取り数 | 18,354 | 20,542 |
| 細胞あたりの中央値遺伝子 | 2,565 | 2,513 |
| 検出された総遺伝子 | 30,893 | 30,556 |
| 細胞ごとのUMIカウントの中央値 | 6,864 | 6,583 |
| 有効なバーコード | 95.90% | 95.80% |
| シーケンシングサチュレーション | 26.10% | 28.20% |
| セル内の分数読み取り | 94.10% | 95.40% |
表2:Cell RangerによるScRNA配列品質管理解析。 Cell Rangerから得られた単一セルデータの主要な推定値
補足表1:トラブルシューティングの解決策。 消化過程で起こりうる問題に対処するための解決策が提案されます。このファイルをダウンロードするには、こちらをクリックしてください。
補足表2:最適化前および最適化後酵素カクテル成分。 最適化前後に使用された酵素カクテルの最終濃度。このファイルをダウンロードするには、こちらをクリックしてください。
ディスカッション
このプロトコルは、マウス肺組織から高品質な単細胞懸濁液を準備するための詳細なステップバイステップ手順を提供します。最適な結果を得るためには、いくつかの重要なステップが必要です。
酵素消化の前に、肺から血液を除去するために全身灌流が必要です。これにより、scRNA-seqで検出される免疫細胞は血液循環ではなく肺組織から起源を持つことが保証されます。灌流中は、灌流液が肺循環に入り肺細胞を損傷するのを防ぐために、針を左心室に挿入することが不可欠です。細胞の生存能力を維持するために、洗浄液、再懸濁液、灌流液を含むすべての緩衝液は氷上で事前に冷却されるべきです。肺組織の本質的な異質性を考えると、サンプルは消化前および消化中にDMEM/F12培地で保管すべきであり、この培地は細胞の生存を維持するために必須栄養素を提供します。
このプロトコルで観察された高い細胞生存率と明確な細胞クラスターは、酵素の組み合わせが軽度かつ効果的であることを裏付けています。カルシウムイオンとマグネシウムイオンは細胞の凝集を促進し、酵素活性を高めることが知られています(25,26)。したがって、Ca+/Mg+遊離PBSがほとんどのバッファーの準備に用いられ、これらのイオンを含むDMEM/F12が消化バッファーの基礎培地として使われ、酵素効率のバランスを保ちます。
これまでの研究ではマウスの肺や腫瘍組織が解離したと記載されていますが、これらはしばしば有意な変動やプロテアーゼ選択および濃度の不完全な記述を示すことがあります(11,15,27)。例えば、Hanら11は濃度を報告せずに酵素カクテルを使用したため、再現が困難です。逆に、Chenらが記述した高度に専門化された方法は、アルベオラーII型(AT2)細胞の解離に効果的ですが、複雑なワークフローを要し、複数のマウスを同時に採取する必要がある場合には実用的ではありません。
肺腫瘍学研究における重要な課題は、脆弱な正常細胞と悪性腫瘍細胞の両方からなる腫瘍搭載肺の構造的異質性です。標準的なプロトコルや市販のキットは、正常組織や腫瘍サンプル向けに設計されていることが多いです。これらは消化不良を引き起こし、腫瘍の核からがん細胞を放出できないか、過剰消化を引き起こし、腫瘍を持つ肺サンプルのより感受性の高い正常組織に著しいストレスと細胞死を引き起こします。
このプロトコルは、酵素カクテル(コラゲナーゼIV、ディスパーゼII、DNaseI)を微調整することで、バランスの取れた解離を実現します。この最適化により、悪性細胞の放出を確実にしつつ、正常な細胞の生存能力も維持されます。これはフローサイトメトリー解析によって裏付けられており、2つの異なる上皮細胞を同定し解消することに成功しました。上皮細胞はTdTomato+またはTdTomato-細胞によく分かれています。この解像度は、この手法が宿主組織の完全性を損なうことなく腫瘍を抱える肺の微小環境全体を研究するのに適していることを示しています。分析にすべての生単細胞を含めることで、このプロトコルはがん関連マクロファージ様細胞(CAML)を含む腫瘍を抱える肺微小環境内のすべての関連細胞タイプの研究を可能にします(図3)(図3)。これらはこれまでの研究で広く報告されていなかった15,16,17。
消化後、scRNA-seq解析により、この手法が多様な細胞型を成功裏に分離できることが示されました。酵素溶液は実験当日に新たに準備されるべきです。すべての消化パラメータは、マウスの肺全体に対して最適化されています。単一葉または複数の肺のみを使用する場合は、高い細胞生存率と完全な組織解離を確保するために消化時間を調整する必要があります。周囲のRNA汚染と多重遺伝子形成はscRNAセクシーク質に影響を与える主要な要因です。死細胞除去キットは生存率を高めるためによく使われますが、このプロトコルは消化後に生細胞の80%以上を安定して獲得するため、このステップは任意です。バーコードランクプロットでは、死細胞除去がなくても周囲のRNA汚染は最小限であることが確認されました。
本研究では、この方法論を腫瘍搭載マウス肺の文脈で検証しています。この最適化された酵素的消化は、類似の微小環境を持つ他の腫瘍保有組織の研究のテンプレートを提供します。さらに、このプロトコルによって達成されるすべての細胞タイプの高い細胞生存率と保存性により、表面タンパク質マッピングのためのCITE-seqやエピジェネティックプロファイリングのためのATAC-seqなどの高度なシーケンス技術に適しています。
このプロトコルは低コストで高品質な単一細胞懸濁液を生み出しますが、酵素的消化中にプロセス誘発性の細胞ストレスが発生することがあります。ストレス関連の遺伝子発現アーティファクトを最小限に抑えるために、1人のオペレーターが同時に最大4つのサンプルを処理すべきです。
開示事項
著者たちは競合する利害関係がないと宣言しています。
謝辞
この研究は、米国国立衛生研究所(NIH)、国立眼科研究所(NEI)の助成金5R01EY026202、R01EY035333、国立歯科・頭蓋顔面研究所(NIDCR)の助成金R01DE031044、2R01DE014756、および国立がん研究所(NCI)の助成金R01CA271500および2R01CA211187。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| DMEM/F12 | サーモ・フィッシャー | 11320033 | 細胞培養 |
| コラーゲナーゼタイプIV | シグマ・アルディッチ | C5138 | 消化酵素 |
| ディスパースII | シグマ・アルディッチ | D4693 | 消化酵素 |
| DNase I | ロッシュ | 11284931001 | DNAを除去する |
| ファルコン70セルストレーナー | ファルコン | 352350 | 未消化の組織を除去する |
| 無菌ハサミ | FST | 14088-10 | 切断組織 |
| 赤血球溶解緩衝剤 | シグマ・アルディッチ | R7757 | 血球を除去してください |
| 熱で非作動化したFBS | フェニックス・サイエンティフィック | PS100 | 細胞保護 |
| Ca+/Mg+の無料PBS | サーモ・フィッシャー | 10010023 | 溶解酵素/ウォッシュセル |
| 安全マルチフライ21G針 | サーステット | 3051524 | 全身灌流 |
| 50 mL 注射器 | BD | 300866 | 全身灌流 |
| 6cmディッシュ | コーニング | 430116 | 消化組織 |
| 10cm皿 | コーニング | 430167 | 消化組織 |
| Fcブロック抗体 | BD | 553141;リッド:AB_394655 | フローサイトメトリー |
| ダピ | BD | 564907;RRID:AB_2869624 | フローサイトメトリー |
| CD326 | BD | 563478;リッド:AB_2738234 | フローサイトメトリー |
| HIVmPGKCre VSVG | UIバイラルベクターコア | アイオワ州のVVC-U-7556 | レンティヴィルス |
| ZE5(イエティ)フローサイトメーター | バイオ・ラッド | フローサイトメトリー解析 | |
| KrasLSL-G12D/+ マウス | ジャクソン研究所 | 008179;リッド:IMSR_JAX:008179 | |
| TdTomatoリポーターマウス | ジャクソン研究所 | 007909;RRID:IMSR_JAX:007909 |
参考文献
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
再版と許可
タグ
