本研究は、組織幹細胞由来の腸オルガノイドを用いた細菌感染の in vitro 調査方法を提示します。このプロトコルは、2次元でオルガノイドを培養・分化する方法、浸潤性大 腸菌で感染させ、上皮バリア突破、感染イメージング、上皮RNA応答などの重要な指標を評価する方法を説明しています。
この記事について
サマリー
要約
オルガノイド技術は、健康と疾病における人間の生理学を研究するための実験 的なin vitro プラットフォームを提供します。がん由来細胞株やエクスプラントなど他の in vitro システムと比較し、組織幹細胞(TSC)由来のオルガノイドは、ゲノムの安定性を維持しつつ無限に増殖でき、CRISPR修飾にも対応できるという重要な利点があります。これらのオルガノイドは正常なTSCから生成されるため、起源組織の細胞タイプを含んでいます。これにより、オルガノイドは細菌と分化した非腫瘍性ヒト細胞との相互作用の研究に特に価値があります。腸オルガノイドは、基底膜エキス(BME)またはインバシンでコーティングされた細胞培養挿入物上に二次元偏極単一層として培養され、動物を使わず費用対効果の高い代替品として培養され、病原性浸潤性侵襲性 大腸菌感染のための主要な腸上皮細胞タイプに分化されます。主な感染指標には、逆転写定量PCR(RT-qPCR)による上皮遺伝子発現のモニタリング、共焦点顕微鏡による細菌-上皮相互作用の可視化、上皮バリア突破の定量化が含まれます。このプロトコルは他の臓器や細菌種の研究に容易に適応でき、オルガノイドにおける宿主と微生物の相互作用を調査するための多用途なプラットフォームを提供します。
概要
腸上皮は腸内腔内に存在する病原性細菌に対する最初の防御線を形成します。腸上皮のin vitroモデルは、細菌が上皮細胞とどのように相互作用し、これらの細胞が感染にどのように反応するか、細菌がどのように上皮バリアを突破するかを研究するために広く用いられています。これらのモデルは、制御された還元主義的な環境でヒト特異的病原体を調査する際に特に価値があります。歴史的に、in vitro感染生物学は腫瘍由来細胞株(例:Caco-2細胞)や、生体外で維持された患者由来のエクスプラントに依存してきました。近年では、ヒト組織幹細胞から生成された腸オルガノイドが、両者の利点を兼ね備えた強力なツールとして登場しています。細胞株と同様に、オルガノイドも通過、増殖、凍結保存、解凍、遺伝操作が可能です。またエクスプラントと同様に、すべての主要な上皮細胞タイプに分化できる非腫瘍性幹細胞から派生しています4,5。
マトリジェルやベースメント膜エキス(BME)などのマトリックスに埋め込まれると、ヒト腸オルガノイドは通常、先端が内側、基底面が外側を向く球状の偏極構造に自己組織化されます。ほとんどの腸病原体は頂端から上皮細胞にアクセスするため、この表面をオルガノイド内の細菌に曝露させるためのいくつかの戦略が開発されています。一つの方法は、細菌を直接オルガノイド腔6に微量注入することです。もう一つは、オルガノイドを細胞外マトリックスから放出し、極性を逆らし、懸浮中の「頂端アウト」オルガノイド7を生成する方法です。三つ目の戦略は、オルガノイドを単一細胞に解離し、細胞培養挿入にシードして分極した二次元単分子層(2次元オルガノイドシート)を形成し、頂端側が上部区画8に向かっていることです。最初の2つの方法には重要な制約があります。マイクロ注入は時間と労力を要し、スループットを制限し、頂端アウトオルガノイドはマトリックス支持なしで数日しか生きられず、区別が困難です。対照的に、2次元オルガノイドシートは高スループット実験(細菌を上部区画に追加するだけでよい)をサポートし、主要な腸上皮細胞タイプに分化しながら数週間維持可能です。
プラスチック表面に容易に付着する不死化細胞株とは異なり、オルガノイド由来細胞は効率的な接着のためにプレートコーティングが必要です。コーティングは希釈したBME10を用いるか、オルガノイド細胞のインテグリンに結合する細菌タンパク質であるインバシンを用いて行うことができます。インバシンは実験室で簡単に製造でき、BMEやマトリゲルよりもはるかにコスト効率が高く、完全に動物性を含まない。
このプロトコルは、腸オルガノイドを侵入性または基底膜抽出物(BME)でコーティングした細胞培養挿入挿入物上に、二次元の偏極単分子層として確立・分化することを記述します。分化したオルガノイドシートはその後、炎症性腸疾患に関連する病原性株である付随浸潤性大 腸菌 (AIEC)に感染します12。複数の下流感染指標を提示し、上皮反応と細菌の転座を評価する。AIECは上皮細胞に侵入し腸上皮を突破するため、これはその病原性に寄与すると考えられているため、上皮突破は、経上皮/経内皮電気抵抗(TEER)測定によるバリアの完全性確認後に細胞培養挿入物の基底外側チャンバーに到達する細菌を測定することで定量化されます13.感染単分子層の固定および画像診断による細胞内および細胞外AIECの可視化、また上皮の転写応答を評価するためのRNA抽出の手順も提供されています。この完全なプロトコルは2週間以内に実施可能で、BSL-2キャビネット、共焦点顕微鏡、定量PCR機器などの一般的な実験機器のみが必要です。
全体として、このプロトコルは、分化したヒト腸上皮の細菌感染をin vitroで研究するためのコスト効率が高く多用途かつアクセスしやすい方法を提供します。他のオルガノイド系や他の微生物種にも容易に適応できるため、 体外 感染生物学研究の有用な設計図となります。
プロトコル
ヒト腸オルガノイドは、ユトレヒト大学医療センター(UMCU)で大腸がん手術を受けた患者の老廃物から生成されました。患者は、地域の倫理委員会が承認したUPORT Cancer Biobank 21-042プロトコルに従い、オルガノイドの生成にインフォームド・コンセントを提供しました。 図1A はプロトコルの8つのセクションを示しています。試薬および装置の詳細は 材料表に記載されています。
1. 細胞培養挿入物のコーティング
- インバシンコーティング
- すべての処置は組織培養フード内で無菌状態で行ってください。
- 5 μg/mLのインバシン溶液を無菌リン酸塩緩衝塩水(PBS)に準備します。
- この溶液を100μLを、24ウェルプレートに置いた3μmの孔ポリエステル細胞培養挿入の上部区画に加えます。
- 膜が完全に覆われていることを確認しましょう。
- 4°Cで一晩孵化します。
注意:ディスペンション中に気泡が発生しないように注意してください。気泡は均一なコーティングを妨げます。
- ベースメント膜エキスによるコーティング(代替)
- 氷の上で解凍する地下室膜エキス。
- 氷のように冷たいDMEMで10%溶液を準備します。
注意:早期重合を防ぐために溶液は冷たい状態に保ってください。 - 各3μmの孔細胞培養挿入物の上部区画に希釈溶液100μLを加えます。
- 膜表面を完全に覆うことを確実にしてください。
- 室温で1時間培養します。
2. オルガノイド細胞のシーディング
- オルガノイドの調製
- 拡張状態(分割後3〜5日)に維持されたオルガノイドプレートから培地を除去します。
- オルガノイドを氷のように冷えたDMEM14に1mL再懸濁させます。
- 懸濁液を15mLの円錐形チューブに移し、4mLの氷冷DMEMを入ります。
注意:12ウェルプレートから約1つのフルウェルを使って4つの細胞培養挿入をシードしてください。
- ペルティングオルガノイド
- 遠心分離機で500 × g 、4°Cで5分間。
- 上澄液を完全に除去してください。
- 解離オルガノイド
- ペレットを3 mLの組換えトリプシン置換品に再懸浮させます。
- P1000ピペットを使って上下にピペットを動かし、オルガノイドを機械的に破壊します。
- 37°Cで15〜20分間培養し、単一細胞または小さなクラスター(3〜4細胞)が得られるまで行います。
注意:20分を超えないでほしい。解離を促すために5分ごとにピペットを使いましょう。さらに機械的な力が必要な場合は、P1000チップの中にP10チップを挿入します。
- 洗浄セル
- 氷のように冷えたDMEMを5mL加えます。
- 遠心分離機で500 × g 、4°Cで5分間
- 上清液を取り除きます。
- 細胞懸濁液の準備
- 細胞をエクスパンション培地に再懸濁します(1細胞培養インサートあたり100μL;エクスパンション培地の組成は 表1 参照)。
注意:抗生物質は含めないでください。アノイキ症を防ぐためにローキナーゼ阻害剤を導入しましょう。 - 細胞計数器やヘモサイトメーターを使って細胞数を数えます。
- 約2×10⁶ Cells/mLに調整してください。
- 細胞をエクスパンション培地に再懸濁します(1細胞培養インサートあたり100μL;エクスパンション培地の組成は 表1 参照)。
- 細胞培養挿入物のシーディング
- インサートからコーティング液を除去してください。
- 上部区画に100μLの細胞懸濁液(2×10個5 細胞)を加えます。
- 下部区画に膨張培地500μLを加えます。
3. 細胞培養挿入培養と分化
- 37°Cで5%のCO2 で収束に達するまで(約3日間)培養します。
注意:必要に応じて両方の区画で培地を4〜5日ごとに更新してください。 - 水が合ったら、両区画を事前に温めたDMEMで洗います。
- 下部区画に500μLの差別培地(表2)を追加します。
- 上部区画にHEPESおよびグルタマックス(AdvDMEM++)(表3)を補足した100μLのAdvanced DMEM/F12を追加します。
- 5%CO2で37°Cで5日間培養します。
- 両方の区画のメディアは2日に一度交換してください。
4. 経上皮/経内皮電気抵抗(TEER)の測定
- TEER電極を70%エタノールで15分間滅菌します。
- 無菌PBSで電極をすいでください。
- 短い電極を上部区画に、長い電極を下部区画に挿入します。
注意:電極の先端で単分子層に触れないでください。 - 抵抗値を記録しましょう。
- PBSを含むセルフリーインサート(上限100μL、下位500μL)を使ってブランク抵抗を測定します。
- TEERを計算します:TEER = (R_cell培養挿入物 − R_blank) × 表面積(cm²)
注:24井戸インサートの場合、表面積=0.33 cm²。
5. AIEC感染
- 細菌培養を準備する
- 蛍光AIECを3 mL LB培地に接種します。
- 37°Cで一晩抱卵し、振る。
注意:すべての細菌処置はBSL-2フード内で行ってください。
- 接種薬を準備してください
- 遠心分離機で500μL、1500 × gで5分間培養します。
- 1 mL AdvDMEM++に再懸浮。
- 光密度(OD)を測定します。
- AdvDMEM++で約1× 10⁸ CFU/mLに希釈します。
注:OD = 1はおよそ1 × 10⁹ CFU/mLに相当します。
- 単分子層への感染
- 両方の区画のメディアを交換してください。
- 下部区画に500μLの分化培地を加えます。
- 感染状態のために上部区画に100μLの細菌懸濁液を加えます。
- 感染していない状態のために上部区画に100μL AdvDMEM++を加えます。
- 37°C、5%のCO₂で培養します。
6. 上皮突破の評価
- 感染後2.5時間後に下部区画から100μLを採取します。
- PBSで希釈し、LB寒天にプレートします。
- 下部区画に100μLの新鮮分化培地を加えます。
- プレートを37°Cで一晩培養します。
- 感染後5時間後に再度サンプリングを行いました。
- 翌日、植民地形成ユニット(CFU)が行われました。
- 細胞培養挿入あたりのCFUを計算します:CFUs/細胞培養挿入物=5×希釈因子×コロニー数
7. イメージ感染
- 感染から5時間後に培地を取り出し、4%パラホルムアルデヒドで固定します。
注意:パラホルマルデヒドは有毒で揮発性があります。手袋を着用した状態で、フームフードの中にハンドルを置く。 - 30分間修正してください。
- PBSで3回洗ってください。
- 膜挿入部分を切除し、ウェルプレートに上向きに細胞を配置します。
- 蛍光ファロイジンで1〜2時間染みます。
- PBSで3回洗ってください。
- 核をDAPIで10分間染色します。
- PBSで3回洗ってください。
- ガラススライドに取り付け、取り付け用メディウムを貼り付け、カバースリップを貼ります。
- ネイルポリッシュでシールします。
- DAPI、アクチン、細菌チャネルの共焦点画像を取得します。
- 基底面から頂端面まで1μm間隔でZスタックを取得します。
- フィジーのオープン画像。
- 画像→Zプロジェクト→平均強度を選択してください。
- 断面図→画像→直交視点を選択してください。
8. 上皮反応の解析
- 感染から5時間後に培地を取り除く。
- 上部区画に350μLの溶解バッファーを追加します。
- ピペットで溶解細胞に移し、氷上のRNaseフリーチューブに移します。
- キットの指示に従ってRNA抽出を行います。
- RNA濃度を測定し、サンプルを正規化します。
- 逆転写を行います。
- 製造元の指示に従って定量PCRを実施してください( TNFα および参照遺伝子 βアクチン のプライマー配列は 表4に記載されています)。
結果
合流点に達した後、細胞培養挿入図上の腸細胞は単層に目に見える隙間のないモザイク状のパターンを示しました(図1B)。分化後、上皮の引き締まり性は経上皮電気抵抗(TEER)を測定して評価されました(図1C)。TEER値が500 Ω·cm²を超えると、緊密な上皮単層¹⁶の形成と一致していました。
基底外側区画で検出されたAIECの量は時間とともに増加し、これは細菌による上皮障壁の突破を反映しています(図2A,B)。下部区画にAIECが存在しない場合は、細菌転座の失敗を示します。
感染の可視化ワークフローは 図3Aにまとめられています。共焦点イメージングにより、核は基底に局在し、アクチンネットワークの頂端富集が見られる偏光単層の形成が示されました(図3B)。高倍率では、細胞内AIECおよび頂端膜に付着した細胞外細菌の両方が明らかになりました(図3C)。
RT-qPCR解析により、AIEC感染に対するTNFα発現のアップレギュレーションが認められ、上皮炎症反応の活性化が確認されました(図4A,B)。
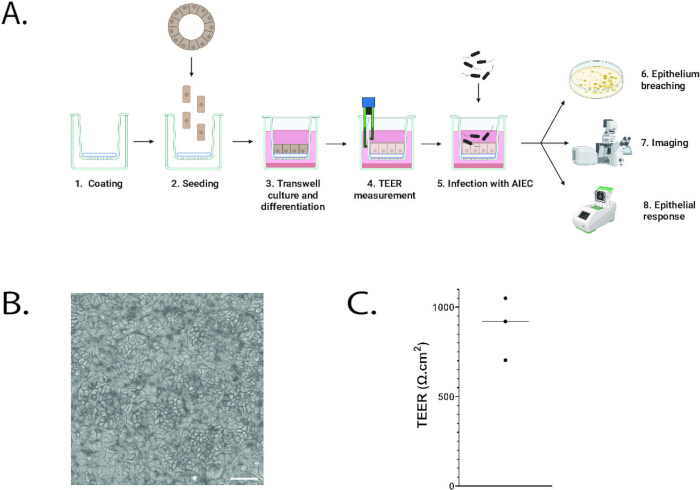
図1:プロトコルの概要。(A) プロトコルの設計図。 (B) 浸潤被覆細胞培養挿入図で培養・分化した腸オルガノイド細胞の明視野画像。スケールバー:腸オルガノイドの50μm .(C) 経上皮/経内皮電気抵抗(TEER)を、浸潤被覆細胞培養挿入体上で増殖・分化したもの。各点は独立した実験を示しています。 この図の拡大版はこちらをクリックしてご覧ください。
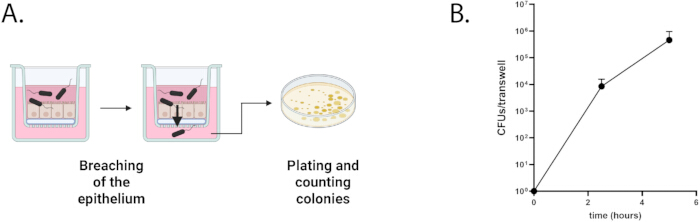
図2:上皮突破の評価(A) プロトコルの概説。 (b) 細胞培養挿入物の下部区画におけるAIECのコロニー形成単位(CFU)の時間経過による定量化。 この図の拡大版はこちらをクリックしてご覧ください。
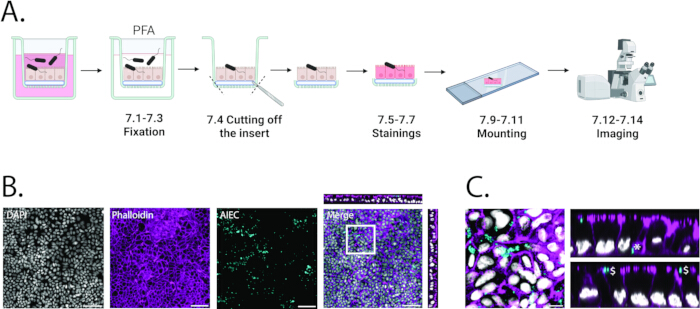
図3:画像感染。(A) プロトコルの設計図。 (B) 蛍光AIECに感染した腸オルガノイドの共焦点画像を5時間実施。グレー:DAPI。マゼンタ:ファロイジン。シアン:AIEC。スケールバー:50μm。統合画像の直交するビューは上部と右側に表示されます。 (C) Bの白い四角の高倍率。グレー:DAPI。マゼンタ:ファロイジン。シアン:AIEC。スケールバー:10μm。右側には直交する視点が示されています。細胞内AIEC(*)および上皮細胞の頂端膜に付着した細胞外AIEC($)が強調されています。 この図の拡大版はこちらをクリックしてご覧ください。
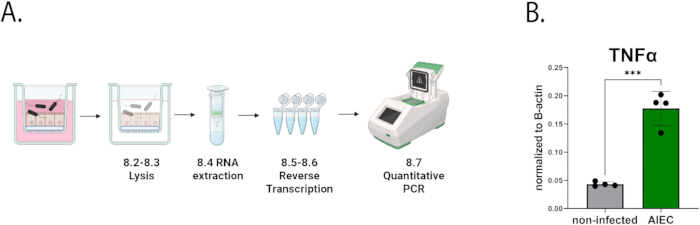
図4:上皮反応の解析。(A) プロトコルの設計図。(B) AIEC感染5時間後の腸オルガノイドによるTNFαの発現(緑)と非感染対照群(灰色)。TNFαの発現は、式2-(Cq(TNFα)-Cq(β-アクチン))を用いてB-アクチン発現に正規化されました。n=4 が複製します。統計解析は、ペアなしの学生のt検定を用いて行われました。P < 0.001.この図の拡大版はこちらをクリックしてご覧ください。
| 構成要素 | 集中 |
| アドヴィッドDMEM | 1X決勝 |
| ヘペス | 1% v/v |
| グルタマックス | 1% v/v |
| Wnt代理母 | 0.5 nM |
| R-spo1 UPE | 2% v/v |
| ノギンUPE | 1% v/v |
| ビタミンAなしのB27 | 2% v/v |
| N-アセチルシステイン | 1.25 mM |
| ニコチナミド | 10 μM |
| hEGF | 50 ng/mL |
| A83-01(TGF-β阻害剤) | 0.5 μM |
| SB202190(p38阻害剤) | 3 μM |
| プロスタグランジンE2 | 1 μM |
| ローキナーゼ阻害剤 | 10 μM |
表1:ヒト腸オルガノイドの膨張培地。 ヒト腸オルガノイドの維持および増殖に用いられる膨張培地の組成。
| 構成要素 | 集中 |
| アドヴィッドDMEM | 1X決勝 |
| ヘペス | 1% v/v |
| グルタマックス | 1% v/v |
| R-spo1 UPE | 2% v/v |
| ノギンUPE | 1% v/v |
| ビタミンAなしのB27 | 2% v/v |
| NAC | 1.25 mM |
| hEGF | 50 ng/mL |
表2:ヒト腸オルガノイドの分化培地。 ヒト腸オルガノイド単層の上皮成熟を促進するために用いられる分化培地の組成。
| 構成要素 | 集中 |
| アドヴィッドDMEM | 1X決勝 |
| ヘペス | 1% v/v |
| グルタマックス | 1% v/v |
表3:感染のためのアドベンティブDMEM++。 細菌感染アッセイで使用されるHEPESおよびグルタマックス(Adv DMEM++)を補足した高度なDMEM/F12培地の組成。
| 名称 | 順序 |
| TNFα F | ちゃんとちゃんとちゃんと |
| TNFα R | ATGGGCTACAGGCTTGTCACTC |
| βアクチンF | TGACGTTGACATCCGTAAG |
| βアクチンR | ガガッカトガッタガクト |
表4:TNFαのqPCRプライマー。 βアクチンを参照遺伝子として用いてTNFαの定量PCR解析に用いられたプライマー配列を示します。
ディスカッション
本研究では、TSC由来オルガノイドを細胞培養挿入で培養し、ヒト腸上皮細胞の細菌感染を調査するプロトコルを確立しました。3μmの孔径を持つ挿入は効率的な細胞付着と細菌移座を可能にし、0.4μmの孔はAIECの通過を許さず、これは大 腸菌の約1μmサイズと一致しています。オルガノイド細胞が3μmの孔を通って移動することは観察されず、これは上皮的かつ非侵襲的な表現型によるものと考えられます。
再現性には、効率的な細胞付着、適切なシーディング密度、感染前の完全な合流性など、いくつかの実験変数が重要でした。オルガノイド由来の上皮細胞はコーティングされていないプラスチックに付着しないため、コーティングが不可欠です。BMEは常に高いアタッチメント効率を提供していました。インバジンコーティングは同等の効果を生み出し、コスト効率の良い代替手段の一つです。ただし、自社で製造する必要があります。コラーゲンコーティングも代替案として提案されています。
細菌の増殖条件は感染効率に大きく影響します。大 腸菌 株はDMEMでよく育ちます。しかし、残留抗生物質は増殖を抑制することがある。最適な条件下では、感染菌は対照群に比べて濁度が増加し、頂端区画内容物のプレートで細菌の増殖を確認できます。
このイメージング戦略により、構成的プロモーターの下で蛍光色体を発現するAIECを標的化することで、細胞内および細胞外細菌の両方を可視化(例:プラスミドpMB1スペクト-PthrC-eGFPを用いる)ことが可能となりました。代替方法として、細胞内細菌の選択的検出が可能であり、18 の免疫蛍光染色や侵入の特定段階で発現する報告体などが含まれます。ゲンタミシン保護アッセイは、追加の定量的アプローチを提供します。
このモデルは意図的に還元主義的であり、細菌と腸上皮の直接的な相互作用に焦点を当てています。追加のin vivo細胞タイプを用いなくても、分化した上皮単層における感染の調査を可能にします。分化培地は主に腸血球およびゴブレット細胞の分化を誘導しましたが、上皮組成を変化させるために改変可能です。基底区画に免疫細胞や間質細胞を共培養することで、システムの複雑さを高めることができます。
このシステムは腸粘膜の三次元構造を再現しません。オルガン・オン・チップ・プラットフォームは構造的な制約を克服しますが、より高度な技術的複雑さとリソースを必要とします。さらに、細菌の過剰増殖により実験時間が約8時間に制限されるため、急性感染症に最適です。慢性感染をin vitroで研究するには、連続的な培地交換を可能にするマイクロ流体プラットフォームのようなより複雑なシステムが必要です。
同様の細胞培養挿入を用いたオルガノイド感染システムは、ヘリコバクター・ピロリ27,28に感染した胃オルガノイド、シゲラ29に感染した腸オルガノイド、Pseudomonas aeruginosa10に感染した気道オルガノイド、そしてEnterococcus faecalis30に感染した尿路オルガノイドなど、複数の組織や病原体に適用されています.したがって、このプロトコルは病原体特異的増殖要件を考慮しつつ、臓器系間での上皮細胞-細菌相互作用を調査するための多様な枠組みを提供します。
オルガノイド技術は、非形質化上皮細胞における宿主-病原体の相互作用を調査するための生理学的に関連性の高いヒトモデルを提供します4,5。抗生物質耐性感染症の増加と慢性炎症性疾患やがんとの関連を踏まえると、このようなin vitroシステムは機構的およびトランスレーショナルな研究において貴重なツールとなります。
開示事項
H.C.はオルガノイド技術に関連する複数の特許の発明者です。H.C.の全ての開示は https://www.uu.nl/staff/JCClevers/ で示されています。
謝辞
著者らは、ユトレヒト・ポータル・フォー・オルガノイド技術(UPORT)、特にアネタ・ブルサリ、ジョリエケ・サリジ、アーノルド・ビンダ、そしてユトレヒト大学医療センターの患者および外科医に大腸組織を提供してくれたことに感謝しています。また、著者らはAIEC株LF82を共有してくれたニコラス・バルニッチにも感謝しています。この研究はCRUK助成金OPTIMISTIC(C10674/A27140)によって支援されました。TGは、欧州連合のHorizon 2020研究・イノベーションプログラムの資金提供を受け、マリー・スクロドフスカ・キュリー助成金協定のもとで101107988されました。回路図はBioRender(https://www.biorender.com/)を用いて作成されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| A83-01(TGF&β阻害剤) | トクリス | 2939 | |
| 浸潤性大腸菌 LF82 | ニコラ・バルニッチからのご厚意 | ||
| 高度なDMEM/F12 | インビトロジェン | 12634-010 | |
| ビタミンAなしのB27 | インビトロジェン | 12587010 | |
| cDNAキット | 応用バイオシステム | 4387406 | マニュアルはこちらで入手できます:https://documents.thermofisher.com/TFS-Assets/LSG/manuals/MAN 0017977_highcap_cDNA_RT_UG.pdf |
| セルカウンター | デノヴィックス | H2796 | |
| セルカウンター | ライカ | ステラリス | |
| カバースリップ 24 mm x 50 mm | メンツェル・グランアウル;ゼル | BB024050S1 | |
| カルトレックスベースメント膜エキス(BME) | R&Dシステムズ、バイオテクネ | 3533-001-02 | |
| ダピ | シグマ・オルドリッチ | 10236276001 | |
| 使い捨てメス 滅菌 N°10 | スワン・モートン | 3033838 | |
| DMEM | ギブコ | 11965092 | |
| フィジー | フィジー | フィジーはオープンアクセスで、こちらからダウンロードできます:https://imagej.net/software/fiji/downloads | |
| グルタマックス | ギブコ | 35050-061 | |
| hEGF | ペプロテック | AF-100-15 | |
| ヘペス | ギブコ | 15630-080 | |
| インヴァーシン | Wijnakkerらによるカスタムメイド(PNAS 2024) | ||
| LB | サーモフィッシャー | CM0996 | |
| LBアガー | サーモフィッシャー | CM1116 | |
| マラセスチャンバー | コヴァ | 87144E | |
| 顕微鏡スライド | スカイクラフト | 18901 | |
| ミリセルボルトオームメーター(TEER測定) | メルク | MERS00002 | |
| 取り付け媒体 | ベクターズ研究所 | ベクタシールド H-1000-10 | |
| N-アセチルシステイン | シグマ・オルドリッチ | A9165 | |
| ニコチナミド | シグマ・オルドリッチ | N0636 | |
| ノギンUPE | IPA治療薬 | N002 | |
| パラホルマルデヒド溶液4% | シグマ・オルドリッチ | 1.00496 | |
| ファロイジン 647 | シグマ・オルドリッチ | 65906-10NMOL | |
| プラスミドpMB1-スペクト-PthrC-eGFP | アッドジーネ | 107408 | |
| プロスタグランジンE2 | トクリス | 2296 | |
| qPCRマシン | バイオラッド | C1000-タッチ | |
| ローキナーゼ阻害剤 | アブモール | M1817 | |
| RNA抽出キット | キアゲン | 74534 | マニュアルはこちらで入手できます:https://www.qiagen.com/us/resources/resourcedetail?id=bf60203 F-291D-48AE-8206-86B0696B28C0& lang=en |
| R-spo3 UPE | IPA治療薬 | R001 | |
| SB202190(p38阻害剤) | シグマ・オルドリッチ | S7076 | |
| スペクチノマイシン | シグマ・オルドリッチ | S9007 | |
| オルガノイド培養用の懸浮板 | グライナー | 665102 | |
| SYBRグリーン | バイオラッド | 170-8887 | マニュアルはこちらで入手できます:https://www.bio-rad.com/webroot/web/pdf/lsr/literature/4106212.pdf |
| サーモサイクラー | バイオラッド | T100 | |
| 細胞培養挿入 | Transwells 24w 3 & micro;毛穴だ、グライナー | 662631 | |
| トライトン X-100 | シグマ・オルドリッチ | T8787 | |
| トリップLE | Gibco、サーモフィッシャー・サイエンティフィック | 12605-010 | |
| Wnt代理母 | Uタンパク質発現 | カスタムオーダー | https://www.life-sciences-europe.com/organisation/protein-express-immunoprecise-group-utrecht-netherlands-west-europe-2001-30404.html |
参考文献
- McCoy, R., et al. In vitro Models for Investigating Intestinal Host-Pathogen Interactions. Adv Sci. 11 (8), 2306727(2023).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., Zucco, F. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Gustafsson, J. K., Ermund, A., Johansson, M. E. V., Schütte, A., Hansson, G. C., Sjövall, H. An ex vivo method for studying mucus formation, properties, and thickness in human colonic biopsies and mouse small and large intestinal explants. Am J Physiol Gastrointest Liver Physiol. 302 (4), G430-G438 (2012).
- Puschhof, J., Pleguezuelos-Manzano, C., Clevers, H. Organoids and organs-on-chips: Insights into human gut-microbe interactions. Cell Host Microbe. 29 (6), 867-878 (2021).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Kim, M., Fèvre, C., Lavina, M., Disson, O., Lecuit, M. Protocol for live imaging of bacteria-cell interactions in genetically modified mouse small intestinal organoids. STAR Protoc. 5 (1), 102773(2024).
- Co, J. Y., Margalef-Català, M., Monack, D. M., Amieva, M. R. Controlling the polarity of human gastrointestinal organoids to investigate epithelial biology and infectious diseases. Nat Protoc. 16 (11), 5171-5192 (2021).
- Moon, C., VanDussen, K. L., Miyoshi, H., Stappenbeck, T. S. Development of a primary mouse intestinal epithelial cell monolayer culture system to evaluate factors that modulate IgA transcytosis. Mucosal Immunol. 7 (4), 818-828 (2014).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Pleguezuelos-Manzano, C., et al. Dual RNA sequencing of a co-culture model of Pseudomonas aeruginosa and human 2D upper airway organoids. Sci Rep. 15 (1), 2222(2025).
- Wijnakker, J. J. A. P. M., et al. Integrin-activating Yersinia protein Invasin sustains long-term expansion of primary epithelial cells as 2D organoid sheets. Proc Natl Acad Sci U S A. 122 (1), e2420595121(2025).
- Darfeuille-Michaud, A., et al. Presence of adherent Escherichia coli strains in ileal mucosa of patients with Crohn's disease. Gastroenterology. 115 (6), 1405-1413 (1998).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Pleguezuelos-Manzano, C., Puschhof, J., van den Brink, S., Geurts, V., Beumer, J., Clevers, H. Establishment and culture of human intestinal organoids derived from adult stem cells. Curr Protoc Immunol. 130 (1), e106(2020).
- Anilionyte, O., Liang, H., Ma, X., Yang, L., Zhou, K. Short, auto-inducible promoters for well-controlled protein expression in Escherichia coli. Appl Microbiol Biotechnol. 102 (16), 7007-7015 (2018).
- Chen, S., Einspanier, R., Schoen, J. Transepithelial electrical resistance (TEER): a functional parameter to monitor the quality of oviduct epithelial cells cultured on filter supports. Histochem Cell Biol. 144 (5), 509-515 (2015).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), e59357(2019).
- Quereda, J. J., et al. A dual microscopy-based assay to assess Listeria monocytogenes cellular entry and vacuolar escape. Appl Environ Microbiol. 82 (1), 211-217 (2016).
- Schulte, M., Grotheer, L., Hensel, M. Bright individuals: Applications of fluorescent protein-based reporter systems in single-cell cellular microbiology. Mol Microbiol. 121 (3), 605-617 (2024).
- Sharma, A., Puhar, A. Gentamicin protection assay to determine the number of intracellular bacteria during infection of human TC7 intestinal epithelial cells by Shigella flexneri. Bio-protocol. 9 (13), e3292(2019).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture conditions. Cell Stem Cell. 23 (6), 787-793 (2018).
- He, G. -W., et al. Optimized human intestinal organoid model reveals interleukin-22-dependency of paneth cell formation. Cell Stem Cell. 29 (9), 1333-1345 (2022).
- Ding, L., et al. Toll-like receptor 9 pathway mediates Schlafen⁺-MDSC polarization during Helicobacter-induced gastric metaplasias. Gastroenterology. 163 (2), 411-425 (2022).
- Alonso-Roman, R., et al. Organ-on-chip models for infectious disease research. Nature Microbiol. 9 (4), 891-904 (2024).
- Jalili-Firoozinezhad, S., et al. A complex human gut microbiome cultured in an anaerobic intestine-on-a-chip. Nature Biomed Eng. 3 (7), 520-531 (2019).
- Vllahu, M., et al. Inflammation promotes stomach epithelial defense by stimulating the secretion of antimicrobial peptides in the mucus. Gut Microbes. 16 (1), 2390680(2024).
- Aguilar, C., et al. et al.Helicobacter pylori shows tropism to gastric differentiated pit cells dependent on urea chemotaxis. Nature Commun. 13 (1), 1-14 (2022).
- Llanos-Chea, A., et al. Bacteriophage therapy testing against Shigella flexneri in a novel human intestinal organoid-derived infection model. J Ped Gastroenterol Nutr. 68 (4), 509-516 (2019).
- Horsley, H., Dharmasena, D., Malone-Lee, J., Rohn, J. L. A urine-dependent human urothelial organoid offers a potential alternative to rodent models of infection. Sci Rep. 8 (1), 1238(2018).
再版と許可
