ここでは、ジャガイモブラックレッグ病および軟腐病の原因となる植物病原体 Pectobacterium brasilienseにおいて、無標識遺伝子欠失を生成し、ゲノム全体でTn5挿入変異体ライブラリを構築するためのプロトコルを紹介します。このアプローチにより、効率的な逆遺伝解析が可能となり、この生物における病原性関連遺伝子の機能的特徴付けが容易になります。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
方法論記事
Pectobacterium brasilienseにおけるマーカーレス遺伝子欠失および高密度Tn5トランスポゾン変異誘発のための毒素ベースのカウンターセレクションシステム
* These authors contributed equally
この記事について
サマリー
要約
ペクトバクテリウム・ブラジリエンセは、ジャガイモ塊茎軟腐病、ブラックレッグ、エアリアルステムロットの原因となる非常に病原性の高い細菌です。その病原性メカニズムの解明は病気の制御に不可欠です。しかし、この生物の遺伝的手法は依然として限られています。マーカーレス遺伝子欠失と高密度Tn5トランスポゾン変異誘発を可能にするために、毒素ベースのカウンターセレクションシステムが開発されました。pLP12プラスミド由来のvmi480毒素は、自殺ベクターpKV2を構築するためのカウンターセレクションマーカーとして用いられました。このシステムを用いて、P. brasiliense SM株のrecA遺伝子は正常に削除されました。その結果生まれたrecA変異体は、pKV2-LLtnpを運ぶRHO3ヘルパー株との接役により、12,000以上の変異体からなるTn5挿入ライブラリを構築する親株として機能しました。この派生物プラスミドでは、vmi480毒素が外向きのlacプロモーター制御下で極性影響を軽減するために高活性なTn5トランスポザーゼに置き換えられました。高スループットの塊茎接種アッセイにより、病原性欠損変異体の同定が可能となり、植物細胞壁分解酵素の分泌を媒介する主要な病原性決定因子であるタイプII分泌系への挿入も可能となりました。このプラットフォームは機能ゲノミクスを支援し、経済的に重要なこの病原体の病原性メカニズムの調査を促進します。
概要
P. brasilienseはPectobacterium属の中でも最も攻撃的な種の一つであり、ジャガイモ軟腐病、ブラックレッグ病、エアリアルステム腐病の原因となっています1。これらの病気は、世界で3番目に重要な食料源であり、中国の農業生産システムの重要な構成要素であるジャガイモの収量損失を推定で約30%も引き起こします。経済的影響にもかかわらず、P. brasilienseの病原性を支配する分子メカニズムは、この種の効率的かつ再現可能な遺伝子操作ツールが不足していることにより、依然として十分に解明されていません。
多くの植物病原細菌における機能ゲノム研究は、堅牢な対立遺伝子交換およびトランスポゾン変異誘発システムに依存しています。しかし、 P. brasiliense の類似遺伝学的手法は依然として限られているか、非効率的です。特に、この種に適合する効果的なカウンターセレクションマーカーは稀です。 sacB 遺伝子は様々な細菌における遺伝子欠失のカウンター選択マーカーとして広く利用されていますが、 P. brasiliense は選択過程で最大50%のショ糖に対する高い耐性を示す可能性があります5。この耐性は、ショ糖が酵素的に糖ポリマーに変換されることによる毒素への感受性の欠如を反映していると考えられます。さらに、高いショ糖濃度は有害な浸透圧ショックを引き起こす可能性があります。さらに、Tn5トランスポゾン挿入ライブラリーの構築のような効率的な大規模変異誘発法はまだ十分に確立されていません。
これらの技術的制約に対処するため、毒素ベースのカウンターセレクションシステムが開発され、 P. brasilienseに対して堅牢なTn5変異誘発スクリーニングワークフローが確立されました。従来のショ糖ベースの手法と比較して、この毒素ベースのアプローチは選択厳格性の向上、二重クロスオーバー事象の特定特異性の向上、交絡圧的浸透圧の除去など、明確な利点を提供します。同様のvmi480毒素抗毒素ベースのシステムは、 ビブリオ 種7において選択障壁を克服するために成功裏に実装されています。確立された手法は、未知遺伝子の高スループット機能特性解析に非常に応用可能であり、関連する軟腐菌 科にも適応可能な多様なプラットフォームを提供します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
1. P. brasilienseにおけるマーカーレスrecA欠失変異体の生成
- 標準的なDNA調製手法を用いて、大腸菌ドナー株からP. brasiliense SMおよびpKV2プラスミド(抗生物質選択マーカーおよび多重クローニング部位の修飾を経て得られたpLP12)からゲノムDNAを抽出します。
- 抽出されたゲノムDNAおよびプラスミドDNAの品質と濃度をアガロースゲル電気泳動およびナノドロップ分光光度測定で検証します。
- プラスミドpKV2を37°Cで EcoRIおよび NheIと2重消化し、5時間線形化します。アガロースゲル電気泳動による完全な消化を確認し、線形化されたプラスミドを精製します。
- ゲノム解析ソフトウェアを用いて 、recA 遺伝子の上流および下流に約800個のbp領域を特定し、対応するプライマーペアLBF/LBRおよびRBF/RBRを設計します(本研究で使用されるすべてのプライマーについては 「材料表 」を参照)。
- 標準的なPCRサイクル条件下で両同種アームを増幅し、PCR産物を精製します。50μLのPCRは通常2.5μgの生成物を得られます。
注: プライマーのTm値およびGC含有量は、相同領域の境界を修正することで調整できます。 - DNAアセンブリキットを用いて、精製された相同アームを線形化されたプラスミド骨格で結びつけて組換え自殺プラスミドpKV2-recAを組み立てます。
- 集合混合物を熱ショックで化学的に適合した 大腸菌 S17-1λpir細胞に変換し、LB培地で細胞を回収し、カナマイシンを含むLB寒天(LB + kan)にプレートします。
注: 最終に使用される濃度は、カナマイシン50 mg/mL、グルコース0.2%(w/v)、0.3%(w/v)アラビノース、0.3 mM 2,6-ジアミノピメル酸(DAP)です。 - 消化制限やコロニーPCRによる陽性クローンの検証。(本研究で使用されたすべての培地レシピについては 材料表 を参照)
- 確認されたpKV2-recAプラスミドを抽出し、熱ショック変換(予想変換率>106 cfu/μg)を用いて大腸菌WM3064に変換します。
- カナマイシンおよびジアミノピメル酸(DAP)を含むLB寒天上のトランスポマントを選択。
- ドナー株(WM3064 pKV2-recA)と受容株P . brasiliense SMの一晩培養を1:1(v/v)比率で混合し、通常104 から106 のトランスコンjugantを1ミリリットルあたり得ます。
- 混合培養液を滅菌水で一度洗浄し、混合液をカナマイシンとDAPを補ったLB寒天に置き、28°Cで48〜72時間培養します。
注: トランスコンジョガントが検出されない場合は、結合効率を高めるためにドナーとレシピエントの比率を2:1(v/v)に引き上げることができます。背景で高い成長が観察された場合、混合培養物を滅菌水で2回洗浄することで残留DAPを除去できます。 - 結合混合物をLB寒天に回収し、カナマイシンとグルコース(DAPなし)を含むLB寒天にプレートを回収し、カウンターセレクションを行います。
- 6〜8コロニーを選び、LB + kanとLB + kan + アラビノースの両方にレプリカプレートします。
- LB + kanで成長するがLB + kan + アラビノースでは成長しない群落を選択し、これらは初回クロスオーバー候補です。
- LB培地に接種し、初交差株を確定させて一晩培養。培養液をL-アラビノースを含むLB寒天にプレートし、第二の相同組換えを誘導します。
- いくつかのコロニーを選び、LB + アラビノースとLB + kanにレプリケートプレートします。LB + アラビノース上では成長するがLB + kan上には成長しない選択的なコロニー;これらは推定される recA 欠失変異体です。
注: 2回目の交差後にコロニーが見られない場合は、標的遺伝子が細菌増殖に必要かどうかを評価する必要があります。あるいは、相同組換え効率を高めるために、上流および下流の相同領域を1,200 bpまで拡張することも可能です。 - RicA変異体をコロニーPCRで確認し、RecAプロモーターおよび終端領域を増幅するプライマーペアCheckF/checkRを用いて標的遺伝子のインフレーム欠失を検証します。recAのフレーム内で正確な欠失を確認するためにPCR産物のシーケンスを行います。
- 欠失が成功した場合、PCR産物サイズが減少することで示され、これは野生型断片長から削除遺伝子断片の特異長を引いたものに相当します。
2. P. brasilienseにおけるTn5変異誘発のためのpKV2-LLtnpの構築
- pMCS2-LLtnp8 のTnpトランスポザーゼカセットをプライマーペアTnp-F/Tnp-Rで増幅し、プライマーペアori-F/ori-Rを用いてpKV2のoriγR6K Tn5骨格を増幅します。すべてのPCR産物はDNA精製キットを使用して精製してください。
- DNAアセンブリキットを使って、精製されたTnpカセットとoriγR6K Tn5骨格を組み立てます。集合混合物を熱衝撃により化学的に適切な 大腸菌 S17-1 λpir細胞に変換し、LB培地で回収し、カナマイシン(LB + kan)を補ったLB寒天にプレートします。
- プライマーペアori-F/ori-RおよびTnp-F/Tnp-Rを用いてコロニーPCRによる陽性クローンの検証。
- 大 腸菌 の適合細胞をLB培地に単一のコロニーを接種し、一晩培養して準備します。培養液を1:100で新鮮なLB培地に希釈し、OD600 0.6まで増殖させます。
- 培養液を氷で冷やし、予備冷却した0.1 M CaCl₂で細胞を3回洗浄します。最終ペレットを500μLの予備冷却した20%グリセロールに再懸浮し、−80°Cで保存します。
- 検証済み組換えプラスミド(pKV2-LLtnp)10 μLを熱ショックで100 μLのRHO3適格細胞に変換します(予想形質転換速度>106 cfu/μg)。氷で30分間孵化し、42°Cで45秒熱ショックを受け、その後氷で2分間冷ます。
- 培地500μLを加え、37°Cで1時間、攪拌しながら培養します。カナマイシンとDAP(LB + kan + DAP)を含むLB寒天にプレートし、37°Cで一晩培養します。
- Tnp-F/Tnp-Rを用いたコロニーPCRによる陽性のRHO3トランスポルジェントの検証。
3. P. brasilienseにおけるTn5トランスポゾン変異体ライブラリの構築
- P . brasiliense ΔrecA を28°CのLB培地で培養し、RHO3/pKV2-LLtnpをLB培地で37°CでカナマイシンとDAP(LB + kan + DAP)補足して培養します。 両方の株がOD600 /1に達するまで待ちます。
- P . brasiliense ΔrecA 100 μL と RHO3/pKV2-LLtnp 100 μL を混合し、混合物を遠心分離し、上澄液を捨て、洗浄したペレットを10 μLのLB培地に再懸浮させます。
- 再懸濁した混合物をDAPを補ったLB寒天プレートに置き、28°Cで8時間培養して接合を許可します。
- 1mLの無菌LB培地でプレート表面をすすいで共役混合物を回収します。遠心分離機で短時間分離し、上清液を捨て、LB培地でペレットを2回洗浄してDAPを除去します。
- 洗浄したペレットを300μLのLB培地に再懸浮し、カナマイシンとグルコース(LB + kan + グルコース、DAPなし)を補ったLB寒天に10回連続希釈をプレートし、トランス共役細胞を選定します。
- プレートは28°Cで48時間培養します。5つのコロニーを選び、プライマーペアori-F/ori-RおよびTnp-F/Tnp-Rを用いてコロニーPCRで検証し、Tn5トランスポゾンの導入が成功したことを確認します。5つのコロニーすべてをシーケンスして、Tn5のゲノム挿入を確認しましょう。
注: ミュータント図書館の正式な構築以前は、結合プレートから6つの単一コロニーが無作為に選ばれていました。プラスミド救助アッセイを用いて挿入部位を特定し、2つの異なる制限酵素を別々に並行した対照群として用いました。合計36回のシーケンスリードが得られました。単一のTn5挿入イベントは、各コロニーの6つの挿入部位が同一である場合にのみ検証されました。 - 結合ステップを繰り返し、コロニー数を数えてミュータントライブラリの容量を推定します。下流スクリーニングに十分なゲノムカバレッジを確保するために、ライブラリの総規模が12,000コロニーを超えることを確保してください。
注: 変異誘発頻度が低い場合は、E54K/M56A/L372P変異体のような高活性なTn5トランスポザーゼ変異体の使用を検討し、転座効率を高める必要があります。 - ステップ6で得られた個々の変異体コロニーを、1ウェルあたり200μL LB + kanを含む96ウェルプレートに移す。プレートは28°Cで一晩孵化し、200rpmで振る。
- 各ウェルに133μLの滅菌50%グリセロールを加え、最終濃度は約20%にします。96ウェルプレートは長期保存のために−80°Cで密封・保管してください。
4. ジャガイモ塊茎およびポット接種による高スループット病原性アッセイ
- ジャガイモの塊茎(cv. Favorita)を準備するには、滅菌水ですすいで、75%エタノールに短く浸してから、清潔な作業台で自然乾燥させます。塊茎を~8mmの厚さにスライスし、滅菌した90mmのペトリ皿に入れます。生物複製用に少なくとも3枚のスライスを用意してください。
- マルチチャネルピペットを用いて、96ウェルのミュータントライブラリーのプレートレイアウトに従い、各変異株1μLをジャガイモスライスに接種します。P . brasiliense ΔrecA を陽性対照として、LB + kanを陰性対照として含めます。
- 接種したジャガイモスライスを28°Cで7〜8時間孵化します。 ΔrecA 対照群と比較して、目に見える減少または病変領域が小さい変異体が記録されています。病変の面積を長さと幅を測定して定量化します。これらを一次スクリーニング候補として指定してください。
注:接種前にOD600の変異株培養および対照を0.8に正規化してください。 - 二次スクリーニングでは、各候補株を5μLを新鮮なジャガイモスライスに接種します(1スライスあたり6株、間隔が等)。各株ごとに3つの生物学的複製を準備してください。28°Cで7〜8時間培養し、病変の大きさを記録して減衰を確認します。
- LB + kanプレートにストリークすることで一貫した病原性低下を示す分離株。プレートは28°Cで一晩培養し、検証済みの低病原性変異体は4°Cで保存して後続分析を行います。
- 全植物の検証のために、ジャガイモの茎に150μLの細菌懸濁液を1×10⁸ CFU/mLに正規化して接種します。無菌注射器を使って基部ステム領域に懸浮液を注入します。48時間後の病気の進行を観察してください。3株の植物に生物学的複製を行います。
- ブラックレッグ病の等級尺度(「6点順序数スケール:0、1、3、5、7、9」)を用いて疾患の重症度をスコアリングし、疾患指数を次のように計算します。
- グレード0:植物全体に病気の症状なし。
- グレード1:茎病斑は茎の周囲の3分の1以下を覆い、または葉がしおれます。
- グレード3:茎病変は茎の周囲の半分以下を覆い、葉の半分以下が軽度の萎凋を示し、または下部の葉に病変が見られます。
- グレード5:茎の病変が茎の周囲の半分以上を覆い、葉の半分以上が軽度の萎凋を示します。
- グレード7:茎の病変が茎の周囲全体を囲み、葉の3分の2以上がしおれています。
- グレード9:植物の葉はすべてしおれたか枯れています。
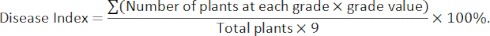
- 確定された減弱変異体の長期貯蔵用貯蔵を、無菌50%グリセロールを同量の混合液で最終濃度25%にし、-80°Cで保存します。
5. プラスミドレスキューによるTn5挿入部位の同定
- 関心のあるTn5変異体を培養し、細菌ゲノムDNA抽出キットを使ってゲノムDNAを抽出します。DNA濃度を定量化し、下流の消化に必要な十分な入力を確保しましょう。
- 100μL反応液と酵素5μLを含む100μL反応で、 EcoRIとともに1×〜2μgのゲノムDNAを消化し、37°Cで最低3時間培養します。アガロースゲルを使って消化完了を確認します。
- 消化したDNAに3M酢酸ナトリウムの1/10と絶対エタノール3の量を加えて沈殿させます。よく混ぜて-20°Cで1時間培養します。
- 13,500 x gで遠心分離機で5分間処理し、75%エタノールと絶対エタノールで連続して洗浄します。ペレットを自然乾燥させ、17μLの滅菌水に再懸浮させます。
- 消化済みDNA断片を自己結合し、10 μLの10× T4 DNAリガーゼバッファーと1 μLのT4 DNAリガーゼを加えます。背景変換を確認するために、ネガジンコントロール(リガーゼなし)を含めてください。4°Cで一晩培養し、制限断片の円形化を促進します。
- 前述の熱ショック形質転換を用いて、10μLの結合混合物を化学的に適切な E. coli S17-1 λpirに変換します。LB内で細胞を1時間回収し、カナマイシンを含むLB寒天(LB + kan)にプレートしてTn5カセットを持つプラスミドを選定します。
- ランダムに5つのカナマイシン耐性コロニーを選び、標準的なプラスミドミニプレップキットを使ってプラスミドDNAを抽出します。各プラスミドを500 ng HindIIIで消化し、37°Cで5時間培養することでプラスミド構造の検証を行います。アガロースゲル電気泳動による消化パターンの解析。
- もしプラスミドバンドサイズが予想される断片パターンと一致した場合、Tn5末端にある5' MEプライマーを用いてサンガーシーケンスを行います。
- BLASTまたはゲノム解析ソフトウェアを用いて、Tn5 5'-ME領域下流の50〜100塩基の側接配列を P. brasiliense SMゲノムに整列させることで、正確なTn5挿入部位を特定します。
- 各変異体に対する5つの独立した配列決定反応が同じゲノム座標(配列同>98%の配列同一性)にマッピングされていることを確認します。
- 5つの配列決定反応のいずれかが異なるゲノム座標にマッピングされていれば、その変異体に複数のTn5挿入部位が存在することを示します。そのような場合は、追加のコロニーを解析してすべての挿入位置を特定してください。あるいは、より明確な挿入部位マッピングを得るためにサザンブロッティングや全ゲノムシーケンシングを行う方法もあります。
- すべての配列反応で単一の一貫した挿入部位を持つ変異体を、下流の表現型解析に適した正真正銘のTn5単一挿入変異体として指定します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
P. brasilienseのsucB変異による不安定性を克服するため、プラスミドpLP12由来のvmi480毒素をカウンターセレクションマーカーとして用い、抗生物質耐性カセットを交換しクローニング部位の構成を調整して修正自殺ベクターpKV2(図1A)を構築しました。マーカーレスのrecA欠失変異体を生成するために、recA遺伝子の左および右の相同アーム800bpをpKV2にクローニングし、その後2段階の選択手順を経て二重クロスオーバー組換えを得ました。プライマーペアLBF/RBRおよびサンガーシーケンスを用いたPCR検証により、変異体と野生型の間に約600 bpの差があり、recAの成功した削除が確認されました(図1B)。
recA変異株を受容者として用いて、Tn5トランスポゾン変異体ライブラリを構築し、12,000体以上の個別変異体を得ました。ジャガイモ塊茎(
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
本研究で開発された遺伝子操作戦略は、ジャガイモの主要な軟腐病原体であるP. brasilienseにおける機能ゲノミクスの選択肢を提供します9,10。毒素ベースのカウンターセレクションシステムを自殺プラスミドの骨格に統合することで、マーカーレスのΔrecA変異体が生成されました。このアプローチは従来のsacBベースシステムに比べて大きな利点を持ちます。SacBはP. brasilienseの固有のショ糖耐性と浸透圧感受性により高い背景成長をもたらすことが多い一方で、毒素ベースのシステムは二重クロスオーバー事象において選択厳密性と特異性の向上を提供します。得られるΔrecA株は安定化背景として機能し、非特異的相同組換えを排除し、その後のトランスポゾン挿入の遺伝的安定性を確保します。さらに、recA遺伝子の欠失は病原性や適応度コストに...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者には利益相反を主張するものはありません。
謝辞
この研究は、中国国家自然科学基金(32472504および32561143029からX.Z.、32201914からJ.W.)、広東基礎応用基礎研究基金(2024A1515012708からX.Z.)、内モンゴル自然科学基金(2024QN03044からU.H.)、および珠江人材プログラム(2021QN02N151からX.Z.)の支援を受けました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 細菌ゲノムDNA抽出キット | 細菌ゲノムDNAの抽出 | Tiangen | DP302-02 |
| ジアミノピメリン酸 | 1 L培地中の0.3 mM | Macklin | D836611-5g |
| DNA組立キット | DNA組立 | Vazyme | C116-02 |
| DNA精製キット | DNA精製 | Tiangen | DP214-02 |
| カナマイシン | 50 mg/mL | Aladdin | K103025-25g |
| グルコース | 0.2% (w/v) | Aladdin | G116305-250mg |
| トリプトン | 1 L培地中の10% | OXOID | LP0042B |
| 酵母エキス | 1 L培地中の5% | OXOID | LP0021B |
| NaCl | 1 L培地中の10% | Biofroxx | 1249KG001 |
| アガー | 1 L培地中の15% | Biofroxx | 8211GR500 |
| L-アラビノース | 0.3% (w/v) | Aladdin | A106196-25g |
| プラスミドMiniprepキット | プラスミド抽出 | Tiangen | DP103-02 |
| EcoRI | 制限エンドヌクレアーゼ | Yugong Biotech | EG15536 |
| NheI | 制限エンドヌクレアーゼ | Yugong Biotech | EG15552 |
| HindIII | 制限エンドヌクレアーゼ | Yugong Biotech | EG15539 |
| T4 DNAリガーゼ | 直鎖DNA自己環化 | Yugong Biotech | EG15205 |
| 遠心分離機 | RWD | M1324R | |
| PCRサーマルサイクラー | BIO-GENER | GET3XG | |
| デジタルカメラ | SONY | ILCE-7M4 | |
| 電気泳動システム | LY | DYY-6C | |
| 水浴 | JOANLAB | WB100-1F | |
| ゲル記録システム | Thermo Fisher Scientific | iBright CL750 | |
| オートクレーブ | Yamato | SQ510C | |
| 振とうインキュベーター | ZHICHU | ZQZY-AR8 | |
| 恒温インキュベーター | ZQ | DHP-9272 | |
| NanoDrop | Thermo Fisher Scientific | Lite Plus | |
| UV-Vis分光光度計 | HITACHI | U-3900 | |
| エレクトロポレーター | BIO-RAD | MicroPulser | |
| 株とプラスミド | |||
| P. brasiliense SM | ジャガイモ病原菌 | 研究室株コレクション | |
| E. coli S17-1 &λ;pir | E. coliコンピテントセル | WEIDI | DL2010S |
| E. coli WM3064 | E. coliコンピテントセル | BIO SCI BIO | C1039 |
| E. coli RHO3 | E. coliコンピテントセル | 研究室株コレクション | |
| pKV2 | 改変された自殺型プラスミド | 本研究で構築 | |
| pLP12 | 自殺型プラスミド | 研究室株コレクション | |
| pMCS2-LLtnp | Tn5を含む断片の提供 | 研究室株コレクション | |
| pKV2-LLtnp | Tn5断片を含む改変プラスミド。 | 本研究で構築 | |
| プライマー | |||
| LBF (ctgaaagcttctgcaggagctcgctgacccaacaatccttgattaagatgaggc) | カスタマイズ | ||
| LBR (gttcagccaccattctgctcctgtcatgcggcgt) | カスタマイズ | ||
| RBF (caggagcagaatggtggctgaacgggttgtgac) | カスタマイズ | ||
| RBR (gatcctgcagcggagcggccgcgcagatcgcgggcaaggttagtc) | カスタマイズ | ||
| checkF (ctatgcgcttcgcataccgtgc) | カスタマイズ | ||
| checkR (gctcttgctcataattgtcctgg) | カスタマイズ | ||
| TnpF (ggaatctagaccttgagtcgatatcactctcgtttaatgctg) | カスタマイズ | ||
| TnpR (acaaacaaaaccaaattctgtacggcgaag) | カスタマイズ | ||
| ori-F (taatcgccttgcagcacatc) | カスタマイズ | ||
| ori-R (ggtatgagtcagcaacacct) | カスタマイズ | ||
| 5’ME (attcattaatgcagctggcacg) | カスタマイズ |
参考文献
- Martínez-Prada, M. D. M., Curtin, S. J., Gutiérrez-González, J. J. Potato improvement through genetic engineering. GM Crops Food. 12 (1), 479-496 (2021).
- Wang, N., Reidsma, P., Pronk, A. A., de Wit, A. J. W., van Ittersum, M. K. Can potato add to China’s food self-sufficiency? The scope for increasing potato production in China. Eur J Agron. 101, 20-29 (2018).
- Sun, Y., et al. Comparative genomic and transcriptome analyses of two Pectobacterium brasiliense strains revealed distinct virulence determinants and phenotypic features. Front Microbiol. 15, (2024).
- Liu, Y., Filiatrault, M. J. Complete genome sequence of the necrotrophic plant-pathogenic bacterium Pectobacterium brasiliense 1692. Microbiol Resour Announc. 9 (12), e00037-20(2020).
- Moleleki, L. N., Pretorius, R. G., Tanui, C. K., Mosina, G., Theron, J. A quorum sensing-defective mutant of Pectobacterium carotovorum ssp. brasiliense 1692 is attenuated in virulence and unable to occlude xylem tissue of susceptible potato plant stems. Mol Plant Pathol. 18 (1), 32-44 (2017).
- Polyudova, T., Eroshenko, D., Korobov, V. The effect of sucrose-induced osmotic stress on the sensitivity of Escherichia coli to bacteriocins. Can J Microbiol. 65 (12), 895-903 (2019).
- Luo, P., He, X., Liu, Q., Hu, C. Developing universal genetic tools for rapid and efficient deletion mutation in Vibrio species based on suicide T-vectors carrying a novel counterselectable marker, vmi480. PLoS One. 10 (12), e0144465(2015).
- Lv, W., et al. Essential gene dynamics across distinct growth conditions in Xanthomonas citri. Hortic Res. 12 (9), uhaf160(2025).
- Toth, I. K., Bell, K. S., Holeva, M. C., Birch, P. R. J. Soft rot erwiniae: from genes to genomes. Mol Plant Pathol. 4 (1), 17-30 (2003).
- Mansfield, J., et al. Top 10 plant pathogenic bacteria in molecular plant pathology. Mol Plant Pathol. 13 (6), 614(2012).
- Pineau, C., et al. Structure-function analysis of pectate lyase Pel3 reveals essential facets of protein recognition by the bacterial type II secretion system. J Biol Chem. 296, 100305(2021).
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
再版と許可
この記事は公開されました
動画は近日公開