SNRNP70 変形性関節症(OA)の診断マーカーとしての可能性を示し、OA組織での発現は対照群よりも一貫して低いです。また、抗炎症作用も発揮する可能性があり、治療的な道筋を示唆しています。今後の機構研究はOA管理の進展に役立つ可能性があります。
研究記事
SNRNP70 は変形性関節症における局所癒着関連の特徴や軟骨球炎症と関連しています
* These authors contributed equally
この記事について
サマリー
要約
変形性関節症(OA)は軟骨の進行性損傷と滑膜炎症を特徴とする変性関節疾患ですが、その発症の主要な分子要因はまだ完全には解明されていません。本研究では、前mRNAスプライシングに不可欠なU1 snRNP複合体のコア成分であるSNRNP70がOAの進行に寄与するかどうかを調査しました。10件の公開トランスクリプトミクスデータセットの解析で、OA軟骨SNRNP70が正常対照群と比較して一貫してダウンレギュレーションを示しました。メタアナリシスではOAの診断精度も良好で、統合されたAUCは0.92でした。インターロイキン-1β(IL-1β)で刺激された一次性ラット軟骨球では、炎症状態下でSNRNP70発現が抑制されました。SNRNP70の強制発現は、炎症促進メディエーター(IL-6およびMMP-13)の産生を減少させるだけでなく、主要な細胞外マトリックス(ECM)成分(ACANおよびCOL2A1)を回復させ、軟骨球の移動と創傷治癒を促進しました。ピアソンの相関と続いてKEGG濃縮により、局所癒着シグナル伝達がSNRNP70調節に関連する経路であることが示されました。救助実験は、SNRNP70がこの経路を活性化することで軟骨細胞の修復能力を少なくとも部分的に高めるという考えを支持しました。これらの発見は、SNRNP70がこれまで認識されていなかった炎症性軟骨細胞機能および軟骨恒常性の調節因子として機能する可能性を示唆しています。また、スプリセオソーム活性と局所癒着媒介マトリックス合成との機序的関連の可能性も示唆し、OAにおける候補診断マーカーまたは治療標的としてのSNRNP70のさらなる評価が検討されるべきです。
概要
変形性関節症(OA)は、主に65歳以上の人々に多く見られる一般的な関節疾患であり、世界人口の約7%に影響を及ぼしています1,2。驚くべきことに、1990年から2019年の間に、世界的なOAの有病率は驚異的な113.25%も急増し、2億4,751万件から5億2,781万人に増加しました。3。OAは主に関節組織内での変性変化の進行を特徴とし、特に軟骨の劣化と滑液炎症が顕著に現れます。特に、機械的過負荷と時間の絶え間ない経過が、その発症に最も顕著な2つのリスク要因として確立されています7,8。さらに、半月板変性がOA9の複雑な病理において不可欠な要素として果たす重要な役割を強調する研究が増えています。これまでの研究では、半月板病変がOA患者の68%から90%に及ぶことが説得力を持って示されています。
分子レベルでは、OAが単なる生体力学的ストレスや加齢の結果であるだけでなく、遺伝子調節や転写後制御の複雑な変化によって引き起こされる疾患であることが増えつつある証拠が増えています(12,13,14)。これらのメカニズムの中で、スプリセソームはさまざまな疾患の文脈で注目を集めています。興味深いことに、炎症の病因に関する広範な研究の焦点となっている一方で、スプリセオソームがOAに果たす役割は依然として著しく十分に研究されていません(15,16,17)。本質的に、スプリセオソームはタンパク質を基盤とした金属リボザイムとして概念化できます18,19。これらのメカニズムの中で、RNAスプライシングは軟骨細胞表現型およびECM恒常性の重要な決定要因として浮上しています。精密なスプライシングは軟骨の完全性に不可欠な構造的およびシグナル伝達タンパク質の正しい発現を保証しますが、異常なスプライシングはECMのターンオーバーを妨げ、異化代謝経路を促進し、軟骨の変性を加速させる可能性があります20,21,22。
最近の研究では、スプリセオソームタンパク質が関節組織の恒常性の主要な調節因子であることが強調されていますが、これらのタンパク質がOAの病因に果たす役割については、まだほとんど解明されていません。特に、U1小核リボ核タンパク質複合体のコア成分であるSNRNP70は、プレmRNA処理中の5′スプライス部位の認識を支配し、特定のエクソンの包含または除外に影響を与えます24,25。SNRNP70の調節障害は様々な病理的状態に関与しているとされていますが、軟骨変性への寄与はこれまで明らかにされていません。スプリセオソーム媒介による調節の潜在的な標的の一つは、中心シグナル伝達分子である局所接着キナーゼ(FAK)であり、これは軟骨細胞の接着、細胞骨格の動態、生存率、機械的伝達を制御する中心シグナル伝達分子です。FAK活性の上昇は局所接着シグナル伝達の増加と関連しており、これはECM合成を促進し、アグリカン(ACAN)やコラーゲンII型アルファ1(COL2A1)などの主要な軟骨特異的タンパク質のアップレギュレーションを促進します27,28。これらのタンパク質は軟骨の構造と機能を維持するために不可欠であり、そのダウンレギュレーションはOAの進行の特徴です。
OAにおける転写およびエピジェネティック研究の進展にもかかわらず、スプリセオソーム媒介のFAK調節が局所接着シグナル伝達およびECM代謝の制御に果たす役割は依然として不十分に定義されていません。これらの観察に基づき、 SNRNP70 FAK代替スプライシングや下流の局所癒着シグナル伝達を調節することで軟骨細胞の挙動やECM恒常性に影響を与える可能性があると推論されました。この考えを検証するために、最初の質問はOAで SNRNP70 表現が変化しているかどうかでした。診断指標としての可能性が評価され、軟骨細胞における炎症反応および局所癒着関連経路との関連性が探られました。
プロトコル
この動物研究プロトコルは、広西医科大学および広西医科大学第一附属病院の倫理委員会(プロトコルコード202109001、NO.2022-KY-E-252)によって承認されました。
注意:すべての手続きは、機関および国家の動物ケアガイドラインに従う必要があります。訓練を受けた職員は、動物やサンプルを扱う際にはPPE(手袋、マスク、白衣)を着用しなければなりません。手術には十分な麻酔と術後のモニタリングが必要です。出血、感染、行動の変化などの有害事象は速やかに報告してください。死骸や汚染物質は適切に処分してください。定期的な施設検査を実施し、遵守を確実にしてください。本研究で使用される動物、試薬、機器の商業的な詳細は 材料表に記載されています。
患者と遺伝子発現データセット
OAにおける SNRNP70 の発現パターンを調査するため、公開されているRNAシーケンシング(RNA-seq)およびマイクロアレイデータセットをGene Expression Omnibus(GEO)データベース(https://www.ncbi.nlm.nih.gov/geo/)から体系的に取得しました。検索戦略には「SNRNP70 OR RPU1 または Snp1 または U1AP OR U170K OR U1RNP OR RNPU1Z または SNRP70 または U1-70K」と「OA」の組み合わせが組み込まれました。包含基準は以下の通りに定義されました:(i) ヒトサンプルから得られたデータセット;(ii) 関節リウマチやその他の炎症性関節疾患を除外したOAに特化した研究;(iii) OA群および正常対照群(NC)群の両方で少なくとも3つの独立した生物学的複製が存在し、標準化された平均差(SMD)の計算が可能であること。データ処理ワークフロー:適格なデータセットを特定した後、生の発現データおよび対応する臨床メタデータをダウンロードしました。マイクロアレイデータセットでは、プローブレベルのデータはロバストマルチアレイ平均(RMA)アルゴリズムを用いて正規化され、プローブはプラットフォーム注釈ファイルを使って公式の遺伝子シンボルに注釈付けされました。RNA-seqデータセットでは、生カウントを1百万あたりのtranscripts(TPM)値に変換し、log2変換してデータセット間の比較可能性を確保しました。複数のプローブが同じ遺伝子にマッピングされた場合、サンプル間で最も発現分散が大きいプローブが保持されました。品質管理と調和:異なる研究間でのバッチ効果を最小限に抑えるため、「sva」RパッケージのComBat関数を適用しました。補正前後に主成分解析(PCA)を実施し、バッチ効果除去の有効性を評価しました。質が低く、注釈が不完全であったり、OA群とNC群の区別がつかないデータセットは、さらなる解析から除外されました。
OAおよび正常軟骨組織における差異発 現SNRNP70 の特定
OAと正常軟骨(NC)組織間の SNRNP70 の差異発現を評価するために、多段階解析アプローチが用いられました。まず、利用可能なデータセットから SNRNP70 の表現データを抽出しました。OA群とNC群間の統計比較は、平均発現レベルが有意に異なるかどうかをStudentのt検定を用いて行われました。 SNRNP70の識別力をさらに評価するために、GraphPad Prism 8.0とSangerboxプラットフォーム(http://vip.sangerbox.com/)を用いて受信機動作特性(ROC)曲線が生成されました。曲線下面積(AUC)は、 SNRNP70 発現レベルの診断効率を定量化するために計算されました。
次に、Stata 14.0を用いて複数のデータセットにまたがる結果を統合するメタアナリシスが実施されました。統計的異質性はコクランQ検定とI2 統計量を用いて評価されました。異質性が低い場合(p > 0.01、I2 < 50%)には固定効果モデルが適用されました。それ以外の場合は、ランダム効果モデルが採用されました。標準化平均差(SMD)と対応する95%信頼区間(CI)を計算し、OAとNC組織間の発 SNRNP70現 差異を定量化しました。診断の正確性のために、StataのMidasモジュールを用いて診断メタアナリシスが実施されました。この分析では、 SNRNP70の感度、特異度、正尤比(PLR)、負尤度比(NLR)、診断オッズ比(DOR)を統合した。さらに、診断性能の総合評価を提供する要約受信機動作特性(sROC)曲線も構築されました。最後に、個別データセットを逐次除外して感度分析を行い、プールされた結果の堅牢性と安定性を評価しました。潜在的な出版バイアスはディークスのファネルプロット非対称性検定を用いて評価されました。この統合分析フレームワークを用いて、OA組織におけるSNRNP70の発現パターンと診断能力をNC組織と比較して体系的に評価しました。
細胞分離と培養
一次軟骨細胞は出生後2日目のスプラグ–ドーリーラットの関節軟骨から単離されました。各分離には合計6頭の新生ラットが使用されました。動物は出生後初期に採取されたため、性別は判別されませんでした。各独立した細胞調製剤ごとに、6匹すべてのラットの軟骨組織を採取し、培養前にプール化しました。それぞれ独立した軟骨細胞製剤は、別々の動物群から得られ、1つの生物学的複製として扱われました。同じ細胞製剤からの繰り返しウェルやqRT-PCR反応の繰り返しを含む技術的複製は独立した生物学的複製とはみなされませんでした。
要するに、新生児ラットは無菌状態で安楽死させられ、膝関節を解剖して関節軟骨を露出させました。軟骨組織は微細外科用ハサミで軟骨下骨から慎重に分離され、約1 mm³の断片に細かく刻まれ、酵素で順次消化されました。組織断片はまず0.25%トリプシン-EDTAと37°Cで30分間インキュベートされ、残留結合組織を除去しました。リン酸塩緩衝食塩水で洗浄した後、残りの断片は0.2%コラーゲン酵素II型と共に血清フリーDMEMで37°Cで4〜6時間、穏やかな攪拌とともに消化されました。得られた細胞懸濁液は70μmの細胞ストレーナーでろ過され、300×gで5分間遠心分離され、10%胎児用牛血清、100 U/mLペニシリン、100 μg/mLのストレプトマイシンを補足した完全なDMEMに再懸濁されました。細胞は培養フラスコに播種され、5%のCO₂を含む加湿インキュベーターで37°Cで維持されました。媒体は2〜3日ごとに交換されていました。脱分化を最小限に抑えるため、その後の実験ではパッセージ1または2の軟骨細胞のみが使用されました。
軟骨細胞の同一性と純度は実験使用前に確認されました。形態学的には、一次細胞は位相差顕微鏡下で典型的な多角形または石石状軟骨細胞の外観を示しました。分子レベルでは、軟骨関連マーカー(COL2A1およびACANを含む)の発現をウェスタンブロットで確認しました。 in vitro 炎症モデルでは、一次軟骨細胞を10 ng/mLの組換えラット白血球1β(IL-1β)で48時間刺激しました。同じ条件下で培養された未処理細胞が正常な対照群として機能しました。 SNRNP70 過剰発現実験では、独立した生物学的製剤からの軟骨細胞を別々にトランスフェクトし、各生物複製体を独立して処理し、トランスフェクション、IL-1β刺激、RNA/タンパク質抽出、統計解析を行いました。
リアルタイム定量PCR(qRT-PCR)
RNAfast200キットを用いてサブコンフルエント軟骨細胞培養(~80%のコンフルエンス)から総RNAを単離しました。RNA純度はNanoDrop 2000で評価され、A260/280比率が1.8–2.0のサンプルのみを受け入れ、完全性は1%のアガロースゲル電気泳動で確認されました。第一鎖cDNAはqPCR RT Kitを用いて、ランダムプライマーとdNTPを含む20μL反応で1μgのRNAから逆転写しました。逆転写の熱プロファイルは42°Cで30分間、続いて95°Cで5分間でした。qPCRはリアルタイムPCRシステム上でSYBR Greenベースのプリミックスで実施されました。各20μL反応は、10μLのSYBRグリーンマスターミックス、各0.5μLの順方向および逆プライマー(10μM)、2μLのcDNA、7μLのヌクレアーゼフリー水で構成されていました。サイクル条件は、95°Cで30秒、次に95°Cで5秒、60°Cで30秒のサイクルでした。増幅後に溶融曲線解析を行い、単一製品の特異性を検証しました。 GAPDH が内部参照として機能し、相対式は2−ΔΔCt 法で計算されました。反応は3つの独立した生物学的複製で3回ずつ行われました。プライマー配列は 表1に記載されています。
ウェスタン・ブロット
IL-1β処理および過剰発現後の軟骨細胞におけるACAN、COL2A1、MMP13のタンパク質発現SNRNP70評価されました。細胞は氷のように冷たいリン酸塩緩衝生理食塩水(PBS)で2回洗浄し、プロテアーゼおよびリン酸化阻害剤を含むRIPAバッファーで溶解しました。溶解液は氷上で30分間培養され、周期的な渦を刻み、その後12,000 × g で4°Cで15分間遠心分離されました。 除去された上清液中のタンパク質濃度はBCAキットを用いて測定されました。同量のタンパク質(1レーンあたり30μg)を10%SDS-PAGで分離し、湿式移送でPVDF膜に移しました。膜は室温のTBSTで5%無脂肪ミルクで1時間ブロックし、その後4°Cで一晩ACAN(1:1000)、COL2A1(1:1000)、またはMMP13(1:1000)に対する一次抗体でプローブしました。3回のTBST洗浄(各10分)後、膜はHRP結合二次抗体(1:5000)で室温で1時間インキュベートされました。信号はECL試薬を用いて開発され、ChemiDoc XRS+システムで捕捉されました。バンド密度測定はImageJで行われ、すべてのターゲットタンパク質シグナルは負荷制御としてGAPDHに正規化されました。データは対照群 に対する 相対的なタンパク質レベルとして提示されます。
トランスフェクション
培養が約80%の合流に達すると、コンドロサイトはSNRNP70過剰発現プラスミド(OE-SNRNP70)でトランスフェクトされました。トランスフェクションでは、細胞を1ウェルあたり2×10⁵細胞で6ウェルプレートにシードし、標準培養培地(DMEMに胎児用牛血清10%とペニシリン/ストレプトマイシン1%を補足)で、37°C、5%のCO₂で一晩付着させました。トランスフェクションは製造元の指示に従いLipoFiter 3.0を使用して行われました。簡単に言えば、1ウェルあたり2〜3 μgのプラスミドDNAを血清フリー培地100 μLに希釈し、適切な量の脂質試薬と混合しました。DNA脂質複合体は室温で15〜20分間培養され、複合体形成を促した後、各軟骨細胞を含むウェルに新鮮で血清を含まない培地に優しく加えました。6時間後、培地は細胞毒性を抑えるために完全な培養培地に置き換えられました。
トランスフェクションの効率およびSNRNP70発現は、トランスフェクション後48〜72時間で評価されました。SNRNP70 mRNAレベルは定量リアルタイムPCR(qRT-PCR)で測定され、内部対照はGAPDHでした。タンパク質発現は、製造元のプロトコルに従い、Simple Western Automated Western Blot Systemを用いて評価されました。簡単に言えば、細胞溶解液が準備され、タンパク質濃度が測定され、サンプルが毛細管カートリッジに搭載され、自動分離と抗SNRNP70抗体による免疫検出が行われました。トランスフェクション効率は、OE SNRNP70トランスフェクトされた細胞のSNRNP70発現と空のベクターをトランスフェクトした対照細胞の発現を比較することで算出されました。
免疫蛍光
免疫蛍光法を用いて、IL-1β刺激後のOE SNRNP70軟骨細胞におけるIL-6およびMMP-13タンパク質レベルを調べました。簡単に言えば、細胞は24ウェルプレートの無菌ガラスカバースリップにシードされ、標準条件下で70〜80%の合流率に達するまで培養されました。その後、4%パラホルムアルデヒドで室温で15分間固定し、PBSで3回洗いました。透過化には、室温で10分間PBS中の0.1%トリトンX-100を適用しました。非特異的結合部位は、5%牛血清アルブミン(BSA)を室温で1時間PBSで培養することで遮断されました。
ブロッキング後、細胞はIL-6およびMMP-13に対する一次抗体(1:200で1%BSA/PBSに希釈)を用いて4°Cで一晩インキュベートしました。未結合の一次抗体を除去するためにPBSで3回洗浄した後、細胞は室温暗室で1時間、種特異的蛍光色体結合二次抗体(希釈した1:500)と共に1時間培養されました。核は4′6-ジアミジノ-2-フェニリンドール(DAPI)で5分間補色されました。カバースリップはアンチフェードマウントメッキを用いたガラススライドに取り付けられ、蛍光顕微鏡で20×倍率で蛍光画像を撮影しました。定量解析のために、ImageJで標的タンパク質の蛍光強度を測定するために、サンプルあたり10個のランダムに選ばれた細胞を分析しました。各グループごとに平均蛍光強度を計算し、統計比較に用いられました。
細胞スクラッチ創傷閉鎖アッセイ
異なる治療条件下で人工創傷隙間を閉じる軟骨細胞の能力を評価するために、スクラッチ創傷閉合アッセイが実施されました。一次軟骨細胞は6ウェルプレートに1個×10個5 細胞の密度でシードされ、約90%の合流に達するまで培養されました。無菌の200μLピペットチップを用いて細胞単分子層内に線形スクラッチを生成しました。剥離した細胞はPBSで2回洗浄して除去し、指定された処理を含む新鮮な完全培養培地を加えました。細胞群は正常対照群、IL-1β処理群、IL-1β加 えSNRNP70 過剰発現群に割り当てられました。同じ創傷部位の画像は、逆立顕微鏡でスクラッチ後6時間および12時間後に撮影されました(補足図1)。創傷閉合は、0時間時の初期創傷面積に対する創傷面積の減少率として計算され、以下の式を用いて算出されました。
創傷閉合率(%) = [(0時間時の創傷面積 - 指定時刻の創傷面積) ÷0時間時の創傷部位] ×100。(1)
統計解析
すべての定量データは、特に明記がない限り、3つの独立した生物学的複製(n=3)の平均±標準偏差(SD)として提示されています。統計解析はGraphPad Prism 8.0を用いて実施されました。2つのグループ間の比較には、ペアなしのStudent氏t検定が用いられました。統計的有意性は以下の通り示されました:*p < 0.05および**p < 0.01。
結果
関節腔組織におけるSNRNP70発現
OAにおける SNRNP70 の役割を包括的に調査するため、厳格な包含・除外基準を満たす10の公開されているRNA-seqおよびマイクロアレイデータセットの体系的スクリーニングが実施されました(表2)。 SNRNP70 発現レベルはこれらのデータセット全体で慎重に抽出・分析されました。注目すべきは、10コホート中6コホートで、OA組織で SNRNP70 発現が正常対照群と比較して有意にダウンレギュレーションされ(p < 0.05)、転写抑制の一貫したパターンを示唆していることを示しました(図1)。
注目すべきは、3つのデータセット(GSE114007、GSE169077、GSE19060)では、OAサンプルと対照群の間に統計的に有意な差が見られなかったことです。これらの不一致を無視するのではなく、バッチ補正やデータセット統合戦略を用いて分析の堅牢性と信頼性を高めました。具体的には、同一のシーケンスプラットフォームから派生したデータセットを統合し、統計的検出力を高めました。例えば、GSE114007はGSE89408と組み合わせてGSE114007-89408を生成し、GSE169077、GSE12021、GSE55457は統合されてGSE169077-12021-55457に統合されました(図1)。この統合的アプローチにより、研究間変動が最小限に抑えられ、発見の再現性が強化されました。まとめると、ヒトデータセットの解析により、OA関節組織における SNRNP70 の一貫したダウンレギュレーションが示されており、診断バイオマーカーとしての可能性を示唆しています。しかし、この減少がヒトにおけるスプライシング調節障害や軟骨変性を直接引き起こすかは不明であり、できればヒト組織モデルでの検証が待っています。
SNRNP70の臨床診断能力
OAにおける SNRNP70 の診断価値を厳密に評価するため、165件のOAサンプルと125件の正常対照群からのデータを統合した包括的なメタアナリシスが実施されました。これは、現時点で得られる最良の知識の中で、OAにおける潜在的な診断バイオマーカーとしての SNRNP70 の体系的な評価を表しています。異質性解析ではデータセット間で有意な異質性が明らかになりました(I2 = 72.9%; p = 0.001)であり、ランダム効果モデルを必要とします。統合解析では、OA組織における SNRNP70 発現の強固かつ一貫した減少が正常対照群と比較して示され、標準化平均差(SMD)は-1.07(95%信頼区間:-1.34から-0.80)(図2A–B)。発現プロファイリングに加え、 SNRNP70 の診断性能もさらに評価されました。統合診断検査の結果、感度は合計0.82(95%CI:0.57–0.94)、特異度0.88(95%CI:0.73–0.95)であり、強力な識別能力を示しました(図3A)。一貫して、要約受受者動作特性(SROC)曲線は曲線下面積(AUC)0.92(95%信頼区間:0.90–0.94)を示し、OA患者と健康者の区別において SNRNP70 の高い精度をさらに強調しました(図3B)。
これらの発見の堅牢性を確保するために感度分析が行われ、個々のデータセットの逐次除外が全体の効果量に大きな変化を与えなかったことが確認されました(図4A)。重要なのは、ディークの漏斗プロット非対称性検定(p = 0.41)とエッガー検定の両方で有意な論文バイアスが認められず、結果の信頼性を強化したことです(図4B)。これらのデータは、OAで SNRNP70 発現が減少していることを示し、診断バイオマーカーとして機能する可能性を示唆しています。とはいえ、データセット間の異質性や独立した検証コホートの不在は注意が必要です。したがって、これらの結果は予備的なものと見なされており、OAの診断および管理における SNRNP70 の臨床的有用性を明らかにするためのさらなる研究が待っています。
SNRNP70 OAにおける炎症遺伝子発現の調節
OA進行中の炎症シグナル伝達における SNRNP70 の調節役割を明確にするため、まず軟骨細胞に炎症促進サイトカインであるIL-1βを曝露することでin vitro OAモデルが確立されました。IL-1β刺激48時間後に行われたqRT-PCR解析では、NC群と比較して SNRNP70 mRNAレベルの有意なダウンレギュレーションが認められました(図5)。炎症性条件下での SNRNP70 発現の抑制は、公開されているOAデータセットのトランスクリプトムデータと整合しており、OA関連炎症において SNRNP70 が一貫して抑制されているという強力な証拠を提供しました。発現 SNRNP70 回復が軟骨球炎症表現型を調節できるかどうかをさらに調査するため、 細胞はSNRNP70 過剰発現プラスミド(oe-SN)を用いてトランスフェクトされました。驚くべきことに、 SNRNP70 の強制発現はIL-1β誘発炎症を大幅に緩和し、転写および翻訳の変化の両方に反映されています。具体的には、qRT-PCRはOE-SN群でIL-1β処理対照群と比較してIL-6およびMMP-13 mRNAレベルが著しく減少していることを示しました(図5)。
これらの分子的発見に加え、免疫蛍光染色は SNRNP70の抗炎症作用を細胞内で直接的に示しました。IL-1β処理細胞では、IL-6は活発な炎症状態と一致する顕著な細胞質蓄積を示しました。注目すべきは、 SNRNP70 の過剰発現によりIL-6細胞質染色強度が著しく減弱され(図6A)、細胞レベルで炎症反応を逆転させる能力が浮き彫りにされたことです。MMP-13でも同様のパターンが観察され、IL-1β処理は発現を増加させたものの、 過剰 発現SNRNP70 MMP-13の局在化とシグナル強度は著しく抑制されました(図6B)。
主に構造軟骨損傷に焦点を当てた従来の研究とは異なり、ラット軟骨細胞からの in vitro データは、 SNRNP70 炎症遺伝子発現の調節因子として作用することを示唆しています。具体的には、このラットモデルにおいて、IL-6およびMMP-13を含む SNRNP70 弱められたIL-1β駆動の炎症促進メディエーターの強制発現を行った。重要なのは、これらの実験がラットの炎症モデルのみで行われたため、人間のデータセットの発見を直接再現していないことです。それでもなお、これらの結果は概念的な枠組みを提供し、 このSNRNP70 が単なるスプライシング因子であるだけでなく、炎症の調節因子としても機能する可能性を示しており、ヒト組織でのさらなる研究に値する可能性を示しています。
OAにおける SNRNP70関連経路の特定
変形性関節症における SNRNP70 発現に関連する生物学的経路を探るため、Pearson相関解析をGSE98918、GSE117999、GSE129147、GSE51588、GSE169077_12021_55457、GSE114007-89408、GSE82107-19060の公開トランスクリプトムデータセットで別々に実施しました。絶対相関係数(|r|)が0.8>、 p が0.05<の遺伝子は、各データセットで SNRNP70 発現と有意な相関があると考えられました。すべてのデータセットにわたる相関遺伝子の結合が生成され、929個の SNRNP70関連遺伝子が得られました。
その後、clusterProfilerパッケージを用いてKEGG経路濃縮解析を行い、Benjamini–Hochberg法による複数回検査の調整も行いました。この解析により、局所接着経路を含む複数の経路で同定された遺伝子の有意な濃縮が明らかになりました(図7)。このシグナル伝達カスケードは軟骨細胞の癒着、機械伝達、ECMの再構築を調節することが知られており、これらはすべてOAの進行における重要なプロセスです。これらの発見は、OAデータセットにおけるSNRNP70発現と局所癒着関連遺伝子発現シグネチャーとの関連を示唆しています。
SNRNP70 局所癒着経路を通じて炎症性軟骨細胞修復を媒介します
炎症性軟骨細胞の創傷治癒能力におけるSNRNP70の役割を評価するため、一次軟骨球を用いてスクラッチ創傷閉合アッセイを実施しました。細胞群は正常対照群、IL-1β処理群、IL-1β加えSNRNP70過剰発現群の3つに分類されました。IL-1β刺激は、正常対照群と比較してスクラッチギャップ閉鎖の程度を減少させ、炎症状態下での創傷治癒能力の低下を示しました。対照的に、SNRNP70過剰発現はIL-1β処理単独に比べてIL-1β処理された軟骨細胞のスクラッチギャップ閉鎖を促進しました(図8A)。これらの結果は、SNRNP70過剰発現がIL-1β治療軟骨細胞の創傷閉鎖応答を増加させることを示しています。
分子レベルでは、ウェスタンブロット解析によりIL-1β処理が軟骨マトリックスタンパク質のACANおよびCOL2A1の発現を抑制し、分解酵素MMP13のアップレギュレーションを促進することが示されました。重要なのは、 SNRNP70 の過剰発現が ACAN および COL2A1 レベルを回復させただけでなく、MMP13のダウンレギュレーションも有意に低下させ、その結果ECMの完全性を維持できたことです(図8B)。機構論的には、 in vitroで、 SNRNP70 の有益な効果は局所接着シグナル伝達経路の活性化と密接に関連していました。
ヒトデータセットの分析は、OAで SNRNP70 がダウンレギュレーションされ、その発現が局所癒着経路に関与する遺伝子と相関していることが明らかになりました。IL-1β刺激を受けたラット軟骨細胞では、 SNRNP70 の強制発現が炎症細胞修復とECM合成を促進し、局所癒着シグナル伝達とも関連します。これらのラットモデルからの in vitro 観察は示唆的ですが、ヒトデータセットから得られた結果を直接裏付けるものではありません。それでも、これらの収束する証拠は、局所癒着シグナル伝達を通じて SNRNP70 がヒトOAの病因に寄与するというモデルを支持しており、この仮説は現在、ヒト組織や人間関連のある in vivo モデルで確定的な確認を待っています。
データの利用可能性:
本研究で使用・解析されたデータセットは、GEOデータセット(https://www.ncbi.nlm.nih.gov/geo/)から入手可能です。本研究で生成または分析されたすべてのデータは、原稿内で完全に提示・議論されています。この研究の生データは補足ファイルとしてアップロードされています。
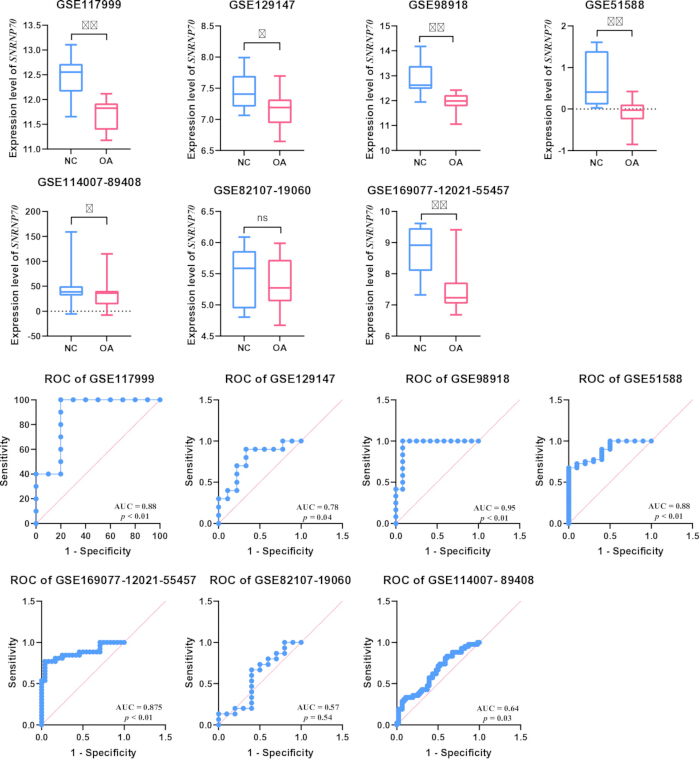
図1:7つの研究における学生のt検定とROC曲線。 結果は、 SNRNP70 GSE117999 、GSE129147、GSE98918、GSE51558、GSE114007-89408、GSE169077-12021-55457(p < 0.05)において、OA組織の発現がNO組織よりも低いことを示唆し、ROC AUCは高い実現可能性を示しました。 p < 0.05 (*)、 p < 0.01(**)。 この図の拡大版はこちらをクリックしてご覧ください。
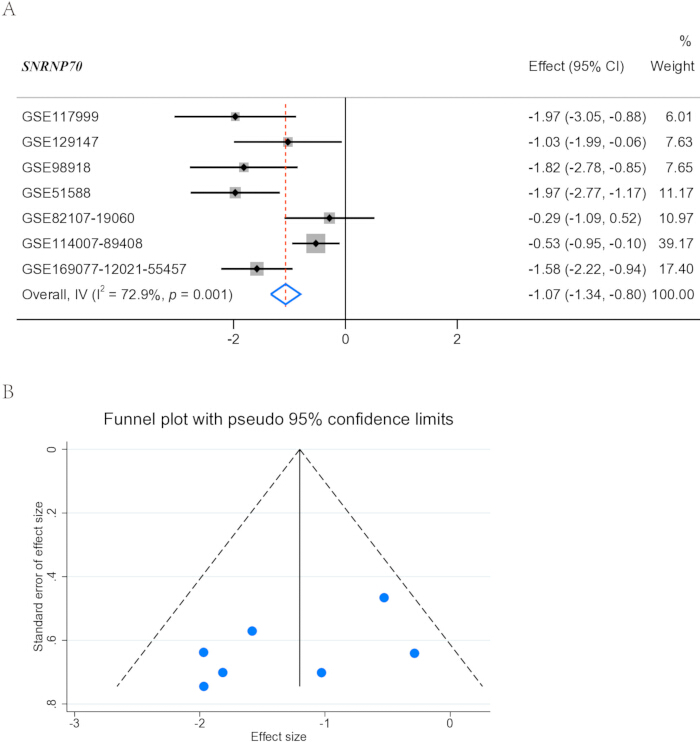
図2:7つのデータセットのメタアナリシス。 (A) 結果はI2 = 72.9%、 p = 0.001、全体のSMDは-1.07であることを示しました。(B) ファンネル図はメタアナリシスにおける出版バイアスを評価した。基本的に左右対称であることが判明しました。 この図の拡大版はこちらをクリックしてご覧ください。
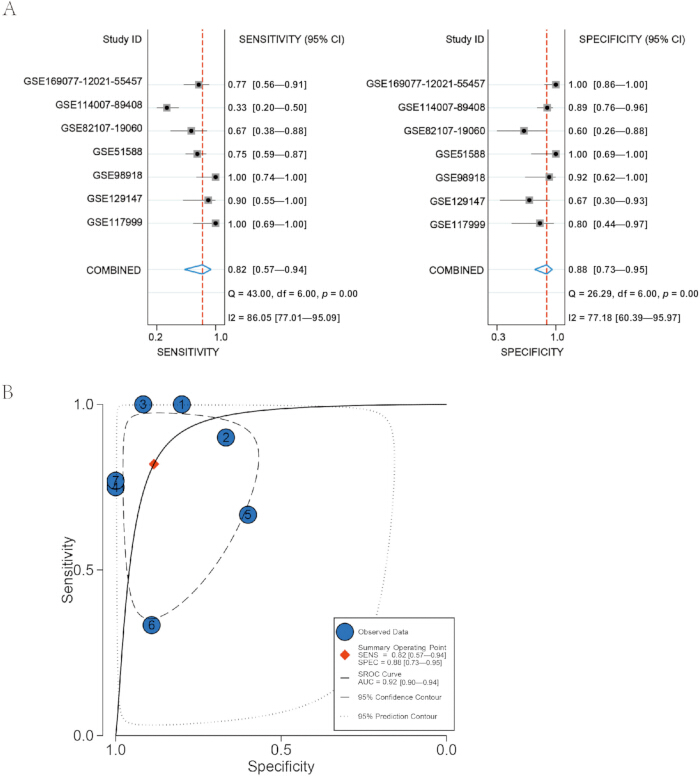
図3: SNRNP70の診断性能。 (A) Q検定の結果、感度と特異度の両方が p値<0.05、I2値はそれぞれ86.05%と77.18%であり、かなりの異質性を示しました。研究では感度0.82、特異度0.88と報告され、その顕著な性能が強調されました。(B) sROCのAUCは0.92で、研究に対する高い信頼度を示しています。 この図の拡大版はこちらをクリックしてご覧ください。
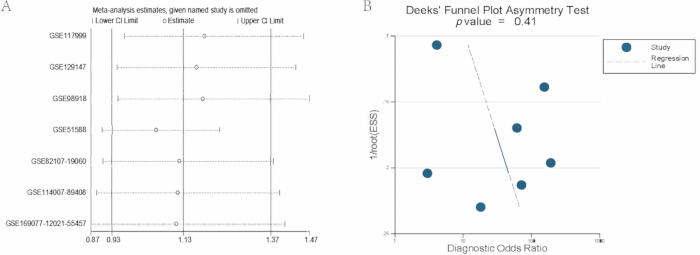
図4:影響分析とディークの漏斗プロット。 (A) 影響分析の結果、個別の研究を除外しても全体の結果に顕著な影響はなかった。(B) 7つの研究すべてに有意なバイアスは認められませんでした(p = 0.41)。 この図の拡大版はこちらをクリックしてご覧ください。
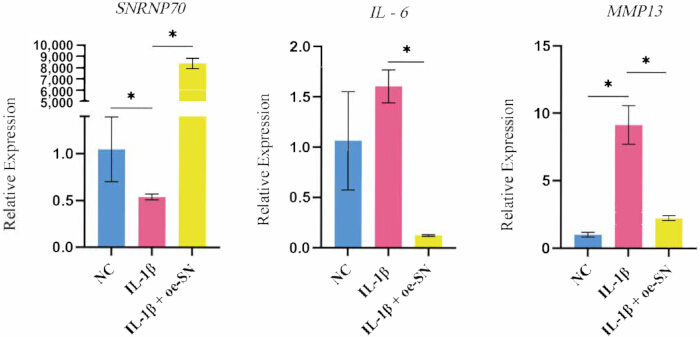
図5:qRT-PCRの結果は、IL-1β治療後の軟骨細胞における SNRNP70 発現の有意な減少を示しています。 OE-SN群では、炎症マーカーIL-6およびMMP13の発現レベルがIL-1グループと比較して有意に低下しており、IL-1βで治療された軟骨細胞の炎症マーカーの過剰発現が SNRNP70 の過剰発現を逆転させることを示唆しています。データはn=3個の独立した生物学的複製からの平均 ± SD として提示されます。 p値は0.05(*)、 p値は0.01(**)<<、p値は0.01(**)です。 この図の拡大版はこちらをクリックしてご覧ください。
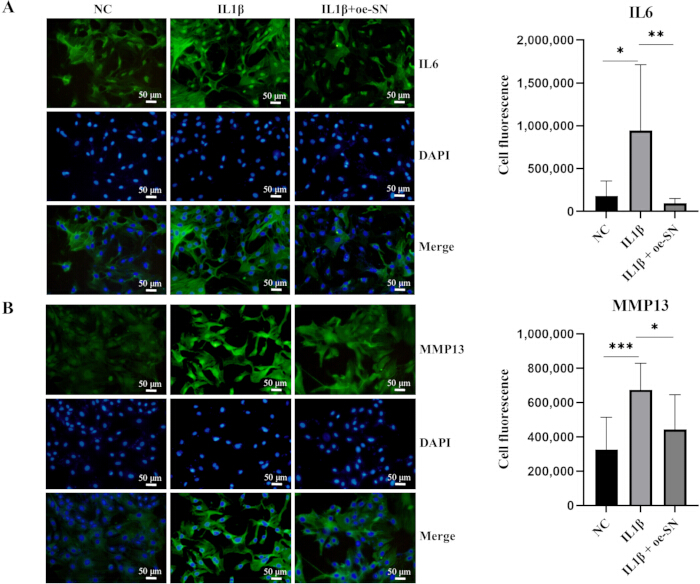
図6:IL-1β処理後のIL-1β処理軟骨細胞のIF解析で蛍光強度を示した。 (A) IL-6の蛍光強度および (B) MMP13が有意に増加した。しかし、 SNRNP70 の過剰発現により炎症マーカーIL-6およびMMP13の蛍光強度が著しく低下しました。これらの結果は、 SNRNP70 過剰発現がIL-1β処理軟骨細胞の炎症を緩和する可能性を示唆しています。すべての顕微鏡画像は10倍倍で撮影されました。データはn=3個の独立した生物学的複製からの平均 ± SD として提示されます。 p値は0.05(*)、 p値は0.01(**)<<、p値は0.01(**)です。スケールバー=50μm。 この図の拡大版はこちらをクリックしてご覧ください。
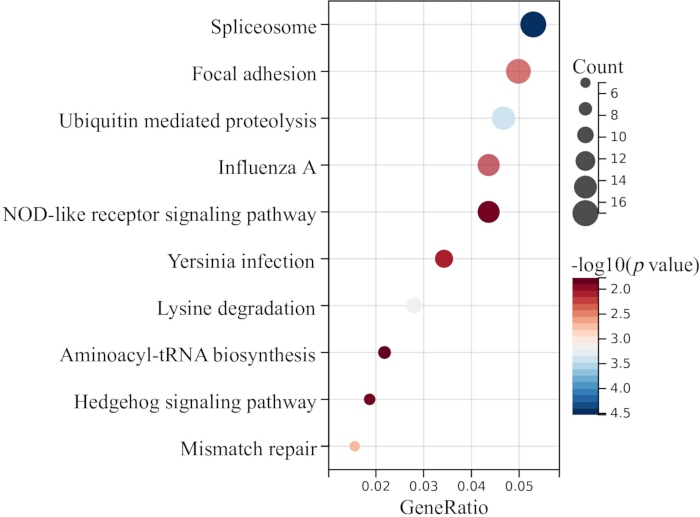
図7:変形性関節症データセットにおける SNRNP70関連遺伝子の相関に基づくKEGG濃縮解析。 clusterProfilerによって特定された上位10の濃縮経路(Benjamini–Hochberg補正)。バブルサイズ=遺伝子数;color = 有意性(-log10(p 値))。局所癒着経路(強調)は軟骨細胞の癒着、機械伝達、骨炎におけるECMリモデリングを媒介します。 この図の拡大版はこちらをクリックしてご覧ください。
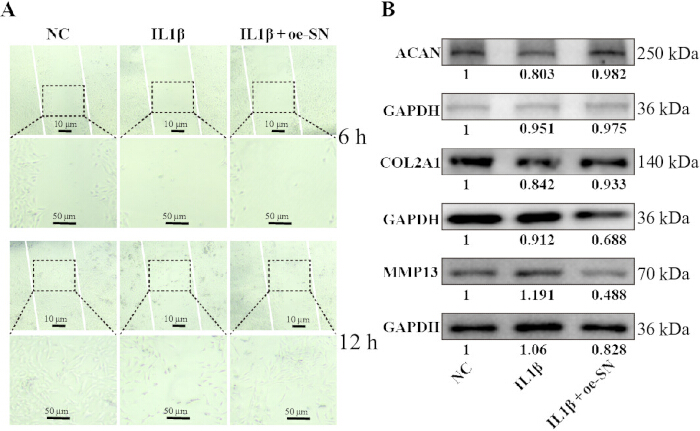
図8:IL-1β処理軟骨細胞における SNRNP70 過剰発現がECM修復を回復させる。 (A) 対照群、IL-1β処理済み、IL-1βと 共にSNRNP70過剰発現軟骨球のスクラッチ創傷閉合画像。(B) 主要な軟骨マトリックスおよび異化タンパク質の代表的なウェスタンブロット。膜はACAN、COL2A1、MMP13のプローブリングを行いました。GAPDHは負荷制御として示されています。倍率は以下の通りです:NC、IL-1β、IL-1β+oe-SN群:4倍倍率ではスケールバー=10μm。10倍倍で:スケールバー=50μm。 この図の拡大版はこちらをクリックしてください。
補足図1:創傷閉合およびウェスタンブロット密度計の定量的解析。(A) NC、IL-1β、およびIL-1β + OE-SNRNP70群の一次軟骨細胞におけるスクラッチ創傷閉鎖の定量化。(B) ACAN、COL2A1、MMP13ウェスタンブロットバンドの密度計量的定量化。バンド強度はImageJを用いて定量化し、GAPDHに正規化しました。データはn=3個の独立した生物学的複製からの平均 ± SD として提示されます。*p < 0.05, **p < 0.01.このファイルをダウンロードするには、こちらをクリックしてください。
| 標的遺伝子 | 前方プライマー配列 | 前方プライマー配列 |
| ガプド | 5'-TCTCTGCTCCTCCCTCT-3' | 5'-ATCCGTTCACACCACCCTTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGGTGTGTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCCC-3' | 5'-GGCATGACTCTCACAATGCG-3' |
表1:標的遺伝子のプライマー。qRT-PCRで使用されるGAPDH、SNRNP70、IL6、MMP13の順位および逆プライマー配列が5′>3′の方向で示されています。GAPDHは内部統制機関でした。
| スタディID | プラットフォーム | NC(n) | OA(名前) | 組織 |
| GSE114007 | GPL11154、GPL18573 | 18 | 20 | 軟骨 |
| GSE117999 | GPL20844 | 10 | 10 | 軟骨 |
| GSE129147 | GPL15207 | 9 | 10 | 軟骨 |
| GSE169077 | GPL96 | 5 | 6 | 軟骨 |
| GSE12021 | GPL96 | 13 | 20 | シノビウム |
| GSE55457 | GPL96 | 10 | 10 | シノビウム |
| GSE89408 | GPL11154 | 28 | 22 | シノビウム |
| GSE82107 | GPL570 | 7 | 10 | シノビウム |
| GSE19060 | GPL570 | 3 | 5 | 半月板 |
| GSE98918 | GPL20844 | 12 | 12 | 半月板 |
| GSE51588 | GPL13497 | 10 | 40 | 軟骨下骨 |
表2:本研究のデータセットはGEOデータベースから取得しています。 対象基準を満たす11の公開GEOデータセットの要約。各データセットには、accession ID、プラットフォーム、正常コントロール(NC)および変形性関節症(OA)サンプル数、組織タイプが提供されています。n = サンプル数。
ディスカッション
本研究は、SNRNP70が多面的な関節疾患であるOAの病因において保護遺伝子として機能する可能性を示唆しています。OAは世界的に重大な医療課題をもたらしています。本研究はOAにおけるSNRNP70の役割を初めて報告したものです。本研究では、OA組織におけるSNRNP70発現の有意なダウンレギュレーションが示され、GEOデータの解析により示されました(全体SMD = -1.07、95%信頼区間:-1.34、-0.80;図2)。重要なことに、この発見は後にIL-1β処理軟骨細胞で検証されました。さらに、本研究ではIL-1β治療軟骨細胞の炎症反応におけるSNRNP70の役割も探りました。OAに関連する保護遺伝子として、SNRNP70 IL-1およびMMP13の発現を抑制することでOAの進行を妨げる能力を示しました。これまでのところ、OA組織とNC組織間でSNRNP70発現レベルの明確な差異が報告された初の実験研究であり、OAの発症機序におけるSNRNP70の役割の可能性を示唆しています。この興味深い観察は、OAにおけるSNRNP70の診断的含意について考えさせられます。
複数のRNA-seqデータセットと配列を取り入れたメタアナリシスでは、SNRNP70の診断的関連性の証拠が得られました。SMDが-1.07であることは、OA組織におけるSNRNP70の一貫したダウンレギュレーションを示し、診断候補としての有用性を示唆しました。ROC曲線解析はこの潜在能力をさらに強調し、AUCは0.92で堅牢な識別力を示しました。さらに、感度と特異度の値を組み合わせた結果、SNRNP70がより早期かつ正確なOA診断を可能にする可能性が示唆されました。診断の約束を超えて、SNRNP70はOA管理の文脈で注目される候補であり続けています。OAの病因は、機械的過負荷、加齢、遺伝的素因、炎症を含む多因子的な過程である31,32。これらの要因の中で、炎症はOA進行の主要な要因としてますます認識されています33,34。軟骨の劣化、滑膜炎症、関節の恒常性の変化など、一連の出来事を引き起こします。
本研究は、スプリセソーム成分としての役割を動機としたSNRNP70の抗炎症効果を探りました。35,36。in vitroモデルを用いて、軟骨細胞を組換えラットIL-1βで処理し、OA関節の炎症性微小環境を模倣しました。これらの発見は、SNRNP70がIL-1β刺激軟骨細胞の炎症調節に関与している可能性を示唆しています。IFアッセイはSNRNP70の抗炎症特性をさらに支持しました。IL-1β処理軟骨細胞は炎症性タンパク質の発現が増加し、OE-SNによって弱められました。SNRNP70による炎症性タンパク質発現の調節は、OAの病因に関連する炎症カスケードとの潜在的な関連性を示しています。
本研究はOAにおけるSNRNP70の診断および治療的可能性に関する観察的証拠を提供しますが、その効果の正確なメカニズムは依然として興味深いテーマです。SNRNP70はRNAスプライシングに関与する複合体であるスプリセオソームの重要な成分であり、遺伝子発現調節の基本的なプロセスです。RNAスプライシングは、mRNA分子の非コード領域(イントロン)を除去し、コード領域(エクソン)を結合することで遺伝子発現において重要な役割を果たし、最終的にプロテオーム38、39、40を形成します。RNAスプライシングにおけるSNRNP70の関与が、OAの病因に関連する遺伝子の発現に影響を与える可能性は十分にあります。OA影響組織におけるSNRNP70によって調節される特定のRNA標的およびスプライシングイベントについては、まだ解明されていません。これらのメカニズムを理解することで、OAの分子基盤や候補標的に関する貴重な洞察が得られる可能性があります。さらに、今後の研究では、OAの病因に関与する他の分子とのSNRNP70相互作用を探る必要があります。炎症、軟骨の劣化、関節組織の再構築に関与するシグナル伝達経路とのクロストークを調査することで、その多面的な影響をより包括的に理解できる可能性があります。
この研究には考慮に値するいくつかの限界があります。メタアナリシスでは多くのデータセットが組み込まれましたが、研究デザイン、患者人口統計、データ処理のばらつきにより異質性が生じる可能性があります。さらに、含まれるデータセットは組織起源(例:軟骨 対 滑膜)や処理プラットフォームによって異なり、これが研究間での異質性(I2 = 73.3%)の一因と考えられます。さらに、この統合解析は公開されているヒトデータセットに基づいており、機能実験では新生児ラットから分離された軟骨細胞が使用されました。この種間差異は、in vitro所見をヒトOAの病態生理に直接外推できる範囲を制限しています。もう一つの注意点は、急性IL-1β刺激モデルに依存していることで、これは初期の炎症反応のみを捉え、ヒトにおけるOAの慢性的、進行性、多因子性の性質を完全に再現できていないことです。さらに、機能実験は機能増幅アプローチ(SNRNP70 過剰発現)に限定されていました。機能喪失実験(例:ノックダウン SNRNP70 )は実施されず、これは本研究の限界を示しています。最後に、相関解析は局所癒着経路における SNRNP70 を示唆していますが、FAKスプライシングイベントは直接調査されず、 SNRNP70 下流で局所癒着シグナル伝達が変化するという実験的証拠も示されていません。したがって、これらの発見の堅牢性を強化するためには、より大規模な患者コホートや動物モデルでの検証が必要とされています。さらに、 in vitro 実験では細胞培養モデルが用いられており、OA関節の複雑な in vivo 微小環境を完全に再現できない可能性があります。今後の研究では、より生理学的に関連性の高い文脈で SNRNP70の治療可能性を評価するために、OAの動物モデルでの効果を探ることが期待されます。
開示事項
著者たちには利益相反はありません。
謝辞
この研究は中国広西重点研究(貴科AB22035014)、広西医科大学第一附属病院特色イノベーションチーム特別基金(YYZS2022003)、および2026年海南省衛生科学技術イノベーション共同プロジェクト(WSJK2026QN087)によって資金提供されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | Primary antibody, dilution 1:1000 |
| Anti-collagen type II alpha 1 (COL2A1) antibody | Abcam | ab34712 | Primary antibody, dilution 1:1000 |
| Anti-IL6 antibody | Proteintech | 21865-1-AP | Antibiotics for cell culture |
| Anti-MMP13 antibody | Proteintech | 18165-1-AP | Primary antibody, dilution 1:1000 |
| BCA protein assay kit | Thermo Fisher Scientific | 23225 | Total protein concentration determination |
| CFX96 Real-Time PCR Detection System | Bio-Rad | 1855195 | Real-time PCR detection system |
| ChemiDoc XRS+ imaging system | Bio-Rad | 1708265 | Chemiluminescence imaging system |
| Collagenase type II | Sigma-Aldrich | C6885 | Cartilage tissue digestion, 2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | Nuclear counterstain |
| Dulbecco’s Modified Eagle Medium/F12 | Gibco | 11320033 | Basal cell culture medium |
| ECL reagent | Thermo Fisher Scientific | 34580 | Enhanced chemiluminescence reagent |
| Fetal bovine serum | Gibco | 10082147 | 10% concentration as culture supplement |
| Fluorescent microscope | Olympus | BX53 | Immunofluorescence imaging (20x magnification) |
| GEO database | NCBI | N/A | Public RNA-seq and microarray datasets |
| GraphPad Prism 8.0 | GraphPad | N/A | ROC curve analysis |
| HRP-conjugated secondary antibodies | Santa Cruz Biotechnology | sc-516102 | Secondary antibody |
| ImageJ software | NIH | N/A | Densitometric analysis software |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | Transfection reagent |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | RNA purity and concentration measurement (A260/280 ratio) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | Overexpression plasmid |
| Penicillin | Thermo Fisher Scientific | 15140122 | Antibiotic for cell culture |
| Primer-BLAST | NCBI | N/A | Gene-specific primer design |
| Primers (synthesized) | Sangon Biotech | N/A | Commercial synthesis of PCR primers |
| protease and phosphatase inhibitor cocktails | Roche | 4693159001 | Cocktail of protease and phosphatase inhibitors |
| PVDF membrane | Millipore | IPVH00010 | Protein transfer membrane |
| ReverTra Ace qPCR RT Kit | TOYOBO | FSQ-101 | First-strand cDNA synthesis |
| RIPA buffer | Beyotime | P0013B | Cell lysis buffer with protease and phosphatase inhibitors |
| Recombinant rat interleukin-1β | PeproTech | 400-01B | Induce inflammatory response in chondrocytes |
| Sangerbox platform | http://vip.sangerbox.com/ | N/A | ROC curve analysis |
| Simple Western Automated Western Blot System | ProteinSimple Jess | Jess (model 004-600) | Automated protein expression detection system |
| Stata 14.0 | Stata | N/A | Meta-analysis |
| Streptomycin | Thermo Fisher Scientific | Antibiotic for cell culture | |
| SYBR® Premix Ex Taq™ Kit | Takara | QPK-201 | Real-time quantitative PCR |
| The RNAfast200 kit | Fastagen Biotech | 220010-100 | Total RNA extraction from chondrocytes |
| Trypsin-EDTA | Gibco | 25200072 | Cell detachment, 0.25% trypsin-EDTA |
参考文献
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).