本プロトコルは、物理に基づく神経シミュレーションを用いて神経療法の電気生理学的バイオマーカーを解釈し、神経回路への影響を明らかにし、神経治療開発に基づいたメカニズム的アプローチを提供します。
この記事について
サマリー
要約
脳波計(EEG)および電気生理学的手法は、中枢神経系障害のミリ秒分解能バイオマーカーを提供し、治療関連の効果を評価するために広く用いられています。しかし、これらのバイオマーカーを生成する神経機構の理解が限られているため、これらの信号に基づく診断や治療法の開発は妨げられています。ヒト新皮質ニューロソルバー(HNN)は、局所的なEEGバイオマーカーを多スケール神経発生装置に結びつけるオープンソースの生物物理学モデリングソフトウェアです。本プロトコルは、HNNを用いて神経治療誘発性脳波バイオマーカーの神経機構を検証し、モデルパラメータを最適化してシミュレーション電流源波形と経験的電流源波形の適合を実現する仮説駆動型ワークフローを示します。対応するマルチスケールの細胞レベルおよび回路レベルの活動を可視化・定量化することで、追跡実証研究におけるモデル予測の検証ターゲットとなります。聴覚誘発反応(P1、N1、P2)の初期事象関連潜在的成分の神経メカニズムを調べる方法や、神経療法による神経回路活動の変化を評価する例が示されています。このプロトコルにより、EEGバイオマーカーと基礎となる神経回路機構を結びつける検証可能な予測を生成するシミュレーション実験の設計が可能になります。同様のワークフローは、疾患メカニズムやその他の治療的介入の研究にも適用可能です。
概要
中枢神経系(CNS)の治療開発は独自の課題に直面しており、承認率が他の疾患分野よりも低いため、特に脳の動態に対する治療関連の影響を明らかにできる革新的な方法論的アプローチ1の必要性が浮き彫りになっています。神経活動に対する治療効果を研究する確立されたアプローチは脳波計(EEG)2,3です。EEGは生体内回路レベルの脳動態の特徴を持ち、ネーム類モデルからヒト試験への強い翻訳可能性を持ちます。神経回路が4、5、6、7、8種間で相同性を示すためです。製薬開発において、EEGは動物試験とヒト試験間の翻訳指標の提供、薬剤安全性の評価、化合物選択の導き、用量反応関係の情報提供、初期臨床段階でのメカニズム証明の評価、臨床試験の階層化およびコホート強化の支援など、複数の役割を果たすことができます。.これらの利点にもかかわらず、EEG信号の解釈は依然として大きな課題であり、特に観察された変化を基礎的な神経機構と結びつけようとする際には大きな課題となっています。
CNS創薬で使われる堅牢なEEGバイオマーカーの一つがイベント関連電位(ERP)です。ERPは時間制限された感覚誘発脳活動を反映し、うつ病15,16、統合失調症17,18、自閉症スペクトラム障害19,20、アルツハイマー病21などの神経発達障害や神経精神疾患の研究に広く用いられています。ERPはまた、治療効果や脳回路への投与範囲を評価するためにも用いられます。22、23、24、25。ここで健康的な反応への正常化が治療効果を示す場合があります。26。しかし、ERPや他の脳波バイオマーカー(例:脳の振動)の重要な制約は、疾患状態や薬物効果との関連が主に相関関係である点です。統計解析はバイオマーカーとアウトカムの関係を特定することはできますが、特定の神経回路要素がどのようにこれらの信号を生成するかのメカニズム的な洞察は提供しません。したがって、特定の細胞型や回路機構の因果関係は依然として明確ではありません。EEG信号の細胞および回路起源を理解することで、観察されたシグネチャーを基礎的な生理学と結びつけることで、その価値を大幅に高めることができるでしょう。本論文では、EEG「バイオマーカー」という用語は、治療介入後のEEG信号の測定可能な変化を指し、FDA–NIH BESTのバイオマーカー、エンドポイント、その他のツール(FDA–NIH BEST)フレームワーク定義29に沿ったものであり、特定の臨床用途に対する正式な資格を意味しません。
侵襲的な電気生理学的記録は細胞レベルや回路レベルの詳細な洞察を提供しますが、これらの手法は主に動物モデルに限定されており、人間の研究に直接応用するのは困難です。逆モデリング技術などの代替手法はEEG信号から発生源の活動を推定できますが、基礎となる神経回路の明示的なメカニズム表現が不足していることが多いです。生物物理シミュレーションは、神経回路が測定可能なEEG信号を生成する物理過程をモデル化することで補完的な枠組みを提供します。31,32,33,34(図1)。純粋に統計的バイオマーカー解析や機構的基盤なしの逆手法と比較して、生物物理学モデリングは神経回路の動態と観測された電気生理学的信号を結びつける仮説を直接検証することを可能にします。
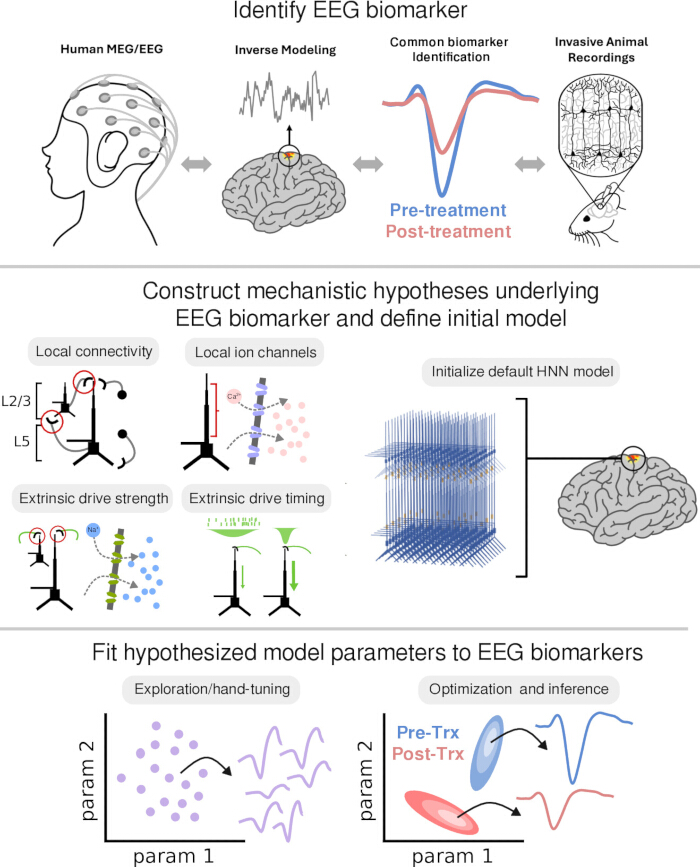
図1。薬理学的脳波(EEG)バイオマーカーの基礎となるメカニズム的仮説を開発・検証するための生物物理学モデリング。 (A) 疾患間で脳信号の違いに基づくEEGバイオマーカーの特定。例として、聴覚イベント関連電位(ERP)が、処理後の状態(赤)で前処理条件(青)に比べて減少します。(B) 生物物理学的モデリングは、EEGバイオマーカーが薬理学的介入によってどのように生成・変化するかを説明する機構的仮説の検証を可能にします。薬物による神経活動の変化に関する仮説が立てられ、対応するモデルパラメータが特定されます。(C) デフォルトのヒト新皮質ニューロソルバー(HNN)モデルを出発点として使用し、モデルパラメータを手動で修正したり、自動最適化および推論アルゴリズムを適用したりします。処置前と処理後の条件間のパラメータ値の違いは、モデルベースの予測に対応します。 この図の拡大版はこちらをクリックしてご覧ください。
このプロトコルは、オープンソースの生物物理学モデリングフレームワークであるヒト・ネオコルティカル・ニューロソルバー(HNN)を用いて、治療関連効果のERPバイオマーカーをその基盤となる細胞レベルおよび回路レベルのメカニズムと結びつけます(図2)。HNNは、整列した錐体型ニューロン樹状突起における同期した細胞内電流の流れが、EEG信号6,35,36,37の基盤となる一次電流双極子を生成するという原理に基づいています。このモデルは、興奮性ピラミッドニューロンと抑制性介在ニューロンからなる標準的な新皮質柱を表し、皮質層2/3および5に分布しています。デフォルトのHNNネットワークは、各層に100個の錐体ニューロンと33個の抑制ニューロンを含み、縮小されつつ生物学的に根拠のある皮質回路の表現を形成しています。錐体型ニューロンは多区画樹状構造でモデル化され、主要な形態的特徴を捉えられています。一方、抑制性ニューロンは細胞外電流への寄与が限定的であるため、単一区画として表されます33。シナプス相互作用には、興奮性α-アミノ-3-ヒドロキシ-5-メチル-4-イソキサゾルプロピオン酸(AMPA)およびN-メチル-D-アスパラギン酸(NMDA)受容体、および抑制性ガンマ-アミノ酪酸タイプAおよびガンマ-アミノ酪酸タイプB(GABAB)受容体が含まれ、すべてのニューロンはホジキン–ハクスリー動態によって支配される能動的イオン伝導体を取り込みます。
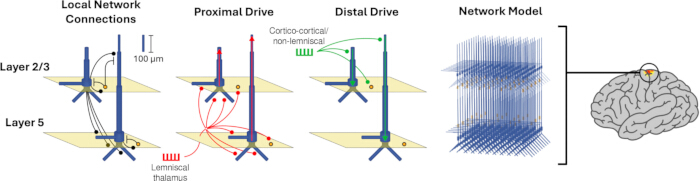
図2。HNNモデルの概略図。 興奮性ニューロンと抑制性ニューロン間の局所ネットワーク接続や、「近位ドライブ」および「遠位ドライブ」と呼ばれる外因性入力経路を含むHNNモデルの主要構成要素の可視化。 この図の拡大版はこちらをクリックしてご覧ください。
HNNにおける神経活動は、フィードバックフォワードおよびフィードバック経路を表す外生的入力によって駆動されます。フィードフォワードの「近位」ドライブは近位樹状突起を標的とするレムニスカル視床からの入力に対応し、フィードバック「遠位」ドライブは遠位樹状突起を標的とする皮質皮質および非レムニスカル視床の入力を表します。これらの入力は活動電位の列としてモデル化され、シナプス電流を誘発し、錐体型ニューロン樹状突起に沿った細胞内電流の流れを生成します。得られる集団レベルの電流双極子はナノアンペアメートル単位で表され、向き制約に縛られたソース局所化された脳波(EEG)や磁気脳波(MEG)データと直接比較することが可能です。HNNのデフォルトパラメータ化は体性感覚皮質研究39,40,41の実証データに基づいており、聴覚42,43,44、視覚45、前頭皮質信号46に成功裏に適用されており、モデル由来の予測はその後の実験研究7,41,47で検証されています。
HNNシミュレーションは、標的検証、薬剤作用機序の比較、用量最適化、フォローアップ実験のための仮説生成など、医薬品研究開発の複数の段階で応用可能です。これにより、ユーザーはメカニスティックモデリングを実践的な研究ワークフローに組み込み、神経療法が神経回路に与える影響についての仮説の生成と検証を支援します。本プロトコルでは、聴覚ERPの初期P1、N1、P2要素に焦点を当てます。これらの特徴はよく特徴付けられており、仮説駆動型モデリングの制約を提供するため51です。薬物による変化に焦点を当てていますが、このアプローチは脳刺激や行動トレーニングなど他の神経療法介入や中枢神経系障害の研究にも拡張可能です。
HNNの使用は、モデル構造やパラメータを既存のデータによって最初に制約し、その後経験的観察と比較して精緻化する反復的モデリングフレームワークに従っています。大規模な神経モデルは多くのパラメータを含みますが、特定の仮説を検証するために調整されるのは「関心パラメータ」と呼ばれる部分集合のみです。これらのパラメータは任意に選ばれるものではありません。むしろ、神経治療薬の作用機序を記述する既存の実験的証拠や文献に基づいて選定されます。このプロトコルでは、外因性入力のタイミングや強度、局所的な抑制性結合性、樹状イオンチャネルの伝導度に関連するパラメータが、神経療法によって影響を受ける可能性のある生物学的に解釈可能な変数の例として選ばれています。
デフォルトモデルから始め、ユーザーは手動調整と自動最適化の組み合わせを用いて、事前処理ERPデータにパラメータを当てはめます。手動調整により、グローバルスケーリングや入力パラメータを調整して経験的な波形を近似し、パラメータ変化がモデル出力にどのように影響するか直感的に理解できます。共分散行列適応進化戦略(CMA-ES)、ベイズ最適化、線形近似による制約付き最適化などの自動化手法を用いてパラメータ値を精緻化し、適合度を向上させます。治療前モデルが確立されると、治療後の変化を考慮した仮説的なパラメータを調整し、治療後のERPデータに適合させます。
パラメータ推定の不確実性に対処するために、シミュレーションベース推論(SBI)を用いて観測データを再現するパラメータ値の分布を推定します。SBIは複数のパラメータの組み合わせが類似した出力を生み出す可能性を考慮し、パラメータの不確実性の定量化を可能にします。治療前および治療後のパラメータ分布の違いは、オーバーラップ指数(OVL)54,55を用いて評価でき、作用機序の潜在的な洞察を提供します。
このアプローチの大きな利点は、モデルを特定のデータモダリティに適合させることで、細胞スパイキング、層ごとの局所場電位(LFP)、電流源密度(CSD)など、複数の神経活動スケールにわたる予測を生成できることです。これらの予測は、補完的な手法を用いた実験的検証の対象となります。予測が実証データで裏付けられていない場合、新たな制約を取り入れてモデルを更新し、仮説生成、検証、改良の反復サイクルを形成します(図3)。
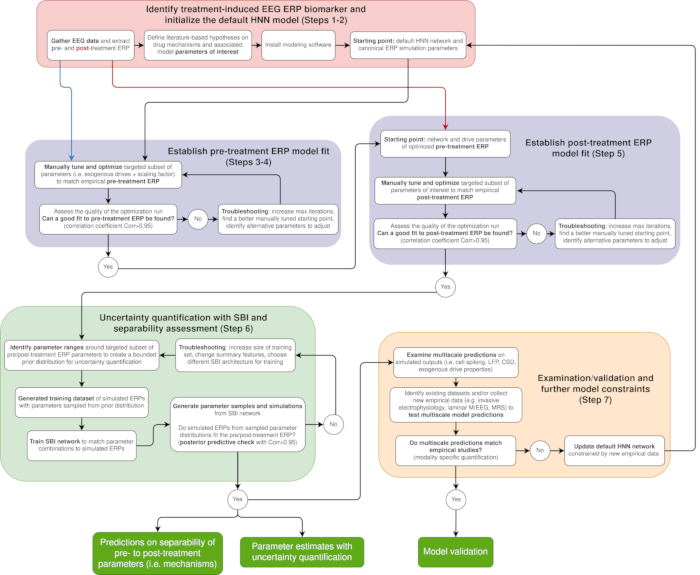
図3。HNNを用いたERPバイオマーカー予測の開発と検証のための反復ワークフロー。 ワークフローはプロトコルのステップに対応しています。EEGバイオマーカーの特定およびデフォルトのHNNモデルの初期化は赤色で示されています(ステップ1–2)。手動の調整と最適化を用いて、モデルパラメータを前処理および処理後のERP信号に適合させます(紫色;ステップ3–5)。シミュレーションベース推論(SBI)を用いた不確実性定量化は緑色で示されています(ステップ6)。モデルの予測は実験データと比較され、モデルの検証またはさらなる制約が行われます(オレンジ;ステップ7)。 この図の拡大版はこちらをクリックしてご覧ください。
このプロトコルは、誘発反応パラダイム中に収集される、向き制約がついたソース局所化されたEEGまたはMEGデータでの使用を想定して設計されています。標準的な前処理およびソースローカライゼーション手法(例:最小ノルム推定[MNE]-Python56)を用いて必要な入力データを生成できます。ナノアンペアメートルで表されるソースレベル信号は、HNN出力と直接比較可能です。高速な感覚応答においては、ソースレベルとセンサーレベルの信号が非常に類似していることが多いため、ソース局所化モデリングからの洞察がセンサーレベルのEEGデータの解釈に役立つ57,58。
プロトコル
人間データを含むすべての手続きは、関連する機関のガイドラインおよび規則に従って実施されました。本研究で使用されたデータセットは、既に発表された研究43から取得され、追加の倫理的承認は必要ありませんでした。このプロトコルには有害物質や手順は一切含まれていません。
1. 治療誘発性EEGイベントに関連する潜在バイオマーカーを特定し、モデル仮説を定義する
- 関心対象者(例:神経療法の文脈における治療前および治療後)から実験的に記録された脳波信号を含むデータセットを収集または特定します。感覚刺激の提示時のEEG測定を記録し、感覚刺激のタイムスタンプをEEGデータと同時に記録することで、試行への分割を可能にします。EEGデータが前処理ソフトウェアと互換性のある形式(例:.fif、.set、.edf)で保存されていることを確認してください。
注:関連するコードリポジトリ(https://github.com/ntolley/hnn_jove)は、代表的な結果を生成するために使用されたデータファイルを提供します。リポジトリには、Kohlら(2022)による前処理された聴覚MEG ERPが含まれており、これが前処理ERPとして機能します(元のデータは:https://github.com/kohl-carmen/HNN-AEF で利用可能)。仮想的な処理後ERPは、ガウステーパーウィンドウを用いて前処理波形をスケーリングすることで生成されます。対応するデータファイルはリポジトリ内のdata/pre-treatment.txtおよびdata/post-treatment.txtに位置しています。MEGとEEG信号は類似した基礎神経発生器を反映するため、このプロトコルは両方のモダリティに適用可能です。 - 治療関連効果を区別するために仮説とされる候補ERPバイオマーカーの特徴群(例:ERPのピークタイミングや大きさ)を特定します。
注:この例プロトコルでは、ピークマグニチュードを対象とするバイオマーカーとして用いています。 - EEGデータを前処理し、関心のあるバイオマーカーの特徴を抽出します。
注:MNE-Python56、EEGLAB59、FieldTrip60など、いくつかのソフトウェアパッケージが前処理およびERP解析をサポートしています。ERPシグナルのモデリングにはソースの位置付けが推奨されますが、必須ではありません。ワークフローの例は https://jonescompneurolab.github.io/hnn-core/stable/auto_examples/workflows/plot_simulate_somato.html でご覧いただけます。いくつかの先行研究では、EEG信号の前処理と解析について詳細に記述されています。読者の皆様は、より詳しい背景情報として56,61ページをぜひご覧ください。- すべてのチャネルからのセンサーレベルの信号を用いてソースの位置特定を行うか、解析対象のEEGセンサーを選択します。モデル出力と直接比較するためにソース・ローカライズドデータを用いること;センサーレベルのデータはユニット対応を持ちません。
注意:以下に説明する1対1の対応はセンサーレベルの信号には適用されません。 - セグメントは感覚刺激のタイムスタンプを使ってEEGデータを試験に記録しました。
- 治療前および治療後の条件について、試験平均ERP波形を計算します。
- 試験平均波形から候補ERPバイオマーカーを抽出します(例:N1ピークの強度を計算)。抽出前にピーク検出基準(例:タイムウィンドウや極性)を定義します。
- すべてのチャネルからのセンサーレベルの信号を用いてソースの位置特定を行うか、解析対象のEEGセンサーを選択します。モデル出力と直接比較するためにソース・ローカライズドデータを用いること;センサーレベルのデータはユニット対応を持ちません。
- ERPの特徴が疾患間で有意に異なるかどうか(例:治療前と治療後)を統計的に判断します。研究デザインに基づく適切な統計検定を選択し、必要に応じて複数比較補正(例:反復測定ANOVAとTukey HSDの事後検査による複数比較)を適用します。
注:統計検定のコード例は https://mne.tools/stable/auto_tutorials/stats-sensor-space/20_erp_stats.html でご覧いただけます。 - 出力は、脳波バイオマーカーの特徴(例:N1の大きさの違い)を統計的に有意に区別するものです。出力は次のステップで使用するために保存してください。
- 薬物メカニズムおよび関連するモデルパラメータに関する文献に基づく仮説を定義します。神経治療薬によって変化した生物物理的特性を特定し、特徴の違いを説明できる可能性のある既存の文献や実験データを参照してください。
- 生物物理的神経モデル(HNN)のどのパラメータが、ステップ1.6で特定された生物学的特性と直接的または間接的に関連しているかを特定します。これらを関心パラメータとして定義します。既存の文献とHNNの文書を用いて生物学的メカニズムをマッピングし、パラメータをモデル化します。
- 生物物理的特性に対応する特定されたモデルパラメータのセットを出力し、そのEEGの特徴差異を生み出します。すべてのパラメータ値の出発点として、ステップ2で初期化されたデフォルトのHNNモデルを使用し、次のステップのために出力を保存します。
2. デフォルトのHNNモデルを初期化する:モデリングソフトウェアをインストールし、プロジェクトフォルダを設定する
注:本研究で使用されるソフトウェアのバージョンは、材料表および最小システム要件に記載されています。Linux、macOS、Windows向けに複数のインストールオプション(pip、conda、ソースインストール)が利用可能です。
- Anaconda Pythonの動作するバージョンをダウンロードしてインストールしてください。必要なソフトウェアパッケージをインストールするための新しいPython環境を作成・有効化します。
- https://jonescompneurolab.github.io/textbook/content/01_getting_started/installation.html で利用可能なオペレーティングシステム固有のインストール手順を使って、生物物理神経モデリング用のHNNコアソフトウェアをインストールしてください。
注:本研究で使用されるソフトウェア依存関係を効率的にインストールするために、関連するコードリポジトリ(https://github.com/ntolley/hnn_jove)はpixi(https://pixi.prefix.dev/latest/)を使用しています。リポジトリのREADMEファイルの指示に従ってpixiをインストールし、コードリポジトリのローカル版をセットアップしてください。 - インストールされている生物物理神経モデリングソフトウェアのバージョンが0.6.0以上であるかは、ターミナルに次のコマンドを入力して確認します:pip show hnn_core
- Python環境が有効化され、インストールが正常に完了していることを確認しましょう。ターミナルでhnn-guiを入力してEnterキーを押してグラフィカルユーザーインターフェース(GUI)を起動します。
- このプロトコルで生成されたすべてのデータファイルを保存するために、コンピュータファイルシステム内に新しいプロジェクトフォルダを作成します。アクセス可能なディレクトリ(例:ホームディレクトリや作業プロジェクトディレクトリ)にフォルダを作成します。
3. 手動調整による事前処理モデル適合の確立
- まずは標準的なHNN ERPシミュレーションとそのデフォルトパラメータから始めましょう。スケーリングファクターとエクソジェナスドライブパラメータを手動で調整し、前処理ERP(例:事前処理ERP)に適合させます。
注:HNN GUIは体性感覚ERP40に適合するモデルパラメータを自動的に読み込みます。これは多くの研究により、良好な「標準的ERP」の出発点であることが示されています。このチュートリアルは、この出発点からスケーリングファクターと外生入力パラメータの変更に焦点を当てています。 - ステップ1の前処理経験的ERP波形をHNN GUI(図4A–4F)に読み込みます。
- GUIウィンドウの左下にあるメニューバーの「データロード」ボタンをクリックしてください(図4D)。
注:ERPピークの命名法は文献ごとに大きく異なります。 図4F のP1/N1/P2ラベルはあくまで図示目的であり、他の研究で用いられる命名規則とは一致しない場合があります。 - ファイルブラウザのウィンドウで、モデリング対象のERP波形(すなわちターゲット波形)を含む.csvまたは.txtファイルを選択します。ファイルはカンマ区切りで区切られ、2列の形式で書かれていることを確認してください。1列目は時間(ms)、2列目はソース局所化経験的双極子波形(nAm)です。最初の行はヘッダーとして扱われ、データ値を含まないはずです。情報用のカラムラベル(例:「Time (ms)」や「Dipole (nAm)」)はオプションで含めることができます。
注意:関連するコードリポジトリでは、経験的データファイルの名前は pre-treatment.txt です。 - 図パネル(図4F)に自動的にプロットされる波形を確認してください。
- GUIウィンドウの左下にあるメニューバーの「データロード」ボタンをクリックしてください(図4D)。
- 標準的なERPのデフォルトシミュレーションを実行します
- シミュレーションパラメータパネル(図4B)でtstop、dt、トライアル、バックエンド、コアのパラメータ値を希望の値に設定します。tstopはシミュレーション長を制御し、dtは積分タイムステップを制御し、Trialsは同じモデルパラメータ値で繰り返しシミュレーションを実行する回数を制御します。バックエンドをシリアル(ジョブリブ)または並列(MPI)に選択し、コンピュータコアの数を指定します。
注:試験間のばらつきは、以下のステップ3.5で説明する外因性誘発駆動タイミングの標準偏差によるものです。 - 実行ボタン(図4D)をクリックすると、標準的なERPのデフォルトシミュレーションを開始します。
- シミュレーションパラメータパネル(図4B)でtstop、dt、トライアル、バックエンド、コアのパラメータ値を希望の値に設定します。tstopはシミュレーション長を制御し、dtは積分タイムステップを制御し、Trialsは同じモデルパラメータ値で繰り返しシミュレーションを実行する回数を制御します。バックエンドをシリアル(ジョブリブ)または並列(MPI)に選択し、コンピュータコアの数を指定します。
- シミュレートされたERPと経験的ERPを比較するプロットを作成します
- GUIウィンドウの左上にある 「ビジュアライゼーション 」タブをクリックしてください(図4A)。
- 「 データ」 とラベル付けされたドロップダウンメニューをクリックして比較(表示されません)し、Step 3.2から読み込まれたターゲット波形を選択してください。
- 「 クリア軸 」をクリックしてプロットをリセットしてください。
- 「 プロットを追加 」をクリックすると、初期ERP波形(青)と目標波形(オレンジ)を重ね、両波形間の自動計算相関係数(Corr)と平均二乗根誤差(RMSE)を示すテキストを添えた新しいプロットを生成します(図4F)。
注:HNN-GUIは、CorrとRMSEの2つの適合度測定値を計算するオプションを提供します。これらの指標は手動の調整や最適化(ステップ4)に使用されます。
- スケーリングファクターを修正する
- 手動で調整して、シミュレーションされた双極子波形と経験的な双極子波形の大きさにほぼ一致するように調整します。シミュレーションタブ(図4A)でデフォルトのダイポールスケーリングパラメータ(図4C)を3000に設定します。
注:スケーリング係数は、EEG信号の生成の基礎となる推定ニューロン数の予測に対応します。デフォルト値の3000は、 図4Fのy軸に示されたnAmの大きさで誘発反応を生成するには、HNNモデルのサイズである200個のピラミッド型ニューロン×3000 = 600,000ニューロンが必要であることを示しています。
- 手動で調整して、シミュレーションされた双極子波形と経験的な双極子波形の大きさにほぼ一致するように調整します。シミュレーションタブ(図4A)でデフォルトのダイポールスケーリングパラメータ(図4C)を3000に設定します。
- 外生的ドライブのタイミングを修正する
- 外因性ドライブの平均偏差と標準偏差を手動で調整し、経験的に記録された処理前ERPピーク(すなわちP1/N1/P2)のタイミングにより近い適合を得る(図5A–5D)。
注:HNNで配布されたデフォルトの局所結合性と細胞パラメータは、健康な単一細胞およびネットワークレベルの活動パターンを再現するよう調整されました。局所ネットワークパラメータは調整可能ですが、事前に調整された局所HNN新皮質型モデルパラメータは最初は固定し、外因性ドライブのみ調整で信頼性の高い適合が得られるかを検証することが推奨されます。 - 経験的なERP波形(図4)と時間的にずれているシミュレートされたERPピークを特定します。
注意:この例は、デフォルトの標準ERPシミュレーションと同様に、経験的ERPの初期3ピークを前提としています。ピークを追加するには、追加の外付けドライブをシミュレートします。 - GUIウィンドウの左上にある 「外付けドライブ」 タブ(図4A および 図5A)をクリックしてください。
注:3つのあらかじめ定義された外生ドライブのパラメータが可視化されており、フィードフォワード近位ドライブ(evprox1)、フィードバック遠位ドライブ(evdist1)、再発フィードフォワード近接ドライブ(evprox2)を表し、デフォルトの標準的なERPシミュレーションを生成します(HNNモデルおよび外生ドライブ構造の詳細は 導入部 参照)。スパイクの時間とカウントを示すヒストグラムは 図4Eに示されています。 - 平均 時間 がずれたピークに最も近い外生性ドライブのドロップダウンをクリックしてください。
- 平均時間と標準発達時間のテキストボックス内の値を修正し、ターゲット波形のピークのタイミングと幅によりよく合わせてください(図5B–5D)。ピークタイムをシフトするには平均時間、ピーク幅を変えるために標準開発時間を調整してください。
注:平均時間および標準発達時間は、近位または遠位投影パターンで局所ネットワークを活性化する外因性スパイクの平均と分散を制御します( 図4Eのヒストグラム参照)。これらのパラメータはERPのピークタイミングや幅を完全に決定するものではありません。正確なタイミングと幅は、外生ドライブと内部ネットワーク活動の両方に依存します。- evprox1の外付けドライブの 平均時間を 60msに設定してください。
- evdist1の外付けドライブの 平均時間を 100msに設定してください。
- evprox2外付けドライブの 平均時間 は150msに設定してください。
- 外因性ドライブの平均偏差と標準偏差を手動で調整し、経験的に記録された処理前ERPピーク(すなわちP1/N1/P2)のタイミングにより近い適合を得る(図5A–5D)。
- 外生駆動の大きさを修正する
- 外因性ドライブのシナプス重み(シナプス後コンダクタンス)を手動で調整し、経験的に記録されたERPピーク(すなわちP1/N1/P2)の大きさにより近い適合を得ることができます(図6A および 図6B)。
- シミュレーションされたERPピークが経験的ERP波形と大きさでずれているものを特定します。
- GUIウィンドウの左上にある 「外付けドライブ」 タブをクリックしてください(図4A)。
- 平均 時間 がずれたピークに最も近い外生性ドライブのドロップダウンをクリックしてください。
- テキストボックス内の AMPA重み と NMDA重み の値を修正してシナプスコンダクタンスを調整してください。近位ドライブ強度をL5およびL2/3錐体ニューロンに増加させると、一般的により多くの正のピークが生じ、遠位ドライブの強度を高めると負のピークが増える傾向があります。
注:外生的駆動タイミングと同様に、ERPのピーク大きさは駆動強度によって完全に決定されるわけではありません。スパイキングダイナミクスは直感的でない効果を生み出すことがあります。テストは1桁の変化(例:AMPA L5_pyramidal 0.014から0.14)に変化し、反復的に改良します。 図6 はデフォルトのシミュレーションよりも小さい値×10に設定された値を示しています。- evdist1ドライブのAMPA重みをL5_pyramidal = 0.014243 および L2_pyramidal = 0.0000007 に設定します。
- evdist1ドライブのNMDA重みをL5_pyramidal = 0.0080074、L2_pyramidal = 0.0004317に設定します。
- evprox2ドライブのAMPA重みをL5_pyramidal = 0.0684013 および L2_pyramidal = 0.143884 に設定します。
注:代表的な結果を生成するために使用されたパラメータの完全なセットは、関連するコードリポジトリ(https://github.com/ntolley/hnn_jove;データ/opt_baseline_config_correlation_best.json参照)で入手可能です。ユーザーは、この設定ファイルと提供されたデータファイル(data/pre-treatment.txtおよびdata/post-treatment.txt)を読み込み、ノートブックやディレクトリ内の例のワークフローを参照して報告されたシミュレーションを再現することが推奨されています。
- 修正されたシミュレーションセットアップを保存してください。
- ステップ3.5–3.7の修正を完了した後、 シミュレーション タブ(図4A)をクリックし、 名前 のテキストボックス(図4B)に「pre-treatment_handtuned」を入力してください。
- 修正シミュレーションを実行する
- 修正されたパラメータセットをシミュレートするために 「実行 」ボタンをクリックしてください。
- 図パネル(図4F および 図7A–7D)で生成されたプロットを確認してください。対応する図のタブ(例:「図1」や「図2」)を使って過去のプロットにアクセスできます。
- 手動チューニングを反復する
- 相関係数を改善するために手動で反復調整を続けてください。
- ステップ3.4を繰り返して、シミュレーションをターゲット波形で再プロットし、相関係数を再計算します。
- 最終モデルの出力を保存してください。
注:シミュレーション出力を保存した後、プロトコルは一時停止可能です。保存した設定ファイルをソフトウェアに読み込んで再開してください。- 「 ネットワークを保存 」ボタンをクリックすると、最適にフィットしたパラメータセットを「pre-treatment_handtuned.json」という.jsonファイルとして保存できます。
- シミュレーション の保存 ボタンをクリックすると、「pre-treatment_handtuned.txt」という.txtファイルが保存されます。このファイルにはシミュレーションされた双極子波形が含まれています(図4D)。
- 両方のファイルをStep 2.5で作成したプロジェクトフォルダに移動してください。ドロップダウンメニューのファイル名がシミュレーション名と一致していることを確認してください。
注意:ファイルはGUIを実行するウェブブラウザのデフォルトのダウンロードディレクトリに保存されます。ファイルを手動で移動するか、ブラウザのダウンロードディレクトリを一時的に変更してください。
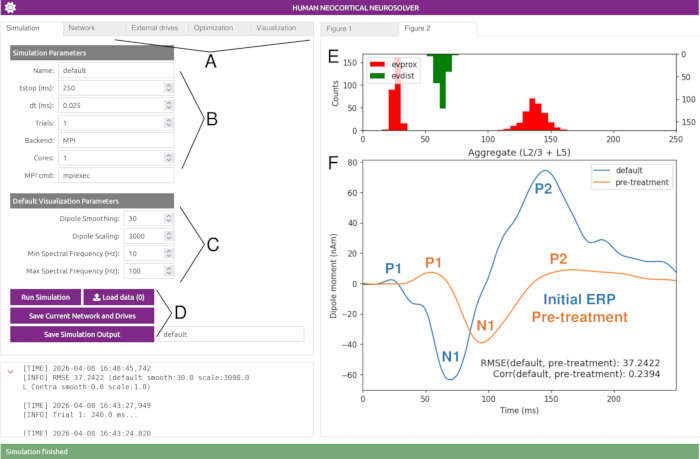
図4。標準的なHNNシミュレーションERP波形と経験的前処理ERPの比較。 (A) グラフィカルユーザーインターフェース(GUI)タブを通じてアクセス可能なパラメータカテゴリ。(B) シミュレーションの長さと試行回数を制御するシミュレーションパラメータ。(C) 波形表示を制御する可視化パラメータ。(D) データの読み込み、シミュレーションの実行、出力の保存のためのシミュレーションコントロールパネル。(E) 標準的なERPシミュレーションにおける外因性ドライブ入力の分布を示すスパイクヒストグラム。(F)標準的なERPシミュレーション(青)の双極子波形に、Kohlらによる経験的聴覚ERP(オレンジ)が重ねられています。43。初期シミュレーションはデータに適合せず、ピークのタイミングと大きさがずれています(Corr < 0.95)。経験的ERPを生成する実験パラダイムはKohlら43で説明されています。トーン(1kHz、50ms持続時間、10msのフェードイン/アウト)が左右の耳に交互に提示され、刺激間間隔は0.8〜1.2秒で、主観聴覚レベルより60dB高く設定されました。 この図の拡大版はこちらをクリックしてご覧ください。
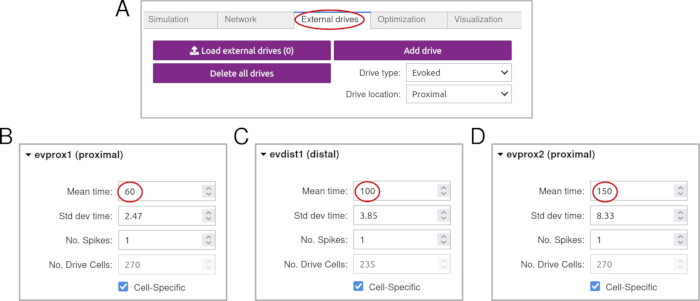
図5。ERPピークを整列させるために外生的駆動タイミングを修正すること。 (A) GUI内の「外部ドライブ」タブで、モデルへの呼び出し入力を設定するために使われます。(B–D)個々のエクソジェナスドライブの平均時間パラメータを調整し、シミュレーションされたERPピークを実証データに整合させる。具体的には、(B)近位ドライブEVPROX1が~60msに整列、(C)遠位ドライブEVDsT1が~100msに整列、(D)近位ドライブevprox2が~150msに整列しました。平均時間パラメータ(強調表示)を調整すると、シミュレートされたピークのタイミングがずれ、経験波形との対応が改善されます。これらの調整は、アライメントの改善とターゲットERPとの相関関係の増加に寄与します(図7B参照)。 この図の拡大版はこちらをクリックしてご覧ください。
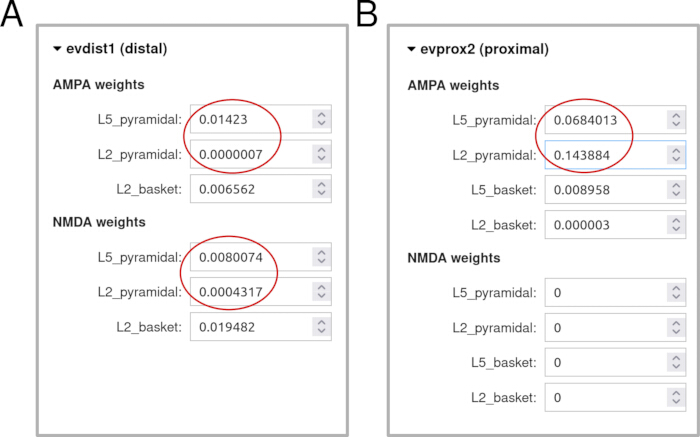
図6。ERPピークの強度を調整するための外生駆動強度の修正。 (A と B)α-アミノ-3-ヒドロキシ-5-メチル-4-イソキゾールプロピオン酸(AMPA)およびN-メチル-D-アスパラギン酸(NMDA)受容体のシナプス重量は、グラフィカルユーザーインターフェース(GUI)の「外部ドライブ」タブを通じて修正されます。(A) 遠位ドライブ(evdist1)のシナプス重みの調整、層2/3(L2/3)および層5(L5)を標的としたAMPAおよびNMDAの伝導度を含む。(B) 近位ドライブ(evprox2)のシナプス重みの調整、主に錐体ニューロンのAMPAコンダクタンスに影響を与える。この例では、シナプスの重みがデフォルト値に比べて10倍減少し、ERPピークの大きさが減少し、経験的波形との整合性が向上します(図7C参照)。 この図の拡大版はこちらをクリックしてご覧ください。
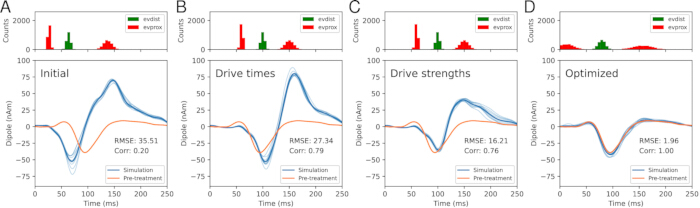
図7。手動で調整・最適化してモデルパラメータを適合させる。すべてのシミュレーション では5件の試行が示されており、平均的なERP(濃い青)と個別の試行(淡い青)が示されています。(A) 標準的なERPシミュレーション(青)に前処理ERP(オレンジ)を重ねて表示します。(B) 外生駆動タイミングの調整によりピークアライメントが向上します。(C) シナプスの重みが減少するとピークの大きさが減少します。(D) 自動最適化により経験波形(Corr = 1.0)に密接にフィットし、誘発駆動タイミングの変動性が増加します。 この図の拡大版はこちらをクリックしてご覧ください。
4. パラメータ最適化による事前処理モデル適合度の確立
注意:最適化のためのランダムシーディングの制御は現在GUIでは利用できません。再現可能な最適化実行にはPython APIを使いましょう。関連するコードリポジトリには、固定されたランダムシードを最適化関数に渡すことで設定できる例実装(コード/baseline_optimization.pyを参照)が含まれています(例:optim.fit(..., seed=123))。
注:この例はCMA-ES(SBIとは混同しないでください。どちらもモデルパラメータに適合する手法ですが、SBIの主な出力は分布)を用いて波形に近いフィットを生み出す単一の値を推定するためにターゲットパラメータを最適化する方法を示しています。波形を考慮できるパラメータ分布の推定例は 「結果 」セクションに示されています。前処理ERPでは、デフォルトのHNN新皮質モデルにおける細胞およびローカルネットワーク接続パラメータが固定されていると仮定し、外因性ドライブパラメータを最適化することから始めます。ステップ7で説明されたHNNによるマルチスケール予測は、この仮定の検証対象となります。モデル予測を制約するための新しい情報が得られるにつれて、HNNフレームワークは任意のパラメータセットの推定を可能にします。
- オープン最適化設定
- GUIの左上にある最適化タブをクリックしてください(図8A参照)。
- 最適化実行の設定、反復回数、ソルバー、目的関数などを設定します。
注意:デフォルトの最適化設定(目的関数=「dipole_corr」;ソルバー=「cma」)はERP波形に適しています。この目的関数は、シミュレーション波形と経験波形の相関係数を最大化します。多くのパラメータを最適化する場合は最大反復回数を増やします。相関係数はスケールフリーの測度です。したがって、「dipole_corr」を使用する場合は最適化後にスケーリングファクターを調整してください(ステップ4.7.1)。または「dipole_rmse」を使ってRMSEを最小化し、その場合はスケーリング係数が固定されたままです。 - 「Max iterations」のテキストボックスをクリックして100を入力してください。
- 最適化のためのパラメータを選択する
- 最適化される外部ドライブのドロップダウンメニューをクリックしてください(図8A および 図8B、赤い丸)。
- 「最適化される?」のチェックボックスをクリックして、最適化対象のドライブパラメータを選択します。(図8B)
- パラメータ制約を定義する
- 最適化者が探索するパラメータ値の範囲を、最小および最大テキストボックスに「制約(%)」のテキストボックスに入力して指定します(図8B)。
注:デフォルト値20%は、すでに相関係数が高いシミュレーション(Corr > 0.9)に適しています。例えば、平均時間65.53msに20%の範囲を適用すると、52.42〜78.64msの境界が得られます。初期適合が悪い場合は最小パーセンテージと最大パーセンテージを上げ、しかし、必要なシミュレーション数は大幅に増加する可能性があります。
- 最適化者が探索するパラメータ値の範囲を、最小および最大テキストボックスに「制約(%)」のテキストボックスに入力して指定します(図8B)。
- ラン最適化
- 最適化ルーチンを実行するには「最適化実行」ボタン(図8A)をクリックしてください。
- セーブ最適化結果
- 最適化履歴の保存ボタン(図8A)をクリックしてください。
- 保存ファイルをステップ2.5で作成したプロジェクトフォルダに移動します。
注意:最適化結果は保存・再利用可能です。この段階でプロトコルを一時停止し、保存した最適化履歴を読み込むことで再開できます。
- 最適化品質の評価
- 最適化ランの質を評価してください。
注:相関係数を適合度の指標として用いる場合、Corr > 0.95の停止基準が推奨されます。これは一般的に、ターゲットERPの顕著なピークと谷を再現するシミュレーション波形を反映するためです。早期停止は現在サポートされていませんが、開発中です。停止基準が満たされない場合、損失が10回ごとに減少し続ける場合は、反復回数を増やします。
- 最適化ランの質を評価してください。
- 最適化結果に基づいて次のステップを決定します
- 前処理ERPに良好な適合(すなわちCorr > 0.95)が得られた場合、スケーリング係数を再調整してRMSEを最小化し、ステップ5に進みます。
注:ステップ4.1で説明した通り、「dipole_corr」を目的関数として使用した場合、最適化後にスケーリングファクターを再調整してください。この例では、スケーリングファクターがデフォルトの3000×(図7A–7C)から1000×に減少しました(図7D)。 - 最適化が前処理ERPにうまく適合しない場合は、Step 4.2に戻り、最大反復回数の増加、手動調整の開始点の改善、または調整する代替パラメータの選択などトラブルシューティングを行います。
注意:トラブルシューティングの詳細な説明については、ディスカッション内の「データ特徴にパラメータをフィッティングする際のトラブルシューティング」セクションを参照してください。
- 前処理ERPに良好な適合(すなわちCorr > 0.95)が得られた場合、スケーリング係数を再調整してRMSEを最小化し、ステップ5に進みます。
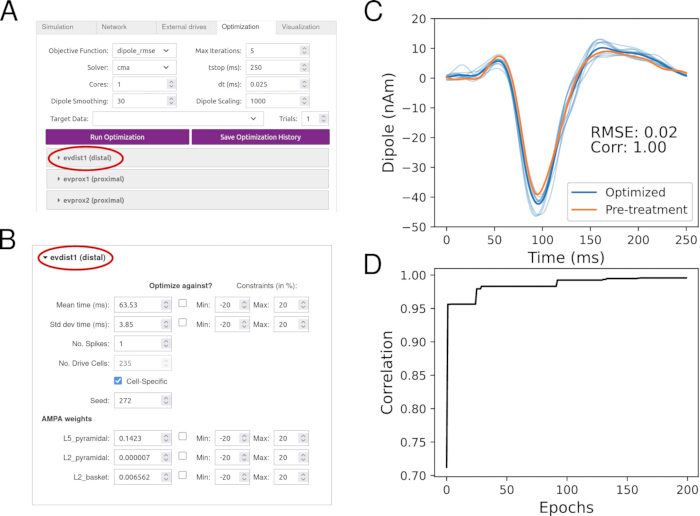
図8。前処理ERPへの適合性を改善するために外因性ドライブパラメータの最適化。 (A) GUI内の最適化タブで最適化パラメータの設定。(B) 最適化のためのパラメータおよび制約範囲の選択。(C) Kohlらによる経験的ERPデータへの適合度向上を示す最適化結果の例。(D) 約80回の反復後に収束を示す最適化損失曲線。 この図の拡大版はこちらをクリックしてご覧ください。
5. 治療後のモデル適合を確立する
- 最適化された前処理ERPシミュレーションから始めましょう。治療後のERPに合わせて、関心のあるパラメータを手動で調整・最適化します。
- 処理後の経験的ERP波形の負荷
- ステップ1の処理後の経験的ERP波形をGUIに読み込みます(ステップ3.2と同じ手順です)。 図9A)。
- 負荷最適化前処理パラメータ
- ステップ1から4までの最適化された前処理ERPパラメータを出発点として読み込みます(図9A)。
- 手動で調整と最適化を行う
- ステップ1.7で特定されたパラメータに対して、手動の手動調整とパラメータ最適化(ステップ3.2–3.11およびステップ4と同じ手順)を行います。
- シミュレーションと治療後のERPの間に高い相関(Corr > 0.95)が得られるまで調整と最適化を続けます。
注:図 9Bでは、信号標的パラメータ(局所ネットワークGABAB 最大伝導率低下)に手動調整を適用し、処理後のデータにより近い適合を実現しました。このパラメータ変更がデータにどれだけうまく反映しているかを評価するための最適化は行われていません。「代表結果」セクションでは、SBIを用いて処理後パラメータと仮定された複数のパラメータの分布を推定する方法を説明しています。SBI(ステップ6で詳細)は、ERP波形を考慮したパラメータ分布を推定し、パラメータ適合を横断した堅牢な比較を可能にするため、厳密な調査に推奨されます。
- モデル構成を保存しパラメータを比較する
- モデル構成を保存し、処理前と処理後の状態(データ未表示)で関心のあるパラメータの最適化値を比較してください。
- ステップ3.11を繰り返して、モデルパラメータの.jsonファイルをエクスポートします。ファイルをStep 2.5で作成したプロジェクトフォルダに移動してください。
- 外因性ドライブパラメータは、「外付けドライブをロード」(図5A)をクリックし、前処理または処理後のいずれかのネットワーク構成ファイルを選択して確認できます。
- ローカルネットワークパラメータを見るには、「ローカルネットワーク接続をロード」(図9C)をクリックし、事前処理または処理後のいずれかのネットワーク構成ファイルを選択します。
- 治療前および治療後のネットワーク構成におけるパラメータ値の変化を特定します。これらの変化を、治療後のバイオマーカー機構のモデルベースの予測として解釈してください。
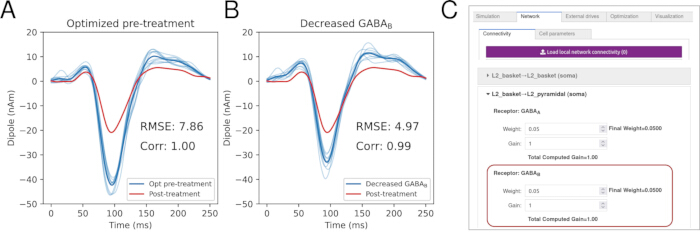
図9。治療後のEEGバイオマーカーのメカニズムとしてのガンマ-アミノ酪酸B型(GABAB)シナプス強度の評価。 (A) 最適化された前処理シミュレーション(青)に処理後のERP(赤)を重ね、ピークマグニチュードの低下を示しました。(B) GABAB シナプス強度の低下はN1振幅を減少させるため、潜在的なメカニズムが示唆されます。(C) 局所的なGABAB シナプス強度が変化する箇所を示すGUIパネル。 この図の拡大版はこちらをクリックしてご覧ください。
6. SBIを用いた不確実性定量化を行い、HNN-Pythonアプリケーションインターフェースを用いて分離可能性を評価する
注:SBIは別のPythonパッケージ62のインストールが必要です。SBIソフトウェアパッケージを用いてHNNでパラメータ推論を実行する方法については、関連するリポジトリ(https://github.com/ntolley/hnn_jove)を参照してください。コードは次のプロトコルの手順に従うように構成されます。SBIをHNNモデルに適用する詳細な議論は55で提供されています。
- SBIパッケージをインストールしてください
- Python環境を有効にしたターミナルで以下のコマンドを実行してSBIパッケージをインストールします:pip install sbi。
- 事前パラメータ範囲を定義する
- 事前処理および処理後のERPパラメータの対象部分を中心にパラメータ範囲を特定し、不確実性定量のための有界事前分布を作成します。
- トレーニングデータセットを生成する。
- パラメータ更新関数を定義します(パラメータ最適化と同じアプローチ)。
- サンプル生成のためにランダムシードを固定し、再現性を確保します。NumPyを使ってランダムサンプルを生成する場合は、Pythonスクリプトで乱数生成器インスタンス(例: RNG = np.random.default_rng(123))を作成し、この生成器を使ってサンプリングを行います。
注意:関連するコードリポジトリ(https://github.com/ntolley/hnn_jove)では、 code/generate_simulations.pyでNumPyランダムジェネレーターを使う例があります。 - 事前分布のサンプルパラメータ。
注:代表的な結果を生成するために10,000サンプルを使用しました。 - サンプル化されたパラメータ値を用いてシミュレーションされたERPのデータセットを作成します。
- 統計の概要を選択してください。
- EEG波形を特徴づける要約統計量を選びます。
注:要約統計量とは、EEG波形の主要な特徴を捉えるあらゆる量のことです。一般的な選択肢にはピークタイミングやマグニチュードがあります。本稿では、主成分分析(PCA)を用いて概要統計量(すなわち最初の4つの主成分の負荷)を抽出しています。完全な議論は55 を参照してください。 - 鉄道SBIネットワーク
注意:このチュートリアルは、神経後置推定オブジェクトのSBIパッケージに配布されたデフォルトのトレーニングパラメータ(例:density_estimator="maf"、training_batch_size=200、learning_rate=0.0005)を使用しています。トレーニングパラメータはSBIドキュメント(https://sbi.readthedocs.io/en/stable/api_reference/_autosummary/sbi.inference.NPE_B.html)で説明されています。 - Torchをインポートした後、Pythonスクリプトに torch.manual_seed(0) を含めることで、PyTorchのグローバルランダムシードを設定して再現性を保証します。
- SBIネットワークをパラメータの組み合わせをシミュレートしたERP波形にマッピングするよう訓練します。
注:訓練済みのSBIネットワークはPythonオブジェクトで、EEGデータからの要約統計を入力として受け入れ、パラメータの分布(事後分布)を出力します。訓練が成功すれば、この分布からのパラメータをHNNモデルでシミュレーションすることで、経験データに似たEEG波形が得られます(事後予測チェック[PPC])。 - 後方サンプルを作成し、適合度を評価する
- 実験的なEEG波形を訓練済みネットワークへの条件付け入力として提供します。
- 実験的なEEG波形を条件付けた後方分布からパラメータサンプルを抽出します。
- 事後分布から抽出したパラメータサンプルをシミュレートします。
- シミュレーションされた波形と入力された実験的なEEG波形との類似度を計算します。
注:この手続きはPPCと呼ばれます。よく訓練されたネットワークは、経験的波形に非常に近いシミュレーション(高い相関または低いRMSE)を生成します。PPCが満足のいくシミュレーションを生成しない場合、2つの可能性があります。(1) 仮説化されたメカニズムがバイオマーカーを説明していないため、新たな仮説と更新された先行分布が必要になること;または(2) SBIネットワークが成功裏にトレーニングされなかったこと。この場合、トレーニング予算を増やすか、要約統計を修正してください。 - サンプルパラメータ分布からのシミュレーションERPが処理前および処理後のERP(Corr > 0.95のPPC)に適合した場合、ステップ6.8に進みます。それ以外の場合は、ステップ6.7に進みましょう。
- EEG波形を特徴づける要約統計量を選びます。
- SBIネットワークトレーニングのトラブルシューティング
注:PPCが失敗した場合、SBIネットワークのトレーニングパラメータに修正が必要であることを示します。詳細な説明については、ディスカッションの「データ特徴にパラメータをフィッティングする際のトラブルシューティング」セクションを参照してください。- トレーニングデータセットのサイズを拡大しましょう。
- 概要機能を修正してください。
- トレーニングには別のSBIアーキテクチャを選択してください。
- 後方分布を可視化し、分離可能性を評価する
- ステップ6.6.2のパラメータサンプルの配列をペアプロット関数に渡し、各ERP条件に対応する分布に異なる色を割り当てます。
注:関連するコードリポジトリは 図10を再現するためのプロット機能を示しています。 - 生成されたペアプロットの対角線パネルを重ならない分布がないか検査します。分離可能性はOVLを計算して評価します(図10A)。高度に分離された分布(OVL < 0.1)を持つパラメータは、治療後と治療前で変化する神経療法の予測される作用機序に対応します。
注:OVLは範囲(0,1)における分布分離可能性を定量化する指標であり、OVL = 0は重複なしを示し、OVL = 1.0は完全な重複54,55を示します。OVLを計算するコードは関連するコードリポジトリに提供されています。
- ステップ6.6.2のパラメータサンプルの配列をペアプロット関数に渡し、各ERP条件に対応する分布に異なる色を割り当てます。
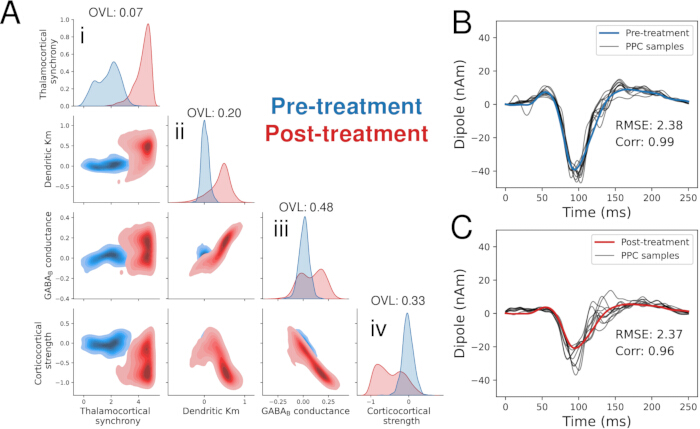
図10。SBIはパラメータ不確実性の定量化および神経治療機構の同定にあたります。 (A) SBIを用いて推定したパラメータ分布のペアプロット可視化。対角パネル(i–iv)は、(i) 視床皮質同期、(ii) 樹状状 Km 伝導率、(iii) GABAB 伝導率、(iv) 皮質皮質フィードバック強度を含む個々のパラメータに対する単変量分布を示しています。 (i) の単位は、デフォルトの(前処理)パラメータ値の乗算スケーリング係数として表されます。 (ii-iv) の単位は、対数スケール上のデフォルト(前処理)パラメータ値の乗算スケーリング係数として表されます。 治療前(青)および治療後(赤)の分布は分離度に差があり、視床皮質同期が最も重なりが少なく(重なり値、OVL = 0.07)、治療関連効果が最も強いことを示しています。対角線外パネルはパラメータ間の二変量関係を示します。(B) 治療前ERPのための事後予測チェック(PPC);シミュレート波形(黒色)は経験的データ(青)に非常に近いものです。(C)治療後のERPのためのPPC;シミュレートされた波形(黒)は経験データ(赤)とほぼ一致しています。 この図の拡大版はこちらをクリックしてご覧ください。
7. 検証、検証、さらにモデル制約の実施
注:このステップでは、GUI内でシミュレーション活動の要素を可視化する方法の例を提供します。これらのマルチスケールの詳細は、追跡実験におけるモデル由来予測の検証と情報提供のターゲットを提供します 7,47。このプロトコルは、検証実験に最適な予測選定や検証実験の実施方法(ステップ7.3)についての指針を提供していません。
- モデルパラメータのロードとシミュレーション実行
- 処理前および処理後の条件下に最適化された負荷モデルパラメータとシミュレーションの実行。
注:ステップ4–5の最適化パラメータは読み込み、検証可能です。PythonインターフェースからSBIがステップ6で生成したネットワークパラメータをエクスポートする方法の例は、関連するGitHubリポジトリに含まれています。
- 処理前および処理後の条件下に最適化された負荷モデルパラメータとシミュレーションの実行。
- マルチスケール予測の検証
- シミュレーション出力からのマルチスケール予測を検討します。
- 細胞レベルのスパイク活動をプロットする
- 「ビジュアライゼーション」タブ(図4A)をクリックしてください。
- 「レイアウトテンプレート」とラベル付けされたドロップダウンメニューをクリックし、「ダイポールレイヤースパイク」を選択します。
- データセットのドロップダウンで、プロットするシミュレーション結果を選択します。
- 「図作成」をクリックすると、ダイポール波形に寄与するスパイキング活動を可視化できます。
注意:特定のマイクロ回路機能(例:LFPやCSD)は、HNN-Pythonアプリケーションプログラミングインターフェース(API)を通じてのみ利用可能です。これらの機能に関するコードベースのチュートリアルは、HNNの例ページ(https://jonescompneurolab.github.io/hnn-core/stable/index.html)で提供されています。
- 実証データでモデル予測を検証する
- 既存のデータセットを特定し、または新たな実証データ(例:侵襲的電気生理学、層流MEG/EEG、磁気共鳴分光法)を収集して、マルチスケールモデルの予測を検証します。
- マルチスケールモデルの予測と実証データセットを比較してください。
- マルチスケール予測が経験データセットと一致する場合、選択されたマイクロ回路特徴に対して検証されたモデルを検討します。
- マルチスケール予測が経験データセットと一致しない場合は、新しい経験データで制約を施してデフォルトのHNNネットワークを更新し、ステップ3に戻ります。
結果
このセクションでは、作用機序が不明な神経治療薬をHNNモデリングソフトウェアを用いて調査するシナリオを提示します。目的は、治療前および治療後のEEG信号を用いて、神経治療薬が神経回路をどのように変化させるかの予測を生成することです。これらの結果は、HNNモデリングが神経治療メカニズムの調査にどのように応用できるかを示すための実証目的で提示されています。
EEG ERPバイオマーカーの基盤となるメカニズム仮説の構築(ステップ1)
この例では、仮想的な感覚ERPパラダイムを用いて、神経療法が信号をどのように変化させるかを検証します(ステップ1)。 図1A は、治療前の聴覚ERP(青)と仮想的な治療後のERP(赤; 図9参照)を示しています。治療前の聴覚ERPはKohlら43による実験的に記録されたソース局所データであり、仮説的な処理後ERPは、処理前波形をガウステーパーウィンドウでスケーリングすることで生成されます。示されたように、仮説的な神経療法は、治療前のERPに比べてP1、N1、P2成分の大きさを大幅に減少させます。
なお、Kohlら43による事前ERPデータから得られたHNNシミュレーションでは、錐体型ニューロンがデフォルトのHNNモデルよりも現実的なカルシウムチャネル動態で強化されたモデルが用いられています。その結果、Kohlらのシミュレーション結果はここで示したものとは若干異なります。Kohlらの2020年モデル(および他の更新されたHNNモデル)はPython API(https://jonescompneurolab.github.io/hnn-core/stable/generated/hnn_core.calcium_model.html#hnn_core.calcium_model)を通じてアクセス可能です。GUIを通じてこのような拡張モデルへのアクセスは現在開発中です。
次に、治療関連効果(すなわち関心のあるパラメータ)を表すモデルパラメータを特定し、神経療法がどのようにP1、N1、P2の大きさを低下させるかを説明する仮説を立てます(ステップ1.6–1.8)。候補神経機構(および対応するモデルパラメータ)の大まかなカテゴリーには、外因性シナプス入力のタイミング、局所神経細胞イオンチャネルの伝導度、局所シナプス結合性、外因性シナプス結合性が含まれます(図1B)。この例では、各カテゴリーの候補メカニズムをHNNを用いて評価し、これらのパラメータの変化がシミュレーションされたERPにどのように影響するかを評価します。
関心のあるパラメータ
- 第一(視床皮質)近位ドライブの標準偏差(すなわち視床皮質同期)は、初期フィードフォワード感覚入力の同期の変動を表します。
- ムスカリンカリウム(Km)チャネルの伝導率は、第5層(L5)錐体ニューロンにおいて神経細胞の興奮性を制御し、伝導度が増加すると興奮性が低下します。
- 局所GABAB 受容体の強度は、インターニューロンが局所ネットワーク内のすべての細胞に緩やかに誘導する抑制性シナプスに対応しています。
- フィードバック(皮質皮質)遠位ドライブの伝導強度は、顆粒上層のAMPAおよびNMDAシナプスに対する約100msの感覚誘発フィードバック入力の強さを表します。
前処理ERPモデル適合の確立(ステップ3–4)
ステップ3–4(最終的な事前処理シミュレーションは 図8C参照)に従って前処理ERPをシミュレートします。成功した結果は、シミュレーション波形と経験波形の密接な一致によって示されており、高い相関係数と低いRMSEによって定量化されます。
治療後のERPモデル適合性の確立(ステップ5)
前処理ERPモデルを出発点とし、手動で調整しパラメータ最適化を行い、対象パラメータが経験的な処理後のERPを再現できるかどうかを判断します。適合が成功した場合、仮定パラメータがERP波形の処理関連変化を説明するのに十分であることを示します。
SBIによる不確実性定量化(ステップ6)
生物物理モデルに内在するパラメータ縮退性のため、SBI(ステップ6)を用いた不確実性定量化は、処理前から処理後のパラメータ変化を予測するために不可欠です。SBIの重要な前提条件は、治療前および治療後のERPに正確な適合を得ることです(ステップ3–5)。正確な適合が得られない場合、SBIで生成された後方サンプルは経験的な波形を再現できず、予測が信頼性に欠ける可能性があります。
ステップ3〜5で適合がうまくいかない場合は、SBIを適用する前に関心のあるパラメータの選択とその先行範囲を修正してください。
この例では、SBIは関心のある4つの処理後パラメータにのみ適用され、他のパラメータはすべて固定されています。SBIをより大きなパラメータセットに適用することで堅牢性は向上しますが、計算コストが大幅に増加します( 議論参照)。
SBIは、ターゲット波形に密接に一致するシミュレーションERPを生成する全パラメータ分布の推定に用いられます。簡単に言うと、SBIはベイズ推論手法であり、ニューラルネットワークを訓練してモデルの出力をモデルパラメータ52、53、55の分布にマッピングします。訓練済みネットワークは経験的な波形に適用され、データと整合したパラメータ分布を推定します。これにはパラメータ範囲に関する事前仮説が必要です。
この例では、視床皮質同期、錐体型ニューロン樹状Km伝導率、局所GABAB伝導率、皮質皮質フィードバック強度の4つのパラメータに対して一様な事前分布が定義されています。事前境界はデフォルト値のスカラー倍数として定義されます。視床皮質同期は0–5×残りのパラメータは10−1–10×です。
図10A は、ペアプロットを用いて可視化された処理前および処理後のERPのパラメータ分布を示しています。対角線パネルは一変量分布を示し、対角線外パネルは二変量関係を示します。機構的予測は、条件間で強く分離された分布を持つパラメータに対応します。
単変量分布の調査では、視床皮質同期が治療前後の分離可能性が最も高く(最低OVLは0.07)、処理後は増加することが示されています(図10A(iii)、赤)。これは、HNNフレームワークが視床皮質同期の調節を作用機序の一つとして予測していることを示しています。
事後予測検証
PPCを用いて推定パラメータ分布を検証します。事後分布から独立したパラメータサンプルを生成し、対応するERPをシミュレートします。成功したPPCは、シミュレーション波形が経験的ERPと非常に一致する場合を示します。
図10Bおよび図10Cに示されているように、前処理(図10B、青)および処理後(図10C、赤)の波形は、後処理サンプル(黒)から生成されたシミュレーションと非常に近いもので、相関係数はそれぞれ0.99と0.96(10個の独立したサンプルで平均)です。これらの結果は、推定されたパラメータ分布が正確な波形再構成を生み出すことを裏付けています。
失敗したPPCの例は 補足図1に示されています。例は 図10 と同じ構造に従い、同じ訓練済みSBIネットワークを使用しています。しかし、訓練セットに十分に反映されていない別の処理後波形(例:N1レイテンシーで正の偏向を持つERP波形)が使用されます。失敗したPPCは 補足図1Cに示されており、相関係数は低い(例:Corr < 0.95)。特に、 補足図1A の後方分布はパラメータ分布が非常に分離しています。PPCを実施しなければ、これらの結果は治療前と治療後の条件の意味のある違いと誤解される可能性があります。この例は、失敗したPPCの結果は信頼性に欠けるため、事後分布の解釈と並行してPPCを行う重要性を強調しています。
モデルの検証と検証(ステップ7)
HNNモデルを用いることで、各ERPシミュレーションの基盤となる細胞レベルおよび回路レベルの活動(スパイキングなど)を直接検査・可視化することが可能です(ステップ7.2.2)。 図11A および 図11B は、処理前および処理後のパラメータ分布からサンプリングされたシミュレーションERPと、対応する細胞特異的な急増活動を示しています(図11C および 図11D)。
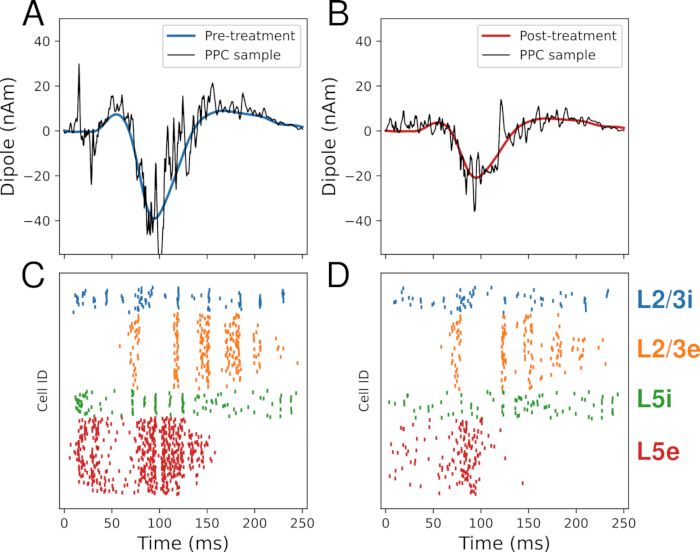
図11。EEGバイオマーカー生成の基盤となる細胞レベルの急増活動。(A) 事前ERP(青色)と単一の後方予測シミュレーション(黒)。(B)治療後のERP(赤)と対応する後予測シミュレーション(黒)。(C) 前処理ERPの基礎となる模擬スパイク活動。(D) 治療後のERPの基礎となる模擬スパイク活動。この図の拡大版はこちらをクリックしてご覧ください。
波形は平滑化せずに可視化され、スパイクタイミングが現在の双極子に与える影響を強調しています。実験的なEEG信号では、大きなニューロン集団が空間的に平均された信号を生成し、より滑らかに見えます。HNNはより小さな集団(200個の錐体ニューロン)をシミュレートするため、より大きなスケールの活動(>100,000ニューロン)を近似するために平滑化が用いられます。
症状間で顕著な違いとして、治療後のL5錐体ニューロンのスパイク活動が減少します(図11C および 図11D、赤点参照)。図 11 は事後分布からの単一のサンプルを示しています。複数のサンプルを分析して堅牢な予測を導く必要があります。これらの結果は、仮説上の神経治療が多スケール回路活動を変化させ、P1–N1–P2振幅を減少させることを示しています。
このような予測は、侵襲的電気生理学(例:高密度層流プローブ記録)やその他の画像手法(ステップ7.3)を通じて直接検証できます。新たに取得したデータは、モデル予測のさらなる制約に利用できます。このプロトコルはマクロスケールのEEGデータをフィッティングしてマイクロ回路活動を推定することに焦点を当てていますが、逆にミクロ回路データ(例:スパイキング、LFP/CSD)をフィッティングしてマクロスケールのEEG信号を推算することも可能です。
補足図1。SBIワークフローにおける失敗した事後予測チェックの例。 プロットは図10と同じように構成されています。前処理データ(青)は図10と同じです。仮想的な処理後データは前回と同じ方法で生成され(波形にガウステーパーウィンドウを掛けた)、変換されて正のピークが生成され、HNNシミュレーションの訓練セットでは十分に表現されません。(A) SBIを用いて推定したパラメータ分布のペアプロット可視化。対角パネル(i–iv)は、(i) 視床皮質同期、(ii) 樹状状 Km 伝導率、(iii) GABAB 伝導率、(iv) 皮質皮質フィードバック強度を含む個々のパラメータに対する単変量分布を示しています。前処理(青)および後処理(赤)条件の分布は、すべてのパラメータに対して高い分離可能性を示している(OVL < 0.1)。対角線外パネルはパラメータ間の二変量関係を示します。(B) 治療前ERPのための事後予測チェック(PPC);シミュレート波形(黒色)は経験的データ(青)に非常に近いものです。(C)治療後のERPのためのPPC;シミュレーション波形(黒)は経験的データ(赤)とは大きく異なり、Corr < 0.95はPPCの失敗を示しています。このファイルをダウンロードするには、こちらをクリックしてください。
ディスカッション
EEGバイオマーカーの計算的神経モデリングは、CNS治療がどのように神経回路を再構成し、治療効果の背後にある生物学的プロセスの予測を深める助けとなる可能性があります。ここで紹介するワークフローは、一般的に測定されるEEGバイオマーカーである聴覚ERP、そしてHNNを用いた生物物理学的モデリングが、薬物が神経活動にどのような影響を与えるかを探る窓口として活用できることを示しています。マクロスケールのEEG測定を細胞および回路レベルのプロセスと結びつけることで、このプロトコルは構造化された仮説に基づくメカニズム解釈の枠組みを提供します。重要なのは、このアプローチがERPに限定されず、低周波神経振動40,63や過渡スペクトルイベント7,47,64など他の局所EEG信号の調査にも拡張可能であり、これにより電気生理学的バイオマーカーや実験パラダイム全体での適用範囲を広げられることです。
他のEEG神経モデリングフレームワークと比べて、HNNはモデルの複雑さと計算効率のバランスを提供し、反復的仮説検定に特に有利です。例えば、バーチャル・ブレインは時空間的な脳波信号を生成する大規模な脳ネットワークのシミュレーションを可能にします34,65。しかし、全脳モデリングを達成するためには、神経活動を簡略化された数学的定式化で表現し、ピラミッド型ニューロンの形態などの詳細な細胞的特徴を排除し、モデルパラメータと薬物作用の細胞メカニズムを直接結びつける能力を制限します。逆に、大規模な形態学的・生理学的に詳細なモデルは、高い生物学的リアリズム66,67,68,69でEEG信号をシミュレートできますが、計算コストが非常に高く、数秒の神経活動をシミュレートするのに数時間の計算が必要になることが多いです。この計算負荷はアクセスのしやすさを制限し、仮説生成や検証に必要な反復プロセスを遅らせる可能性があります。HNNは中間的な位置を占めており(図2)、局所的な新皮質回路を細胞レベルおよび回路レベルの予測に十分な生物学的詳細でシミュレーションしつつ、計算効率(すなわち秒単位のシミュレーション)を維持し、実験ワークフローへの統合に適しています。
これらの利点にもかかわらず、脳疾患や薬物メカニズムの研究にEEGや生物物理神経モデリングを適用する際には、いくつかの制約を考慮する必要があります。EEG信号を生成する生物物理学的細胞および回路の特性は、薬理学的介入によって影響を受ける生物学的プロセスの全スペクトルを捉えているわけではありません。例えば、全身的または免疫学的反応がEEG信号に直接影響を与えない場合があり、したがってモデル化された出力に反映されないことがあります。さらに、機械論的仮説は動物実験から導かれることが多く、特に神経精神疾患では、行動的・認知的評価に基づく臨床結果が示される場合、人間の脳機能に完全には適用されないことがあります(70,71)。もう一つの重要な課題は、急性と慢性の薬理学的影響を区別することです。急性薬物-受容体の相互作用は比較的よく特徴づけられていますが、持続的な薬物曝露によって誘導される長期的な適応は十分に理解されておらず、現在のモデリング枠組みでは十分に捉えられていない可能性があります。さらに、HNNモデルは単一の局所的な標準的な新皮質ネットワークを表していますが、神経治療や中枢神経系疾患は複数の脳領域に分散した影響を及ぼすことが多いです。他の領域からの影響は、外部入力のタイミングや強度の変化によって近似できますが、これらの上流または下流回路の直接的な経験的特徴付けはしばしば限られており、モデル解釈が制約されます。
パラメータ縮退は、すべての生物物理神経モデルにおける根本的な課題を表します。なぜなら、複数のパラメータ構成が似たモデル出力を生み出す可能性があるからです。このプロトコルでは、経験的データと整合するERP波形を生成するパラメータの分布を推定することで、SBIを用いてこの問題に対処しています(図10)。このアプローチにより、モデルパラメータの不確実性を定量化でき、単一点推定よりも機構的解釈の堅牢な枠組みを提供します。しかし、計算的可解性のために、SBIは仮説化された薬物メカニズムに対応する限られたパラメータ部分集合に適用され、推定されていないパラメータに関する仮定が結果となるネットワークダイナミクスに影響を与えることがあります。推論をより大きなパラメータ空間へ拡張することは、逐次ニューラル後方推定のような手法を用いて達成可能であり、これはパラメータ推定を反復的に精緻化し、52 次元(>10次元)の高次元パラメータ分布の探求を可能にします。確率的推論に加え、独立した実験的制約を取り入れることでパラメータの不確実性をさらに低減し、モデル予測の特異性を向上させることができます。EEG信号は主に皮質層間の協調活動を反映するため、侵襲的層流電気生理学(細胞スパイピング、LFP、CSDの測定を含む)は、モデル解の制約や機構仮説の精緻化に貴重な情報を提供します。
このプロトコルの成功した適用は、いくつかの重要なステップを慎重に実行することに依存します。ERPバイオマーカーを特定し、モデリングフレームワークを導入した後(ステップ1–2)、主な要件はワークフローの各段階で成功した成果を達成することです(図3)。ステップ3〜5では、仮定パラメータを選択・精緻化し、シミュレーション前処理および経験的事前処理および処理後ERPの密接な適合を実現するために手動で調整・最適化します。満足のいく適合が得られない場合は、代替パラメータを検討し、反復的にテストする必要があります。HNNのERP機能再現能力の既実証から繰り返しの失敗は起こりにくいですが、持続的な失敗はデフォルトネットワークモデルの変更や追加の生物物理的詳細の組み込みが必要であることを示しているかもしれません。ステップ6では、パラメータ範囲の適切な選択、要約統計量、訓練パラメータの適切な選択を含め、SBIの慎重な設定が求められ、パラメータ分布の正確な推定が保証されます。ステップ6を成功裏に完了すると、モデルベースの予測と関連する不確実性推定の両方が得られます。ステップ7はこれらの予測を検証するために重要ですが、具体的な検証戦略は利用可能な実験手法に依存します。潜在的な検証手法には、層および細胞特異的なスパイキング活動やLFP/CSD信号7を評価する層流電気生理学的記録、層分解MEG/EEG測定、神経伝達物質系を評価する磁気共鳴分光法または陽電子放出断層撮影、視床皮質経路などの構造的結合性を評価する拡散テンソルイメージングなどが含まれます。
トラブルシューティングとカスタマイズは、特にモデルパラメータを経験的データに適合させるステップ3〜6において、プロトコルを異なるデータセットや実験文脈に適応させる上で不可欠です。パラメータ最適化(ステップ4–5)は高い相関(Corr > 0.95)に収束しない場合があり、その場合はいくつかの調整が必要です。これには、最適化器のハイパーパラメータの変更(例:CMA-ESソルバーの集団サイズを拡大して堅牢性を向上させること、計算コストの増加)、スケーリングや平滑化パラメータの精緻化(例:5〜60msの平滑化値のテスト)、外生的ドライブパラメータの範囲拡大や波形特徴の捕捉を良くするための追加ドライブの導入が含まれます。場合によっては、最適化されたシミュレーションが高い相関を達成しても、P1成分のような振幅の低いERP特徴を捉えられないこともあります。これは、より厳格な損失閾値を適用したり、特定のタイムウィンドウに重み付けして最適化時にこれらの特徴を強調することで対処できます。SBI(ステップ6)では、PPCの失敗はシミュレーション波形が経験的データを十分に再現していないことを示します(補足図1)。そのような場合、パラメータ範囲を拡大したり追加のパラメータを含めたりして、従来のパラメータ分布を修正し、トレーニングデータセットのサイズを拡大する必要があるかもしれません。追加の改善は、要約統計を修正したり、代替のSBIアーキテクチャを選択することで実現可能です。最後に、ステップ7での検証が失敗した場合、デフォルトのHNNネットワークに追加または代替の回路要素を追加する変更が必要になることがあります。HNNのモジュール設計はこのような拡張をサポートしており、GUIを通じてシナプス接続性や細胞特性の変更、Pythonインターフェースを通じてより高度な構造変更が可能です。例えば、先行研究ではデフォルトモデルを修正し、前頭皮質46のより詳細なインターニューロン結合性を取り入れ、新たな検証可能な予測が生まれました。HNNのオープンフレームワークは、拡張されたモデルの共有と再利用を促進し、実験的文脈をまたぐ継続的な洗練と検証を支援します。
開示事項
N.T.とS.R.J.は、本研究で記述された神経回路モデルにおけるパラメータ推論手法に関する特許出願中の共同発明者です。残りの著者たちは利益相反を認めていない。
謝辞
このプロトコルで示された結果を生成するために使用されたすべてのコードは以下のサイトで確認できます:https://github.com/ntolley/hnn_jove。この研究は、米国国立衛生研究所(NIH)のブラウン生物医学イノベーション・トゥ・インパクト賞の支援を受けました。 https://www.nih.gov;助成金番号U24NS129945およびP50MH109429)、および国立科学財団(NSF;https://www.nsf.gov;助成金番号2424101)です。資金提供者は研究設計、データ収集・分析、出版の決定、原稿の作成に関与しませんでした。この研究は、ブラウン大学の計算・可視化センター(CCV)を通じて、NIHS10の計測助成金S10OD036341(高性能計算クラスター)から支援された計算資源を使用しました。
材料
```html
```
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Anaconda Python | Anaconda, Inc. | N.A. | Pythonのディストリビューション; Pythonバージョン≥3.9と<3.14 |
| コンピューターワークステーション | N.A. | N.A. | オペレーティングシステム: Windows ≥10, Linux, または macOS. 推奨される最低ハードウェア: ≥16 GB RAM, ≥8 CPUコア |
| EEGLAB | EEGLAB開発者 | N.A. | EEGの前処理とERP分析のためのオプションのMATLABベースのツールボックス |
| FieldTrip | ドンダーズ脳、認知、行動研究所、ラドバウド大学 | N.A. | EEG/MEG分析のためのオプションのMATLABベースのツールボックス |
| Human Neocortical Neurosolver (HNN-core) | HNN開発者 | N.A. | 生物物理学的ニューラルモデリングソフトウェア; 本研究で使用されたバージョン≥0.6.0 |
| MATLAB | MathWorks | N.A. | EEGLABとFieldTrip (使用される場合)の実行に必要 |
| MNE-Python | MNE開発者 | N.A. | EEGの前処理とソース局在化に使用 |
| NumPy | NumPy開発者 | N.A. | 数値計算と乱数の生成に使用 |
| Pixi (パッケージ/環境マネージャー) | Prefix.dev | N.A. | 関連するコードリポジトリの依存関係の管理に使用 |
| PyTorch | PyTorch開発者 | N.A. | SBIニューラルネットワークのトレーニングと乱数のシード設定に使用 |
| SBI (Simulation-Based Inference) パッケージ | SBI開発者 | N.A. | パラメータ推論と不確実性定量化のためのPythonパッケージ |
| Windows Subsystem for Linux (WSL2) | Microsoft Corporation | N.A. | Windowsベースのインストールにのみ必要 |
参考文献
- Gribkoff VK, Kaczmarek LK. The need for new approaches in CNS drug discovery: Why drugs have failed, and what can be done to improve outcomes. Neuropharmacology. 2017;120:11-19.
- Loo SK, Lenartowicz A, Makeig S. Research review: Use of EEG biomarkers in child psychiatry research—current state and future directions. J Child Psychol Psychiatry. 2016;57(1):4-17.
- McLoughlin G, Makeig S, Tsuang MT. In search of biomarkers in psychiatry: EEG-based measures of brain function. Am J Med Genet B Neuropsychiatr Genet. 2014;165(2):111-121.
- Douglas RJ, Martin KAC. Neuronal circuits of the neocortex. Annu Rev Neurosci. 2004;27:419-451.
- Harris KD, Shepherd GMG. The neocortical circuit: themes and variations. Nat Neurosci. 2015;18(2):170-181.
- Murakami S, Okada Y. Contributions of principal neocortical neurons to magnetoencephalography and electroencephalography signals. J Physiol. 2006;575(3):925-936.
- Sherman MA, et al. Neural mechanisms of transient neocortical beta rhythms: Converging evidence from humans, computational modeling, monkeys, and mice. Proc Natl Acad Sci U S A. 2016;113(33):E4885-E4894.
- Shin H, et al. The rate of transient beta frequency events predicts behavior across tasks and species. eLife. 2017;6:e29086.
- De Pieri M, et al. Pharmaco-EEG of antipsychotic treatment response: A systematic review. Schizophrenia. 2023;9(1):85.
- Hyun J, Baik M, Kang U. Effects of psychotropic drugs on quantitative EEG among patients with schizophrenia-spectrum disorders. Clin Psychopharmacol Neurosci. 2011;9(2):78-85.
- Jobert M, et al. Guidelines for the recording and evaluation of pharmaco-EEG data in man: The International Pharmaco-EEG Society (IPEG). Neuropsychobiology. 2012;66(4):201-220.
- Mandema JW, Danhof M. Electroencephalogram effect measures and relationships between pharmacokinetics and pharmacodynamics of centrally acting drugs. Clin Pharmacokinet. 1992;23:191-215.
- Leiser SC, Dunlop J, Bowlby MR, Devilbiss DM. Aligning strategies for using EEG as a surrogate biomarker: A review of preclinical and clinical research. Biochem Pharmacol. 2011;81(12):1408-1421.
- Wilson FJ, Danjou P. Early decision-making in drug development: The potential role of pharmaco-EEG and pharmaco-sleep. Neuropsychobiology. 2016;72(3-4):188-194.
- Klumpp H, Shankman SA. Using event-related potentials and startle to evaluate time course in anxiety and depression. Biol Psychiatry Cogn Neurosci Neuroimaging. 2018;3(1):10-18.
- Proudfit GH, et al. Depression and event-related potentials: Emotional disengagement and reward insensitivity. Curr Opin Psychol. 2015;4:110-113.
- Luck SJ, et al. A roadmap for the development and validation of event-related potential biomarkers in schizophrenia research. Biol Psychiatry. 2011;70(1):28-34.
- Salisbury DF, Collins KC, McCarley RW. Reductions in the N1 and P2 auditory event-related potentials in first-hospitalized and chronic schizophrenia. Schizophr Bull. 2010;36(5):991-1000.
- Kang E, et al. Atypicality of the N170 event-related potential in autism spectrum disorder: A meta-analysis. Biol Psychiatry Cogn Neurosci Neuroimaging. 2018;3(8):657-666.
- Modi ME, Sahin M. Translational use of event-related potentials to assess circuit integrity in ASD. Nat Rev Neurol. 2017;13(3):160-170.
- Horvath A, et al. EEG and ERP biomarkers of Alzheimer’s disease: A critical review. Front Biosci (Landmark Ed). 2018;23:183-220.
- Malver LP, et al. Electroencephalography and analgesics. Br J Clin Pharmacol. 2014;77(1):72-95.
- Preskorn SH, et al. Normalizing effects of EVP-6124 on event-related potentials and cognition: A randomized trial in schizophrenia. J Psychiatr Pract. 2014;20(1):12-24.
- Schwertner A, et al. Effects of subanesthetic ketamine on visual and auditory event-related potentials in humans: A systematic review. Front Behav Neurosci. 2018;12:70.
- Visser S, et al. Dose-dependent EEG effects of zolpidem provide evidence for GABAA receptor subtype selectivity in vivo. J Pharmacol Exp Ther. 2003;304(3):1251-1257.
- Okoroafor F, et al. Neurophysiologic biomarkers of invasive neuromodulation therapy for epilepsy. Neuromodulation: Technol Neural Interface. 2026;29(3):360-375.
- Maki-Marttunen T, et al. Biophysical psychiatry—how computational neuroscience can help understand the complex mechanisms of mental disorders. Front Psychiatry. 2019;10:534.
- Murray JD, Demirtas M, Anticevic A. Biophysical modeling of large-scale brain dynamics and applications for computational psychiatry. Biol Psychiatry Cogn Neurosci Neuroimaging. 2018;3(9):777-787.
- Cagney DN, et al. The FDA NIH biomarkers, endpoints, and other tools (BEST) resource in neuro-oncology. Neuro Oncol. 2018;20(9):1162-1172.
- Cecchi M, et al. Validation of a suite of ERP and QEEG biomarkers in schizophrenia. Schizophr Res. 2023;254:178-189.
- Dura-Bernal S, et al. NetPyNE, a tool for data-driven multiscale modeling of brain circuits. eLife. 2019;8:e44494.
- Linden H, et al. LFPy: a tool for biophysical simulation of extracellular potentials. Front Neuroinform. 2014;7:41.
- Neymotin SA, et al. Human Neocortical Neurosolver (HNN), a new software tool for interpreting MEG/EEG data. eLife. 2020;9:e51214.
- Sanz Leon P, et al. The Virtual Brain: a simulator of primate brain network dynamics. Front Neuroinform. 2013;7:10.
- Hamalainen M, et al. Magnetoencephalography—theory, instrumentation, and applications. Rev Mod Phys. 1993;65(2):413-497.
- Ikeda H, Wang Y, Okada YC. Origins of the somatic N20 and high-frequency oscillations evoked by trigeminal stimulation in the piglets. Clin Neurophysiol. 2005;116(4):827-841.
- Okada YC, Wu J, Kyuhou S. Genesis of MEG signals in CNS structure. Electroencephalogr Clin Neurophysiol. 1997;103(4):474-485.
- Bush PC, Sejnowski TJ. Reduced compartmental models of pyramidal cells. J Neurosci Methods. 1993;46(2):159-166.
- Jones SR, et al. Neural correlates of tactile detection. J Neurosci. 2007;27(40):10751-10764.
- Jones SR, et al. Quantitative analysis of MEG mu rhythm. J Neurophysiol. 2009;102(6):3554-3572.
- Law RG, et al. Thalamocortical mechanisms regulating beta events. Cereb Cortex. 2022;32(4):668-688.
- Fernandez Pujol C, Blundon EG, Dykstra AR. Laminar specificity of the auditory perceptual awareness negativity: A biophysical modeling study. PLoS Comput Biol. 2023;19(6):e1011003.
- Kohl C, Parviainen T, Jones SR. Neural mechanisms underlying auditory evoked responses. Brain Topogr. 2022;35(1):19-35.
- Lankinen K, Ahveninen J, Jas M, Raij T, Ahlfors SP. Neuronal modeling of cross-sensory visual evoked magnetoencephalography responses in the auditory cortex. J Neurosci. 2024;44(17):e1119232024.
- Kaplan L, et al. Modeling cortical dynamics using HNN [poster presentation]. Presented at: Society for Neuroscience Annual Meeting; San Diego, CA, USA; 2025.
- Diesburg DA, Wessel JR, Jones SR. Biophysical modeling of ERP generation. J Neurosci. 2024;44(20).
- Bonaiuto JJ, et al. Laminar dynamics of beta bursts. Neuroimage. 2021;242:118479.
- Ferrante M, Blackwell KT, Migliore M, Ascoli GA. Computational models of neuronal biophysics. Curr Med Chem. 2008;15(24):2456-2471.
- Geerts H, et al. Quantitative systems pharmacology for neuroscience drug discovery. CPT Pharmacometrics Syst Pharmacol. 2020;9(1):5-20.
- Geerts H, et al. Computational neuroscience and systems pharmacology. J Pharmacokinet Pharmacodyn. 2024;51(5):563-573.
- Kappenman ES, Luck SJ. ERP components: brainwave recordings. Oxford Handbook ERP Components. 2012;1:3-30.
- Goncalves PJ, et al. Training neural density estimators. eLife. 2020;9:e56261.
- Papamakarios G, et al. Normalizing flows for probabilistic modeling. J Mach Learn Res. 2021;22(57):1-64.
- Pastore M, Calcagni A. Measuring distribution similarities. Front Psychol. 2019;10.
- Tolley N, et al. Estimating parameters in neural models with SBI. PLoS Comput Biol. 2024;20(2):e1011108.
- Gramfort A, et al. MEG and EEG analysis with MNE-Python. Front Neuroinform. 2013;7:267.
- Sliva DD, et al. Transcranial stimulation and EEG perception. Front Psychol. 2018;9:2117.
- Thorpe RV, et al. Distinct neocortical mechanisms underlie human SI responses to median nerve and laser evoked peripheral activation. bioRxiv. 2021; Available at: https://doi.org/10.1101/2021.10.11.463545.
- Delorme A, Makeig S. EEGLAB toolbox. J Neurosci Methods. 2004;134(1):9-21.
- Oostenveld R, et al. FieldTrip software. Comput Intell Neurosci. 2011;2011:156869.
- Puce A, Hämäläinen MS. A review of issues related to data acquisition and analysis in EEG/MEG studies. Brain Sci. 2017;7(6):58.
- Tejero-Cantero A, et al. sbi: toolkit for simulation-based inference. J Open Source Softw. 2020;5(52):2505.
- Lee S, Jones SR. Distinguishing mechanisms of gamma frequency oscillations in human current source signals using a computational model of a laminar neocortical network. Front Hum Neurosci. 2013;7:869.
- Szul MJ, et al. Beta burst waveform motifs. Prog Neurobiol. 2023;228:102490.
- Hashemi M, et al. Bayesian virtual epileptic patient. Neuroimage. 2020;217:116839.
- Billeh YN, et al. Systematic integration of structural and functional data into multi-scale models of mouse primary visual cortex. Neuron. 2020;106(3):388-403.
- Borges FS, Moreira JV, Takarabe LM, Lytton WW, Dura-Bernal S. Large-scale biophysically detailed model of somatosensory thalamocortical circuits in NetPyNE. Front Neuroinform. 2022;16:884245.
- Markram H, et al. Reconstruction of neocortical microcircuitry. Cell. 2015;163(2):456-492.
- Hagen E, Næss S, Ness TV, Einevoll GT. Multimodal modeling of neural network activity: computing LFP, ECoG, EEG, and MEG signals with LFPy 2.0. Front Neuroinform. 2018;12:92.
- Geerts H. Of mice and men in CNS drug discovery. CNS Drugs. 2009;23(11):915-926.
- Nestler EJ, Hyman SE. Animal models of neuropsychiatric disorders. Nat Neurosci. 2010;13(10):1161-1169.
再版と許可
