このプロトコルは、ヒト一次気道上皮細胞と肺の微小血管内皮細胞を組み合わせた動的な肺・オン・ア・チップ共培養システムを確立し、健康モデルとCOPDモデルの2つのモデルを用います。このシステムは、空気-液体界面および流れの下で気道と血管間の相互作用を再現し、バリア評価、細胞表現型解析、RNA解析を提供します。
この記事について
サマリー
要約
一次気道上皮細胞および肺微小血管内皮細胞を取り入れることで、気道・血管インターフェースを再現するために、2つの動的な肺・オン・ア・チップ共培養モデルが開発されました。1つのモデルは、健康なドナーの市販の細胞を使用し、もう1つは慢性閉塞性肺疾患(COPD)患者から得られる細胞を用い、同一培養条件下で健康な状態と疾患状態を直接比較することを可能にします。両モデルとも、連続的な灌流および空気-液体界面(ALI)条件下での上皮分化を支持し、その下に内皮層を支える生理学的に重要な上皮バリアを生み出します。ワークフローには、細胞外マトリックスコーティング、細胞シーディング、ALIの確立、バリア機能評価、細胞表現型、細胞型特異的RNA抽出が含まれます。透過性アッセイでは両系において堅牢なバリア完全性が示され、免疫蛍光法では細胞接合部におけるZonula Occludens-1(ZO-1)および血管内皮カデリン(VE-cadherin)の連続的な局在が確認されました。上皮分化はβ-チューブリンIV染色および毛様体拍動の可視化によって確認されました。高品質なRNAは各区画から個別に得られ、細胞型特異的分子解析を支えました。COPDモデルは、バリア機能や細胞生存率を損なうことなく、特に粘液産生の増加という病気の主要な特徴を再現しました。患者由来の上皮細胞および内皮細胞の使用により、個々の病理的特徴が保存され、COPDにおける細胞間メカニズムの調査が可能になります。このアプローチは、静的な in vitroおよび動物モデルに代わる生理学的に関連性のある代替手段を提供し、吸入薬物、病原体曝露、上皮細胞と内皮細胞の相互作用に関する前臨床研究を支援します。重要なのは、健康モデルとCOPD肺チップモデルは、直接比較研究のために組み合わせて使用することも、機構調査、治療試験、創薬にも独立して利用可能である点です。また、上皮や内皮区画の変化を伴う他の呼吸疾患にも適応でき、呼吸研究のための多用途かつ翻訳的なプラットフォームを提供します。
概要
気道上皮細胞と肺微小血管内皮細胞の相互作用は、肺の恒常性を維持し、損傷、感染、炎症に対する反応を調整して不可欠です。これらの細胞型は、ガス交換、免疫監視、血管透過性を調節する機能的なバリアを形成します。彼らの動的なクロストークは、パラクリンシグナル伝達、細胞間の直接的な相互作用、機械的刺激への応答を含み、これらはすべて肺機能と構造の完全性に不可欠です。
慢性閉塞性肺疾患(COPD)では、慢性炎症、気道再構築、肺胞・毛細血管界面の破壊を特徴とする進行性肺疾患であり、気道上皮および肺血管内皮のバリア機能が障害され、異常なサイトカイン放出と組織修復機構の調節障害を伴います2,3.しかし、気道上皮細胞と肺微小血管内皮細胞の相互作用は依然として十分に解明されていません。この制約は、既存のin vitroおよびin vivoモデルの欠点に起因する部分があります。動物モデルは呼吸生理学や病理学に関する重要な洞察を提供してきましたが、免疫機能、肺の構造、細胞シグナル伝達、薬物代謝の種間差異により、人間の生物学への翻訳が妨げられるため、その関連性は限定的です。
従来の in vitroシステム、例えば不死化気道上皮細胞株の二次元(2D)培養は、気道上皮の重要な特徴、例えば適切な分化や生体力学的応答性を再現できません。一次元気道上皮細胞の三次元(3D)空気-液体界面(ALI)単一培養は生理学的関連性を向上させますが、静的であり、他の細胞タイプや機械的刺激との相互作用が欠けています。肺は動的な器官であり、常に気流、せん断応力、細胞外マトリックスの硬さ、呼吸によって生じる周期的な伸びにさらされています。これらの要因は細胞の挙動や組織の再構築に強く影響を与えます。したがって、静的モデルでは白血球接着、免疫細胞輸送、薬物曝露に対するリアルタイム応答などのプロセスを再現するには不十分です。
これらの制約に対処するため、複雑な細胞相互作用をモデル化するための高度なシステムとして、オルガン・オン・ア・チッププラットフォームが登場しています。肺オンチップモデルは、マイクロ流体技術をヒト由来の細胞と統合し、肺の微小環境の重要な構造的・機械的特徴を再現します。これらのプラットフォームは、生体内の条件により近い3次元環境下で気道上皮および肺血管内皮細胞の共培養を可能にします。生理的な呼吸動作、体液の流れ、リアルタイムモニタリングの導入により、正常および疾患状態の両方における上皮-内皮間コミュニケーションの研究が強化されます7–9。
これらの進歩にもかかわらず、既存の肺チップシステムの多くは健康なドナーから派生した細胞に依存しており、疾患特異的な相互作用をモデル化する能力が制限されています。さらに、多くのプラットフォームは患者由来細胞の組み込みや複雑なCOPDマイクロ環境の再現に柔軟性を欠いています。さらに、一次気道上皮細胞および肺微小血管内皮細胞の共培養に関する詳細なプロトコルは、商業的な供給源からであれCOPD患者からのものであれ、細胞型特異的細胞外マトリックス(ECM)コーティングを用いています。
本研究では、市販の2チャネルマイクロ流体肺オンチッププラットフォームを用いて、一次気道上皮細胞と肺微小血管内皮細胞からなる2つの共培養モデルを構築しました。異なるドナー由来の市販の細胞を用いて健康モデルを作成し、同じ患者から得られた気道上皮細胞および内皮細胞を用いてCOPDモデルを構築しました。両モデルとも、生 体内の肺微小環境をよりよく模倣するために、細胞型特異的なECMコーティングを使用しています。これらのシステムは、生理学的および病理学的条件下での上皮細胞–内皮細胞相互作用の調査を可能にします。健康モデルとCOPDモデルは、直接比較研究のために組み合わせて使用することも、メカニズム的調査や治療的検査に独立して使用できます。
この共培養システムは、気道上皮と肺血管の解剖学的組織を反映しており、これらは統合された上皮・内皮ユニットとして機能します。気道上皮は、基底細胞、分泌細胞、繊毛細胞から成る擬層層であり、血管形成された結合組織層(固有層)の上に位置し、基底膜によって内皮から分離されています。このモデルでは、ECMコーティング(コラーゲンタイプI、フィブロネクチン、ラミニン)が上皮膜および内皮基底膜の組成を近似します。2つのチャネルを隔てる多孔質膜は上皮下結合組織を模倣しますが、血管の複雑さは乏しいです。上皮-内皮間のコミュニケーションには、パラクリンシグナル伝達、透過性の協調調節、免疫細胞のリクルート、呼吸誘発による伸ばしなどの機械的刺激への応答など、血管抵抗やメカノトランスデューション経路に影響を与える複数のメカニズムが関与しています。
本方法論的研究は、気液界面(ALI)条件下で培養し、その基底に肺微小血管内皮を有する完全分化気道上皮を確立するために必要な手順を概説しています。このシステムは障壁の完全性の質的かつ機能的な評価を可能にし、再現可能な見かけ透過率(Papp)値を1×10⁻6 cm/s≤達成します。さらに、細胞表現型の解析や各区画からのRNA抽出・定量のためのプロトコルも提供されており、高品質なRNA(RNA完全性番号>7)を一貫して得られます。この方法は定量的なmRNA解析や粘液生成の詳細な評価を目的としていませんし、機械的伸縮の影響を調査するものでもありませんが、このシステムではそのような応用が可能です。
プロトコル
一次ヒト細胞の使用は、UZルーヴェン地方倫理委員会(S51577/S57114/S70453)によって承認されました。市販の一次ヒト気管支上皮細胞(HBEC)および肺微小血管内皮細胞(HPMEC)は、非喫煙ドナー2名から取得されました(補足表1、2)。COPDモデルの一次細胞は、喫煙歴のある3名のCOPD患者の移植された肺組織から単離され(補足表3)、確立されたプロトコル(倫理承認S51577)に従いBREATHEバイオバンクに保管されました。HBECとHPMECの両方が同じCOPD患者から取得されました。
健康的な肺オンチップモデルを確立するために、商用HBECとHPMECが用いられました。COPDモデルでは、同じ患者から肺移植後に移植された肺組織から、一次気管支上皮および肺微小血管内皮細胞を単離しました。本研究で使用された肺オンチップシステムは、平行な気道(上部)と血管(下部)のマイクロチャネルで構成され、多孔質の細胞外マトリックス膜によって分離されたマイクロ流体の2チャネルプラットフォームです(図1)。同じプロトコルを用いて健康モデルとCOPDモデルの両方を構築しました。プロトコルで使用される化学物質、試薬、キットは 材料表に記載されています。
1. 層流下での肺・オン・ア・チップ共培養モデルの確立
- チップの準備
- チップクレードルを120mm四方の培養皿に、角を上に向けて正しい向きに置き、その後チップをクレードルに入れます。起動ステップ(図2)前にすべてのチップが正しく配置されていることを確認してください。
- 活性化溶液は、製造元から供給された対応するバッファーに活性化試薬粉末を溶かして、最終濃度0.5 mg/mLにします。
- チップチャネルの内側表面を活性化し、細胞外マトリックス(ECM)の結合を促進するために、約35μLの活性化溶液を底部チャネル入口から慎重に注入します。溶液が下部チャネルの出口から出始めるまでピペットを使い続けます。同じ手順を繰り返し、約50μLの溶液を上部チャネルの入口に注入します。
注: 活性化試薬粉末は光に感応します。使用直前に活性化溶液を準備し、再構成後1時間後に残った溶液は捨ててください。 - チップ表面の過剰な活性化溶液を優しく吸引して除去します。チップ表面から活性化溶液だけを除去し、チャネルから吸引しないでください。
注: 紫外線(UV)活性化前に、顕微鏡でチャネルを調べて気泡を検出してください。もし存在する場合は、活性化液で優しく洗い流してすべての気泡を取り除きましょう。 - チップをUVランプに10分間照射し、各チャンネルを対応するバッファー200μLで2回洗います。
- 上記の通りに新鮮な活性化液をピペットで両チャネルに注ぎ込み、チップをさらに5分間紫外線にさらします。
- 両方のチャネルから溶液を完全に吸引し、それぞれのチャネルを200μLのバッファーで2回洗浄し、その後Ca2⁺およびMg2⁺(DPBS -/-)を含まない200μLの滅菌冷リン酸塩緩衝生理食塩水で各チャネルを1回洗浄します。
- DPBS(-/-)にECMコーティング液を製製し、ヒトコラーゲンI型(100μg/mL)、ヒトフィブロネクチン(50μg/mL)、ヒトラミニン(50μg/mL)を含みます。1チップあたり100μLの溶液を基準体積として使用してください。
- 上部チャネルに50μL、下部チャネルに35μLを加え、同時に出口ポートからの吸引を施します。
注: 気泡がないか顕微鏡でチャンネルを調べてください。もし存在する場合は、ECM溶液で優しく洗って除去してください。 - 夜間(ON)インキュベーション中の蒸発を防ぐため、チャネル入口と出口の両方のポートに小さなECM溶液の滴を残してください。
- チップを37°Cで5%のCO₂でONでキュベートします。翌日、ECM溶液を吸引し、200μLの予熱DPBS(-/-)を37°Cで洗浄します。
- 細胞シーディングと浸漬培養
ヒトコラーゲンタイプIV(DPBSで150 μg/mL(-/-))をコーティングしたT25cmの フラスコで、気道上皮細胞拡張培地を用いて60%–70%のコンフルエンスに達するまで拡張します。
並行して、内皮細胞(EC)培地を用いて、T75cm 2 フラスコでゼラチン(DPBS(-/-))でコーティングされた2個フラスコでHPMECを展開し、90%–100%のコンバーシティに達するまで進行させます。
主要試薬および培養培地の組成については 補足表4 を参照してください。 - HPMECのシーディング
- 媒介物を吸引してください。細胞を10mLのDPBS(-/-)で洗浄します。
- 0.25%トリプシン-EDTA(1X)を3mL追加します。室温(RT)で30秒培養します。
- 12mLのEC培地(使用量のトリプシンの4×)を加えてトリプシンを不活化します。残留細胞を採取するために5 mLのEC増殖培地を加えます(最終体積=20 mL)。
- 顕微鏡で細胞の完全な剥離を確認しろ。
- トリパンブルーを使って生細胞を数えるのに~20μLを取ってください。
- 残留細胞懸濁液を 900 × gで5分間、50 mLの円錐形チューブでRTで遠心分離します。
- ペレットをEC成長培地に再懸浮させます。7×10⁶ Cells/mLに調整してください。
- 種子HPMEC(通路5)を底部チャネルに挿入します(~20μL;1.4×10個5 セル/チャネル)。
- すぐにチップを逆さまにし、37°Cで2時間、CO₂5%でキュベーションします(図3)。
- チップを元の向きに戻してください。
- 200μLの温かい(37°C)EC培地で洗います。
- 顕微鏡で取り付け確認してください。必要に応じて潜伏期間を延長してください。
- HBECのシーディング
- 媒介物を吸引してください。5mLの温かいDPBS(-/-)で洗います。
- トリプシン1mLを加えます。5%のCO₂を含んで37°Cで5分間培養します。
- 分離を細かく監視しろ。
- 1 mLの定義トリプシン阻害剤(DTI)を1:1の比率で添加してトリプシンを不活性化します。
- 気道上皮細胞拡張培地8mL(最終体積=10 mL)を加えます。
- 50mLチューブに移します。
- トリパンブルーを使って細胞計数のために~20μLを摂取してください。
- 残りのセル懸濁液を200 ×gでRTで5分間遠心分離します。
- 上清液は捨てる。
- ペレットを気道上皮細胞拡張培地に再懸浮させます。3.5 ×10 6 Cells/mLに調整してください。
- 気道上皮細胞拡張培地に50 nMの合成光安定性レチノイン酸と10 ng/mLの組換えヒト表皮成長因子(rhEGF)を補足します。
- HBEC(通路2)を上部チャネルにシードします(~35μL;1.2 ×10⁵ セル/チャネル)。
- 37°Cで5%のCO₂で4時間培養します(図4)。
- 両方のチャンネルでメディアを交換してください。
- 静的条件下で37°C、5%のCO₂で一晩(ON)培養します。
注:この段階以降は、すべての工程で脱ガス媒体のみを使用してください。脱ガスは、チップ内の気泡発生リスクを最小限に抑えるため、真空システムに接続されたステリフリップユニットで行う必要があります。
- 流れとの関係
- 上部入口貯蔵槽に、合成光安定性レチノイン酸とrhEGFを補足した温かい(37°C)気道上皮拡張培地を加えます。
- 底部の入口貯蔵槽に温かい(37°C)EC成長培地を加えます。
- 各入口貯蔵槽に3mLの培地を、各出口貯蔵槽に300μLを充填します。
- 携帯型モジュールを培養モジュールに配置します(図5)。
- ダイヤルを押して、ロータリーダイヤルで「プライム」サイクルを選択します。
- ダイヤルを押してサイクル を開始し ます。
- サイクルを進めます(~1分)。
- 各モジュールの底部、4つの流体ポートすべてに滴がないか点検してください。
- 水滴が見えない場合は「プライム」サイクルを繰り返します。
- 両方のチップチャンネルを適切な媒体で一度洗ってください。
- 気泡の発生を防ぐために、それぞれの入口と出口口に一滴ずつ残してください。
- 利き手でチップを持ち、もう一方の手でポータブルモジュールを持ちます。
- チップをトラックに滑り込ませて完全に固定します。
- 組み立てたユニットをカルチャーモジュールに入れます。
- 回転式ダイヤルを使って両チャンネルの流量を30 μL/hに設定します。
- 液体-液体界面(LLI)条件を維持すること。
- チップは液体-液体インターフェース(LLI)の下に固定され、均一な上皮層および内皮層の形成を可能にします
- ミディウムは3日に一度交換してください。排出口の貯蔵庫から培地を吸引してください。各入口貯蔵槽に新鮮培地3mLを加えます。
注: 顕微鏡で気泡がないか観察してください。もし存在すれば、チップを切り離し、メディアでチャネルをフラッシュし、再接続してください。
- 上皮細胞分化と空気液体界面培養
- 毎日顕微鏡で細胞を観察してください。
- 隙間のない均一な上皮細胞層の形成を確認し(通常3〜5日)、
- 空気-液体界面(ALI)を確立します。
- 上部の入口と出口の貯蔵庫から媒質を吸い込みます。
- トップチャネルから残留媒体を洗い流すには、回転式ダイヤルを使って流量を600μL/hに上げます
- 上部の出口貯蔵庫から急促吸引液を吸い込みます。
- 底部の取水口貯蔵庫から中質を吸引してください。
- 3 mLの上皮分化培地に10 ng/mLの血管内皮成長因子(VEGF)と1 μg/mLのビタミンCを加えます。
- ロータリーダイヤルを使ってトップチャンネルを「エア」に設定します。
- ボトムチャネル流量を30 μL/hに設定します。
- ALI培養を2週間維持してください。
- 顕微鏡で上皮分化の発達を観察してください。
- 偽層上皮の形成を確認してください。繊毛の拍動や粘液の分泌を監視してください。
- 入口および出口領域における内皮細胞形態を監視します。
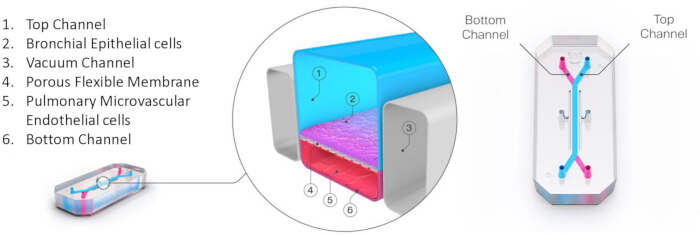
図1:マイクロ流体肺チッププラットフォーム。 2チャンネルマイクロ流体肺チップ装置の断面図(左)と上図(右)。回路図はあくまで図示目的で提供されています。 この図の拡大版はこちらをクリックしてご覧ください。
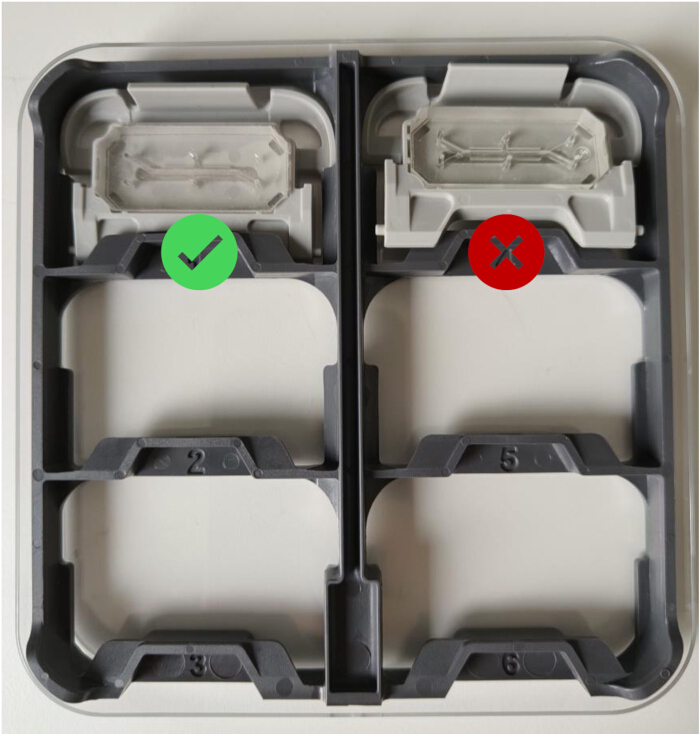
図2:チップのクレードル内の位置。 チップクレードルの正しい向きと配置を示す代表的な画像。 この図の拡大版はこちらをクリックしてご覧ください。
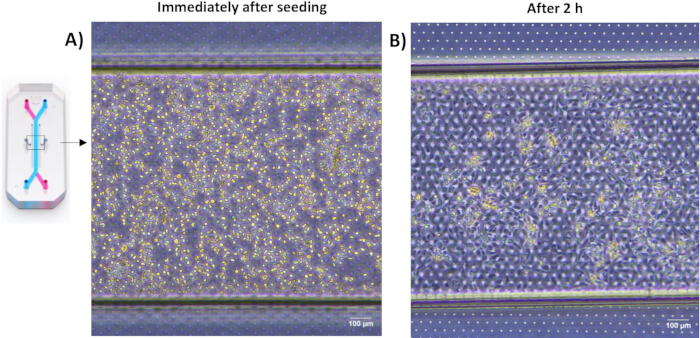
図3:マイクロ流体チップ内の内皮細胞シーディング。 シーディング直後(A)および2時間後の潜伏後(B)の代表的なブライトフィールド画像。スケールバー:100μm。 この図の拡大版はこちらをクリックしてください。
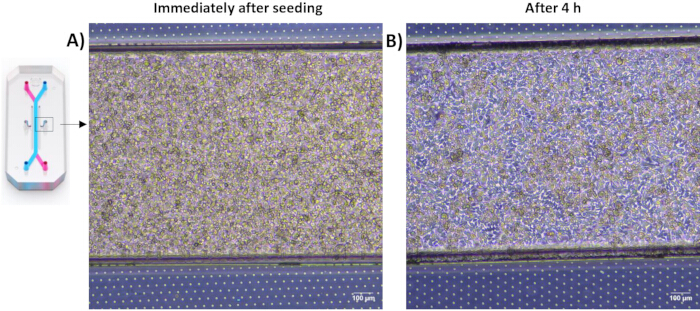
図4:マイクロフルイドチップ内の気道上皮細胞シーディング。
シード直後(A)および潜伏4時間後(B)後の気道上皮細胞の代表的な明視野画像。スケールバー:100μm。 この図の拡大版はこちらをクリックしてください。
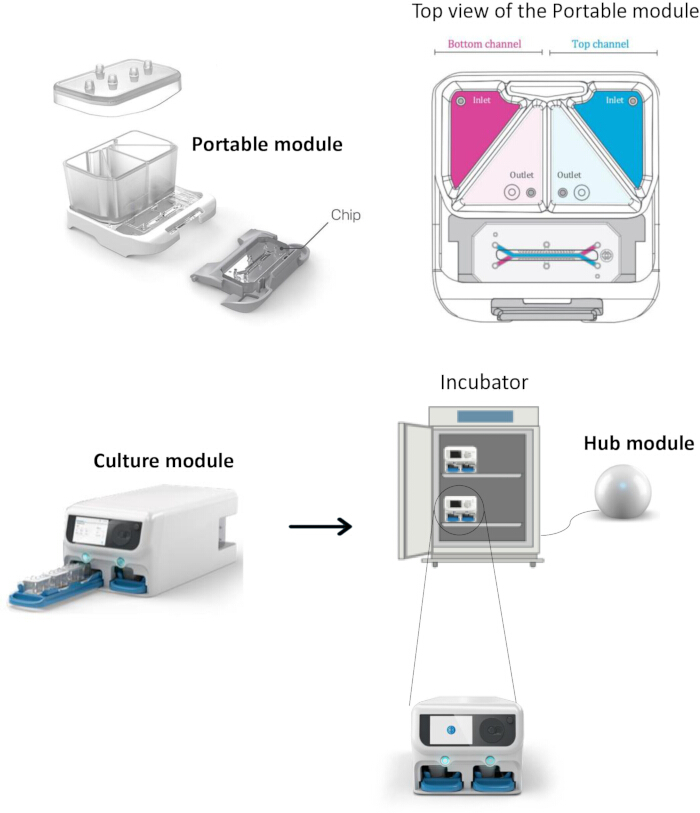
図5:マイクロ流体肺チップシステムの構成。
図の上部は、中供給および排水収集に使用される4つの貯水槽(2つの入口と2つの出口)を持つ携帯型モジュールを示しています。マイクロ流体装置は流量を調整する培養モジュールと、ガス、空気、電力を提供するハブモジュールに接続されています。回路図はあくまで図示目的で提供されています。 この図の拡大版はこちらをクリックしてご覧ください。
2. バリアの完全性の評価
バリアの完全性は2つの方法で評価されました。第一に機能的に、ALI前後および10日後に経過した蛍光標識デキストランへの透過性を評価し、第二に定性的に気管支上皮のZonula Occludens-1(ZO-1)および肺血管内皮の血管内皮カデヘリン(VE-cadherin)の免疫検出を行いました。
- 障壁関数
- 層流下で、VEGFとビタミンCを補足し、100 μg/mLの蛍光標識デキストランを含む上皮分化培地1 mLを気道チャネルの上部入口貯蔵槽に加えます。同時に、血管チャネルの下部入口貯蔵槽にトレーサーフリー培地1mLを加えます。
- トレーサーを含む培地を上部のチャンネルに導入します。回転式ダイヤルを使って両チャネルの流量を600 μL/hに設定し、3分間かけてから上下の出口貯蔵庫から培地を吸引します。
- 携帯型モジュールに接続されたチップを培養モジュールに戻します。回転ダイヤルを使って両チャネルの流量を45 μL/hに設定し、この流量を3時間維持します。
- 上部および下部の出口貯蔵庫から100μLの培地を採取し、プレートリーダーを使って蛍光強度を測定します。
- 透過率の方程式を用いて見かけの透水率(Papp)を計算します。
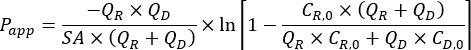
ここでSAは共培養チャネルの表面積(0.17 cm²)を表し、QR とQD はそれぞれ投与チャネルと受信チャネル内の流体流量(cm3/s)を表し、CR,0 と CD,0 はそれぞれ投与チャネルと受信チャネルで回収された濃度に対応します。
注: Papp値が1 x 10⁻⁶ cm/s未満の場合は、上皮層のトレーサーへの透水性が低いことを反映し、強いバリアの完全性を示します。この閾値はシステムメーカーが内部品質管理の手段として設定します。
- 密接合部および接着接合部の免疫検出
- ALIを2週間使ったら、ポータブルモジュールからチップを慎重に取り外してください。
- 細胞を固定し、両方のチャネルに4%パラホルムアルデヒド(PFA)を20分間RTで添加します。
注意: PFAは有毒です。認証済みの化学換気フードですべての手順を行ってください。 - 両方のチャンネルを200μLのDPBS(-/-)で2回洗い、4°Cで染色するまで保存します。
- 細胞を50μLの0.1%トリトンX-100をDPBS(-/-)に5分間RTで加えて細胞を透過させます。次に、DPBS(-/-)に50μL 0.1%トリトンX-100を10%ヤギ血清を含むブロッキングを1時間、RTで1チャネルにかけます。
- 上部(気管支上皮)チャネルに50μLのマウスモノクローナル抗ヒトZO-1一次抗体(1:100)を、下部(肺血管内皮)チャネルに50μLのウサギモノクローナル抗ヒトVE-カデヘリン一次抗体(1:600)をインキュベートします。
- 両方の抗体を抗体溶液(0.1%トリトンX-100をPBS(-/-)に1%ヤギ血清と混え合わせて希釈し、静的条件下で4°CでON培養します。
- チップを200μLのDPBS(-/-)で3回洗います。次に、各チャネルをRTで1時間インキュベートし、適切な蛍光色体結合二次抗体50μLを抗体溶液(1:500)で希釈します。ヤギ抗マウス二次抗体は上部チャネル、ヤギ抗ウサギ二次抗体は下部チャネルに置かれます。
- 両方のチャンネルを200μL DPBS(-/-)で3回洗います。4′6-ジアミジノ-2-フェニリンドール(DAPI、DPBSに1 μg/mL (-/-))をそれぞれチャネルごとに50μLで核染色を10分間RTで行います。
- 最終洗浄液200μL(-/-)でDPBS(-/-)を使い、DPBS(-/-)で暗闇で4°Cの暗闇で保存し、イメージングを終えます。
- カバースリップ(20×60mm、厚さ0.16〜0.19mm)のチップを、回転ディスクモジュール、高感度カメラ、20倍対物レンズ(NA 0.8)を搭載した倒立蛍光顕微鏡で画像化します。ポストプロセッシングには適切な画像取得および解析ソフトウェアを使用してください。
3. 表現型の解析
- チップセクションの準備
- セクション2.2.2に記載されている4%のPFAでチップを固定します。
- カミソリの刃を使ってチップの周囲のポリジメチルシロキサン(PDMS)を切り取ります。
- 両チャネルに2%の低融点アガロースを50μLのDPBS(-/-)で満たし、アガロースをRTで固化させます。
- カミソリの刃でチップを横方向に2つに切り、それぞれの半分を最適な切断温度(OCT)埋め込み媒体に埋め込み、−80°Cで保存して断片します。
- 冷凍切開
- クライオスタットを準備し、チップの半分から200μmのクライオセクションを切ります。
- チップ断片をピンセットで48ウェルプレートのウェルに集め、DPBS(-/-)を充填し、免疫染色が行われるまで4°Cで保存します。
- 免疫蛍光染色
注: 48ウェルプレートの各ステップを、基準体積として400μLを用いて行います。- 細胞を透過性化し、前述の 2.2.4節で述べたように非特異的結合を遮断します。
- 各切片を4°Cでオンに、上皮繊毛細胞(β-チューブリンIV、1:2000)または内皮細胞(CD31、1:25)に特異的な一次抗体を抗体溶液(0.1% Triton X-100 in DPBS with 1% Goat serrum)で希釈して培養します。
- DPBSで3回洗い(-/-)。
- 適切な蛍光色素結合ヤギ抗マウス二次抗体(1:500)を用いて、β-チューブリンIVおよびCD31を抗体溶液で希釈し、光から保護してRTで1時間間切片を培養します。
- 切片をDPBS(-/-)で3回洗浄し、放射治療法で10分間DAPI(DPBS中の1 μg/mL(-/-))で核染色を行います。
- 取り付け前にDPBS(-/-)で一度だけ部分を洗ってください。
- ピンセットを使って、各顕微鏡スライドにスペーサーを1つずつ置き、中央にセクションを置きます。マウントメディウムを1〜2滴加え、円形のカバースリップを置きます。
- RTで暗闇の中で乾かし、カバースリップの端を透明なネイルポリッシュでシールします。
- スライドは暗闇で4°Cの状態で保存し、画像診断が行われるまで保管してください。
- チップの断片は、回転ディスクモジュール、高感度カメラ、40倍対物レンズ(NA 1.25)を搭載した逆蛍光顕微鏡で画像化します。適切な顕微鏡ソフトウェアを使って画像を現像します。
4. RNA抽出と定量
- 層流下のチップからのセルの収集
- 2週間のALI培養後、携帯型モジュールからチップを切り離し、200μLのDPBS(-/-)を37°Cで予温して2回洗浄します。
- 下部チャネルの内皮細胞に0.25%トリプシン-EDTA(1X)35μLを加え、RTで約30秒間培養します。
- 顕微鏡で細胞を調べて、完全に剥離しているか確認してください。その後、細胞懸濁液をチューブに集め、遠心分離機で900 × gで5分間RTで加熱します。
- 細胞ペレットをフェノール系RNA分離試薬50μLに再懸浮させ、-80°CでRNA抽出まで保存します。
- フェノール系RNA分離試薬50μLを上部チャネルに直接加え、上皮細胞を溶除し、先端でポートを封じて氷上で3〜4分間培養します。
- 完全に溶解するために優しくピペットで処理し、溶解液をチューブに採取し、RNA抽出まで-80°Cで保存します。
- 両方のチャネルを顕微鏡で調べて、細胞の完全な採取を確認しましょう。
- RNA抽出
- クロロホルム(溶解用フェノール系RNA分離試薬1体積あたり0.2、サンプルあたり10μL)を加え、チューブをよく振って混ざり、氷上で2〜3分間培養します。
- 12,000 × gで4°Cで15分間遠心分離し、相を分離し、上部水相を新しいチューブに慎重に移し、間相を乱さないようにします。次に、水相に5μgのRNAフリーグリコーゲンをキャリアとして加えます。
- イソプロパノール(溶解試薬1体積あたり0.5、サンプルあたり25μL)を加え、4°Cで10分間インキュベーションし、遠心分離機で12,000 × g で4°Cで10分間浸します。
- RNAペレットは残したまま上清液を捨てます。
- RNAの洗浄と再懸濁
- RNAペレットを75%エタノール(溶解試薬1体積あたり1体積、サンプルあたり50μL)で洗浄し、短時間渦を流し、4°Cで7,500× gで5分間遠心分離します。
- 上澄液を捨て、ペレットを5〜10分間自然乾燥させます。
- RNAを30μLのRNaseフリー水に優しくピペッティングして再懸濁し、-80°Cで保存して再使用します。
- マイクロ流体チップベースの核酸分離システムを用いてRNAの完全性と定量を評価します。
結果
肺とチップの共培養モデルの確立
ブライトフィールドイメージングにより、肺オンチップ共培養系における細胞の接着と成長が時間とともに明らかになりました。気管支の気道上皮細胞は液体-液体界面(LLI)の浸水中培養で増殖し、上部チャネルに沿って均一な層を形成しました(図6A)、一方で肺の血管内皮細胞は下部チャネル全体を覆い、結合した単層を形成しました(図6B)。
共培養が確立されると、下部チャネルの入口および出口領域で内皮細胞が監視されました。これらは顕微鏡検査が可能な唯一の領域です。 図7に示すように、内皮細胞は生存能力を保ち、流路に沿って細長い形態を示していました。ALI培養を14日間行った後、健康モデルとCOPDモデルの両方で上皮層に目に見える毛様体拍動が見られました(補足動画)。予想通り、COPDモデルは健康モデルと比較して粘液生成が著しく増加した(図8)を示し、COPD病理の主要な特徴を再現しました。
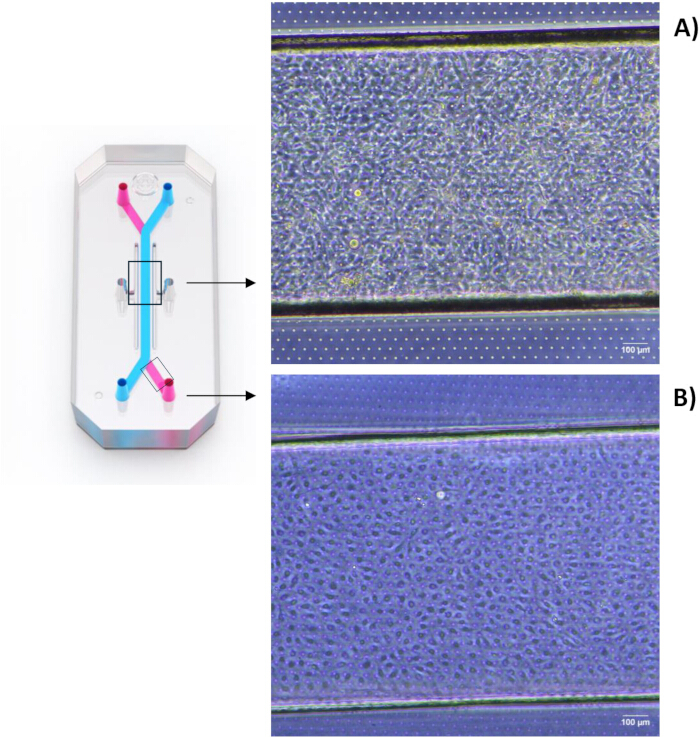
図6:マイクロ流体デバイスにおける気道上皮細胞と内皮細胞の共培養。
液体-液体界面(LLI)条件下で、多孔質膜の上部表面(A)にある一次気管支上皮細胞および下表面(B)にある一次肺微小血管内皮細胞の代表的な画像。スケールバー:100μm。 この図の拡大版はこちらをクリックしてください。
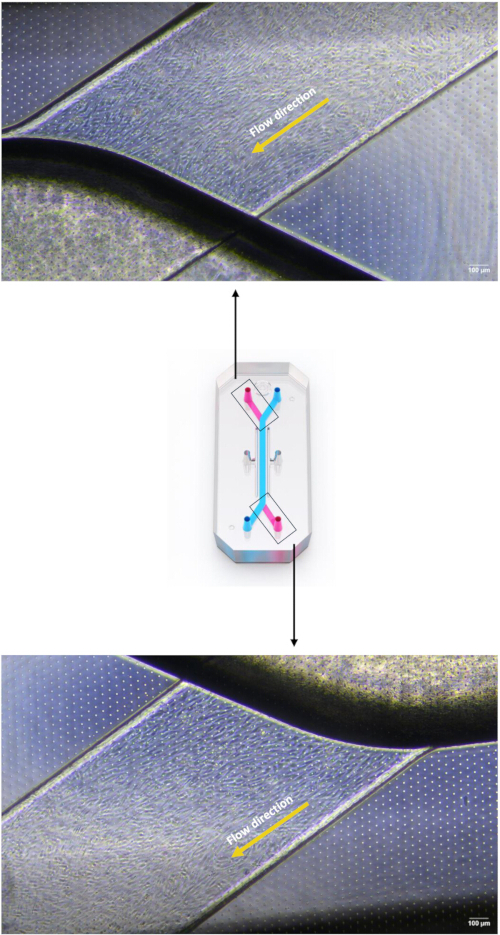
図7:空気-液体界面時の底部マイクロ流体チャネル内の内皮細胞。
空気-液体界面(ALI)時の底部チャネルの入口(上部)および出口(下部)における肺微小血管内皮細胞を示す代表的な明視野画像。スケールバー:100μm。 この図の拡大版はこちらをクリックしてください。
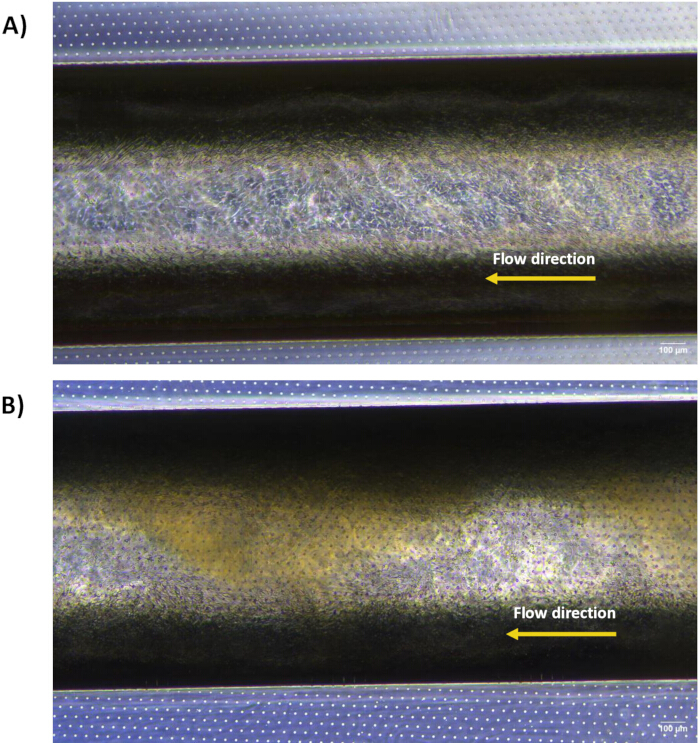
図8:気道内の粘液の蓄積。
健康(A)およびCOPD(B)共培養モデルにおける14日間の空気-液体界面(ALI)後の粘液生成を示す代表画像。気道区画の茶色い層は蓄積した粘液を表しています。スケールバー:100μm。 この図の拡大版はこちらをクリックしてください。
バリアの完全性の定量的評価
障壁の完全性の機能的評価では、健康モデルおよびCOPDモデルの両方で、陽性対照(細胞なしのECMコーティングチップ)と比較して見かけの透過性(Papp)が低いことが示されました(図9)。
細胞がない場合、高いPapp値は障壁形成が最小であることを示しました。対照的に、上皮層および内皮層が存在する場合、蛍光デキストラントレーサーはECMを通過せず、透過性が著しく低下し、強いバリアがあることを示しました。この効果はALIの前後に観察され、分化初期にバリア機能が確立されることを示しました。
図10に示すように、健康モデルではALI前の平均Papp値はすでに堅牢なバリアの完全性を示す閾値(1 × 10⁻6 cm/s)を下回っており、ALI培養中にさらに低下しました。COPDモデルでは、ALI前も平均Papp値が強い障壁範囲内にあり、10日間のALI後にわずかに増加したものの、障壁の完全性は堅牢に保たれました。
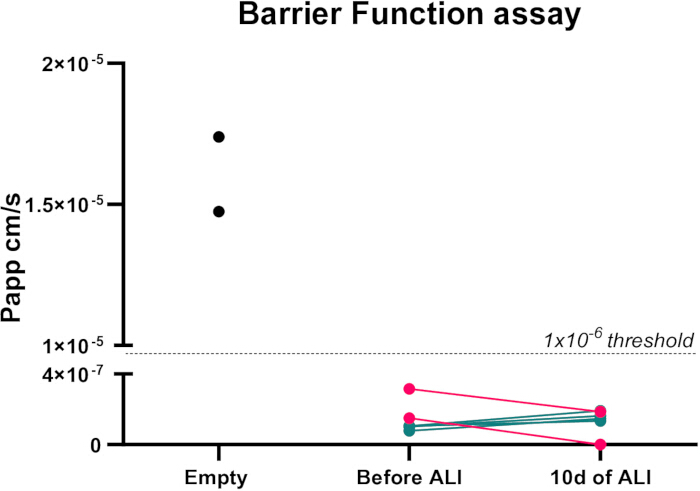
図9:肺オンチップモデルにおける障壁機能評価。
細胞なしのECMコーティングチップ(漏洩の正コントロール、黒)および健康(ピンク)およびCOPD(緑)共培養モデル(10日間の空気-液体界面(ALI)前後で測定された見かけの透過性(Papp)。各点は個々のチップを表しています。健康モデルは別々のドナー細胞を含みますが、COPDモデルは単一の患者から派生した細胞を使用します。 この図の拡大版はこちらをクリックしてご覧ください。
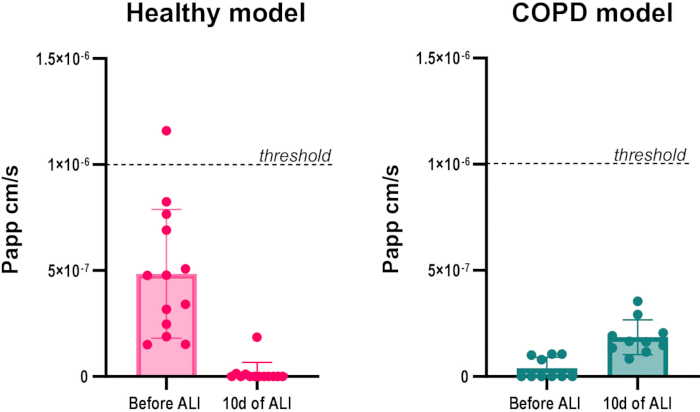
図10:健康モデルとCOPDモデルにおけるバリア機能の比較。
健康(左)およびCOPD(右)共培養モデルにおける10日間の空気-液体界面(ALI)前後の見かけ透過率(Papp)測定。各点は個々のチップを表しています。値は平均±標準差です。COPDモデルは3人の患者の細胞を含みますが、健康モデルは異なるドナーの細胞を組み合わせます。 この図の拡大版はこちらをクリックしてご覧ください。
密接合部および接着接合部の免疫検出
免疫蛍光解析により接合タンパク質の構造的組織が確認されました。ZO-1は気管支上皮細胞の境界に沿って連続的に局在を示し、上皮バリアが完全な状態であることを示しました(図11A)。同様に、VE-カデリン染色は内皮接合部での均一な分布を示し、内皮単層が合流していることと一致しました。内皮細胞は流れの方向に沿って細長い形態を示しました(図11B)。
健康モデルとCOPDモデルの間で、タイトな結合タンパク質および接着タンパク質の局在に違いは観察されませんでした。これらの発見は機能的バリアデータと一致しており、両モデルにおいて生理学的に関連性のある上皮細胞–内皮界面の存在を支持しています。
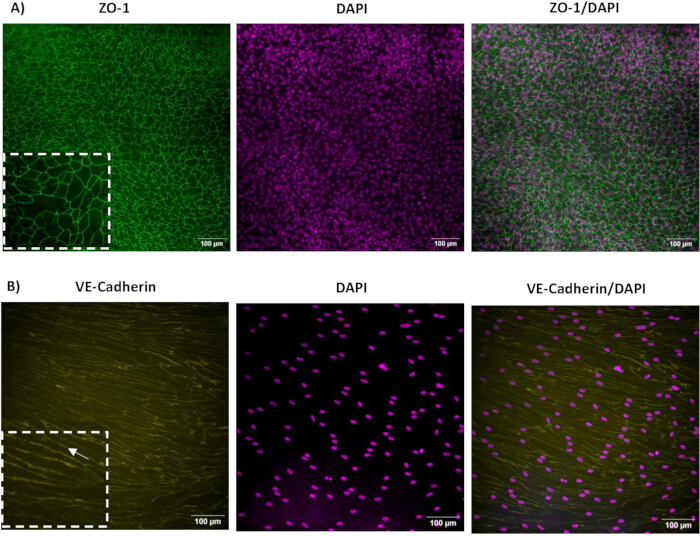
図11:肺チップ共培養モデルにおける接合タンパク質発現。
14日間の空気-液体界面(ALI)後に得られた上方ビュー免疫蛍光画像では、気道上皮区画(A)におけるZO-1局在と内皮区画(B)におけるVE-カデリン局在が示されました。核はDAPIで染色されています。矢印は流れの方向を示します。スケールバー:100μm。 この図の拡大版はこちらをクリックしてください。
表現型
チップクライオセクシングの免疫蛍光染色により、膜の頂端側にβ-チューブリンIV陽性細胞が見られ、気道上皮細胞が成熟気管支上皮の特徴である繊毛細胞への分化を示しました(図12A)。CD31染色により、膜基底側に合流した内皮単層の存在が確認されました(図12B)。これらの結果は、共培養システムが両モデルにおいて生理学的に関連した上皮および内皮表現型の確立を支持していることを示しています。
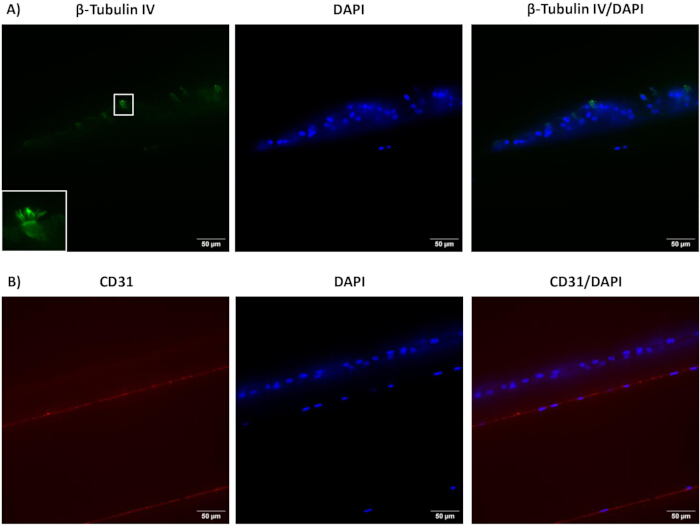
図12:肺のチップ断面の免疫蛍光画像。 空気-液体界面(ALI)を14日間行った後のチップ断面の代表的な免疫蛍光染色で、気道上皮区画(A)でβ-チューブリンIV発現、内皮区画(B)でCD31発現が示されました。核はDAPIで染色されています。スケールバー:50μm。 この図の拡大版はこちらをクリックしてご覧ください。
RNA抽出と定量
気道上皮細胞から分離されたRNAは、両モデルとも59〜135 ng/μLの濃度を得て、RNA完全性番号(RIN)11 は7.4–9.6でした。一方、微小血管内皮細胞からのRNAは12〜46 ng/μL、RIN値は9.6–10でした。データによると、両モデルとも下流の分子解析に適した高品質RNAの十分な量が得られました。
補足表1:気管支気道上皮細胞のドナー情報。 この表は、健康モデルで用いられる気管支の気道上皮細胞を示しています。このファイルをダウンロードするには、こちらをクリックしてください。
補足表2:肺微小血管内皮細胞のドナー情報。 健康モデルで使用される肺微小血管内皮細胞のドナー情報。このファイルをダウンロードするには、こちらをクリックしてください。
補足表3:患者情報。 この表は、COPDモデルで使用される気道上皮細胞および肺微小血管内皮細胞の情報を示しています。このファイルをダウンロードするには、こちらをクリックしてください。
補足表4:プロトコルで使用される主要試薬および培養培地の概要。このファイルをダウンロードするには、こちらをクリックしてください。
補足動画1:気道チャネルにおける細体拍動(健康モデル)。
空気-液体界面(ALI)を14日間行った後の毛様体拍動を示す代表的な映像。このファイルをダウンロードするには、こちらをクリックしてください。
補足動画2:気道チャネルにおける毛状拍動(COPDモデル)。
空気-液体界面(ALI)を14日間行った後の毛様体拍動を示す代表的な映像。このファイルをダウンロードするには、こちらをクリックしてください。
ディスカッション
本研究は、市販の気管支上皮および肺微小血管内皮細胞を用いた健康モデルと、移植された肺から患者由来の細胞を用いたCOPDモデルの両方を生成する肺チップ共培養システムの詳細なプロトコルを提示します。両モデルにおいて、2つの細胞型は多孔質で伸縮可能な膜に細胞型特異的細胞外マトリックス(ECM)が覆われており、生 体内 肺により近い微小環境が可能となっています。また、バリアの完全性評価、細胞表現型の評価、各区画からのRNA抽出方法も含まれています。両モデルは動的灌流および空気–液体界面(ALI)条件下で成功裏に維持され、生理学的に関連性の高い上皮–内皮バリアと完全に分化した偽層化気道上皮を得ました。内皮細胞は生 体内で観察されたように流れの方向に整列し、両区画から高品質なRNAが得られました。
この共文化システムを成功裏に確立するためには、いくつかの重要なステップが不可欠です。均一な被覆を得るためには正確な上皮細胞の播種が必要です。なぜなら、不均一な分布は表面被覆の不完全や障壁形成の妨げを引き起こす可能性があるからです。そのような場合、頂端区画は軽く吸引し、上皮細胞を再播種します。ALIの確立は、上皮層と内皮層の両方が連続した単層を形成した後にのみ行うべきであり、早期のALI曝露は血管培地の気道区画への漏れや分化障害を引き起こす可能性があります。合流が達成されなければ、ALIの設立は遅らせるべきです。
頂端培地の不完全除去やALI曝露の不均一は、上皮の成熟が不均一になる可能性があります。上部チャネルの残留媒体は、流量を600 μL/hに3〜4分間増加させることで除去できます。泡の形成は灌流を妨げ細胞の生存能力に影響を与えるもので、平衡が不十分であることが原因で起こり得ます。気泡は、流量を一時的に600μL/hに3〜4分間増やすか、持続的であればチップを外してピペットで手動で取り除くことで除去できます。COPDモデルでは、過剰な粘液の生成が気道を塞ぎ、灌流を妨げることがあります。そのような場合は、DPBSで優しく洗浄し、その後ALIを再設置することが推奨されます。
気道上皮細胞と肺内皮細胞を組み合わせた既存の共培養システムの多くは、市販の一次細胞やコラーゲンやフィブロネクチンなどの一般的なECMコーティングに依存しています10,12。これらは癒着を支えますが、気道と血管の界面の生化学的および機械的特性を部分的に再現するに過ぎません。これに対し、現在のシステムは細胞型特異的なECMコーティングを用いており、人間の肺組織により近い微小環境を提供します。
障壁機能は一般的に経上皮/経内皮電気抵抗(TEER)を用いて評価されますが、この方法は上皮の多層組織の影響を受けることがあります14。本研究では、デキストラの透過性を用いて機能的完全性を評価しました。観察されたPapp値は強い障壁の整合性の閾値(1× 10⁻6 cm/s)を下回っており、堅牢な上皮細胞–内皮界面を示していました。気道上皮は、毛様体拍動や粘液生成などの分化特徴を示し、細胞接合部におけるZO-1およびVE-カデリンの連続的な局在も見られました。さらに、両区画から高品質なRNAが一貫して得られ、細胞型特異的な下流解析が可能となりました。
この研究の重要な進展は、上皮細胞と内皮細胞の両方を同一患者から得たCOPD肺オンチップモデルの開発です。最近の知る限り、このような患者同士のマッチング共培養はこれまで報告されていません。以前の研究ではCOPD由来の上皮細胞7,8も取り入れられましたが、市販の内皮細胞に依存していたため、疾患特異的な上皮-内皮相互作用の調査は限られていました。現在のモデルは、患者特異的な細胞相互作用を保持することでこの制約を克服しています。
COPDモデルは、粘液産生の増加を含む主要な疾患特徴を再現しつつ、内皮の整列と接合部の完全性を維持しました。重要なのは、患者由来の上皮細胞と内皮細胞の共培養は、粘液産生の増加にもかかわらずバリア機能や生存可能性を損なわなかったことです。このシステムはALI条件下および継続的な灌流下で安定を保ち、長期研究への使用を支持しました。さらに、このプラットフォームは機械的な伸縮を可能にし、その生理的な重要性をさらに高めています。
このワークフローの重要な強みは、同じプラットフォーム内で健康状態とCOPDの状態を同等の実験パラメータで評価できることです。これにより、上皮分化、内皮機能、バリアの完全性における疾患関連の違いを直接評価することが可能になります。研究課題に応じて、モデルは独立して使用することも可能です。健康モデルは機構的研究や経路調節に適していますが、COPDモデルは治療評価や薬物試験のプラットフォームを提供します。各区画から高品質なRNAを個別に抽出できる能力は、細胞型特異的な分子プロファイリングをさらに可能にします。COPDモデルで患者にマッチした細胞を使用することで、無関係な細胞源を組み合わせると失われてしまう疾患関連の相互作用を保存できます。
これらの利点にもかかわらず、いくつかの制限を考慮する必要があります。肺オンチップシステムの利用には専門的な機器と技術的専門知識が必要であり、アクセスが制限されることがあります。さらに、このモデルには免疫細胞や間質細胞など、病原体や薬剤への反応に影響を与える可能性のある他の関連肺細胞タイプは現在含まれていません。しかし、このプラットフォームは循環中の免疫細胞を取り込むように適応でき、上皮および内皮区画との相互作用の研究を可能にします。患者由来のCOPD資料へのアクセスも制限され、患者間の変動が再現性に影響を与える可能性があります。さらに、過剰な粘液の生成は灌流を妨げることがあります。
本研究では循環的機械的伸縮の影響は調査されませんでしたが、今後の重要な方向性を示しています。伸縮性膜により、呼吸に関連する機械的力のシミュレーションが可能であり、これらは細胞の機能、修復、恒常性に影響を与えることが知られています15,16。これまでの研究では、機械的ひずみがナノ粒子の吸収と上皮障壁を越えた輸送を促進することが示されています10。
結論として、ここで紹介する健康モデルとCOPDの肺チップモデルは、健康と疾患における上皮細胞–内皮細胞の相互作用を研究するための生理学的に関連性の高いプラットフォームを提供します。このシステムの動的な性質により、流量条件の精密制御が可能となり、薬物検査や病原体曝露研究などの応用を支援します。このプロトコルは従来の in vitroおよび動物モデルに代わる堅牢な代替手段を提供し、トランスレーショナル呼吸器研究の進展に貴重なツールを提供します。
開示事項
著者に利益相反はありません。
謝辞
この研究はフランダース研究財団からの研究助成金(G065221N)によって資金提供されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.25% trypsin-EDTA (1X) (for endothelial cells) | Gibco | 25200-056 | 肺微小血管内皮細胞の酵素的剥離に使用。 |
| 120 mm x 120 mm 正方形細胞培養皿 | VWR | 688161 | チップ準備および取り扱い中にチップクレードルを保持するために使用。 |
| 2100 Bioanalyzer | Agilent | G2939A | RNAの品質と完全性を評価するために使用。 |
| 2-プロパノール | Sigma-Aldrich | I9516 | 抽出中にRNAを沈殿させるために使用。 |
| 4′,6-ジアミジノ-2-フェニルインドール(DAPI) | Invitrogen | D1306 | 免疫蛍光中に細胞核を染色するために使用。 |
| 50 mL コーニカルチューブ | Cellstar | 227261 | 細胞収集、遠心分離、および細胞懸濁液の調製に使用。 |
| Agilent RNA 6000 Nano Kit | Agilent | 5067-1511 | BioanalyzerでRNAの品質分析に使用。 |
| アンホテリックB | Gibco | 15290-026 | 細胞培養中に真菌汚染を防ぐために使用。 |
| 自動細胞カウンター | NanoEntek | EVE PLUS | 播種前に細胞濃度と生存率を決定するために使用。 |
| 細胞培養マルチウェルプレート、48ウェル、滅菌 | Falcon | 353078 | 染色手順中に断面を保持するために使用。 |
| 遠心機 | Hettich | 320R | 播種前に細胞をペレット化するのに使用。 |
| チップクレードル | Emulate | support@emulatebio.com | 表面活性化、コーティング、および細胞播種中にチップをサポートおよび保持するために使用。 |
| クロロホルム | Sigma-Aldrich | 366927 | RNA抽出中の相分離に使用。 |
| Cicero スピニングディスクモジュール | CrestOptics S.p.A. | 高速共焦点蛍光イメージングを実行するために使用。 | |
| カバースリップ | Epredia | BB02400600AC13MNZ0 | 共焦点イメージング中にチップをサポートするために使用。説明:24 x 60 mm、#1.5 |
| クライオスタット | Thermo Fisher Scientific | NX70 | OCT埋め込みサンプルを切断するために使用。 |
| 培養モジュール(Zoë-CM) | Emulate | support@emulatebio.com | マイクロ流体システム内の細胞培養の環境条件を制御するために使用。 |
| Define trypsin inhibitor (DTI) | Thermo Fisher | R007100 | 上皮細胞剥離後のトリプシン活性を中和するために使用。 |
| Dextran Cascade Blue 3KDa | Thermo Fisher | D7132 | バリア透過性を評価するための蛍光トレーサーとして使用。 |
| Endothelial cells Growth Medium MV2 kit | PromoCell | C-22022 | 肺微小血管内皮細胞の維持および増殖に使用。 |
| ER-1 表面活性化試薬(光感受性活性化粉末) | Emulate | support@emulatebio.com | チップ表面を活性化し、その後のコーティングに使用。 |
| ER-2 表面活性化試薬(バッファー) | Emulate | support@emulatebio.com | チップの表面活性化中にバッファーとして使用。 |
| エタノール絶対 | Thermo Fisher Scientific | 437433T | 抽出中にRNAペレットを洗浄するために使用。 |
| 蛍光プレートリーダー | Agilent | BioTek Sinergy H1 マイクロプレートリーダー | 透過性アッセイの蛍光強度を測定するために使用。 |
| ウシ皮由来のゼラチン | Sigma-Aldrich | G9391 | 内皮細胞の付着を促進するために培養表面をコーティングするために使用。 |
| Goat Anti-Mouse Alexa Fluor 488(ZO-1およびβ-tubulin IV用) | Thermo Fisher | A11001 | マウスのプライマリ抗体を緑色蛍光で検出するために使用。 |
| Goat Anti-Mouse Alexa Fluor 594(CD31用) | Thermo Fisher | A11005 | マウスのプライマリ抗体を赤色蛍光で検出するために使用。 |
| Goat Anti-Rabbit Alexa Fluor 555(VE-cadherin用) | Thermo Fisher | A21429 | ウサギのプライマリ抗体をオレンジ-レッド蛍光で検出するために使用。 |
| ハブモジュール(Orb-HM) | Emulate | support@emulatebio.com | 培養モジュールにガスと電力を供給するために使用。 |
| Human Bronchial Epithelial Cells (HBEC) | Lonza | CC-2540S | 健康な共培養モデルを確立するための気道上皮細胞として使用。 |
| Human Collagen IV | Sigma | C5533 | 上皮細胞の付着を促進するためにT25フラスコをコーティングするために使用。 |
| Human Collagen type I | Advanced Biomatrix | 5007 | チップコーティングのための細胞外マトリックス溶液の成分として使用。 |
| Human Fibronectin | Sigma-Aldrich | F0895 | チップコーティングのための細胞外マトリックス溶液の成分として使用。 |
| Human Laminin | Sigma -Aldrich | L4544 | チップコーティングのための細胞外マトリックス溶液の成分として使用。 |
| Human Pulmonary Microvascular Endothelial Cells (HPMEC) | PromoCell | C-12281 | 健康な共培養モデルを確立するための肺微小血管内皮細胞として使用。 |
| human recombinant epidermal growth factor (hrEGF) | PromoCell | C-60182 | 上皮細胞の増殖を促進するために使用。 |
| Hydrocortisone stock solution | StemCell Technologies | 7925 | 気道上皮細胞の分化をサポートするために培養培地の補足として使用。 |
| ImageJ | Fiji software | version ImageJ 1.54p | 取得した画像を処理および分析するために使用。 |
| 細胞培養用倒立顕微鏡 | Leica Microsystems | DMi1 | 培養中の細胞形態と密度をモニターするために使用。 |
| iSpacer | SUNJin Lab | IS307 | イメージング中のサンプルマウント用に定義されたチャンバーを作成するために使用。厚さ:0.3 mm。 |
| Kinetixカメラ | Teledyne Photometrics | 高解像度蛍光画像をキャプチャするために使用。 | |
| 顕微鏡カメラ | Leica Microsystems | FLEXA CAM C1 | 培養および実験中の細胞の画像をキャプチャするために使用。 |
| 顕微鏡カバーガラス円形 | Marienfeld | 0111620 | ガラススライド上のチップセクションをカバーするために使用。説明:22 mm |
参考文献
- Blume, C., et al. Cellular crosstalk between airway epithelial and endothelial cells regulates barrier functions during exposure to double-stranded RNA. Immun Inflamm Dis. , (2017).
- Sakao, S., Voelkel, N. F., Tatsumi, K. The vascular bed in COPD: pulmonary hypertension and pulmonary vascular alterations. Eur Respir Rev. , (2014).
- Shaykhiev, R., Crystal, R. G. Early events in the pathogenesis of chronic obstructive pulmonary disease: smoking-induced reprogramming of airway epithelial basal progenitor cells. Ann Am Thorac Soc. , (2014).
- Blume, C., Davies, D. E. In vitro and ex vivo models of human asthma. Eur J Pharm Biopharm. , (2013).
- Lin, C., et al. Mechanotransduction regulates the interplays between alveolar epithelial and vascular endothelial cells in lung. Front Physiol. , (2022).
- Shrestha, J., et al. Lung-on-a-chip: the future of respiratory disease models and pharmacological studies. Crit Rev Biotechnol. , (2020).
- Benam, K. H., et al. Small airway-on-a-chip enables analysis of human lung inflammation and drug responses in vitro. Nat Methods. , (2016).
- Benam, K. H., et al. Matched-comparative modeling of normal and diseased human airway responses using a microengineered breathing lung chip. Cell Syst. , (2016).
- Plebani, R., et al. Modeling pulmonary cystic fibrosis in a human lung airway-on-a-chip. J Cyst Fibros. , (2022).
- Huh, D., et al. Reconstituting organ-level lung functions on a chip. Science. , (2010).
- Schroeder, A., et al. The RIN: an RNA integrity number for assigning integrity values to RNA measurements. BMC Mol Biol. , (2006).
- Stucki, A. O., et al. A lung-on-a-chip array with an integrated bio-inspired respiration mechanism. Lab Chip. , (2015).
- Burgstaller, G., et al. The instructive extracellular matrix of the lung. Eur Respir J. , (2017).
- Srinivasan, B., et al. TEER measurement techniques for in vitro barrier model systems. J Lab Autom. , (2015).
- Fang, Y., Wu, D., Birukov, K. G. Mechanosensing and mechanoregulation of endothelial cell functions. Compr Physiol. , (2019).
- Santus, P., et al. The airways' mechanical stress in lung disease: implications for COPD pathophysiology and treatment evaluation. Can Respir J. , (2019).