Drosophila melanogasterは、老化研究における強力なモデル生物として利用されています。本プロトコルでは、寿命と機能的な健康寿命の両方について、再現性のある集団ベースの測定を行うために必要な手順を詳述します。
方法論記事
FlyTrDTパイプラインを用いたDrosophila melanogasterにおける運動健康寿命および寿命解析の半自動統合解析
* These authors contributed equally
この記事について
サマリー
要約
老化は、進行性の機能低下と寿命の短縮によって特徴づけられます。実験的研究において、これら2つのパラメータはしばしば独立して評価されます。Drosophila melanogasterでは、老化と神経変性を研究するために、寿命測定および負の走地性に基づく運動能測定が一般的に用いられています。しかし、初期の運動能と長期的な生存率を定量的に統合する標準化された枠組みは不足しています。本稿では、寿命解析と、老化個体における運動健康寿命の客観的な定量化を組み合わせた、再現可能な半自動ワークフローについて説明します。
本プロトコルでは、管理されたショウジョウバエの飼育条件、死亡率の算定、および標準化されたMP4録画(最低解像度 1280 × 720、30 frames/s)を用いたビデオベースの負の地光走性アッセイを統合しています。運動能力の定量化には、Python 3.12.1にOpenCV 4.9.0、NumPy 1.26.4、Pandas 2.2.0、およびMatplotlib 3.5.2を実装したカスタムのPythonベースパイプラインを使用します。このワークフローでは、フレームごとの重心検出を行い、運動機能の連続的な指標として有効登攀勾配(pixels/s)を抽出します。生存軌跡は、生存率を算出し、台形数値積分を行うことで生存曲線下面積(AUC)を求めることにより分析されます。初期運動能の正規化により、機能低下と全生存期間の直接的な比較が可能になります。
このワークフローの評価は、対照群およびアミロイドβ発現ショウジョウバエにおいて、半自動的な登攀勾配測定と従来のハンドスコアリングによるエンドポイント評価を比較することで行い、どちらの手法でも加齢に伴う運動機能の低下が検出されました。代表的なデータセットでは、Canton S対照群における再現性のある生存期間の軌跡と、神経変性モデルにおける測定可能な早期運動障害が示されました。本手法は、観察者のバイアスを最小限に抑え、再現性を向上させ、かつ低コストのビデオ撮影システムとの互換性を維持しています。このワークフローは、遺伝的モデル、薬理学的介入、および神経変性パラダイムに容易に適応させることができ、Drosophilaにおける統合的な加齢表現型解析のためのスケーラブルなプラットフォームを提供します。
概要
加齢は、寿命の短縮だけでなく、生理学的および行動的機能の漸次的な低下によっても特徴づけられます1。神経変性疾患においては、顕著な死亡率の上昇に先立って運動協調能の早期障害がしばしば発生し、これは潜在的な神経機能不全を反映しています2,3。キイロショウジョウバエ(Drosophila melanogaster)は、寿命が短く、遺伝学的操作が容易であり、行動アッセイが確立されているため、加齢および神経変性を研究するための強力なモデルシステムとなっています4。Drosophilaにおける寿命解析は個体の生存率を堅牢に測定することができ、一方で負の地租性(negative geotaxis)アッセイは、運動機能および加齢に伴う運動能力の低下を評価するために広く用いられています5,6。しかし、これら2つの評価項目は個別に解析されることが多く、早期の機能障害と長期的な生存軌跡を定量的に関連付ける能力が制限されています。運動機能の健康寿命(motor healthspan)と寿命を統合的に解析することで、介入が加齢速度、疾患の進行、あるいは特定の生理学的システムに影響を与えるのかどうかについて、メカニズム的な知見が得られる可能性があります。このアプローチは、顕著な死亡に先立って早期の運動欠損が生じる遺伝学的、薬理学的、および神経変性モデルに特に適しており、生存率に観察可能な差が現れる前に、機能低下を感度良く検出することを可能にします。
従来の負の地走性アッセイは、固定された時間内に定義された高さに到達した個体の割合など、エンドポイントに基づいたスコアリングに依存しています。手動スコアリングは簡便で安価である一方、観察者のバイアスが入り込む可能性があり、運動キネティクスの微妙な差異を見落とす恐れがあります。連続的な軌跡から導き出された測定値は、従来のエンドポイントベースのスコアリング手法に比べて、微細な運動機能障害を検出する感度を向上させる可能性があります。同様に、寿命アッセイでは、再現性を確保するために厳格な死亡数の集計と環境の標準化が必要です7。同一コホート内において、機能的な健康寿命の指標と生存データを統合できる、アクセシブルで再現性の高いアプローチが依然として求められています。
ここでは、標準化された寿命解析と、加齢したショウジョウバエにおける運動能力のビデオベースの定量化を組み合わせた半自動ワークフローについて説明します。オープンソースの計算ツールを用いて、フレームごとの重心検出を行い、運動機能の連続的な指標として登攀速度(pixels/s)を抽出します。生存データは、生存率を算出した後、台形近似による数値積分を行うことで、生存曲線の下面積(AUC)を求めます。初期の運動能力を正規化し、それを生存AUCと統合することで、本プロトコルにより機能低下と全寿命との直接的な比較が可能になります。このアプローチは、運動機能の健康寿命と寿命の結果を関連付けるための客観的で費用対効果の高い枠組みを提供し、ショウジョウバエにおける加齢軌跡の包括的な表現型解析を可能にします(図1)。
プロトコル
すべての実験はキイロショウジョウバエ(Drosophila melanogaster)を用いて行われ、施設内の研究室の ガイドラインに従って実施されました。本研究は無脊椎動物を対象としているため、倫理承認は不要でした。すべての手順は、無脊椎動物研究に関する施設の動物愛護ガイドラインに従って維持してください。
注意:実験用飼料は 4 °C で保存し、乾燥した状態が維持されている場合に限り、1週間以内に使用してください。ショウジョウバエは 25 °C、12:12 時間の明暗サイクル、相対湿度 約 60% の標準的な環境条件下で飼育してください。
1. 標準的なショウジョウバエ餌の調製
- 基本餌の調製
- 100 mLの蒸留水を含む容器に、コーンフラワー 6 g、酵母 5 g、D-glucose 4 g、スクロース 3 g、酵母エキス 1 g、アガー 1 g、および麦芽エキス 0.25 gを合わせる。
- スパチュラを用いて、均一な懸濁液が形成されるまで内容物を十分に混ぜ合わせる。
- 加熱用IHクッキングヒーターを用い、調製量が500 mL以上の場合は12–15分間、100–400 mLの場合は5–10分間、混合物を約 85–100 °Cまで加熱する。加熱中は絶えず攪拌する。
- 標準的な実験室の滅菌手順に従い、加熱した混合物をオートクレーブで滅菌する。
- オートクレーブ後の培地を冷却させる。温度計を使用して、温度が 50–55 °Cに達するまで監視する。
- 冷却した培地に、プロピオン酸 600 µLおよび100%エタノール 1 mLに溶解した安息香酸 100 mgを加え、十分に混ぜ合わせる。
- 注意:プロピオン酸とエタノールはともに揮発性であり、吸入または皮膚接触により刺激を引き起こす可能性があるため、手袋と保護メガネを着用し、換気の良い場所で取り扱うこと。
- 長さ 10 cm、直径 20 mmの滅菌済みバイアルに、餌を 5 mLずつ分注する。
- バイアルに蓋をせず、室温で少なくとも 5–6時間放置する。外部からハエが侵入しないよう、ティッシュペーパーで覆っておく。この工程を行うことで、培地の調製や保存条件の違いに起因する寿命測定のばらつきを最小限に抑える。
- 薬剤添加餌の調製
- ステップ 1.1.1–1.1.5に記載の手順に従い、成虫用餌を少量調製する。
- 餌を 50–55 °Cまで冷却させる。
- 蒸留水やジメチルスルホキシド(DMSO)などの適切な溶媒を用いて、所望の濃度で試験化合物のストック溶液を調製する。選択した溶媒に試験化合物を溶解させて高濃度ストック溶液を作成し、これを冷却した餌( 50–55 °C)に添加して所望の最終濃度にする。その際、処置群と対照群で溶媒濃度が同一になるように維持する。
- 均一に分散させるため、十分に混ぜ合わせる。
- あらかじめ固化させたベース餌の表面に層状に重ねる形で、薬剤含有餌を各実験バイアルに 2 mLずつ分注する。
- ベース餌の上に重ねる餌に、同量の溶媒のみ(例:処置群で使用したものと同じ最終濃度の蒸留水またはDMSO)を添加して、対照バイアルを調製する。
- ハエを導入する前に、重ねた餌を室温で完全に固化させる。
注:餌の取り扱いと保存:夜間に餌を調製した場合は、バイアルをティッシュペーパーで覆ったまま一晩室温で放置し、翌朝に綿栓を挿入する。バイアルは使用前に必ず洗浄、除染、およびオートクレーブ滅菌を行う。綿ロールは栓をする前に別途オートクレーブ滅菌しておく。綿栓の挿入は、餌が少なくとも 5–6時間完全に固まった後に行うこと。
2. アミロイドβ発現D. melanogasterの作製
- 未交尾のドライバー雌の収集および検証
- ドライバーフライラインを以下の状態に維持してください。 25 °C 処女虫の回収前に、12時間明期・12時間暗期の明暗サイクル下で飼育した。
- 二酸化炭素による短時間の麻酔を用いて、ドライバー系統から羽化したばかりの雌 flies を、午前と夕方の1日2回回収する。
- 交尾を防ぐため、採集後直ちに採集した雌を新鮮な単性バイアルに移してください。
- バイアルを~でインキュベートします。 25 °C 未処女のバリデーションのため、さらに48時間。
- 毎日バイアルを点検し、幼虫の有無を確認してください。
- 卵または幼虫の後代が存在しないことを確認し、処女個体であることを確認する。
- 遺伝的交雑に使用するため、幼虫産生の形跡が認められない雌のみを保持する。
- 遺伝学的交配のセットアップ
- 交配セットアップの当日に、二酸化炭素による短時間の麻酔を用いて、羽化したばかりのUAS-APPE693G雄成虫を回収する。
- 新鮮な餌を入れたバイアルに、処女のelav-GAL4雌20匹とUAS-APPE693G雄10匹を導入し、交配を行う。
- クロスバイアルを以下でインキュベートします。 25 °C 湿度制御下、および12時間明期:12時間暗期の明暗サイクルで。
- ショウジョウバエを交配させ、48時間 동안産卵させる。
- さらに後代が必要な場合は、成虫を新しいバイアルに移してください。
- 過密状態および世代の重複を防ぐため、産卵後に親 flies を除去する。
- 羽化するまで、標準条件下で子世代を成虫になるまで育成する。
- アミロイドを発現するF1成虫フライを使用し、β その後の寿命および健康寿命に関する実験に用いるため、ニューロン内で(導入)する。
注:elav-GAL4ドライバーは、E693G Arctic変異を持つヒトアミロイド前駆体タンパク質のパンニューロン性発現を可能にします。標準的な飼育条件下では、発生期から成体期にかけて全期間にわたり発現します。老化実験においては、一貫した遺伝的背景と適切なコントロールを用いてください。各グループ内で温度条件を一定に維持してください。
実験。以下のような低いインキュベーション温度では、 18 °C、開発中に使用することができます。
成人期に至る前の導入遺伝子に関連した病理的変化を遅延させる。
3. ショウジョウバエの回収
- 負の地磁性試験のためのショウジョウバエの収集
- 実験セットアップ前に、すべてのショウジョウバエ系統を標準的なショウジョウバエ培地を用い、25 °C、相対湿度約60%、12時間明期:12時間暗期のサイクルで維持する。
- 二酸化炭素による短時間の麻酔を用い、羽化したばかりの成体雄を2〜3日の期間内に収集する。
- 実験条件に応じて、雄を薬剤含有培地のバイアルまたは対照培地のバイアルに移動させる。
- 3日ごとに、または培地の質が低下した場合はそれより早く培地を交換する。
- 負の地磁性評価に指定された年齢になるまで、これらの条件でハエを維持する。
注:運動能力および加齢における雌雄差による変動を避けるため、負の地磁性試験には雄のみを使用する。
- 寿命試験のためのショウジョウバエの収集
- 少数のハエのグループを麻酔パッドの上で短時間麻酔する。
- 柔らかい絵筆を用いて雄を識別する。
- 寿命の測定に影響を及ぼす可能性のある長期的な生理学的影響を防ぐため、選別中の二酸化炭素への曝露を最小限に抑える。
- 実験デザインに応じて、新鮮な培地バイアルに雄10匹と雌10匹を1:1の性比で入れる。
- 選別と分注を1バッチあたり3〜4分以内に完了させる。
- 総麻酔曝露時間が9〜10分を超えないようにする。
- 注意:オペレーターへの曝露を最小限に抑え、ハエにおける麻酔誘発性の生理的ストレスの長期化を防ぐため、二酸化炭素麻酔は適切なレギュレーターと十分なラボ換気を用いて行うこと。
- 各実験条件について4〜6本の複製バイアルが準備できるまで、手順3.2.1〜3.2.6を繰り返す。
4. 寿命実験
- ショウジョウバエの移し替えと維持
- 標準的な条件下でハエを維持する。
- 過密状態、幼虫による汚染、および培地の劣化を防ぐため、定期的に新鮮な餌が入ったバイアルにハエを移し替える。
- 3日ごとに新鮮な餌へ移し替える。
- バイアル内での幼虫の成長を防ぎ、摂食条件への乱れを最小限に抑えるため、この移し替え頻度を適用する。
- すべての移し替えは麻酔なしで行う。
注:寿命実験において麻酔は、特に高齢のハエに急性死亡を誘発させる可能性があるため、避けること。
- 移し替え時の死亡判定
- 各移し替え時に、コホートの日齢を記録する。
- 古いバイアルを注意深く点検する。
- 古いバイアルに残っている死 flies の数を数えて記録する。
- 新しいバイアルに一緒に移された死 flies の数を数えて記録する。
- 二重カウントを防ぐため、これらの値を個別に記録する。
- 次の方程式を用いて、各移し替え時の総死亡数を算出する:
総死亡数 = 古いバイアル内の死 flies + 新しいバイアルに移された死 flies - 今回の移し替え時の総死亡数から、前回の移し替え時に「移された」と記録されたハエの数を引くことで、前回の移し替え以降の新規死亡数を決定する。
- この計算を用いることで、バイアル間で移されたハエが重複してカウントされないようにする。
- 生存しているが不活発なハエの識別
- 高齢のハエが動かなくなったり、仰向けになったりした場合、死亡と判定する前にバイアルの側面を軽く叩く。
- 動きがあるかどうかを観察する。
- 刺激によって動きが見られたハエは生存しているとみなす。
- 刺激によって動きを見せたハエを死亡として記録してはならない。
- 古いバイアルの培地表面に付着している生存ハエを剥がすため、バイアルを軽く叩く。
- 剥がれた生存ハエを新しいバイアルに移す。
- 剥がれた生存ハエを死亡として判定してはならない。
注:寿命の終盤における死亡ハエと不活発なハエの正確な識別は極めて重要である。死亡判定を行う前には、常に緩やかな機械的刺激を与えるべきである。
- 打ち切り基準
- バイアルからの脱走、不慮の負傷、またはハンドリング上の問題により、自然死する前に実験から脱落したハエは右側打ち切りとする。
- 打ち切りとなったハエは、脱落した当日に別の列に記録する。
- 打ち切りとなったハエを死亡として記録してはならない。
- 生存分析における死亡数カウントから、打ち切りとなったハエを除外する。
- 過度な打ち切りは実験的なバイアスを導入する可能性があるため、控えめに適用する。
注:データ入力時に「死亡」と「移された」ハエを区別することで、死亡数の水増しを防ぎ、正しい生存曲線の再構成を保証できる。
- アッセイの継続
- 実験期間中、ステップ 4.1–4.4 を繰り返す。
- 最後の生存ハエが死亡するまでアッセイを継続する。
5. 負の地向性実験
- ハエの準備
- CO₂麻酔を用いずに、実験用餌入りバイアルからハエを回収する。
- 脱走を防ぐため、小さな漏斗を使用して、ハエを清潔なクライミングチューブ(負の走地性チューブ)にそっと移す。
- アッセイを開始する前に、ハエをテストチャンバー内で5分間順化させる。
- 概日リズムによる変動を最小限に抑えるため、すべてのクライミングアッセイを午後など、一日の同じ時間帯に実施する。
注:光強度は運動行動を変化させる可能性があるため、テスト中は直射日光を避けること。
- クライミングチューブのセットアップ
- 高さ12 cm、直径2 cmの透明な円筒形クライミングチューブを使用する。
- チューブの底から10 cmの位置に水平線を引く。
- ビデオトラッキングを容易にするため、チューブを均一な白い背景に対して垂直に配置する。
- スマートフォンまたはデジタルカメラを安定したスタンドに固定する。
- チューブ全体がフレーム内に収まっていることを確認する。
- アッセイ手順
- すべてのハエが同時に底に落ちるよう、固い表面に置いたフォームパッドまたはマウスパッドの上で、チューブを3回強く叩く。
- 直ちに、約30 frames/sで10–12 sの間ビデオ録画を開始する。
- ハエを10 sの間自由に登らせる。
- バイアルあたり少なくとも3回の独立した試行を記録する。
- 試行間に10分の休息時間を設ける。
- コントロール群、薬物投与群、溶媒コントロール群などの各実験条件についてアッセイを行う。
- 10 s以内に10 cmのラインに到達または通過したハエの数を数える。
- 10 cmに到達したハエの数をEとして記録する。
- テストした生存ハエの総数をTとして記録する。
- クライミング活性率を(E/T) × 100として算出する。
- 3回の試行の平均値を算出する。
- 値を平均値 ± SDとして報告する。
- Pythonスクリプトを用いた半自動クライミング解析
- ビデオ取得
- 高さ12 cm、直径2 cmの透明なクライミングチューブに垂直に配置したスマートフォンカメラを使用して、負の走地性アッセイを録画する。スマートフォンまたはデジタルカメラを用い、約30 frames/s、最低解像度1280 × 720ピクセルでビデオを録画する。カメラをクライミングチューブから約15–20 cmの固定距離に配置し、すべての録画で同じ取得ジオメトリを維持する。ピクセルベースの測定における内部空間キャリブレーションの基準として、既知のチューブの高さ(12 cm)を使用する。
- チューブを均一な白い背景に配置する。
- 10–12 sの間ビデオを録画する。
- すべての録画において照明条件を一定に保つ。
- すべての録画においてカメラ距離を一定に保つ。
- すべての録画においてチューブの配置を一定に保つ。
- 重心検出の変動を最小限に抑える。
- 録画したビデオを.mp4形式で保存する。
- 録画したビデオを解析用のデスクトップコンピュータに転送する。
- Pythonによるビデオ処理
- Supplementary File 1として提供されるカスタムの社内製Pythonスクリプトを使用してビデオを解析する。Python 3.12.1を用い、OpenCV (cv2) version 4.9.0、NumPy version 1.26.4、Pandas version 2.2.0、Matplotlib version 3.5.2、およびScikit-learn version 1.4.2を使用してすべての解析を行う。
- Python環境またはコマンドラインインターフェースからスクリプトを実行する前に、Supplementary File 1内で入力ビデオパスと出力ディレクトリを指定する。
- VIDEO_PATHおよびOUTPUT_CSV変数を編集した後、python climbing_analysis.py を使用してスクリプトを実行する。
- フレーム処理とオブジェクト検出にはOpenCV (cv2) を使用する。
- 数値計算にはNumPyを使用する。
- データエクスポートにはPandasを使用する。
- 可視化にはMatplotlibを使用する。
- 各ビデオをフレームごとに処理する。
- OpenCVのVideoCapture関数を使用してビデオを読み込む。
- 個々のフレームを順次処理する。
- フレームをグレースケールに変換する。
- ガウスぼかしを適用して背景ノイズを低減する。
- 二値反転モードで大津の二値化を適用し、背景からハエをセグメント化する。
- 形態学的オープニングおよびクロージング操作を行い、小さなアーティファクトの除去と輪郭の隙間の充填を行う。
- 背景のアーティファクトや小さなノイズ粒子を除外するため、最小輪郭面積しきい値60 pixels2を超える輪郭を特定する。
- 有効な各輪郭に対して空間モーメントを算出する。
- 有効な各輪郭について、重心座標xおよびyを決定する。
- 1つのフレーム内で複数のハエが検出された場合は、重心座標を平均化する。
- フレームあたり1つの平均コホート位置を取得する。
- Supplementary File 1として提供されるカスタムの社内製Pythonスクリプトを使用してビデオを解析する。Python 3.12.1を用い、OpenCV (cv2) version 4.9.0、NumPy version 1.26.4、Pandas version 2.2.0、Matplotlib version 3.5.2、およびScikit-learn version 1.4.2を使用してすべての解析を行う。
- 品質管理評価
- 検出された輪郭が録画全体を通じて可視のハエと一致していることを確認し、ハエのセグメンテーションが成功したことを検証する。
- 均一な白い背景と安定した照明条件を使用し、ハエと背景の間に十分なコントラストがあることを確認する。
- 過度なグレア、影、チューブの動き、激しいハエの重なり、またはチューブの視認性不全を含むビデオは除外する。
- 録画の大部分で重心トラッキングが失敗した場合や、しきい値処理によって持続的な背景アーティファクトが生じた場合は、解析に不適切であると判断する。
- クライミング指標の抽出
- ステップ5.3.7で説明した通りにクライミングスコアを手動で算出する。
- クライミング高さを、初期と最終の垂直方向の重心位置の差としてピクセル単位で算出する。
- 平均速度を、総軌跡長を録画時間で除した値としてpixels/sで算出する。
- ピーク速度を、連続するフレーム間の最大瞬間変位としてpixels/sで算出する。
- 軌跡長を、フレーム間で移動した累積距離としてピクセル単位で算出する。
- 軌跡面積を、すべての重心位置を囲む凸包の面積としてpixels2で算出する。
- 方向転換数を、水平方向の方向転換回数として算出する。
- 停止数を、連続するフレーム間の重心変位が停止距離しきい値3ピクセル未満であるフレーム数として算出する。
- 垂直位置を時間の関数としてプロットし、能動的なクライミング性能の客観的な指標を得る。
- 録画の能動的クライミング相において、1秒のローリング線形回帰ウィンドウを用いて、クライミングスロープをpixels per secondで算出する。
- 生存解析と統合するための主要な運動性能指標として、このスロープ値を使用する。
- クライミング高さ、平均速度、ピーク速度、軌跡長、軌跡面積、方向転換数、停止数、およびクライミングスロープを含む定量化された運動指標を.csvファイルとしてエクスポートする。品質検証および後続解析のため、スロープの可視化プロットを.png画像ファイルとして保存する。
- ビデオ取得
6. 初期の運動機能の健康状態と生存分析の統合
- 生存データを、群、日、生存ハエ数の列を含む.csvファイルとしてエクスポートします。
- 生存個体数を初期のコホートサイズで除することで、各時点における各群の生存率を算出する。
- 生存率の時間経過に対する台形法による数値積分を用いて、生存曲線下面積(AUC)を算出する。
- 各群の7日目の登攀勾配を含む.csvファイルとして、運動パフォーマンスデータをエクスポートしてください。
- 各群の7日目の傾斜値を対応する対照群の傾斜値で除することで、7日目の運動パフォーマンスを対照群(Canton S)に対して正規化します。
- 各遺伝子型について、正規化された7日目の運動機能値と、対応する生存AUC値を統合してください。
- 早期の運動機能低下と生存アウトカムとの関係を評価するため、正規化した7日目の運動パフォーマンスと生存AUCの記述的比較を行う。
- 正規化された7日目の運動パフォーマンスおよび生存AUC値のグラフィカルな可視化を生成する(補足ファイル 2).
注:生存能と運動統合のすべての解析は、提供されるカスタムPythonスクリプトを用いて実施してください。 補足ファイル 2 データハンドリングとデータセットの統合にはPandasを、台形法による数値積分にはNumPyを、そしてグラフによる可視化にはMatplotlibを使用してください。
7. 統計解析
- 生物学的反復 vial から得られた代表的なデータセットとして、運動能および生存率の測定値を提示してください。
- 運動能の測定値は、独立した登攀試験の平均値として報告してください。
- 登攀速度(pixels/s)および生存率の AUC 値をグラフで可視化し、運動パフォーマンスと生存結果の代表的な関係を示してください。
結果
標準化された飼育条件下での再現性のある寿命プロファイル
管理された環境条件(25 °C、湿度 60%、12時間明期:12時間暗期サイクル)で、調製直後の標準食を用いてショウジョウバエを維持したところ、対照群は独立した実験間で一貫した生存曲線を示した。Canton S 対照群のハエは、中央値で約 65–72 日の寿命を示し、最大生存期間は 75 日に達した(図 2)。寿命実験は、1条件につき 20 匹のハエを含む生物学的レプリケートを 2 回ずつ実施した。標準化された環境および飼料条件下で得られた代表的な生存曲線は、対照群において再現性のある寿命プロファイルを示した。
対照的に、汎ニューロンでアミロイドβを発現させたショウジョウバエでは、Canton S対照群と比較して生存率の低下が認められ、これはショウジョウバエのアルツハイマー病モデルで以前に報告された神経変性表現型4,5,6と一致していた。
餌の品質が低下したり、取り扱い条件に不整合があったりすると、期待を下回る寿命の結果が生じる可能性があります。このような条件下では、最初の7~10日以内に早期死亡率が急増し、バイアル間のばらつきの増大(>25%)が検出されました。これは、実験の再現性が損なわれ、生物学的反復間の整合性が低下したことを示しています。
半自動登攀解析により検出された加齢依存的な運動機能低下
従来の手動による負の地向性スコアリングにより、Canton S対照群と比較して、アミロイドβ発現ハエにおける加齢依存的な運動機能低下が検出された(図 3)。7日目では、登攀能は群間で概ね同等であったが、28日目までに、アミロイドβ発現ハエは対照群のハエと比較して登攀活性の低下を示した。対照群のコホートは、加齢の時間経過を通じて比較的安定した登攀能を維持した。これらの手動スコアリングによる行動傾向は、半自動FlyTrDTパイプラインによる登攀勾配値の減少と一致しており、従来のエンドポイントスコアリングおよび計算追跡ワークフローと同様の加齢依存的な傾向を示した(図 4)。アミロイドβ発現ハエで観察された運動機能低下は、従来の負の地向性アッセイを用いたショウジョウバエ神経変性モデルで報告されている既知の加齢依存的な行動障害と一致している6,7。
FlyTrDTを用いた半自動登攀分析により、対照群のハエでは初期の運動機能が維持されていることが明らかになった。7日目において、対照群のハエは平均登攀傾斜が86.64 pixels/sであり、活動的な登攀相において上方向への変位が持続していたことが示された(図4)。28日目までに傾斜はほぼゼロ(−1.50 pixels/s)となり、これは加齢に伴う速度低下と一致していた。
対照的に、アミロイド-β発現 flies では、早期に運動機能障害が認められた。7日目において、climbing slope は 34.25 pixels/s まで減少し、これは正規化後の対照群のパフォーマンスの約 39% に相当した。28日目までには、climbing slope は −72.25 pixels/s まで大幅に低下し、上方への運動能の低下が示された。
勾配ベースの指標は、活動的な登攀セグメントを捉え、初期の驚愕潜伏期、プラトー相、および確率的な運動アーティファクトによる寄与を低減します。正の勾配は正味の上方への移動を示し、ゼロに近い勾配は垂直方向の変位が限定的であることを示し、負の勾配は正味の下方への変位を示します。これらの代表的な軌跡は、年齢を一致させた対照群と比較して、アミロイドβ発現ハエにおける漸進的な運動機能低下を示しています。
最適な記録条件下において、FlyTrDTパイプラインは、安定した輪郭セグメンテーションと一貫した垂直変位プロファイルを持つ連続的な重心軌跡を生成した(図4A)。アミロイドβ発現 flies における運動能力の低下は、上方向への軌跡の持続性の低下および傾斜値の低下として反映された(図4B–D)。過度なグレア、不安定なチューブ配置、不均一な照明、または不十分な背景コントラストで記録されたビデオでは、重心軌跡の不連続性や断続的なトラッキングアーティファクトが生じたため、品質管理評価の際に除外した。
初期運動能と生存結果の関連性
初期運動能と生存結果との関連性を調べるため、遺伝子型間で正規化した7日目のクライミング・スロープ値と生存AUC(曲線下面積)を比較した(図5)。初期運動能が維持されていた対照群のハエ(正規化運動指数 = 1.0)は、より高い生存AUC値(48.2)を示した一方、初期運動能が低下していたアミロイドβ発現ハエ(正規化運動指数 = 0.395)は、より低い生存AUC値(24.65)を示した。代表的な運動データセットは、条件ごとに2本の生物学的反復バイアルから作成した。これらの代表的なデータセットは、アミロイドβ疾患モデルにおいて、初期運動能の低下と生存期間の短縮との間に関連があることを示唆している。分析した代表的な遺伝子型は2種類のみであるため、これらの結果は統計的な検出力を持つ予測相関としてではなく、記述的に提示している。
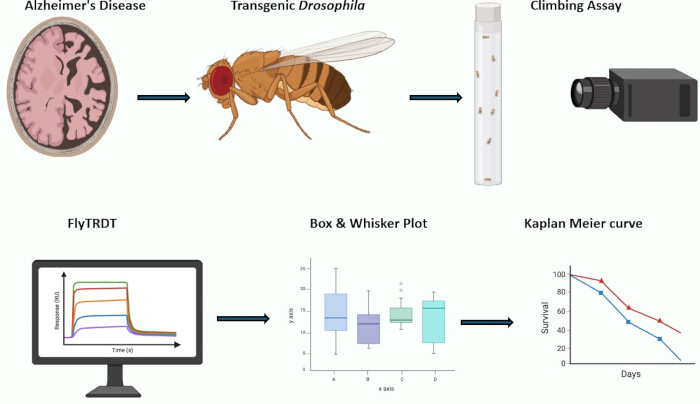
図1: 運動機能の健康寿命指標と生存解析を統合した、半自動FlyTrDTパイプラインのワークフロー概要。 このワークフローには、標準化されたハエの飼育と寿命解析、手動および半自動の負の走地性評価、クライミングビデオからのフレームごとの重心抽出、クライミング勾配(pixels/s)の算出、生存曲線下面積(AUC)解析、および運動性能と生存結果の統合が含まれる。この図の拡大版を表示するには、ここをクリックしてください。
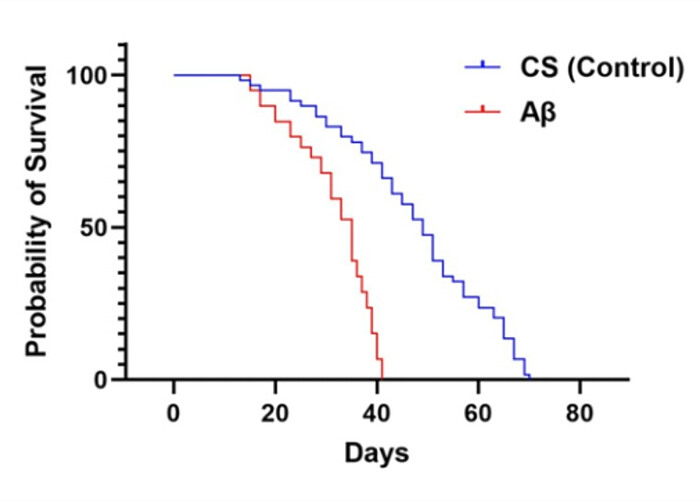
図 2: Canton S 対照群およびアミロイドβ発現ショウジョウバエのカプラン=マイヤー生存分析。生存曲線は、標準化された環境および食事条件下での寿命の推移を示している。Canton S 対照群のショウジョウバエは、全ニューロンでアミロイドβを発現するショウジョウバエと比較して生存期間が延長しており、後者は加齢に伴う各時点で寿命の短縮が認められた。データは、各条件につき2つの生物学的レプリケートバイアルから得られた代表的な生存推移を示している。こちらのリンクをクリックして、この図の拡大版を表示してください。
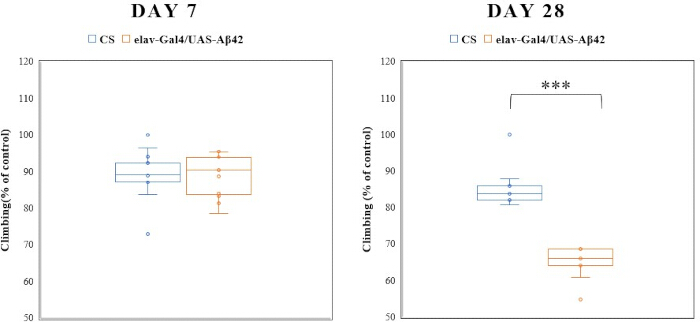
図3: 対照群およびアミロイドβ発現ショウジョウバエにおける、7日目および28日目の手動負地走性のパフォーマンス。 箱ひげ図は、10秒以内に10 cmの閾値を越えたハエの割合として表した代表的な登攀能測定値を示している。Canton S (CS) 対照群のハエは、加齢の各タイムポイントを通じて比較的安定した登攀能を維持したが、アミロイドβ発現ハエでは28日目までに登攀能の低下が認められた。各点は個別のバイアルの測定値である。代表的なデータセットは、条件あたり2つの生物学的反復バイアルから作成された。 こちらの図の拡大版を表示するには、ここをクリックしてください。
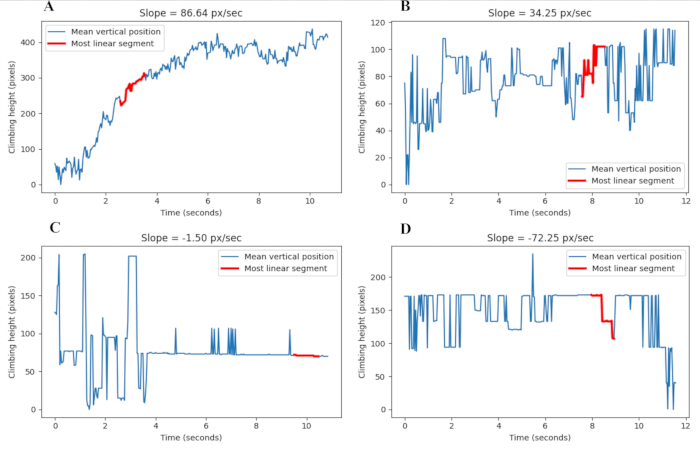
図 4: 対照群およびアミロイドβ発現ショウジョウバエにおける登高軌跡と能動的登高傾斜の半自動抽出。FlyTrDTトラッキングパイプラインを用い、負の地走性ビデオから代表的な平均垂直位置軌跡を抽出した。青色の線は、検出されたショウジョウバエのフレームごとの平均垂直重心位置の時間経過を示し、赤色のセグメントは、ローリング線形回帰ウィンドウを用いて特定された代表的な能動的登高セグメントを示す。傾斜値はpixels/sで表される。(A) 7日目のCanton S対照群ショウジョウバエ。(B) 7日目のアミロイドβ発現ショウジョウバエ。(C) 28日目のCanton S対照群ショウジョウバエ。(D) 28日目のアミロイドβ発現ショウジョウバエ。代表的な軌跡は、条件ごとに2つの生物学的反復バイアルから生成された。こちらのリンクから本図の拡大版をご覧いただけます。
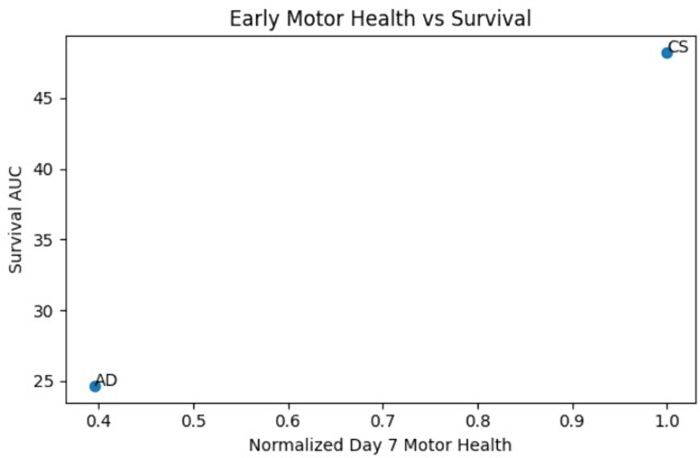
Figure 5: アミロイドβ毒性のショウジョウバエモデルにおける初期の運動能力と生存結果の関連性。 Canton S (CS) 対照群のハエおよびアミロイドβ発現 (AD) ハエ (n = 2) について、正規化した7日目の登攀勾配値を生存曲線下面積 (AUC) に対してプロットした。対照群のハエは、アミロイドβ発現ハエと比較して、初期の運動能力が高く、生存AUC値が増加していた。これらの代表的なデータセットは、初期の運動能力と生存結果との関連性を示している。こちらのリンクをクリックして、この図の拡大版を表示してください。
補足ファイル 1:負の走地性ビデオから半自動的に運動機能を定量化するために使用される、PythonベースのFlyTrDT登攀解析スクリプト。このスクリプトは、フレームごとの画像処理、重心検出、軌跡抽出を行い、登攀勾配、速度、軌跡長、軌跡面積、停止回数、および方向転換回数を含む登攀指標を算出します。こちらのリンクをクリックしてファイルをダウンロードしてください。
補足ファイル 2:運動機能の健康寿命および寿命データの統合のためのPythonスクリプト。このスクリプトは、生存率の算出、台形法による曲線下面積(AUC)解析、7日目の登攀勾配値の正規化、データセットの統合、および運動能力と生存結果のグラフ可視化を行います。こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
本稿では、Drosophila melanogasterにおける寿命解析と半自動的な運動健康寿命定量化を統合したプロトコルを提示します。寿命測定と運動能力測定を信頼性高く統合するには、生物学的反復間での環境の一貫性、餌の品質、および標準化されたハンドリング手順が極めて重要です7。餌の乾燥度のばらつき、移し替えの遅延、または死亡個体数の不正確な記録は、早期死亡の急増やバイアル間の変動増大を招く可能性があり、その結果、生存曲線の構築や老化表現型の後続の解釈に影響を及ぼします。
負の地光走性アッセイでは、ビデオ処理中の信頼性の高い重心検出を確実にするために、一定の照明条件、カメラの位置、およびチューブの配置が必要です。麻酔は寿命と運動性能の両方に影響を及ぼす可能性があるため、分取中の過剰なCO₂曝露は最小限に抑える必要があります。同一コホートで反復的な行動測定を行う場合は、概日変動を低減させるため、一日のうち同じ時間帯にアッセイを実施してください。背景のコントラストが不十分であったり、照明が不均一であったりすると、自動解析中のしきい値処理や輪郭検出が妨げられる可能性があります。ビデオ処理中に輪郭の断片化や不安定な重心軌跡が観察された場合は、背景のコントラストを改善し、グレアを減らし、カメラの位置を安定させ、記録全体を通して均一な照明を維持してください。しきい値処理による持続的なアーティファクトは、記録角度の調整、影の削減、またはクライミングチューブ全体がフレーム内で常に可視であることを確認することで最小限に抑えることができます。チューブ内でのショウジョウバエの過剰な密集は、正確な重心推定を妨げる可能性があるため、実験間でコホートサイズを一定に保つことで最小限に抑える必要があります。
従来の陰性地表走性アッセイでは、通常、固定された時間間隔内に事前定義された高さまで到達したハエの割合を定量化しており、加齢や神経変性に伴う運動能低下の評価に広く用いられています5,6。対照的に、本研究の半自動ワークフローでは、上方への移動から能動的な登攀相を抽出し、フレームごとの重心軌道から能動的登攀勾配(pixels/s)を算出します。重心位置は各フレーム内で検出されたすべてのハエで平均化されるため、個々の運動軌道やハエ個体間の行動の異質性は分解されません。このアプローチにより、エンドポイントに基づく手動スコアリングに影響を与える驚愕反応の潜時、一時的な停止、および凝集行動による寄与が軽減されます。従来のエンドポイントベースのスコアリングとは異なり、本ワークフローでは連続的な上昇勾配(pixels/s)の測定値が得られるため、年齢や遺伝型による運動能低下の定量的な比較が可能になります。同様の計算論的トラッキング手法は、自動運動定量化プラットフォームを用いたDrosophilaの行動解析における客観性と一貫性を向上させるために、ますます適用されるようになっています8,9,10,11,12。
さらに、いくつかの制限事項を考慮する必要があります。ピクセルベースの登攀勾配(pixels/s)の測定は、実験全体を通して一貫したカメラキャリブレーションと記録ジオメトリに依存します。カメラの距離や解像度の違いが絶対的な勾配値に影響を与える可能性があるため、内部コントロールによる正規化が必要となります。また、本研究で提示したアミロイドβモデルにおいて、初期の運動機能低下は生存率の低下と定性的に関連していましたが、他の遺伝子型、介入、または薬理学的治療を用いたより広範な検証を行うことで、運動パフォーマンスと生存結果との関係性の解釈がより強固なものになります。ここで提示した代表的なデータセットは、ワークフローの実装と解釈を示すことを目的としており、疾患の文脈全体にわたる汎用的な予測モデルを確立することを意図したものではありません。
これらの限界はあるものの、本プロトコルは、老化研究における機能的な健康寿命指標と生存結果を関連付けるための、再現性があり費用対効果の高い枠組みを提供します。この手法は、遺伝子操作、薬剤スクリーニングパラダイム、および死亡に先立って機能低下が起こる神経変性モデルに容易に適応させることが可能です。登攀勾配(pixels/s)の客観的な定量化と標準化された生存分析を統合することで、このアプローチはDrosophilaにおける老化軌跡の包括的な表現型解析を促進します。今後、さらなる神経変性遺伝子型、薬理学的介入、および縦断的な行動データセットを組み込んだ研究により、統合的な健康寿命解析における本ワークフローの有用性がさらに強化されると考えられます13,14。
開示事項
著者に開示すべき事項はありません。
謝辞
本研究は、Amrita Vishwa Vidyapeetham、AmritapuriのAmrita School of Biotechnologyからの資金提供を受けて実施されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| アガー | Himedia | GRM666 | 凝固剤 |
| 安息香酸 | Himedia | GRM488 | 抗菌保存剤 |
| Canton-S | Bloomington Drosophila Stock Center | BDSC #1 | 野生型参照株 |
| クライミングチューブ | 自作 | N/A | 透明円筒チューブ、高さ 12 cm × 直径 2 cm、透明プラスチックまたはガラス製 |
| コーンフラワー | 地元供应商 | N/A | ショウジョウバエ餌調製用 |
| デスクトップ/ノートパソコン | メーカー不問 | ユーザー定義 | 最低デュアルコアプロセッサ、≥8 GB RAM、Python 3.x 対応オペレーティングシステム |
| D-グルコース | Himedia | MB037 | ショウジョウバエ餌成分 |
| elav-GAL4 | Bloomington Drosophila Stock Center | BDSC #458 | 汎ニューロンGAL4ドライバー |
| Matplotlib | オープンソースライブラリ | Version 3.5.2 | プロットおよび可視化 |
| NumPy | オープンソースライブラリ | Version 1.26.4 | 数値計算 |
| OpenCV | オープンソースライブラリ | Version 4.9.0 | ビデオ処理 |
| Pandas | オープンソースライブラリ | Version 2.2.0 | データ処理 |
| プロピオン酸 | Himedia | GRM3658 | 抗真菌保存剤 |
| Python | Python Software Foundation | Version 3.12.1 | 解析環境 |
| Scikit-learn | オープンソースライブラリ | Version 1.4.2 | 線形回帰分析 |
| スマートフォンカメラ / デジタルカメラ | メーカー不問 | ユーザー定義 | 最低 30 frames/s 記録、安定したフォーカス、垂直配置、最低 1280 × 720 解像度 |
| スクロース | Himedia | GRM601 | ショウジョウバエ餌成分 |
| UAS-APP.Aβ.E693G | Bloomington Drosophila Stock Center | BDSC #33774 | ヒト APP Arctic 変異モデル |
| 酵母 | Himedia | RM027 | 栄養補助剤 |
参考文献
- López-Otín C, et al. The hallmarks of aging. Cell. 2013;153(6):1194-217.
- Caligiore D, Giocondo F, Silvetti M. The Neurodegenerative Elderly Syndrome (NES) hypothesis: Alzheimer and Parkinson are two faces of the same disease. IBRO Neurosci Rep. 2022;13:330-43.
- Buchman AS, Bennett DA. Loss of motor function in preclinical Alzheimer’s disease. Expert Rev Neurother. 2011;11(5):665-76.
- Sivanantharajah L, Mudher A, Shepherd D. An evaluation of Drosophila as a model system for studying tauopathies such as Alzheimer’s disease. J Neurosci Methods. 2019;319:77-88.
- Jones MA, Grotewiel M. Drosophila as a model for age-related impairment in locomotor and other behaviors. Exp Gerontol. 2011;46(5):320-5.
- Gargano JW, Martin I, Bhandari P, Grotewiel MS. Rapid iterative negative geotaxis (RING): a new method for assessing age-related locomotor decline in Drosophila. Exp Gerontol. 2005;40(5):386-95.
- Linford NJ, Bilgir C, Ro J, Pletcher SD. Measurement of lifespan in Drosophila melanogaster. J Vis Exp. 2013;(71):50068.
- Spierer AN, Yoon D, Zhu CT, Rand DM. FreeClimber: automated quantification of climbing performance in Drosophila. J Exp Biol. 2021;224(2).
- Taylor MJ, Tuxworth RI. Continuous tracking of startled Drosophila as an alternative to the negative geotaxis climbing assay. J Neurogenet. 2019;33(3):190-8.
- Cao W, et al. An automated rapid iterative negative geotaxis assay for analyzing adult climbing behavior in a Drosophila model of neurodegeneration. J Vis Exp. 2017;(127):56507.
- Liu H, et al. Automated rapid iterative negative geotaxis assay and its use in a genetic screen for modifiers of Aβ42-induced locomotor decline in Drosophila. Neurosci Bull. 2015;31(5):541-9.
- Rhodenizer D, et al. Genetic and environmental factors impact age-related impairment of negative geotaxis in Drosophila by altering age-dependent climbing speed. Exp Gerontol. 2008;43(8):739-48.
- Tsintzas E, Niccoli T. Using Drosophila amyloid toxicity models to study Alzheimer’s disease. Ann Hum Genet. 2024;88(5):149-65.
- O’Keefe L, Denton D. Using Drosophila models of amyloid toxicity to study autophagy in the pathogenesis of Alzheimer’s disease. Biomed Res Int. 2018;2018:5195416.
再版と許可
この記事は公開されました
動画は近日公開