このプロトコルは、大 腸菌 からのヒドロフォビンSC16の組換え生成と精製を記述し、その自己組織化を監視するための蛍光ベースのアッセイを提供します。
この記事について
サマリー
要約
ヒドロフォビンは、疎水性・親水性界面で自己組み立てを行い、菌類胞子の上に安定した防水コーティングを形成する小さな両親性タンパク質です。クラスIヒドロフォビンは、表面を覆う秩序あるアミロイド様構造を含む特に安定した「ロドレット」を形成します。この独特な表面化学構造により、薬物送達、フォーム安定化、乳化、表面修飾などに応用が期待されています。ヒドロフォビンを産生するには、単純な発現系から包括的かつ高収量のプロトコルが必要です。さらに、組換えの生成と精製後にヒドロフォビンの機能を特徴づけるための簡単な方法を提供することも必要です。ここでは、菌類 Schizophyllum communeが産生するクラスIBヒドロフォビンであるSC16の産生および特性評価のプロトコルを説明します。SC16は大 腸 菌内で組換え発現され、その後、非還元性の在来条件下で精製されます。これは、SC16をコードする発現プラスミドをN末端融合タンパク質に融合させて大 腸菌に変換し、タンパク質発現を誘導し、自然条件下での細胞溶解、親和性クロマトグラフィー、プロテアーゼ切断を含み、≥5 mgの収率でヒドロフォビンを分離します。SC16の自己組織化は、チオフラビンTを用いたエンドポイントまたは動態蛍光ベースアッセイで監視できます。両アッセイはSC16のインキュベーションを伴い、空気と水の界面での自己組織化を促進する長時間の混合を行い、蛍光測定で監視されます。これらの手法を組み合わせることで、SC16の精製および自己組織化の監視のための簡略化されたプロトコルを提供し、同様のタンパク質自己組織化を含む他のシステムにも拡張可能です。
概要
ヒドロフォビンは、真菌が分泌する表面活性の両親性タンパク質で、疎水性・親水性界面(例:菌類構造上の空気-水界面)で自己組み立てます。自然界では、胞子や子実体を覆い、耐水性を高め、空気通路の浸水を防ぎ、拡散を促進する役割を担っています。その独特な表面化学構造により、ヒドロフォビンはインプラントや義肢の生体適合性を高めるコーティング3,4,5、薬物送達や医療治療のための生体適合性界面活性剤6、7、8、9、10、ナノプラスチックキャプチャ候補11など多様な産業用途を持っています。
ヒドロフォビンはクラスIとクラスIIに細分され、どちらも疎水性・親水性界面(空気–水、油–水12,13,14、プラスチック–水15,16,17)の界面で自己組織化します。クラスIヒドロフォビンの特徴的な点は、界面で非常に安定した「ロドレット」構造を形成し、秩序あるアミロイド様(βシート豊富な)特徴18を含み、表面修飾や保護を伴う用途に特に適していることです。対照的に、クラスIIヒドロフォビンはアミロイド様構造を形成せず、容易に解離できる膜を形成します1,18。興味深いことに、第三のヒドロフォビンクラスも存在し、クラスIおよびクラスIIの構造的特徴を保持しています18,19。これらの違いから、ヒドロフォビンの自己組織化の監視は、分類や組換え生成されたヒドロフォビンの適切な折りたたみや機能の評価に重要です。
ヒドロフォビンの自己組織化は、アミロイド20に存在する交差β構造に結合するチオフラビンT(ThT)などのアミロイド結合染料を用いたフルオロメトリック法で容易に監視できます。ThTは、通常自由に回転する2つの芳香族環を隔てる単一の共有結合を含んでいます。交差β構造に結合すると、この回転が制限され、蛍光20が生じます。選択蛍光のため、ThTは空気-水界面21,22,23,24,25,26,27,28におけるヒドロフォビンの自己組織化の監視に広く用いられています。ThTアッセイは、ハイドロフォビンの自己組み立てに関する時間依存的な動態情報を提供します。23,27,28は、原子間力顕微鏡(AFM)や接触角測定のようなスループットが低く、時間依存分析に適さない技術に比べて優位性を持っています。さらに、ThTは交差β構造に結合した際に強い蛍光増強を示し、自由形20では蛍光が最小限に抑えられます。これらの特性により、ThTアッセイはハイドロフォビン自己組織化の監視に簡単かつ感度が高く、より高度な構造技術で補完可能です。
ヒドロフォビンの多様な用途を踏まえ、その自己組織化を監視するためのアクセス可能なプロトコルが必要です。具体的には、本プロトコルは組換えヒドロフォビンの精製および機能特性解析の最適化のための枠組みを提供します。以前、MorrisとSunde(2013)は大 腸菌における組換え発現のプロトコル、精製、ThTベースのヒドロフォビン自己組織化モニタリングを概説しました21。本研究は、ヒドロホビンSC16の精製のための修正手順を記述することで、これらの手法を拡張しています。SC16はクラスIのヒドロフォビン(Schizophyllum commune 産)で、ジスルフィド結合の変性、還元、再酸化を必要とせずに大 腸菌 から容易に精製できます。得られるSC16タンパク質は機能的であり、終点およびThTベースのキネティック自己組織化アッセイによってロドレット形成を監視することが示されています。本記事の目的は、クラスIBハイドロフォビンSC16の組換え生成、精製、機能的ThTベースのアッセイのための包括的かつ効率的なプロトコルを詳述することです。
プロトコル
この研究は人間、脊椎動物、組織サンプリングを含みません。したがって、倫理的な承認は必要ありませんでした。
1. 大腸菌におけるヒドロホビンSC16の発現
- 変換SHuffle T7は、42°Cで45秒間熱ショックで大 腸菌 細胞を発現し、c16(H-GB1-SC16)に融合したヘキサヒスチジンタグ付きB1ドメインをコードするpET-21発現プラスミドを用います。
注:シャッフルT7発現細胞は、正しいジスルフィド結合形成を促進する能力が選ばれました。H-GB1-SC16プラスミドは、前述のように制限酵素クローニングによって生成可能です。 - 100 μg mL−1 アンピシリンを含む溶原ブロス(LB)を単一コロニーで接種します。37°Cで一晩、振って孵化させます。
- 1LのLB(2.8リットルのバッフル付き丸底フラスコに)と1mLの一晩培養液を接種します。培養液は37°Cで振って(約120〜135rpm、円軌道19mm)で600nmの光学密度が0.6±0.1に達するまで培養します。
- 最終濃度0.5 mMにイソプロピル-β-D-1-チオガラクトピラノシドを加え、H-GB1-SC16の発現を誘導します。20°Cで一晩、振って孵化します。
注:この温度は、包有体形成や不適切な折りたたみのリスクを減らすために選ばれました。 - 細胞を4000 × gで遠心分離して20分間採取します。上澄液を注ぎます。
間取りポイント: 細胞ペレットは−20°Cで最大3週間保存してから精製に進みます。繰り返される凍結と解凍のサイクルは避けましょう。
2. ヒドロフォビンSC16の精製
- 細胞ペレットを30 mLの溶解バッファー(20 mMトリス(ヒドロキシメチル)アミノメタン[Tris]、pH 8、250 mM NaCl)に再懸浮させます。
- 細胞を溶除し、懸濁液を80°Cの水浴で15分間培養します。孵化中は5分ごとに優しく混ぜます。
注: この工程はSC16の熱安定性に依存しており、他のタンパク質には適さない場合があります。
注意: 管や80°Cの水浴を扱う際は耐熱手袋を使用してください。 混合やチューブの取り外し時に熱い液体をはねないように注意してください。 - 細胞溶解液を25,000 × gで4°Cで20分間遠心分離します。 上清液を2〜3 mLのNi2+帯電した固定金属親和クロマトグラフィー(IMAC)樹脂を含む重力カラムに積み込みます。
- 30 mMのイミダゾールを含む溶解バッファーでカラムを洗浄します。300 mMイミダゾールを含む10 mLの溶解バッファーを使用して溶出タンパク質を抽出します。
- 溶出された分画を、トリス(pH8; 20 mM)およびNaCl(50 mM)を含むバッファー1Lに対して、3500 kDa分子量のカット透析チューブを用いて3時間、100 rpmで攪拌します。
注: 透析中の攪拌速度は、設置(例えばチューブの容量やビーカーの形状)によって異なる場合があります。透析バッグの穏やかな回転を誘導するために必要な最低回転数でかき混ぜます。 - トロンビンプロテアーゼ(20 U mg−1 融合タンパク質)を透析バッグ(総反応量10 mL)に直接添加し、融合タンパク質を切断します。バッファーを交換してください。
間取りポイント: プロテアーゼ添加と緩衝剤置換後、4°Cで一晩透析を続けます。 翌日に浄化を再開しろ。SDS-PAGEによる切断完全の確認(~18 kDaバンドの消失と~10および~8 kDaのバンドの出現を期待してください)。 - 透析されたサンプルをNi2⁺荷電IMACカラムに再ロードします。それぞれ約12mLのバッファー(それぞれ30 mMおよび300 mMのイミダゾールを含む)で洗浄・洗脱します。
- 還元条件下(ローディングバッファー中のβ-メルカプトエタノール使用)で、ドデシル硫酸ナトリウム-ポリアクリルアミドゲル電気泳動(SDS-PAGE)で収集された画分を解析します。SC16は、予想される分子量(~10 kDa)のウォッシュ分数にバンドが存在することで同定します。SC16を含む洗浄液をトリス(pH8; 20 mM)およびNaCl(50 mM)を含むバッファー1リットル1リットルと3時間間透析し、残留イミダゾールを除去します。
注: SC16は通常ウォッシュ分画で検出され、H-GB1は通常、溶出液中に濃縮されます。また、エクスライト中に少量のSC16残留も存在することがあります。 - SC16は、選んだ方法(例:高性能液体クロマトグラフィーによるアミノ酸分析、ブラッドフォードアッセイ、または280 nmでの吸収分析)で定量します。この方法では、培養1リットルあたり≥ 5 mg SC16の収量が期待されます。
注: 私たちのグループは、280 nmの吸収によってSC16を定量化し、3480 M−1 cm−1 32 の予測消光係数を用いています。これはその簡便さからSC16定量化の好ましい方法です。 - SDS-PAGE分析のために精製過程でサンプルを収集します。
3. SC16自己組織化の終点蛍光アッセイ
- 50μg mL−1 SC16、50 mM NaCl、2-(N-モルフォリノ)エタンスルホン酸(MES)、トリス、リン酸ナトリウムをそれぞれ含む三重反応混合物を準備します。MES、トリス、リン酸ナトリウムを含み、濃縮HClまたは1 M NaOHを滴下で最終pH6.5に調整したストックバッファーを事前に準備します。アッセイ開始直前にタンパク質とNaClを加えます。
注: この段階でコントロールを準備できます。例えば、端から端まで回転しないSC16を含む正対照群と、バッファーのみを含む陰性対照群を含めること。SC16濃度は25〜100μg mL−1 で試験されており、結果は50 μg mL−1で最も一貫しています。必要に応じてこのパラメータを最適化してください。 - 混合物を2〜5 mLのチューブに移します。
注: 反転時に適切な混合を可能にするために、サンプルチューブは50%の容量まで満たされていることを確認してください。 - チューブを20回転で端から端まで2時間回転させます。各サンプルの100μLを、不透明底の黒い96ウェル板に、丸い煙突型ウェルに移します。
- すべての試料に最終濃度20μMのろ過済みThTを加えます。
- マイクロプレートリーダーをThT蛍光の適切な範囲内の励起および発光波長に設定します。33,34,35,36。ゲインを55に、積分時間を20μsに設定します。各試料の蛍光強度を2時間の回転直後に測定します。
注: ThTの報告された励起最大値と放出最大値はそれぞれ450 nmと490 nm37です。この実験では、光学フィルターの利用可能性に基づき、それぞれ438nmと494 nmの励起値と494 nmの出力値を用いました。エンドオーバーエンドの回転は、製作された回転装置を用いて行われました。
4. SC16自己組織化の動態蛍光アッセイ
- 黒い96ウェルプレートに100μLの反応混合物を三重化して準備します。
- 50μg mL−1 SC16、50 mM NaCl、20 μM ろ過済みThT、MES、トリス、リン酸ナトリウムそれぞれ20 mMが含まれます。ThTとバッファーのみを含む陰性対照(SC16なし)を準備します。
- SC16およびThTを加える前に、濃縮HClまたは1 M NaOHを用いてバッファー(トリス、MES、リン酸ナトリウムを含む)のpHを5.5、6.5、7.5、または8.5に調整します。混合バッファシステムはバッファの同一性を変えずにpH調整を可能にします。
- プレートをマイクロプレートリーダーに入れてください。
- ThT蛍光の適切な範囲内に励起波長と放出波長を設定します。33,34,35,36。
- リーダーを70秒ごとに周期測定するプログラムをします。
- 432rpmで60秒の軌道揺れを経験し、その後1サイクルあたり10秒の休止期間を設けます。
- 積分時間を20μs、ゲインを55μsに設定します。
- 2時間の振る舞いの中で蛍光の変化を監視するために、アッセイを120サイクル実行します。
注: 軌道揺れを選択してください。線形シェイクは自己組み立ての不整合性や最適でない結果をもたらすことがあります。
結果
図1 は、SC16の精製を監視するクーマッシー染色済みSDS-PAGEゲルを示しています。コードはマーカー(M)、誘導前(B)、誘導後(A)、可溶性分数(S)、流過(F)、洗浄(W)、溶出(E)、透け(D)を表します。最初のIMAC溶出液では、推定分子量~18 kDaのバンドがトロンビン切断前のH-GB1-SC16タンパク質に対応します。トロンビンで切断した後、2番目のIMACフロースルー分画にはタンパク質がなく、洗浄中にSC16に対応する約10 kDaのバンドが存在します。2回目のIMAC溶出液には残留SC16と、H-GB1に対応するより小さい~8 kDaのタンパク質が存在します。精製されたSC16は、エンドポイントおよび動態的自己組織化アッセイに用いられました。これらの結果は、期待される分子量帯の存在と、トロンビン切断後にH-GB1融合パートナーが分離したことから、SC16の精製が成功したことを裏付けています。
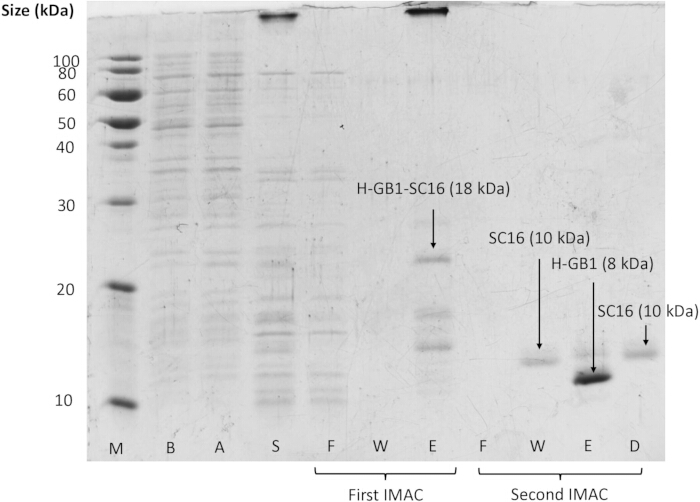
図1。SC16の精製解析をSDS-PAGE解析し、最初の(トロンビン切断前)および2回目のIMAC分離の過程を分析しました。 分子量マーカー(M)、誘導前(B)、誘導後(A)、細胞溶解上清液(S)、流過(F)、ウォッシュ(W)、溶出(E)、および透析サンプル(D)を示します。 この図の拡大版はこちらをクリックしてご覧ください。
表1に示されたSC16自己組織化のエンドポイントThTアッセイでは、回転しなかったタンパク質含有対照群と比べて、ベンチトップ回転2時間後にThT蛍光強度が11倍増加していることが示されています。同様に、バッファーサンプルの回転時に蛍光強度に有意な変化は見られません。SC16の攪拌によるThT蛍光の増加は、SC16の自己組織化を示すアミロイド様βシートの形成を示しています24,25。これらの結果は、記載された蛍光ベースのアッセイがテスト条件下でSC16の自己組織化を効果的に監視していることを示しています。
| サンプル | ThT蛍光(標準標準差±計数) |
| 回転なしのSC16 | 2679±177 |
| 回転後のSC16 | 30315 ± 2141 |
| 回転後のバッファ | 665±888年 |
表1。SC16サンプルのエンドオーバーエンド回転後に収集されたThT蛍光測定。 SC16(50 μg mL−1)サンプルは攪拌なしで培養するか、2時間回転させられました。蛍光測定前にThT(20μM)が追加されました。蛍光は励起波長438nmと発光波長494 nmで測定され、生計数として報告されています。値は平均±標準偏差(SD)として示されます。
SC16の動態的自己組織化アッセイは、数時間にわたり様々なバッファーで攪拌した結果を図2に示しています。アミロイド細動の典型的なS字型の運動的自己組織化曲線には、特徴的な遅延期、成長期、プラトー期38があります。SC16では初期測定時に大きな遅延期間は見られませんが、EAS21,23など他のヒドロフォビンではこの挙動が記録されています。各pHの自己組織化曲線は比較可能であり、強力で正の傾きはロドレット形成に対応します。約20分間攪拌した後、蛍光強度は停滞し、徐々に減衰します。SC16を欠く対照試料では、実験全体を通じて蛍光に大きな変化はありません。
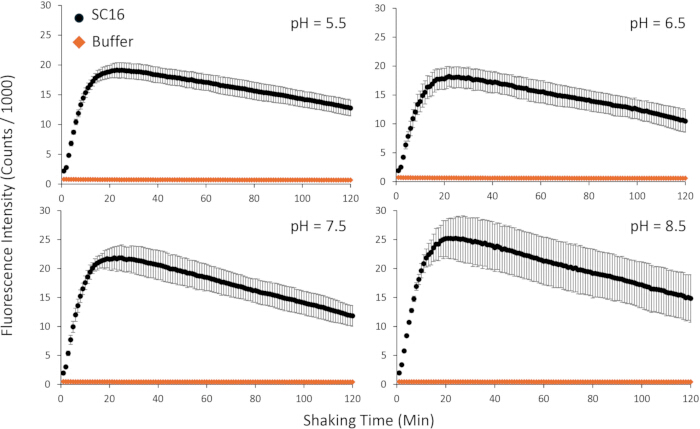
図2。運動的ThT蛍光アッセイを用いて測定したSC16の自己組織化曲線。 SC16は、20μMのThT、50mMのNaCl、20mMのリン酸ナトリウム、20mMのMES、20mMのTrisを含む多成分バッファーで、50μg mL−1 で製製されました。測定は60秒の軌道揺れと10秒の休止期間の後に行われました。x軸は揺れ時間(合計2時間)を表しています。蛍光は励起波長438 nmと発光波長494 nmを用いて測定され、カウント数は10⁻³×報告されています。誤差バーは標準偏差(n = 3)を表します。パネルはpH 5.5(左上)、6.5(右上)、7.5(左下)、8.5(右下)に対応します。 この図の拡大版はこちらをクリックしてご覧ください。
図3 は、動態的自己組織化アッセイの最適でない結果の例を示しています。この場合、アッセイはプロトコルのセクションで説明された通りに完了しましたが、「軌道」振動設定ではなく「線形」シェイキング設定を用いていました。
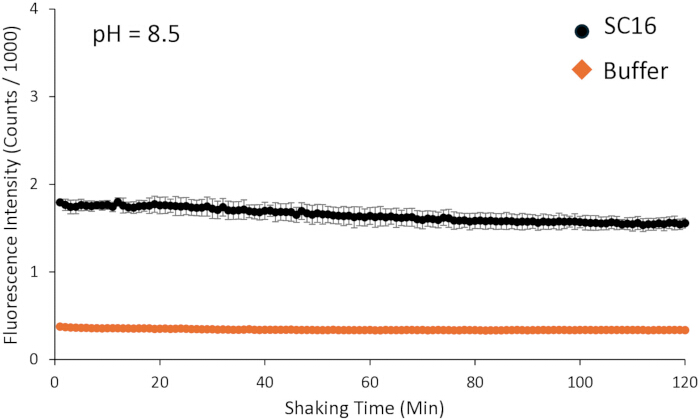
図3。運動的ThT蛍光アッセイを用いて得られたSC16の最適でない運動学的自己組織化データの例。 この場合、揺れは軌道振動ではなく線形設定で行われました。サンプルは図2に示された通りに準備されました。測定は60秒の直線振動と10秒の休止期間の後に行われました。x軸は揺れ時間(合計2時間)を表しています。蛍光は励起波長438 nmと発光波長494 nmを用いて測定され、カウント数は10⁻³×報告されています。誤差バーは標準偏差(n = 3)を表します。 この図の拡大版はこちらをクリックしてご覧ください。
ディスカッション
ここでは、ヒドロフォビンSC16の発現および精製、ならびにSC16自己組織化の低・高スループット蛍光アッセイのプロトコルをまとめ、それぞれに明確な利点と欠点があります。これらのワークフローは、タンパク質の自己組織化を監視するために関連システムにも適用可能です。このプロトコルでは、SC16精製前に熱を用いて細胞を溶除します。これは、従来の大腸菌溶解方法を用いる多くのプロトコルとは異なります。H-GB1-SC16は80°Cまで可溶性かつ熱安定性を持ち、熱分解は細胞溶解液中に非熱安定なプロテアーゼやその他の汚染タンパク質を沈殿させることで初期の試料クリーンアップステップとして機能することがわかりました。しかし、SC16は特殊なケースであり、ヒドロフォビンはしばしば不溶性に発現する包摂体12,21,40に存在します。包含体として表現する場合、通常は変性条件が必要であり、その後確立されたプロトコル21、40、41を用いて再折りたたみを行います。
このプロトコルでは、SDS-PAGEを用いて各段階でのSC16精製を評価し、誘導前後の細胞ペレット、細胞溶解後の可溶性分数、そしてその後のすべてのカラム分数を含みます。これは 図1に示されています。しかし、H-GB1と比べるとSC16に対応するバンドは比較的弱いです。SC16を含む多くのヒドロフォビンにおいて、一貫した強烈なクーマッシー染色を達成するのは難しいことがわかりました。SC16は通常、β-メルカプトエタノールを還元剤として使用した場合、中強度帯として現れます(図1)。場合によっては、ヒドロフォビンをより明確に観察するために銀染色が必要になることもあります。
終点蛍光アッセイおよび動態蛍光アッセイはSC16の自己組織化を監視するために用いられます。エンドポイントThTアッセイは自己組織化を迅速かつ簡易に評価できるため有利です。ベンチトップ回転2時間後の蛍光増加に加え、自己組み立ては反応管内に白い濁りが目に見えることが多いです。このアッセイは単純なベンチトップロータを用いて混合し、マイクロプレートリーダー部品の摩耗を最小限に抑えます。私たちの経験では、このアッセイはマイクロプレートリーダーの振動設定などの器具パラメータに対して比較的感度が低いです。
動力学的ThTアッセイは自己組織化に関するより詳細な情報を提供します。例えば、SC16の自己組織化はバッファー条件24に大きく依存しませんが、pH値が高いほど複製間で大きな変動が観察されます。しかし、この挙動はヒドロフォビン全体に共通するわけではなく、塩濃度、pH 24,27,42、添加剤(洗剤やアルコールなど)などの要因がヒドロフォビンの自己組織化に影響を与えることが知られています。例えば、ヒドロホビンSLH4は低イオン強度かつ低pH24でより効率的な自己組織化を示しますが、HFBIIの自己組織化はSC16と同様にpHおよび電解質濃度42に依存しないと報告されています。他の研究では、添加物がロッドレット形成に与える影響を表面張力の変化と相関させています27,28。これらの違いを踏まえ、各系のバッファー組成とpHを考慮し、遅延相、成長、プラトー領域を含む自己組織化曲線への影響を監視することが重要です。
重要な制約は、動力学的ThTアッセイがマイクロプレートリーダーの計測パラメータに非常に敏感であり、機器によって異なる可能性があることです。例えば、SC16の自己組織化には軌道(円運動)と線形(前後)振動設定で大きな違いが観察されます(それぞれ図2 と 図3)。ThTベースのアッセイはヒドロフォビンの自己組織化をモデル化する効果的な方法を提供しますが、選択性の変動により偽陽性や偽陰性のシグナルが生じる可能性があるため、固有の制約があります(43)。さらに、ヒドロフォビン集合体からの光散乱は測定された蛍光強度44に影響を与え、測定精度を低下させる可能性があります。サンプルの希釈や経路長の短縮は、これらの影響を緩和するのに役立つかもしれません。
ここでまとめたプロトコルは、SC16の自己組織化を精製し監視するための効果的な方法を提供します。エンドポイントアッセイは単純で機器に依存しませんが、キネティックアッセイは詳細な時間分解情報を提供しますが、機器パラメータに対する感度は高いです。このプロトコルはSC16の精製の簡単なアプローチを示し、大 腸菌で発現する他の適切に折たたまれたヒドロフォビンにも適用可能である可能性があります。記述されたThTアッセイには固有の限界がありますが、AFMや接触角測定単独の技術と比べて、時間依存的な自己組み立て情報を提供します。これらのワークフローは関連するタンパク質にも適応でき、特にバイオマテリアル開発、薬物送達、タンパク質自己組み立ての理解が重要な分野の応用に特に役立ちます。
開示事項
著者たちは競合する金融的または非財務的利害関係を一切表明していない。
謝辞
著者らは、ニュー・フロンティア・イン・リサーチ・ファンド(エクスプロレーション・ストリーム)からの資金提供を認めています。NFRFE-2023-00322)およびカナダ自然科学・工学研究評議会(NSERC;ディスカバリー助成金;RGPIN-2024-06440)。IEDはカナダ大学院奨学金・修士課程(NSERC)によって支援されています。RHは、ダルハウジー医学部2024大学院生プログラムおよびノバスコシア大学院奨学金(博士課程)を通じてモリー・アピール・ドナーズの支援を受けています。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 2-(N-morpholino)ethanesulfonic acid (MES) | Sigma-Aldrich | 145224-94-8 | 自己集合アッセイのバッファー成分 |
| 5 mL 丸底ポリスチレンチューブ | Falcon | 352054 | 低スループットの自己集合アッセイに使用 |
| 96ウェル黒色ポリスチレンマイクロプレート | Grenier | 655076 | マイクロプレートリーダーでの蛍光測定に使用 |
| アクリルアミド/ビス-アクリルアミド (29:1) 溶液 (40%) | BioShop | ACR004.500 | SDS-PAGEゲルの準備に使用 |
| アガー | BioShop | AGR002.1 | アンピシリン耐性LBプレートの作成に使用 |
| アンピシリン | IBI Scientific | IB02040 | LB-アガープレートで使用する抗生物質 |
| バッフル付き2.8 L Fernbachフラスコ | Fisher Scientific | 955239 | 大容量細菌培養の成長に使用 |
| β-メルカプトエタノール | TCI Chemicals | 60-24-2 | SDS-PAGEサンプル準備に使用する還元剤 |
| カラム(1.5 cm径重力カラム) | Bio-Rad | 7371522 | ニッケルアフィニティ精製に使用 |
| 透析チューブ(3500 kDa MWCO) | BioDesign | D302 | 精製中のバッファー交換に使用 |
| 発光フィルター | Edmund Optics | 84080 | ThTアッセイに使用(494 nm、バンドパス 20 nm) |
| 励起フィルター | Edmund Optics | 67012 | ThTアッセイに使用(438 nm、バンドパス 24 nm) |
| 蛍光マイクロプレートリーダー | Tecan | Infinite F200 Pro | ThT蛍光強度の測定に使用 |
| ホットプレート | Lab Fish | HS5C | 温度監視付き水浴設定に使用 |
| 塩酸 (HCl) | Fisher Chemical | A144-212 | バッファーのpH調整に使用 |
| イミダゾール | TCI Chemicals | 288-32-4 | IMAC精製(洗浄および溶出バッファー)に使用 |
| イソプロピルβ-D-1-チオガラクトピラノシド (IPTG) | Sigma-Aldrich | 367-93-1 | E. coliにおけるタンパク質発現を誘導 |
| LBブロス(Lennox) | BioShop | LBL405.5 | 細菌培養の成長培地 |
| 低速冷蔵遠心機 | Beckman Coulter | 360291 | 保存前に細胞をペレット化するのに使用 |
| ニッケルNTAアガロースビーズ | GoldBio | H-350-50 | Hisタグ付きタンパク質のアフィニティ精製に使用する樹脂 |
| SC16プラスミド | BioBasic | N/A | H-GB1-SC16融合タンパク質をエンコードするカスタムDNA構築 |
| SHuffle T7 Express コンピテントE. coli | New England Biolabs | C3029J | 組換えタンパク質発現に使用するホスト株 |
| 塩化ナトリウム (NaCl) | BioShop | SOD001.5 | バッファー成分およびイオン強度調整剤 |
| 水酸化ナトリウム (NaOH) | Fisher Chemical | SS255-1 | バッファーのpH調整に使用 |
| リン酸ナトリウム | BioShop | SPD579.1 | pH維持用のバッファー成分 |
| 分光光度計 | Pharmacia Biotech | 5096 | SC16の定量に使用 |
| チオフラビンT(ThT) | Acros Organics | 2390-54-7 | タンパク質自己集合のモニタリングに使用する蛍光染料 |
| トロンビンプロテアーゼ | Sigma-Aldrich | 04-04-9002 | H-GB1-SC16融合タンパク質の切断に使用 |
| トリス(ヒドロキシメチル)アミノメタン(トリス) | BioShop | TRS001.5 | 精製およびアッセイ溶液で使用するバッファー |
| 高速冷蔵遠心機 | Sorvall | 46915 | 細胞溶解後の溶解液の澄清に使用 |
| SDS-PAGEセットアップ | Bio-Rad | 1658000EDU | SDS-PAGEゲルの準備および実行に使用 |
再版と許可
