従来侵襲性 大腸菌 株における抗生物質耐性は、従来のゲンタミシン保護アッセイを用いた細菌侵入の評価に課題をもたらしています。コロニー形成単位を列挙して細菌侵入を定量的に評価し、免疫蛍光共焦点顕微鏡による感染細胞の可視化による定性的評価方法を記述します。
この記事について
サマリー
要約
上皮細胞の侵入は 、サルモネラ、 シゲラ、 ビブリオなど多くの腸内病原体における重要な表現型です。新興の侵襲病原体として、炎症性腸疾患(IBD)の病因に関与する浸潤性 大腸 菌(AIEC)があります。AIEC株は他の侵襲病原体に共通する病原性因子を欠いているため、遺伝的同定が困難です。その結果、AIEC株は現場標準のゲンタミシン保護アッセイを用いて上皮細胞に侵入できる能力に基づいて表現型的に分類されます。しかし、AIEC株は治療の一環として様々な抗生物質を投与されるIBD患者から分離されることが多いため、ゲンタミシン耐性分離株の増加により、このアッセイはAIEC分類の信頼性を低下させています。この問題を回避するために、AIEC細胞侵入を定量・可視化するための代替的なアミカシン保護アッセイが開発されました。このアッセイは、アミカシンという広スペクトルの半合成アミノグリコシドを利用し、他のアミノグリコシドに耐性を持つ株を効果的に標的化しつつ、真核生物宿主細胞の細胞外に残ります。したがって、感染中に細胞外細菌は殺され、細胞内細菌は「保護」されます。これは、感染後に回復した株の侵襲性(CFU)を用いて回復した割合の侵襲スコアを比較するための定量的アッセイの基礎となっています。このアッセイは、感染した上皮細胞を免疫染色し、共焦点顕微鏡でこれらの細胞を可視化することで、侵襲の定性的測定としても利用できます。この方法は、IBD患者をAIECのスクリーニングに用い、他の多剤耐性病原体にも適用して細胞侵略の評価に用いられます。これは病原性や病原性の代理指標です。
概要
炎症性腸疾患(IBD)は、クローン病(CD)や潰瘍性大腸炎を含む慢性消化管の炎症性疾患であり、世界中で何百万人もの人々に影響を及ぼしています。IBDの世界的な発症率が増加しているにもかかわらず、遺伝的、環境的、微生物的、免疫学的要因が複雑に絡み合うため、その正確な病因は依然として不明です2,3。IBDの特徴的な特徴は腸内微生物組成の変化であり、これはしばしば環境要因によって引き起こされます。例えば、工業国で一般的な高糖・高脂肪の食事などです。IBD患者の微生物叢は、微生物多様性の減少、病原性ガンマプロトテオバクテリアの濃縮、保護性フィルミキューテス6,7の枯渇を特徴とされることが多いです。CD患者では、大腸菌(E. coli)が腸内細菌叢に濃縮され、腸粘膜と結合して侵入し、活動性および重症疾患と正の相関を示します8,9。このCDに関連する新たに出現する大腸菌の病理型は、付随浸潤性大腸菌(AIEC)と呼ばれます。
AIECはグラム陰性の日和見病原体であり、CD患者の回腸粘膜に健康な対照群よりも高い傾向を示します10。CD患者から分離されたAIEC株は遺伝的に多様で、共生型および病原性大腸菌を含むすべての大腸菌系統群にまたがることが多いです。シゲラやサルモネラのような病原体がIII型分泌系を用いて宿主細胞の侵入を促進するのに対し、AIECはこれらの保存病原性システム(12)を欠いています。したがって、AIEC病原性の理解は主にin vitro表現型に依存しており、これは上皮細胞に付着し侵入し、マクロファージ内で生存する能力が特徴です。
AIECによる上皮細胞の侵入は、タイプ1毛皮や長大極線毛など複数の病原性因子によって媒介されます。FimHはタイプ1毛の先端に位置し、高糖化宿主受容体CEACAM613のマンノース残基への接着を媒介します。この結合によりAIECは腸内細胞への侵入を促進し、細胞内複製を支持します14。AIECはまた、パイアー斑の上に位置する特殊な上皮細胞であるマイクロフォールド(M)細胞にも付着しており、これは長い極性繊維とM細胞表面タンパク質である糖タンパク質2との相互作用を通じて存在します。この癒着により、AIECはM細胞を横断し、基盤となるマクロファージに到達し、炎症を促進するだけでなくマクロファージ内での細菌複製も支援するTNF-αなどの炎症促進サイトカインの発現を促します(17,18)。これらの病原性メカニズムは、CDで観察されているように宿主の慢性炎症を持続させると仮説されています。
AIECはin vitro 表現型によって定義されるため、ゲンタマイシン保護アッセイは株の分類や病原性因子の発見に不可欠です。このアプローチはゲンタミシン耐性分離株によって複雑化し、侵襲的11種として誤分類されることがあります。この問題を回避するために、宿主細胞膜を貫通せずにゲンタマイシン耐性分離株を効果的に殺す代替抗生物質が試験されました。このアプローチにより、アミカシンはゲンタマイシンの適切な代替として特定され、標準的な侵入アッセイと同等の有効性と適合性を持ち、さらに細胞毒性も最小限に抑えられました。これは過去の研究でトリパンブルー染色で示され、ここでも乳酸脱水素ゲノ放出アッセイを用いてさらに検証されています(補足図1)11.アミカシンはカナマイシン由来の半合成アミノグリコシドで、タンパク質合成を妨害して細菌の増殖を抑制します。アミカシンは特に、 シュードモナス、 アシネトバクター、 エシェリキア 属などの多剤耐性グラム陰性菌に対して効果的です。特に、カナマイシン骨格の構造的修飾により、アミカシンは細菌内のアミノグリコシド不活酵素に対して感受性が低くなります19。その結果、アミカシンは多剤耐性菌を標的とする侵襲アッセイにおいてゲンタマイシンの強力な代替手段となっています。以下のプロトコルは、参照株NRG857cおよび臨床分離株を用いてアミカシン保護アッセイを用いた大 腸菌 の侵入表現型を評価する方法を説明しています。
プロトコル
注:このプロトコルは、AIEC株がCaco-2上皮細胞に侵入できる能力を評価する方法を記述しています。本プロトコルで使用されるアミカシン濃度(240 μg/mL)は、炎症性腸疾患患者13名の代表的なAIEC臨床分離株のパネルでアミカシンMICテストストリップを用いて測定した最小阻害濃度(MIC)の10×に相当します。研究者は、抗生物質の感受性が分離株によって異なるため、アッセイを行う前に自らのAIEC分離株のMICを決定すべきです(材料 表参照)。第1節は侵入率の定量のためのアミカシン保護アッセイについて詳述し、第2節では共焦点顕微鏡におけるアミカシン保護アッセイについて説明しています。
1. 侵入率の定量のためのアミカシン保護アッセイ
- 24ウェルプレートのコラーゲンコーティング
- 無菌氷河酢酸35.29μL(材料 表参照)を1×PBS入り30mLに希釈 し、50mL円錐形チューブに浸します。
- 300μLのコラーゲン(材料 表参照)を酢酸溶液とともに1×PBSにピペットで注ぎます。
- 10秒間、渦溶液をきれいに混ぜます。
- 希釈されたコラーゲン溶液を250μLを、滅菌24ウェル組織培養処理プレートの各ウェルに分散させます。
注:30mLのコラーゲン溶液は約5枚の24ウェルプレートをコーティングするのに十分です。 - プレートを全方向に傾けて、溶液が各ウェルの底を均一に覆っているか確認してください。
- プレートを37°Cで2時間孵育し、コラーゲンがプラスチック表面に付着します。
- 培養完了後、各ウェルからコラーゲン溶液を吸引します。
- 各ウェルに1×PBSをピペットで残留コラーゲンを洗い流し、各ウェルを吸引します。このステップをあと2回繰り返します(合計3回の洗濯)。
- 生物安全キャビネット内の乾燥プレートを設置し、目に見える水分がすべて蒸発していることを確認します。
注意:プレートは細胞シーディングに即座に使用することも、常温で保存することも可能です。プレートを保管する際は、外周を滅菌パラフィルムで密封するか、滅菌ジップロック袋に入れてください。
- アミカシンストック溶液の調製
- アミカシン二硫酸塩240mg( 材料表参照)を1.5mLのマイクロ遠心分離機チューブに移します。
- 無菌水1 mLをピペットで抽出し、渦巻いてアミカシンを溶解させ、最終濃度は240 mg/mL(1000 ×ストック)となります。
- アミカシン溶液を20μLのアリコットで作り、-20°Cで保存します。
注:アミカシンは6〜12ヶ月間、-20°Cで安定しています。繰り返しの凍結融解サイクルを最小限に抑えるために使い捨てのアリコートを用意しましょう。
- Caco-2細胞の製製
- 凍結在庫からの解凍カコ2細胞
- 高グルコースのDulbecco's Modified Eagle Medium(DMEM、 材料表参照)に胎児用牛血清(FBS、 材料表参照)および抗生物質・抗菌剤溶液1%を補足して、完全な成長培地を準備します(材料 表参照)。
- 37°Cの水浴で30分間予温メディアを置きます。
- 凍結したCaco-2細胞のバイアルを37°Cの水浴に入れ、細胞が完全に解凍されるまで1〜2分間培養します。
- バイアルを水浴から取り出し、バイアルの外側に70%エタノールをスプレーします。
- 生物学的安全キャビネット内で、細胞を15mLの円錐形チューブにピペットで移し、そこに9mLの完全な成長培地を収めます。
- 遠心分離機セルは500 × g で室温で5分間使用します。
- 上澄液を吸引し、細胞ペレットを5mLの完全な成長培地に再懸浮させます。
- 細胞を10mLの温かい完全増殖培地を含む75cm2組織培養フラスコ(T75)に移します。
- プレートを3回回して細胞が均等に分布するようにします。
- 細胞を37°Cで5%CO2 で培養し、細胞が~90%の合流率に達するまで(6〜7日)します。
注:コンフルエンシーは光学顕微鏡を用いた細胞の可視化近似によって推定されます。細胞が回復する間は3日ごとに培地を交換してください。
- Caco-2細胞のシーディング
- 予温の完全成長培地と0.25%(w/v)トリプシン-EDTA(材料 表参照)を37°Cの水浴で使用します。
- Caco-2細胞が~90%のコンバーシティに達したら、培養培地を吸引し、トリプシン-EDTAを2mL追加します。フラスコを傾けてトリプシン溶液がフラスコの底面全体を覆い、FBSの痕跡をすべて不活化させます。
- トリプシン-EDTA溶液を吸引し、トリプシン-EDTAを3mL追加します。細胞を37°Cで5%CO2 で5〜15分間培養します。細胞が脱離していることを示すために、潜伏期間中のさまざまな時点で光学顕微鏡で細胞を視覚化し、円形化を観察します。
注意:細胞剥離を促進するためにフラスコの側面を叩くのは避けてください。これは細胞が凝固する原因になる可能性があります。 - 完全な成長培地6mLをピペットで除去し、ピペットで優しく上下に動いて細胞を再懸浮させて混合します。
- 細胞を15mLの円錐形チューブにピペットで取り込み、500× g で遠心分離機で5分間ペレット細胞を形成します。
- 培地を吸引し、3mLの完全な増殖培地に細胞を再懸浮させます。
- 懸浮したCaco-2細胞10μLを1.5 mLのマイクロ遠心分離機チューブに移します。1.5 mLのマイクロ遠心分離機チューブに10 μLのトリパンブルー染料(材料 表参照)を加え、ピペットで上下に数回混ぜます。
- Caco-2/Trypan Blue混合物のピペット10 μLをセルカウンタースライドに送る(材料 表参照)。細胞の生存率を計算するために生細胞の数を列挙します。
注意:存在するCaco-2細胞の数を列挙する際は、シード用の細胞数ではなく、生細胞数のみを考慮してください。 - 24ウェルプレートまたはT75フラスコにCaco-2細胞をシードします。
- 24ウェルプレートの場合は、以下の手順に従ってください:
- 以下の式を用いて、1 x 10⁵ cells/mL濃度のCaco-2細胞を種子化します。
[(1 ×10 5セル)(シーディング井戸数+2)] / [生存可能な細胞数濃度(セル/mL)] = セル数(mL) - ステップ3.2.6で懸浮したCaco-2細胞から計算した細胞の体積を15 mLの円錐形チューブに取り出します。以下の式で細胞に加える完全な成長培地の体積を計算します。
(シーディング井戸数+2井戸) - 細胞数(mL)=培地(mL)
注:計算中の「+2ウェル」はピペッティング誤差を考慮したものです。 - 上記の計算された培地の体積をCaco-2細胞を含む15mL円錐形にピペットし、ピペットで上下に数回ピペットして混合します。
- 完全な培養培地にCaco-2細胞1 mLをピペット(最終濃度1 x 10⁵ cells/mL)をコラーゲン被覆24ウェルプレートの各ウェルに移します。
- 37°Cで5%のCO2 で培育し、細胞が~90%の合流率に達するまで(3〜4日)培養します。
- 以下の式を用いて、1 x 10⁵ cells/mL濃度のCaco-2細胞を種子化します。
- T75フラスコの場合は、以下の手順に従ってください:
- 以下の式を用いて7.5 x 10 5個の生存 細胞をT75フラスコに移します。
[(7.5 × 10⁵ cells)] / [生存細胞数濃度(cells/mL)] = 細胞数(mL)
注:T75フラスコに加える生存細胞の数は、Caco-2細胞培養に関するATCCガイドラインに基づいて決定されました。 - 上記の細胞の体積を取り除き、T75フラスコに移します。以下の式で細胞に加える完全な成長培地の体積を計算します。
15 mL - フラスコに加えた細胞量 = 培地(mL) - 上記の計算された培地の体積をピペットでT75フラスコに移します。
- 皿を数回優しく回して、フラスコの底に細胞が均等に広がるようにします。37°Cで5%のCO2 で細胞が~90%の合流率に達するまで(3〜4日)インキュベートします。
- 以下の式を用いて7.5 x 10 5個の生存 細胞をT75フラスコに移します。
- 凍結在庫からの解凍カコ2細胞
- アミカシン保護アッセイ
注意:実験開始前にすべての細胞培養培地を37°Cまで予温してください。- 細菌の調製
- 滅菌木製の棒や滅菌ピペットの先端を使い、-80°Cで保存した冷凍細菌グリセロールストックから優しく細菌をこそげ取り、LB寒天プレートにストリークして単一コロニーを採集します。プレートを37°Cで一晩孵化します。
- 滅菌木製の棒や滅菌ピペットの先端を使い、寒天プレートから単一のコロニーを取り、3mLのLBブロスに接種します。培養は37°Cで培養し、200rpmで一晩振る。
- 1 mL LBブロスで一晩の培養液を1:10希釈し、分光光度計を用いて600 nm(外600)の光学密度を測定します。
- 感染の多重度(MOI)計算
- 100 μLの一晩培養液を1.5 mLのマイクロ遠心分離管に移し、6000 × g で4°Cで10分間遠心分離機に移します。
- 細胞ペレットを乱さないよう、上清液を慎重に吸引してください。ペレットを1 mLの血清と抗生物質・抗菌剤フリー培地に再懸浮させます。
注:これは細菌の一晩培養液を1:10希釈したものです。MOIの計算には、希釈系数を補正したOD600ではなく、ステップ4.1.3で希釈した一晩培養の生OD600値を使用します。 - 次の計算を用いて、ステップ4.2.2からカコ-2細胞に感染させるための細菌懸浮液の体積をMOI10で計算します。
[1 OD 単位/2.4 × 109 細菌] × [10 細菌/細胞] × [1 mL × OD 1:10] × 1 ×105 ×103 = 体積(uL)
注意:各サンプルの計算体積を注意深く記録してください。この値は後で接種量CFU/mLの計算に使われます。この細菌懸浮液の体積は、24ウェルプレート内の1井戸分のみです。 - 4.2.3ステップで計算された細菌懸浮液の量を無菌の1.5 mLマイクロ遠心分離機チューブに移して感染培地を準備します。血清1mLと抗生物質-抗菌活性素のフリー培地を加えます。ピペットで上下に何度か優しく混ぜます。
- カコ2細胞感染
- インキュベーターからCaco-2細胞単分子層を含む24ウェルプレートを取り出し、全培地を吸引します。
- 各ウェルに1mLの血清と抗生物質-抗真菌性遊離培地をピペットで移し、血清含有培地の痕跡を吸引して除去します。このステップをもう1回(合計2回の洗い)繰り返します。
注意:吸引時は細胞の単分子層を破壊しないように真空圧を下げてください。 - Caco-2細胞を含む24ウェルプレートの各ウェルに、ステップ4.2.4の感染培地をピペット1mLに移します。
- 24ウェルプレートを室温で500× g で15分間遠心分離し、細菌と上皮細胞の接触を同期させます。
- 24ウェルプレートを37°Cで5%CO2 で3時間培養し、細菌の侵入を防いでいます。
- インキュベーション期間中、ステップ4.2.2の希釈された一晩培養液のCFU/mLを、無菌1×PBSで96ウェルプレートを用いて10倍の連続希釈を行い、決定します。
- 各希釈を準備するには、ステップ4.2.2から薄めた一晩培養液200μLをプレートの最初のウェルに移します。
- 培養液20μLを次の列にピペットで送り、1×PBSを180μL含む。ピペットで上下に10回混ぜます。新しいピペットの先端を使って希釈が10〜6 になるまで繰り返し、移送します。
- 10-2から10-6の希釈から3枚のスポット希釈を10μLのプレートでLB寒天プレートに塗布します。スポットを火の下で寒天に吸収させます。
- プレートを27〜30°Cで一晩孵化させ、コロニーの過剰成長を防ぎ、明確で分離された個々のコロニーを確保します。
注:三重のスポットプレートは定量精度を向上させ、さまざまな細菌濃度での検出を可能にします。培養温度を下げることで細菌の増殖が遅くなり、高濃度サンプルからより正確なCFU推定が可能になります。
- 抗生物質含有培地を、予温化された血清および抗生物質-抗菌活性菌培養地に240μg/mLを加えて調製します。
- 3時間の感染が完了した後、Caco-2細胞単分子膜から培地を吸引します。各ウェルに1mLの血清と抗生物質・抗真菌性フリーメディアを加えます。このステップをもう1回(合計2回の洗い)繰り返します。
- 各ウェルに240 μg/mLのアミカシン含有培地1 mLをピペットで移し、37°Cで5%CO2 と共に1時間インキュベークして細胞外細菌を除去します。
- 各ウェルから培地を吸引し、1×PBSを1mL加えてアミカシンで殺された付着細菌を洗い流します。このステップをもう1回(合計2回の洗い)繰り返します。
- 各ウェルに1%トリトンX-100(材料 表参照)を1×PBSで希釈した200μLのピペットを投入します。軌道シェーカーで90回転/分で10分間培養し、上皮細胞を溶解させます。
- 24ウェルプレートからセルを1ウェルあたり約30回ピペットで上下させて剥離します。
注:プレートにコラーゲンをコーティングすることで細胞の接着が向上するため、単分子層がプレートから剥がれていることを確認することが重要です。これは、溶解した井戸と未溶解井戸、そしてCaco-2セルを含まない井戸を比較することで視覚的に確認できます。 - 1×PBSを用いて、96ウェルプレート上で細胞溶解液を10倍連続希釈します。
注意:10-3 の希釈まで連続的に希釈してください。 - 10μLのスポット希釈を三重に、希釈していないものから10〜3 個の希釈まで、LB寒天プレートにプレートします。スポットを火の下で寒天に吸収させます。プレートは27〜30°Cで一晩培養し、コロニーの過剰増殖を防ぎ、明確で分離された個々のコロニーを確保します。
- 植民地のカウントと侵攻率の計算
- 一晩の培養後、各スポットの希釈した一晩培養液と回収された溶解液のコロニー数を数えます。各部位に7個以上の孤立した菌株を含む希釈液を選びます。同じ希釈量を三重体で使用し、その希釈で回収された平均細菌コロニー数を計算します。
注意:十分に分離された単一コロニーを含むスポット希釈はカウントし、接触しているコロニーを含む希釈はカウントしないでください。 - 接種量CFU/mL、回収されたCFU/mL、浸潤率を以下の式で計算します。
接種量CFU(CFU/mL):
CFU接種量=(平均菌株数)(希釈係数)(感染培地体積(μL)×100
取得したCFU(CFU/mL):
取得したCFU =(平均群落数)(希釈係数)×100
侵攻率(%):
侵襲率(%) = [(CFU取得済み)/(CFU接種量)] × 100
- 一晩の培養後、各スポットの希釈した一晩培養液と回収された溶解液のコロニー数を数えます。各部位に7個以上の孤立した菌株を含む希釈液を選びます。同じ希釈量を三重体で使用し、その希釈で回収された平均細菌コロニー数を計算します。
- 細菌の調製
2. アミカシン保護アッセイによる焦点顕微鏡
- 無菌ポリL-リジンコーティングカバースリップの準備
- 生物安全キャビネットでは、滅菌ピンセットを使って、70%エタノールに浸したペーパータオルの上にポリL-リジンコーティングされたカバースリップ(材料 表参照)を置きます。
- カバースリップの両スライドに70%エタノールをスプレーし、滅菌鉗子でカバースリップを両側にひっくり返します。
- カバースリップは生物安全キャビネットのUVライトの下で完全に乾かすまで待ってください。
- 6ウェルプレートにおけるCaco-2細胞のシーディング
- 生物用安全キャビネットに、6ウェルプレートの各ウェルに1枚のポリLリジンコーティングカバースリップを置きます。
- 「Caco-2細胞のシーディング」セクションのステップ3.2.1–3.2.8を繰り返します。
- 以下の式を用いて、6ウェルプレート上で1×10⁵ cells/mLの濃度でCaco-2細胞をシードします。
[(1 ×10 5セル)(シーディング井戸数+2)] / [生存可能な細胞数濃度(セル/mL)] × 2 = セル(mL)
注:この値は6ウェルプレート使用時に1ウェルあたり2mLのメディアを追加するため、2を掛けています。 - 上記の細胞体積を15mLの円錐形チューブに取り出します。以下の式で細胞に加える完全な成長培地の体積を計算します。
(シーディング井戸数+2井戸数×2 - 細胞数(mL)=培地(mL) - 上記の計算された培地の体積をCaco-2細胞を含む15mL円錐形にピペットし、ピペットで上下に数回ピペットして混合します。
- 6ウェルプレートの各ウェルに、完全な培地にCaco-2細胞2mLを添加します(最終濃度は1×10⁵ cells/mL)。
- プレートを37°Cで5%CO2 で培養し、細胞が~90%の合流度に達するまで(2〜3日間)します。
- アミカシン保護アッセイ
- アミカシン保護アッセイは、セクション1、ステップ4.1-4.3.10に記載されている通りに実施してください
- 免疫蛍光染色
- Caco-2細胞の固定と透過化
- 各ウェルに4%パラホルムアルデヒドを1XPBSで希釈した1mLを加えて固定します(材料 表参照)。暗い室温で10分間孵化させます。
- 各井戸を吸引し、1×PBSを1mL加えて細胞を洗浄します。このステップをさらに2回(合計3回の洗い)繰り返します。
注:細胞は4°Cの1X PBSで数日間保存可能です。 - 各ウェルに0.1%トリトンX-100を1mL加え、室温で10分間培養して細胞を透過させます。
- トリトンX-100溶液を吸引し、各ウェルに1×PBSを1mL加えます。細胞を1×PBSで5分間培養します。このステップをさらに2回(合計3回の洗い)繰り返します。
- ブロッキングと抗体染色
- 非特異的抗体結合を防ぐために、1%牛血清アルブミン(BSA)、22.52 mg/mL、1× PBS + 0.1% Tween20 を用いるブロッキング溶液を準備します(材料 表参照)。
- 各ウェルにブロッキング溶液1mLを加え、室温で1時間培養します。
注:ブロッキングステップは4°Cでも16時間行うことができます。 - 吸引液を吸引し、抗ウサギ大 腸菌 一次抗体(材料 表参照)を希釈(推奨1:500希釈)で室温で1時間培養します。
注:一次抗体との培養は4°Cで16時間行うことも可能です。 - 一次抗体溶液を吸引し、1×PBS + 0.1% Tween20を1mL追加します。細胞を1×PBS + 0.1% Tween20に5分間培養します。このステップをさらに2回(合計3回の洗い)繰り返します。
- ヤギ抗ウサギのAlexa Fluor 488二次抗体(材料 表参照)を室温でブロッキング溶液で希釈(推奨1:1000希釈)して細胞を1時間培養します。蛍光色素を光から守るために、プレートをアルミホイルで包みます。
- 二次抗体溶液を吸引し、1×PBS + 0.1% Tween20を1mL加えます。細胞を1×PBS + 0.1% Tween20に5分間培養します。このステップをさらに2回(合計3回の洗い)繰り返します。
- カバースリップのカウンターステインと取り付け
- 宿主および細菌のDNAおよび宿主アクチンを染色するには、10 mg/mLのホエスト(推奨1:2000希釈、材料 表参照)とロダミン・ファロイジン(推奨1:1000希釈、 材料表参照)を用いて1×PBSで合成希釈を準備します。
- 各ウェルに1mLの染料溶液を加え、10分間培養します。
- 染料溶液を取り除き、各ウェルに1×PBSを1mL加えます。このステップをもう1回繰り返します(合計2回の洗い)。
- 1×PBSを1mL加え、細胞を溶液中に浸したままにします。
- ラベル付きのスライドにマウントメディウムを1滴( 材料表参照)を置きます。
- 曲げた針でカバースリップを6ウェルプレートから慎重に持ち上げ、セルを入れる側が取り付け媒体を載せるスライドの方を向くように反向きにします。
- カバースリップをマウントメディアに貼ります。取り付け媒体がカバースリップ全体に均等に散らばっていることを確認してください。
- マウントスライドは暗闇の中、室温で一晩孵化します。
- カバースリップの端を透明なネイルポリッシュで密封し、スライドは4°Cのスライドボックスで保管します。
- 共焦点顕微鏡で使う染料や蛍光色素に対応する適切なチャネルを使って、マウントされた試料を画像化します。
- Caco-2細胞の固定と透過化
結果
アミカシン治療の細胞外細菌除去効果と細胞内侵入の可視化を評価するために、Caco-2細胞単層を用いた感染実験を実施しました。 図1に示すように、大腸菌NRG857c(陽性対照)または大腸菌 DH5α(陰性対照)に感染した後にゲンタミシンまたはアミカシンのいずれかで治療しても、同様の侵襲プロファイルが得られました。これらの発見は、アミカシンがゲンタミシンと同等の細胞外細菌除去効果を持ち、細胞内細菌の負荷を正確に反映していることを示し、侵入アッセイの代替抗生物質としての利用を支持しています。NRG857cの回復率が~4〜10%<、大腸菌DH5αの回復率が~4〜10%、大腸菌DH5αは、変異株や他の臨床分離株に対する侵入表現型の正確な解釈に適しており、これは前述の観察と一致しています11。陽性および陰性対照の侵入率スコアがこの期待される回復範囲外であれば、結果を慎重に解釈し、アッセイを繰り返し行うべきです。
アミカシンがゲンタミシン耐性臨床用大腸菌分離株を効果的に標的化できることを示すため、ゲンタマイシンとアミカシン保護アッセイを並行して実施し、分離株の侵入プロファイルを調べました。 図2に示すように、ゲンタミシン耐性分離株をゲンタミシンで処理した場合、回復値は21.52%から2788.50%まで大きく変動しました。対照的に、アミカシン治療はすべての分離株で回復率を劇的に低下させ、その効果を強調し、より正確かつ信頼性の高い侵入測定を可能にしました。
最後に、侵襲時のAIECの細胞内表現型を評価するために、Caco-2細胞に大腸菌 NRG857cを感染させました。 図3 は、免疫蛍光で染色された細菌(緑)、宿主アクチン(赤)、DNA(青)をそれぞれロダミン・ファロイジンとホエストで染色した感染Caco-2細胞の代表画像を示しています。感染後4時間でNRG857cが細胞質内で複製され、核付近およびアクチン境界内に局在することが観察されており、これらの細菌の細胞内性質が確認されます。
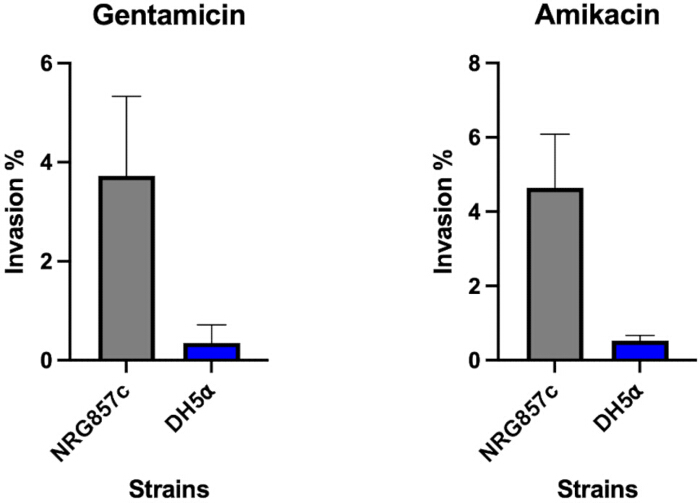
図1:AIEC株NRG857cに感染したCaco-2細胞にゲンタマイシンまたはアミカシンを添加すると、同様の侵入プロファイルが得られます。 カコ2細胞単層はAIEC株NRG857cおよび 大腸菌 DH5αに感染し、MOIは10でした。感染から3時間後、細胞はゲンタミシン(100 μg/mL)またはアミカシン(240 μg/mL)で1時間処理し、細胞外細菌を除去しました。その後、細胞を1%トリトンX-100で溶解し、均質酸を連続的に希釈してLB寒天上でプレートし、CFU列挙を行いました。侵入は、回収された細菌の割合と初期接種量の比率で表されました。データは3つの独立した実験(n=3)を表しています。誤差バーは平均の標準偏差を示します。 この図の拡大版はこちらをクリックしてご覧ください。
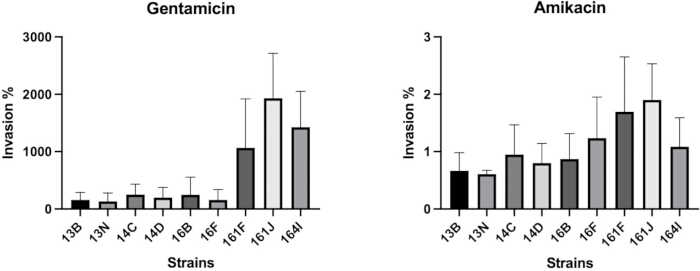
図2:アミカシンはゲンタミシン耐性大 腸菌 株を効果的に標的化します。 Caco-2細胞単分子層は、IBD患者から分離された大 腸菌 株に感染し、MOIは10でした。感染3時間後、細胞はゲンタミシン(100 μg/mL)またはアミカシン(240 μg/mL)で1時間処理し、細胞外細菌を除去しました。その後、細胞を1%トリトンX-100で溶解し、均質酸を連続的に希釈してLB寒天上でプレートし、CFU列挙を行いました。侵入は、回収された細菌の割合と初期接種量の比率で表されました。データは3つの独立した実験(n=3)を表しています。誤差バーは平均の標準偏差を示します。 この図の拡大版はこちらをクリックしてご覧ください。
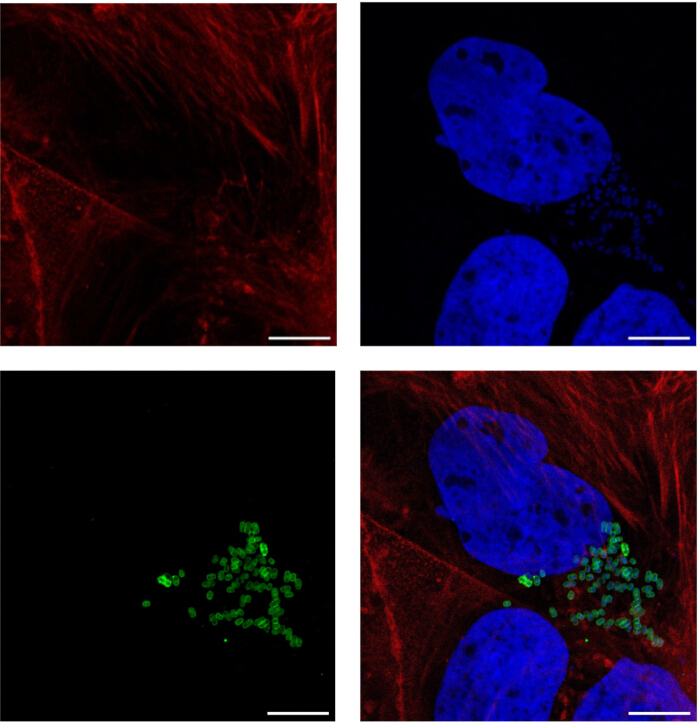
図3: 大腸菌による上皮細胞侵入の可視化。 Caco-2細胞の代表的な共焦点顕微鏡写真は、大 腸菌 NRG857cに感染しました。Caco-2細胞は3時間感染し、その後1時間アミカシン(240 μg/mL)で潜伏しました。宿主アクチンはロダミン・ファロジン(赤)で染色され、宿主および細菌のDNAはホエスト(青)で染色されました。大 腸菌(緑色)は抗ウサギの一次抗体 とヤギの抗ウサギ用Alexa Fluor 488二次抗体を用いて検出されました。画像は63×対物レンズで3×ズームで撮影され、ライカの共焦点顕微鏡を用いました。スケールバー=10μm。 この図の拡大版はこちらをクリックしてください。
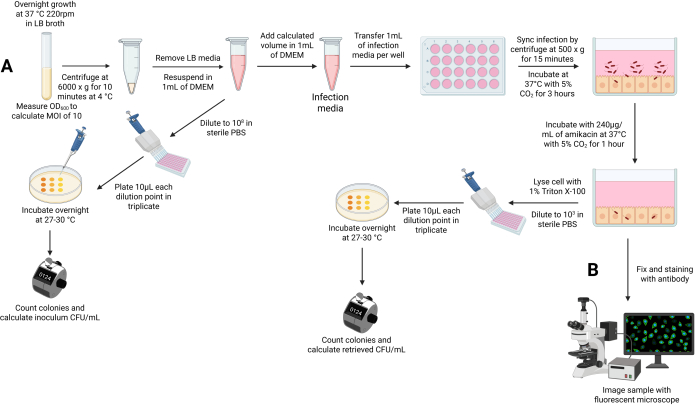
図4:研究のフローチャート。 (A) AIEC株は一晩培養し、洗浄し、カコ-2単分子層にMOI10で添加しました。感染3時間、アミカシン処理1時間後、細胞内細菌を回収し、三重鉛で連続希釈をプレートすることで定量化しました。(B) 感染した単分子膜を固定し、抗体で染色し、蛍光顕微鏡で画像化した。 この図の拡大版はこちらをクリックしてご覧ください。
補足図1:アミカシン処理は上皮細胞における細胞毒性を最小限に抑えます。 カコ2細胞はゲンタミシン(100μg/mL)またはアミカシン(240μg/mL)で1時間処理されました。細胞毒性は培養培地中に放出された乳酸脱水素酵素の測定によって決定されました。誤差バーは平均の標準偏差(n = 3)を示します。このファイルをダウンロードするには、こちらをクリックしてください。
ディスカッション
アミカシン保護アッセイは、上皮細胞への大腸菌侵入を評価するための修正アプローチです。このアッセイの成功には、プレートのコラーゲンコーティング、単分子層の完全性の維持、効率的な細胞溶解など、いくつかの重要なステップが求められます。カコ2細胞は、組織培養処理プラスチックに付着し、単分子膜を形成できる接着性細胞株です。しかし、感染時には血清不使用培地の使用や繰り返し洗浄が細胞剥離に影響を与え、細菌侵入の過小評価につながることがあります。これを解決するために、タイプIVコラーゲンなどの細胞外マトリックス成分をコーティングするプレートは、感染中に細胞の付着を促進し、安定した合流性単一層の形成を促進することができます。これは重要で、AIEC株LF82は侵入時に狭接部を破壊することが示されており、不完全な単一層形成はこの段階を回避できるため、結果に歪みが生じる22。最後に、効率的な細胞溶解も細菌の回復に影響を与える重要なステップであり、不完全な溶解は侵襲性を隠し、アッセイ結果を混乱させる可能性があります。これを回避するためには、Triton-X-100での培養後に細胞溶解液を徹底的に再懸浮させることが重要です。
侵入アッセイの変動に寄与する技術的な課題に加え、AIEC株LF82の感染後に回収された接種点の割合は0.61%から17.25%の範囲であることが示されています8。この変動は、胆汁塩、粘液、その他の腸内代謝物などの環境的手がかりが欠如していることによって影響を受ける可能性があります。これらはAIEC病原性に寄与することが知られています。具体的には、胆汁塩は長極線環の発現を誘導し、M細胞間でのAIEC付着および転座を促進することが示されています27。ビブリオやシゲラなど他の消化管病原体は、胆汁に反応して上皮細胞侵入を媒介するためにタイプIII分泌系を調節することが知られています28,29。胆汁塩による病原性因子発現誘導のサブカルチュリングは、他の病原体に対するゲンタミシン保護プロトコルの標準であり、これらの環境的手がかりを用いたAIEC培養は侵入を安定させ、より一貫したプロファイルを得る可能性があります(30,31)。
このアッセイのもう一つの制限は、細菌侵入が単一の時間点で評価される点であり、これは現場では標準的であるものの、侵入プロセスを単純化しすぎている可能性が高いことです。細菌侵入は、宿主細胞からの付着、内部化、細胞内複製、そして逃避を伴う動的なプロセスです32。AIEC侵入に寄与する新規遺伝子の特定が困難だったため、単一のタイムポイントアッセイではこの過程に寄与する遺伝子の数を過小評価してしまう可能性があります12。したがって、タイムコース侵入アッセイは特定の遺伝子が浸潤にどのように寄与するかを評価し、I-407およびHep-2細胞におけるAIEC複製の研究に用いられてきました8,33。タイムコース侵入アッセイの使用は、個々の遺伝子の侵入への寄与を特徴付ける上で有用ですが、特に多くの臨床分離株をスクリーニングする際には労力集約的です。このため、侵入の評価には単一の時間点が用いられます。
さらに、AIECの細胞内生活様式はあまり明確に解明されていません。ほとんどの研究では、さまざまな病原性因子欠失変異体のCFU変化を検出するために、侵入率の割合を主要な指標として用いています(14,34)。感染した宿主細胞の可視化は、CFU列挙35のみを用いる場合には見落とされがちなAIEC生物学に関する独自の洞察を提供します。したがって、細胞侵入における異なる遺伝子の役割を包括的に評価するためには、感染細胞の免疫蛍光顕微鏡検査をCFUの列挙と併用して行うべきです。これは、エンドソームの生存と脱出に関与する遺伝子、宿主の細胞骨格を標的とする遺伝子、細胞ごとの細菌負荷の違いを示す遺伝子の特定につながるため重要です。これらはCFU回収単独では見落とされがちです。ここで述べた免疫蛍光染色プロトコルを用いて細胞内細菌を検出しても、真に内部化された細菌と細胞表面に付着した細菌を区別できないことに注意が必要です。細胞外細菌に透過化前に異なる二次抗体を標識し、細胞内細菌を透過化後に染色する差別染色法はこの制限を解消し、将来の研究でこれらの集団をより明確に区別するために応用される可能性があります。
この方法の重要性は、多様な抗生物質治療を受けるIBD患者から多剤耐性大 腸菌 分離株をスクリーニングできることにあります11。ゲンタミシンは早期発症型IBDの治療に用いられ、他の細菌感染症の治療にも投与可能です。ゲンタミシン耐性分離株の出現により標準アッセイの使用は不可能となり、アミカシンはより信頼性の高い代替手段となります11。本論文で述べたプロトコルを用いることで、AIEC感染生物学のより詳細な特徴付けが可能となり、侵入に寄与する新たな遺伝子の特定にも役立ちます。これらの手法は、細菌の病原性や宿主-病原体相互作用研究の文脈で重要であり、新規病原性因子の発見、細菌の細胞内生活環の特徴付け、感染時に標的となる宿主経路の検証を可能にします。さらに、 in vitro 上皮細胞モデルを用いて他の侵襲病原体の研究にも広く応用可能です。
開示事項
著者たちは利益相反を一切認めていない。
謝辞
この研究は、ハワード・ヒューズ医療研究所新興病原体イニシアティブ(K.O., J.N.)、ウェルチ財団助成金1-561(K.O.)、ワンス・アポン・ア・タイム財団(K.O.)、NIH 助成金R35 GM134945(K.O.)、NIH 助成金 NIDDK K08-DK-123316(J.N.)、バローズ・ウェルカム基金医療科学者キャリア賞 - 1020904(J.N.)、NIH T32 AI007520(サンフランシスコ)によって支援されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 75 cm2 ティッシュカルチャーフラスコ | Fisher Scientific | FB012937 | |
| アミカシン硫酸塩 | Research Products International | A20540-25.0 | |
| 抗生物質・抗真菌薬(100倍) | Gibco | 15240062 | |
| E.coli抗体 | Abcam | ab137967 | |
| BioLite マイクロウェルプレート - 6ウェル | Fisher Scientific | 12-556-004 | |
| ウシ血清アルブミン | Sigma-Aldrich | A7906 | |
| コラーゲンI、ラットテール、100 mg | Corning | 354236 | |
| Countess細胞計数チャンバースライド | Invitrogen | C10312 | |
| DMEM、高グルコース | Gibco | 11965118 | |
| ウシ胎児血清 | Corning | 35-011-CV | |
| 酢酸 | Sigma-Aldrich | A6283 | |
| グリシン超純 | USBiological | G8165 | |
| ヤギ抗ウサギIgG(H + L)クロス吸着二次抗体、Alexa Fluor 488 | Invitrogen | A-11008 | |
| ホイスト33342、トリヒドロクロリドトリハイドレート | Invitrogen | H3570 | |
| Liofilchem MTSアミカシン[AK] 0.016-256 μg/mL | Fisher Scientific | 22-777-704 | アミカシンMICテストストリップ |
| パラホルムアルデヒド溶液、4% PBS中 | Fisher Scientific | J19943.K2 | |
| PBS、1倍 | Corning | 21-040-CV | |
| 細胞培養用ポリ-L-リジンコーティング済み滅菌済みドイツガラスカバリングラス | Neuvitro | NC1327375 | |
| ProLong gold アンチフェードマウンタント | Invitrogen | P36934 | |
| ロダミン-ファロイジン | Invitrogen | R415 | レッドオレンジ 540/565 nm |
| 表面処理済み滅菌済みティッシュカルチャープレート | Fisher Scientific | FB012929 | 24ウェルプレート |
| トリトンX-100(電気泳動) | Fisher Scientific | BP151-100 | |
| トリパンブルー | Invitrogen | T10282 | |
| トリプシン-EDTA(0.25%)、フェノールレッド | Gibco | 25200056 | |
| Tween-20 | Fisher Scientific | BP337-100 |
参考文献
- Bruner, L. P., White, A. M., Proksell, S. Inflammatory bowel disease. Prim Care. 50 (3), 411-427 (2023).
- Richard, N., Savoye, G., Leboutte, M., Amamou, A., Ghosh, S., et al. Crohn's disease: Why the ileum?. World J Gastroenterol. 29 (21), 3222-3240 (2023).
- Hracs, L., et al. Global evolution of inflammatory bowel disease across epidemiologic stages. Nature. 642 (8067), 458-466 (2025).
- Lewis, J. D., Abreu, M. T. Diet as a trigger or therapy for inflammatory bowel diseases. Gastroenterology. 152 (2), 398-414.e6 (2017).
- Khan, S., et al. Dietary simple sugars alter microbial ecology in the gut and promote colitis in mice. Sci Transl Med. 12 (567), (2020).
- Ma, X., et al. Gut microbiota in the early stage of Crohn's disease has unique characteristics. Gut Pathog. 14 (1), 46 (2022).
- Vester-Andersen, M. K., et al. Increased abundance of proteobacteria in aggressive Crohn's disease seven years after diagnosis. Sci Rep. 9 (1), 13473 (2019).
- Boudeau, J., Glasser, A. L., Masseret, E., Joly, B., Darfeuille-Michaud, A. Invasive ability of an Escherichia coli strain isolated from the ileal mucosa of a patient with Crohn's disease. Infect Immun. 67 (9), 4499-4509 (1999).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Barnich, N., et al. Adherent-invasive Escherichia coli in Crohn's disease: the 25th anniversary. Gut. , (2025).
- Kim, J., et al. Genetic and microbial analysis of invasiveness for Escherichia coli strains associated with inflammatory bowel disease. Cell Mol Gastroenterol Hepatol. 19 (4), 101451 (2025).
- Camprubi-Font, C., Martinez-Medina, M. Why the discovery of adherent-invasive Escherichia coli molecular markers is so challenging?. World J Biol Chem. 11 (1), 1-13 (2020).
- Barnich, N., et al. CEACAM6 acts as a receptor for adherent-invasive E. coli, supporting ileal mucosa colonization in Crohn disease. J Clin Invest. 117 (6), 1566-1574 (2007).
- Boudeau, J., Barnich, N., Darfeuille-Michaud, A. Type 1 pili-mediated adherence of Escherichia coli strain LF82 isolated from Crohn's disease is involved in bacterial invasion of intestinal epithelial cells. Mol Microbiol. 39 (5), 1272-1284 (2001).
- Hase, K., et al. Uptake through glycoprotein 2 of FimH(+) bacteria by M cells initiates mucosal immune response. Nature. 462 (7270), 226-230 (2009).
- Chassaing, B., et al. Crohn disease--associated adherent-invasive E. coli bacteria target mouse and human Peyer's patches via long polar fimbriae. J Clin Invest. 121 (3), 966-975 (2011).
- Glasser, A. L., Boudeau, J., Barnich, N., Perruchot, M. H., Colombel, J. F., et al. Adherent invasive Escherichia coli strains from patients with Crohn's disease survive and replicate within macrophages without inducing host cell death. Infect Immun. 69 (9), 5529-5537 (2001).
- Bringer, M. A., Billard, E., Glasser, A. L., Colombel, J. F., Darfeuille-Michaud, A. Replication of Crohn's disease-associated AIEC within macrophages is dependent on TNF-alpha secretion. Lab Invest. 92 (3), 411-419 (2012).
- Ristuccia, A. M., Cunha, B. A. An overview of amikacin. Ther Drug Monit. 7 (1), 12-25 (1985).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., et al. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Vllasaliu, D., Falcone, F. H., Stolnik, S., Garnett, M. Basement membrane influences intestinal epithelial cell growth and presents a barrier to the movement of macromolecules. Exp Cell Res. 323 (1), 218-231 (2014).
- Wine, E., Ossa, J. C., Gray-Owen, S. D., Sherman, P. M. Adherent-invasive Escherichia coli, strain LF82 disrupts apical junctional complexes in polarized epithelia. BMC Microbiol. 9, 180 (2009).
- Jamur, M. C., Oliver, C. Permeabilization of cell membranes. Methods Mol Biol. 588, 63-66 (2010).
- Delmas, J., et al. Metabolic adaptation of adherent-invasive Escherichia coli to exposure to bile salts. Sci Rep. 9 (1), 2175 (2019).
- Zhang, S., et al. Mucosal metabolites fuel the growth and virulence of E. coli linked to Crohn's disease. JCI Insight. 7 (10), (2022).
- Viennois, E., et al. Dietary emulsifiers directly impact adherent-invasive E. coli gene expression to drive chronic intestinal inflammation. Cell Rep. 33 (1), 108229 (2020).
- Chassaing, B., Etienne-Mesmin, L., Bonnet, R., Darfeuille-Michaud, A. Bile salts induce long polar fimbriae expression favouring Crohn's disease-associated adherent-invasive Escherichia coli interaction with Peyer's patches. Environ Microbiol. 15 (2), 355-371 (2013).
- Gotoh, K., et al. Bile acid-induced virulence gene expression of Vibrio parahaemolyticus reveals a novel therapeutic potential for bile acid sequestrants. PLoS One. 5 (10), e13365 (2010).
- Bajunaid, W., et al. The T3SS of Shigella: Expression, structure, function, and role in vacuole escape. Microorganisms. 8 (12), (2020).
- Poore, K., Lenneman, B. R., Faherty, C. S. Epithelial cell infection analyses with Shigella. J Vis Exp. (204), e66426 (2024).
- Chimalapati, S., Lafrance, A. E., Chen, L., Orth, K. Vibrio parahaemolyticus: Basic techniques for growth, genetic manipulation, and analysis of virulence factors. Curr Protoc Microbiol. 59 (1), e131 (2020).
- Rodrigues, E., Marzook, N. B., Pallett, M. A., Sateriale, A. Convergent mechanisms of epithelial cell structure manipulation by intestinal pathogens. PLoS Pathog. 21 (7), e1013367 (2025).
- Jaishankar, J., et al. A critical role for Vibrio parahaemolyticus LPS to mediate evasion of host immune response during infection. Proc Natl Acad Sci U S A. 122 (33), e2426547122 (2025).
- Cieza, R. J., Hu, J., Ross, B. N., Sbrana, E., Torres, A. G. The IbeA invasin of adherent-invasive Escherichia coli mediates interaction with intestinal epithelia and macrophages. Infect Immun. 83 (5), 1904-1918 (2015).
- Liu, H., Semino-Mora, C., Dubois, A. Mechanism of H. pylori intracellular entry: an in vitro study. Front Cell Infect Microbiol. 2, 13 (2012).
- Heesemann, J., Laufs, R. Double immunofluorescence microscopic technique for accurate differentiation of extracellularly and intracellularly located bacteria in cell culture. J Clin Microbiol. 22 (2), 168-175 (1985).
- Lev-Tzion, R., Ledder, O., Shteyer, E., Tan, M. L. N., Uhlig, H. H., et al. Oral vancomycin and gentamicin for treatment of very early onset inflammatory bowel disease. Digestion. 95 (4), 310-313 (2017).
再版と許可
