本研究では、抗原検出法およびデジタルPCR法を用いて得られた24種類のHelicobacter pylori(H. pylori)培養細菌懸濁液の検出結果を比較し、その相関性を分析することで、H. pylori 標準物質の特性評価およびin vitro診断評価における意義を検討しました。
この記事について
サマリー
要約
Helicobacter pylori (H. pylori) 診断の標準化は、不均一な検出アッセイ間で依然として困難な課題となっています。免疫クロマトグラフィーは H. pylori 特異的な抗原を検出しますが、得られる結果は定性的のみであり、非特異的結合や競合的阻害を介した非標的溶解性細菌タンパク質による干渉を受けやすいという特性があります。対照的に、デジタルPCR (dPCR) はゲノムDNAコピー数の精密な定量が可能であり、生存細菌と非生存細菌の両方を識別できます。本研究では、免疫クロマトグラフィーから導出されたエンドポイントタイター(検出可能な最高の2倍連続希釈の逆数として算出される半定量値)と、dPCRで定量した核酸コピー数を比較しました。微好気条件 (85% N2, 10% CO2, 5% O2) 下、5% 脱フィブリノ羊血を添加したBrucella寒天培地で 37 °C で 72 h 培養した 24 種の H. pylori 細菌懸濁液を用い、抗原検査とdPCR測定を並行して実施しました。統計的評価にはピアソン相関分析および線形回帰を適用しました。その結果、抗原タイターとゲノムコピー数の間に有意な正の相関が認められました (r = 0.536, n = 24, P = 0.007)。しかし、決定係数が低いこと (R2 = 0.287) から、予測能は限定的であることが示されました。これは、抗原タイターがdPCRで測定された分散のわずか 29% しか説明できず、単一サンプルによる堅牢な予測を支持できないためです。dPCRが高くタイターが低いという不一致なプロファイルは、非生存細菌の残渣や遊離ゲノムDNAに起因する可能性があります。抗原ベースのアッセイと核酸ベースのアッセイは、生物学的に関連しているものの、互換性のない分析物を定量しています。標準物質の開発および診断アッセイのバリデーションには、コロニー形成単位、抗原タイター、およびゲノムコピー数を組み合わせたマルチパラメータ特性解析が推奨されます。本研究は、診断上の不一致を解消するための H. pylori 特異的なコンセンサスガイドラインの必要性を強調するものです。
概要
Helicobacter pylori (H. pylori)は、ヒトの胃腸管、特に胃前庭部に一般的に定着する微好気性グラム陰性桿菌である。本菌は、慢性胃炎、消化性潰瘍、および胃癌の主要な原因となる1,2。ヒト間でのH. pyloriの伝播は主に経口または糞口ルートで起こり、世界的に普及しているが、感染率は地域によって異なる。先進国では感染率は約50%であるのに対し、一部の開発途上国では最大80%に達することがある3。1994年、世界保健機関(WHO)はH. pyloriを胃癌のグループ1発がん物質に分類した4。CagA(サイトトキシン関連抗原A)やVacA(空胞化誘発細胞毒素A)などの主要な病原性因子が慢性炎症と上皮損傷を促進し、グループ1発がん物質としての分類を裏付ける病原性メカニズムに寄与している。2018年において、H. pylori感染に起因する癌症例数は810,000件に達し、ヒトパピローマウイルス(HPV)、B型肝炎ウイルス(HBV)、およびC型肝炎ウイルス(HCV)によって引き起こされる子宮頸癌と肝癌の合計症例数を上回った5。この統計は、H. pyloriがもたらす重大な癌リスクを浮き彫りにしており、一部の研究によれば、未治療の場合、約1%〜3%の確率で胃癌に至る可能性がある。H. pylori感染の世界的な有病率が高いため、単なる検出だけでなく精密な定量を行うことが公衆衛生上の優先事項となっている。なぜなら、正確な細菌量の評価が治療方針の決定を導き、不必要または失敗に終わる除菌療法の回避に役立つからである。したがって、H. pyloriの正確な検出と定量は、疫学調査、治療計画の選択、および治療効果の評価において極めて重要である。
~に起因するがん負担が相当なものであることを踏まえ、 H. pylori正確な検出と定量は、疫学的監視、治療法の選択、および治療モニタリングにおいて極めて重要である。現在の非侵襲的な手法には、便抗原検査(SAT)、尿素呼気試験、および分子生物学的アッセイがある。デジタルPCR(dPCR)は高い精度と絶対定量能を有するが、SATと比較してコストが高く、技術的な複雑さと装置要件があるため、臨床応用が制限されている。この格差があるため、dPCRを定量的な参照基準として用い、SATの標準化を向上させることを目的として、これら2つの手法間の相関性を検討する必要がある。
新興の絶対定量技術であるデジタルPCR(dPCR)は、標準曲線に依存することなく、標的遺伝子の絶対コピー数を直接的に検出することができる。 H. pylori 研究において、dPCRは胃粘膜、唾液、および糞便検体中の細菌定量に利用されてきた。6,7.
in vitro診断用試薬の開発、品質評価、および規制において、結果の正確性、比較可能性、およびトレーサビリティを確保するためには、標準物質の調製と校正が不可欠です。細菌のin vitro診断用試薬(H. pylori抗原/抗体検出試薬など)の場合、標準物質には、濃度または活性単位が明確に定義された菌株または臨床検体が含まれている必要があります。従来の細菌定量法はコロニー形成単位(CFU/mL)であり、これは増殖能力を持つ生存細菌数を直接的に反映するため、細菌標準物質の値決定、試薬の感度評価、および手法間の比較に頻繁に用いられています8。CFUは依然として広く利用されていますが、検出時間、材料消費、および人件費の面で明らかな限界があります9。
in vitro診断技術の利用が拡大するにつれ、dPCRなどの分子生物学的手法により、病原体をより高い精度と感度で定量することが可能となりました。同時に、抗原タイトレーションなどの免疫学的手法も臨床現場で広く適用されるようになっています。しかし、実際の運用においては、収集された臨床分離株や調製された標準試料の多くが不活化サンプルや長期保存サンプルであるため、生菌培養やCFU計数を行うことが困難または不可能な場合があります10。参照物質を調製する際は、バイオセーフティ要件を満たし、物質の長期安定性を確保するために不活化処理が不可欠です。したがって、抗原や核酸に基づく定量法が、値決定のための不可欠な手段となります8,11。
これにより、これら2つの異なる定量アプローチの相関性と同等性に関する実用的な疑問が生じます。すなわち、標準物質の評価に抗原検出とdPCRを用いた場合、これら2つの方法の結果の間に、安定して定量可能な関係があるのかということです。限定的な数の不活化H. pyloriサンプルを用いた予備実験では、イムノクロマト法によるシグナル強度と、dPCRで定量したDNAコピー数との間に一貫した正の相関が認められました。我々は、不活化細菌サンプルにおいて、イムノクロマト法で測定したH. pylori抗原価と、dPCRで定量したDNAコピー数との間に、有意かつ一貫した正の相関があるという仮説を立てました。もしこのような相関が存在すれば、抗原に基づく定性的結果を定量的な核酸相当量に変換することが可能になります。これは、従来の培養法が困難な場合における、試薬の性能評価、標準の確立、参照物質の割り当て、および臨床検査結果の解釈のための重要な根拠となるでしょう。
現在、H. pylori抗原の結果と核酸含有量の関係に関する研究は不十分であり、レビュー、規制、および標準化作業を裏付ける体系的なデータが不足しています。この仮説を検証するため、本研究では24種類のH. pylori細菌培養懸濁液を用いて並行試験を行い、コロイド金免疫クロマトグラフ法で検出された抗原価とdPCRによる絶対定量結果との相関性を体系的に分析しました。得られた知見に基づき、H. pylori検出試薬の性能評価および標準物質の値の割り当てに関する参考意見を提示します。
プロトコル
本研究に含まれるすべてのHelicobacter pylori分離株は、もともと鄭州大学第五附属病院によってヒトの胃生検および糞便検体から分離されたものであり、同病院から完全に処理され匿名化された細菌懸濁液が提供され、in vitro実験に使用されました。すべての元の手順(臨床検体の採取、細菌の分離、および初期の凍結保存)は、鄭州大学第五附属病院の倫理委員会によって承認されました(倫理承認番号: KY2026080)。検体採取に先立ち、すべての参加者からインフォームドコンセントを得ており、すべての手順はヘルシンキ宣言および関連する国の生物医学研究倫理ガイドラインを厳守して行われました。患者を特定できるすべての情報は、サンプルの転送前に提供元の病院によって永久に削除されており、本研究で報告された実験材料または結果から個々の患者の身元を推測することはできません。
本研究では、追加の独立した倫理的承認またはインフォームドコンセントは必要ありません。すべての実験は、匿名化された細菌懸濁液を用いたin vitroアッセイのみで構成されており、元のヒト検体、患者の診療記録、または個人のプライバシー情報へのアクセスはありません。国家の生物医学研究倫理規定に従い、完全に匿名化された微生物分離株を利用する非介入的なin vitro研究は、倫理的免除の基準を満たしています。鄭州大学第五附属病院による元の倫理的承認は、これらの匿名化された菌株のあらゆる正当な二次的学術利用をすでにカバーしており、これは施設倫理委員会によって公式に確認されています。
すべて H. pylori in vitro 実験は、有効なバイオセーフティ認証(バイオセーフティレベル2、BSL-2、北京市東城区衛生健康委員会ラボバイオセーフティ届出[2020]第059号)を受けた研究室において、施設内の標準作業手順書に従い、すべてのバイオセーフティ審査および承認要件を満たして実施された。本研究のバイオセーフティ承認は、熱不活化したものを含むすべての手順を対象としている。 ピロリ菌 完全に不活化されていない材料(すなわち、生存可能PCRによって特性解析された、生存可能な微生物が残留している材料)の取り扱いを含む材料。研究期間を通じて、標準的な微生物学的慣行、個人用保護具(PPE)の要件、および廃棄物除染手順を厳格に遵守した。すべての細菌試料は、バイオハザード廃棄物管理に関する施設ガイドラインに従い、廃棄前に適切に不活化された。使用したすべての試薬、装置、および統計解析に使用したソフトウェアの詳細は、以下に記載されている。 材料リスト
菌株および培養
注意:H. pyloriはリスクグループ2のヒト病原体です。生存培養物のすべての操作(接種、培養、および懸濁液の調製)は、ラボコート、手袋、および眼保護具を着用し、BSL-2施設内の認定されたバイオセーフティキャビネット内で行わなければなりません。
56 °Cで25分間の加熱不活化を行うことで、生存可能な微生物は大幅に減少しますが、完全に排除されるわけではありません(セクション1を参照してください)。部分的に不活化された懸濁液は、引き続きBSL-2条件下で取り扱う必要があります。すべての生物学的廃棄物および汚染された消耗品は、廃棄前にオートクレーブ(121 °C、≥30分)で滅菌するか、施設内のバイオセーフティ手順に従って消毒しなければなりません。ここに記載されたBSL-2での作業は、同一のバイオセーフティ届出(北京市東城区衛生健康委員会実験室生物安全届出 [2020] No. 059)の下で承認されました。
The ヘリコバクター・ピロリ 本研究で使用した菌株は24種類の培養細菌懸濁液であり、これらは当初、鄭州大学第五附属病院によってヒト胃生検検体および糞便検体から得られ、その後、細菌懸濁液の形態で以下の菌株保存庫へと移送された。 インビトロ 国立医薬品食品衛生研究所 感染症診断部 (NIDC)、中国・北京より分譲され、本研究におけるすべての実験作業はNIDC(中国・北京)で実施した。これらの菌株を5%脱フィブリン羊血を添加したBrucella培地プレートに接種し、微好気条件下(85% N2₂, 10% CO₂, 5% O₂₂) で 37 °C 72時間。この培養時間は定常増殖期に相当し、この期間中、各菌株の抗原発現は比較的安定している。その後、細菌懸濁液を回収した。
熱不活化は、デジタルウォーターバスを用いて56 °Cで25分間行った。この処理は、バイオセーフティー要件を満たし、参照物質の長期安定性を確保するために実施した。56 °Cで25分間の熱不活化により細菌の生存能は劇的に低下するが、後続の生存能PCR解析によって確認されたように、すべての生存生物が完全に除去されるわけではない。24種類の培養細菌懸濁液における生存残存分率の中央値は4.6%(範囲 0.00%–33.00%)であった(結果セクション6および考察を参照)。本研究のバイオセーフティー承認は、完全に不活化されていない材料を用いた作業を対象としている(倫理およびバイオセーフティー声明を参照)。熱処理がほとんどのH. pylori表面抗原の変性閾値を下回っているため、抗原検出への熱不活化の潜在的な影響は最小限であると考えられるが、一部の熱不安定性タンパク質抗原の完全性には影響を及ぼす可能性がある。DNA定量に関しては、熱不活化によってゲノムDNAが分解されることはなく、むしろ細胞膜を破壊することで抽出効率が向上する場合がある。
抗原検出
採取した24種類の細菌懸濁液をPBSで100倍に希釈し、抗原検出サンプルを調製した。100倍の初期希釈を行うことで、抗原濃度を市販キットの線形検出範囲内に調整し、マトリックス干渉を最小限に抑え、これにより信頼性と精度の高い検出結果を確保することができる。また、希釈によってサンプル量も節約される。これらのサンプルを、コロイド金法、ラテックス法、免疫クロマトグラフ法を含む、登録済みの8種類のH. pylori抗原検出キット(表1)を用いて検査した。結果が陽性であった場合、希釈サンプルを段階希釈(1:2、1:4、1:8など)し、結果が陰性になるまで検査を繰り返した。陽性を維持した最高の希釈倍率を記録し、これを「抗原の最終陽性希釈倍率」(例:1:64)と定義した。2倍段階希釈は、リン酸緩衝生理食塩水(PBS, 0.01 M, pH 7.2–7.4)を用いて調製した。サンプル適用後、各ストリップを室温で15–20分間インキュベートしてから判定した。結果は、トレーニングを受けたオペレーターがコントロールラインと比較して目視で判定し、テストラインが視認できた最高の希釈倍率をエンドポイントとして記録した。コロイド金ストリップは目視で判定するため、カットオフ値はオペレーターに依存する。
複数の市販抗原検出キットを用いて試験した各サンプルについて、エンドポイントタイターはすべての個別キットタイターの中央値として定義されます。本研究で使用した8つのキットは、不均一な標的抗原および検出原理に基づいて設計されているため、これらの指標は共通の参照標準の存在を前提としていることから、キット間の整合性を定量化するためにCohen's KappaやCV%は使用しませんでした。したがって、キット間で観察された変動は、測定誤差ではなく、真の生物学的および分析的な不均一性を反映しています。中心傾向の堅牢な尺度である中央値は、キット固有の偏差を効果的に排除できます。24個のサンプル全体において、最高および最低のキットタイター間のサンプル内分散は2倍から16倍(中央値 4倍)の範囲でした。具体的には、キット間で2倍の差があったサンプルが6件、4倍が14件、8倍が3件、16倍が1件でした。各サンプルのキットごとの最小、中央値、および最大タイターは、付随表1(Supplementary Table 1)に記載しています。
デジタル PCR による定量検出
回収した24種類の細菌懸濁液をPBSで500倍に希釈し、dPCR定量検出のサンプルとして使用した。これらの希釈サンプルの絶対定量は、4つのdPCRラボによって実施された(表 2)。dPCRは、保存されたH. pyloriゲノム配列を標的とする、プラットフォーム固有の独自のプライマーおよびプローブセットを用いて実施した。本研究で使用したdPCR検出キットは、複数の病原体および複数の標的に適用可能な汎用試薬キットである。各プラットフォームは、コアな知的財産である特異的なプライマー/プローブ配列および標的遺伝子領域を独立して設計し、最適化した。これらの配列はエンドユーザーには開示されていない。我々は、H. pyloriの特異的な検出標的が、特異的検出が可能であると検証済みの保存されたゲノム領域であることのみを通知されていた。24株のHelicobacter pyloriの23S rRNA遺伝子配列は、BioProjectアクセッション番号PRJNA1520048としてNCBI GenBankに登録されている。これらの配列は株の同一性確認のために提出されたものであり、dPCRの定量標的ではない。プライマー/プローブの設計、増幅化学、およびポアソン分布に基づくパーティション計数は各プラットフォーム独自の所有物であるため、これらの工程はプラットフォームに依存し、製造元のアクセスなしに再現することはできない。対照的に、上述のサンプル希釈、抽出反復、およびデータ集計の手順はプラットフォームに依存せず、完全に規定されている。絶対コピー数は、装置独自の解析ソフトウェアに実装されているポアソン分布アルゴリズムを用いて算出した。具体的な計算パラメータおよびソースコードは製造元の所有物であり、エンドユーザーには開示されていない。最終的に、ポアソン分布と希釈倍数に基づき、元の溶液中の標的遺伝子の絶対コピー数(copies/mL)を算出した。
4つの独立したdPCRラボ(Sniper、Jiangsu Bioperfectus Technologies Co., Ltd.、Ustar Biotechnologies Ltd.、およびTargetingOne)が本研究に参加し、それぞれが自社インストゥルメントプラットフォームに最適化された独自の抽出キットとdPCR試薬を使用し、すべて保存されたH. pyloriゲノム配列をターゲットとしました。各プラットフォームに未希釈の細菌懸濁液が提供され、それぞれのプロトコルに従ってサンプルを調製しました。Ustarでは未希釈の懸濁液をそのまま使用し、Sniper、Jiangsu Bioperfectus Technologies Co., Ltd.、およびTargetingOneでは抽出前にPBSで500倍に希釈しました。各プラットフォームにおける各分離株について、同一の500倍希釈細菌懸濁液から2回の独立した核酸抽出を行い、各抽出物を3連(triplicate)でテストしたため、1プラットフォームあたりの1分離株につき6回の測定値が得られました(Ustarにおいて、1回の抽出で有効な反復測定が2回のみであった例外が1件ありました)。陽性ドロップレット数がインストゥルメントの下限検出値を下回った場合、またはテンプレートなしコントロール(NTC)で非特異的な増幅が認められた場合、その反応は無効と判定して除外しました。無効な反応は1回繰り返し、それでも失敗が続く場合は抽出物全体を除外しました。プラットフォームごとの生データはSupplementary Table 1に記載されています。
データの集計は2段階の手順に従って行われました。まず、各プラットフォーム内のすべての有効な生測定値(copies/µL)を平均し、プラットフォーム固有の変換式を用いて、元の希釈前の細菌懸濁液濃度(copies/mL)に変換しました。次に、各分離株について、4つのプラットフォームから得られた濃度を平均(算術平均)し、最終的な単一のコピー数値を算出しました。この枠組みにより、プラットフォーム内の繰り返し測定による変動に関わらず、各プラットフォームが等しく寄与することを保証し、個々の機器や試薬システムに固有の系統誤差を軽減しています。
培養した各細菌懸濁液を4つのdPCRプラットフォームで並行して定量し、プラットフォーム間の変動を評価するために、各分離株についてlog₁₀変換したコピー数の変動係数(CV)を算出した。対応する結果は「結果」のセクションに記載している。
統計解析
H. pylori 抗原タイターは、陽性結果が観察された最高サンプル希釈因子の逆数として定義されました(例:1:64 の希釈はタイター 64 に相当します)。各分離株について、キット特異的な 8 つの抗原タイターは中央値で集約し、プラットフォーム特異的な 4 つの dPCR 濃度は算術平均で集約することで、後続の相関分析に使用する分離株あたりの単一の代表値を導出しました。このデータ削減戦略は、方法論的に以下のように正当化されます。(i) 8 つの抗原キットは、同等の免疫測定法の原理を用いて同一のアナライトを検出しており、中央値は散在的な外れ値に影響されない堅牢な推定値となるため。(ii) 4 つの dPCR プラットフォームのそれぞれが、保存された H. pylori ゲノム遺伝子座を定量しており、対数正規分布に従う濃度推定値の算術平均は、偏りのない中心的傾向を示すため。(iii) この集約は、キット間またはプラットフォーム間の分析性能を評価することではなく、分離株レベルでの抗原タイターに基づく定量法と DNA に基づく定量法の整合性を評価するという本研究の主目的に合致しているためです。抗原タイターと dPCR 定量値 (copies/mL) の相関は、まずピアソン相関分析を用いて評価されました。両変数とも、対数変換後は近似的に正規分布しており(歪度:log10 dPCR = −0.66、log2 抗原タイター = −0.60、回帰残差の歪度 = −0.16)、ピアソン相関の前提条件を満たしています。抗原タイターは 2 倍段階希釈の線形化を反映させるために log2 変換し、dPCR の結果は細菌量標準の報告形式に準拠して log10 変換しました。その後、線形的な関連性を評価するため、log2 変換した抗原タイターと log10 変換した dPCR 結果を用いて、ピアソン相関および線形回帰分析を行いました。すべての分析において、有意水準 (α) は 0.05 とし、P < 0.05 を統計的に有意とみなしました。すべての統計解析は、SPSSPRO オンライン統計分析プラットフォームを使用して実施されました。
結果
比較 H. pylori 抗原価およびdPCR絶対定量結果
培養した24種類の細菌懸濁液の全体で、抗原価は8~256の範囲であり、中央値は32であった(表1)。dPCR定量結果は2.67から × 107 コピー/mL から 2.04 × 10⁹ コピー/mL、中央値はlog₁₀ = 8.61 (≈4.09 × 10⁸ コピー/mL)(表2)。生データでは非線形の関係が示されており、べき乗則または指数関数的関連を示唆しており、このため抗原タイターやdPCR定量値の両方に後続の対数変換を適用することが正当化された。
log変換した抗原タイターとdPCR定量結果との間の線形関係
2つの検出法の結果間に有意な相関があるかどうかを検定するため、両変数は対数変換後にほぼ正規分布に従うことから、対数変換を適用し、ピアソンの相関分析を実施した。図示するように、 図1変換後、抗原価(log2変換)とdPCRの絶対定量結果(log10変換)は、有意な中程度の正の線形相関を示した(r = 0.536、n = 24、 P = 0.007).
抗原タイターとdPCRコピー数との関係の定量化モデル
2つの検出法間の関係を定量化し、相互に予測する可能性を評価するため、今後抗原価を用いて細菌量を予測する回帰モデルを活用する目的で、対数変換したデータに対して線形回帰分析を適用した。この解析により、log2 (抗原価)および対数10 (dPCR)、以下の式が得られる:log10(dPCR) = 0.1588 × ログ2(力価)+ 7.7988(R2 = 0.287)。回帰係数(標準誤差および95%信頼区間を含む)は、傾き0.1588であった。 ± 0.053(95%信頼区間 0.048–0.270)および切片7.7988 ± 0.292(95%信頼区間 7.193–8.404)であり、残差の標準誤差は0.318 logであった10 単位、および全体の回帰は有意であった(F(1,22) = 8.84, P = 0.007)。これは、抗原タイターが2倍になるごとに、dPCRコピー数がわずか1.441倍(100.1588)。ただし、特定の抗原力価に対して、dPCR結果の95%予測区間はほぼ2桁の範囲にわたり得る(たとえば、力価1:32では、予測区間は約8.3である × 107 1.85まで × 109コピー/mL)。これは実用上、抗原タイターだけでは単一の試料における核酸のコピー数を正確に予測できないことを示している。しかし、本モデルを用いることで、群レベルの比較における桁数の概算は可能になるかもしれない。ただし、説明力が中程度(R2 = 0.287).
dPCR定量および相関の感度分析におけるプラットフォーム間変動性
ログでの検体間変動の評価10対数正規分布する微生物定量データを考慮し、濃度を変換した。4つのプラットフォームから得られた対数値間の変動係数(CV%)10 24株の間で濃度は0.9%から8.3%の範囲(中央値1.8%、平均2.5%)であった。1つの外れ値(Hp06、CV = 8.3%)は、 >スナイパー(5.93)との30倍の差異 × 108 コピー/mL)およびTargetingOne(1.50 × 107 コピー/mL);この分離株を除外した場合、変動係数(CV)は0.9%から6.4%の範囲であった。この外れ値が観察された抗原の結果に影響を与えていないことを確認するため、–dPCR相関において、Hp06を除外した感度分析を実施したところ、r = 0.479、R2 = 0.230、および P = 0.021(n = 23) — 24株すべてを含む主解析と同等 — この分散は、抽出効率、試薬の感度、機器の較正におけるプラットフォーム間の体系的な差異に起因しており、ランダムな測定誤差ではないことを示しており、プラットフォーム固有のバイアスを低減するためにクロスプラットフォーム平均化を行うことを支持している。
二重手法の閾値を用いた結果の定義と分類
上記の分析および探索的かつデータセット固有の基準に基づき、本研究では抗原検出価の中央値を1:32とし、抗原検出が高いと判断するための閾値とした。これは抗原価データの正規分布に従わない分布を考慮したものであり、実際の中央値の対数を採用した。₁₀(dPCR)=8.61(≈4.09 × 10⁸ コピー/mL)を高核酸含量のしきい値とした。これらのしきい値は、培養分離株のデータから導き出された、探索的かつデータセット固有のカットオフ値であり、検証済みの臨床診断基準を意味するものではない。したがって、これらのカットオフ値を他のサンプル群や解析環境に適用する場合には、直接的に流用するのではなく、対応するデータから再び導出を必要とする。
探索的閾値の使用(抗原価) ≥ 1:32 高さ ≤ 1:16 は低値;dPCR ログ₁₀ ≥ 8.61という高い核酸量)の場合、24の培養細菌懸濁液の四象限分類(図2、表3)は以下の通りである:9個のサンプル(Hp03、Hp04、Hp11、Hp13、Hp18、Hp19、Hp21、Hp22、Hp25)は高抗原群に分類される–高核酸群(37.5%);3検体(Hp09、Hp26、Hp27)は低抗原群に分類される–高核酸(12.5%);8個の検体(Hp01、Hp02、Hp05、Hp08、Hp10、Hp14、Hp15、Hp17)が高抗原を示す–低核酸(33.3%);および4検体(Hp06、Hp07、Hp12、Hp20)は低抗原に属する–低核酸群(16.7%)に分類された。24株の分離株は平均して1群あたりわずか4検体という6つの力価群に分類されたため、群間比較(例えばKruskal-Wallis検定)を行ったとしても十分な統計的検出力が得られない。したがって、各力価群におけるdPCR定量結果については記述的な要約のみを示す。
熱不活性化後の残存生存率(バイアビリティPCR)
熱不活化後の残留生菌数を定量するために、すべての24株に対して生存性PCR試薬系を用いた。簡単に述べると、各熱不活化菌懸濁液(200 µL)を1.5 mLチューブに移し、13,000 × gで10分間遠心分離した。上清を除去し、各ペレットに25 µLのプロテイナーゼ溶液(20 mg/mL)と50 µLの生存性PCR用染料(4 mMピロリドン-1-イルプロパノン)を加えた。混合物を室温で20分間、暗所でインキュベートした後、13,000 × gで10分間遠心分離し、上清を除去した。各ペレットに50 µLのPBSを加え、再懸濁した。その後、各サンプルに200 µLのDNA抽出バッファーを加え、取扱説明書に従って自動核酸抽出装置を用いてDNAを抽出した。抽出したDNAは、16S rRNA遺伝子増幅用のリアルタイムPCRにより定量した。リアルタイムPCRは、初期変性95°Cで10分間、その後40サイクルの95°Cで15秒間、60°Cで1分間の条件下で行った。得られたCt値を用いて、生存菌数を相対定量した。 µL)を、膜透過性のないViability PCR試薬(10)とインキュベートした µM 最終濃度)を37℃で °75分間37°Cで反応させ、並行して試薬を添加しないコントロールを設ける(−VR)を同様に処理した。その後、Viability PCR Neutralization Buffer(20 µL, 10×)し、室温で15分間インキュベートした。ゲノムDNAは+VRおよび −VR アリコートを採取し、各抽出物に対して dPCR を行った。生存可能な fraction は、+VR に対する比として算出した。 −VRコピー数 × 100%。中央値としての生存率は4.6%(範囲0.00%)であった–33.00%;各単離株ごとの完全な結果を 補足表2)。生存率は抗原価と有意な相関を示さなかった(r = 0.03, P = 0.90)またはdPCRコピー数(r = 0.37、 P = 0.08).
データ利用可能性:
24の23S rRNA遺伝子配列 ヘリコバクター・ピロリ 株はNCBI GenBankのBioProject受入番号PRJNA1520048として登録されている。これらの配列は株の同定確認のみに使用され、dPCR定量のターゲットを表すものではない。dPCR定量のターゲットは、プロトコルで記述されているように、メーカー独自の保存されたゲノム領域である。
8種類の市販コロイド金免疫クロマトキットによるキット固有の抗原価および4種類のデジタルPCR装置による装置固有のdPCR定量値は、商業上の機密性、製造業者との機密保持契約、およびCEマーク/National Medical Products Administration承認に関連する規制上の制限があるため、公開リポジトリに登録できない。 in vitro 診断用製品
必要に応じて、適用される機密保持契約および規制上の制限に従い、追加の制限付きデータを機密性を保持した形で提供することがあります。
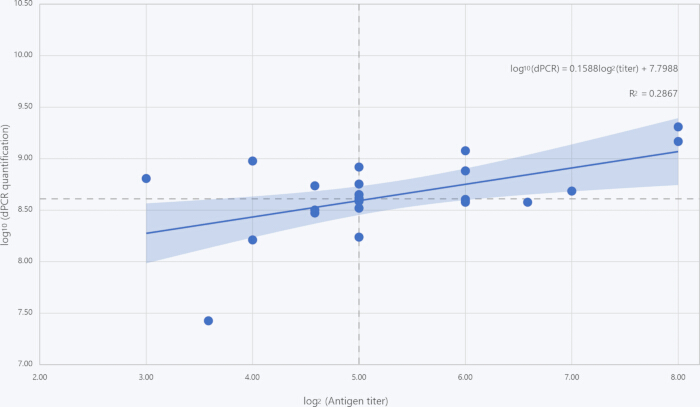
図1:相関関係 Helicobacter pylori 抗原価とデジタルPCR(dPCR)定量 24の培養細菌懸濁液(n = 24)における抗原価とDNAコピー数との関係を示すために、回帰直線付きの散布図が示されている。抗原価は視覚的読取りによるコロイド金免疫クロマトグラフィー法で測定した。各試料について段階希釈を行い、価は陽性結果が得られる最も高い希釈倍率として表した(x軸には対数表示で示す)2変換された無次元値)。DNAコピー数はdPCRによって定量され、y軸には対数スケールで示されている10変換後濃度(log)10 コピー数/mL)。各点は個々の細菌懸濁液サンプルを示す。青色の実線は線形回帰フィットを表す。回帰線周囲の陰影付き帯域は、フィットされた平均応答の95%信頼区間を示す。破線の垂直線および水平線は、探索的分類閾値(log₂ titer = 5、すなわち1:32;log₁₀ dPCR = 8.61、すなわち4.09 × 10⁸ コピー/mL)は図2および表3で使用したものである。相関はピアソンの相関係数を用いて評価し、r = 0.536 となった。 P = 0.007, R2 = 0.287であり、2つの方法間には統計的に有意な正の相関があることを示している。 この図の拡大版をご覧になるには、ここをクリックしてください。
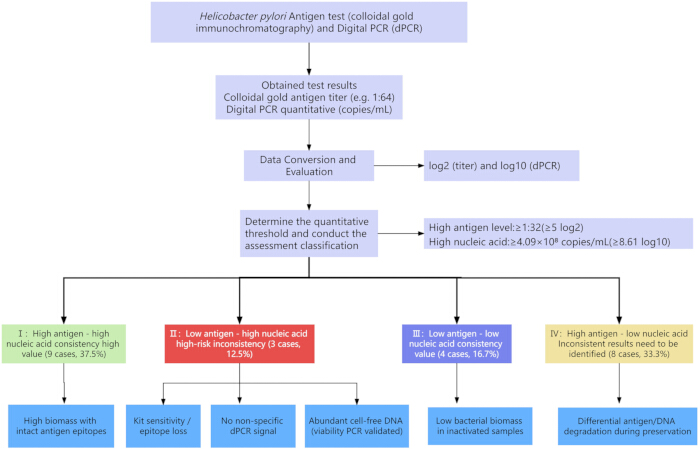
図2:分析的分類フレームワーク H. pylori 抗原検査結果とdPCR定量を組み合わせた検査 この図は、免疫クロマトグラフィー法による抗原価とdPCR定量結果との一致に基づいた、24種の培養細菌懸濁液(n = 24)の4象限分類を示している。探索的かつデータセット固有の閾値(抗原価 ≥ 1:32 高さ ≤ 1:16 を低値として;dPCR ログ₁₀ ≥ 8.61 の高い核酸量)、サンプルは以下の抗原レベルに分類される:高抗原–高核酸(n = 9、37.5%)、高抗原–低核酸(n = 8、33.3%)、低抗原–高核酸(n = 3、12.5%)、および低抗原–核酸量が低い(n = 4、16.7%)。これらの閾値は培養分離株のデータから得られた探索的カットオフ値であり、検証済みの臨床診断基準を示すものではない。この分類枠組みは、免疫学的検出法と分子検出法との間の一致および不一致を示している。分類にずれが生じるカテゴリは、抗原の安定性、細菌の生存能力、またはDNAコピー数の変動などの要因を反映している可能性がある。本枠組みは分析的比較を目的としたものであり、臨床診断や治療に関する推奨を示すものではない。 この図の拡大版をご覧になるには、ここをクリックしてください。
| No. | 検出試薬 | メーカー |
| 1 | ヘリコバクター・ピロリ抗原検出キット(コロイド金法) | Bioneovan株式会社 |
| 2 | 胃用ヘリコバクター・ピロリ(HP)抗原検出キット(コロイド金法) | 上海化学工業株式会社バイオテック |
| 3 | ヘリコバクター・ピロリ抗原検出キット(コロイド金法) | 江蘇モールバイオサイエンス有限公司 |
| 4 | ヘリコバクター・ピロリ抗原検出キット(コロイド金法) | 杭州ジェネシスバイオディテクション & バイオコントロール株式会社 |
| 5 | ヘリコバクター・ピロリ抗原検出キット(コロイド金法) | 江蘇コーウィンバイオテク株式会社 |
| 6 | ヘリコバクター・ピロリ抗原検出試薬(ラテックス法) | ABON Biopharm (Hangzhou) Co. Ltd |
| 7 | ヘリコバクター・ピロリ(HP)抗原検出試薬(免疫クロマト法) | 広州万孚生物技術有限公司 |
| 8 | ヘリコバクター・ピロリ抗原検出キット(コロイド金法) | 北京コアテクノロジー有限公司 |
表1:リスト ヘリコバクター・ピロリ 抗原検出試薬およびその製造元 表は、検出を目的とした市販の免疫クロマトグラフィー法を8種類列挙している H. pylori 抗原。本研究で評価された各製品について、製造元が提供する製品番号(No.)、検出試薬の商品名、および製造元'名称が示されている。これらのキットは、臨床診断および現場検査(POCT)における広範な利用実績に基づいて選択された。すべての情報はメーカーから取得したものである。' 製品添付文書および公式ウェブサイト(2026年3月に参照)に基づく。これらの試薬を記載することは、推奨を意味するものではなく、利用可能な検査法の多様性を示す代表例である。
| No. | 機器のモデル | デジタルPCRプラットフォーム |
| 1 | DQ24 | スナイパー |
| 2 | Bio Rad QX200 ドロップレットデジタルPCR | 江蘇バイオパーフェクトゥステクノロジーズ有限公司 |
| 3 | DQ24 Pro | Ustar Biotechnologies (Hangzhou) Ltd |
| 4 | TD-1 デジタルPCRシステム | ターゲティングワン |
表2:デジタルPCR(dPCR)プラットフォームおよび機器モデルの一覧 この表は、dPCRシステムを搭載した4つの実験室プラットフォームおよび検定に使用された対応する機器モデルを列挙している。これらのプラットフォームは、技術的多様性および現在のdPCR実装の代表例を考慮して選定された。すべての情報は各プラットフォームから提供されたものである。これらのプラットフォームを掲載することは、推奨を意味するものではない。これらはあくまで既存のdPCRシステムの範囲を示すものである。
| タイプ | 症例数 | 比率 | サンプル番号 |
| 高抗原 - 高核酸 | 9 | 37.5% | Hp03、Hp04、Hp11、Hp13、Hp18、Hp19、Hp21、Hp22、Hp25 |
| 抗原量が少ない - 核酸量が多い | 3 | 12.5% | Hp09、Hp26、Hp27 |
| 抗原低含有 - 核酸低含有 | 4 | 16.7% | Hp06、Hp07、Hp12、Hp20 |
| 高抗原 - 低核酸 | 8 | 33.3% | Hp01、Hp02、Hp05、Hp08、Hp10、Hp14、Hp15、Hp17 |
表3:本研究における抗原検査および核酸検査の結果の分類と割合 この表は、抗原タイター(免疫クロマトアッセイで測定し、陽性結果が得られる最高の希釈倍率として表される)と絶対定量デジタルPCR(dPCR)結果(logで表される)との一致に基づいて、24種の培養細菌懸濁液を分類している。₁₀ コピー/mL)。抗原力価のカットオフを1:32(高)として使用する ≥ 1:32、低 ≤ 1:16)およびdPCR定量のカットオフ値4.09 × 10⁸ コピー/mL(log₁₀ = 8.61)を探索的かつデータセット固有の閾値として、分離株は以下の4つのサブグループに分類された:高抗原・高核酸、低抗原–高核酸、高抗原–低抗原・低核酸。24検体のうち、9検体が高抗原と分類された–核酸含量が高い(37.5%;Hp03、Hp04、Hp11、Hp13、Hp18、Hp19、Hp21、Hp22、Hp25)、3つは抗原含量が低い–核酸量が高い(12.5%;Hp09、Hp26、Hp27)、8を抗原量が高いとして–核酸量が低い(33.3%;Hp01、Hp02、Hp05、Hp08、Hp10、Hp14、Hp15、Hp17)、および抗原量が低いものが4つ–核酸低値(16.7%;Hp06、Hp07、Hp12、Hp20)。各分類について、表には症例数(n)、全サンプル数に対する割合(%)、および各分類内のサンプル番号を示している。この分類は、免疫学的検出法と分子学的検出法との間の一致および不一致を示しており、不一致を示す分類は抗原の安定性、細菌の生存能、またはDNAコピー数の変動といった要因を反映している可能性があり、分析検査結果の解釈に有用な知見を提供する。
補足表1:24の抗原検出およびdPCR定量の集約データセット ヘリコバクター・ピロリ 分離株 シート1 (抗原検出):各分離株について、8種類の市販コロイド金免疫クロマトグラフィーキットによるキット別エンドポイント価、および各サンプルの最小価、中央値、最大価、サンプル内での倍数範囲。 シート 2 (デジタルPCR定量検出):各分離株についてのプラットフォーム固有のdPCR濃度(コピー/mL)およびプラットフォーム間の要約統計量(logにおける中央値、最小値、最大値、および変動係数%)₁₀変換後の濃度) シート 3 (相関および回帰分析):菌株レベルの対数₂変換後抗原価と対数₁₀変換後のdPCR濃度、ピアソン相関および線形回帰結果(r、R)2、回帰式)、外れ値Hp06を除外した感度分析、および詳細な回帰統計(標準誤差、95%信頼区間、残差標準誤差、F統計量、および P-値)。キット固有およびプラットフォーム固有の識別子は、商業的機密を守るため匿名化されている。データセットには、図1を再現するために必要なすべての値が含まれている。–2および表3。このファイルをダウンロードするには、ここをクリックしてください。
補足表2:24検体におけるViability PCRの結果 Helicobacter pylori 分離株 各分離株におけるdPCRによる生存性試薬のコピー数–処理群(+VR)および試薬省略群(−56℃で熱不活性化した後のVR)分取試料 °Cで25分間、計算された生存率(%)および等価量 Δ各分離株のCq。すべての分離株における生存可能 fraction の中央値は4.6%(範囲0.00%)であった–33.00%).このファイルをダウンロードするには、ここをクリックしてください。
ディスカッション
培養された24株のH. pylori分離株を用いた本研究において、免疫クロマトグラフ法による抗原力価とdPCRによるゲノムコピー数には、中程度ではあるが有意な正の相関(r = 0.536, P = 0.007)が認められた。しかし、抗原力価で説明できるdPCRコピー数の分散はわずか29%(R2 = 0.287)であり、これら2つの測定法は関連しているものの、互換性はない。本研究の主な限界はサンプルサイズが小さいこと(n = 24)であり、これにより統計学的検出力が制限され、以下に用いる分類しきい値が探索的な性質を持つ要因となっている。
本研究では、H. pylori培養液中の抗原価およびdPCRで検出された核酸コピー数を定量的に分析し、これら2つの手法の検出結果の間に中程度ながら有意な相関があることを明らかにしました(r = 0.536, P = 0.007)。集団レベルでは2つの手法の間に有意な相関が見られるものの、臨床現場では個体レベルでの不一致が頻繁に遭遇します。これは、検出対象が異なることで、病原体の異なる生物学的特性が反映されるためです。具体的には、抗原検査は細菌の消失後も残留し得るタンパク質を検出する一方、核酸検査は生存細菌が排除された後でも低レベルで持続し得るDNAを検出します。このような不一致は、さまざまな感染症において十分に報告されています。 例えば、Clostridioides difficile感染症の臨床診断において、一部の保菌者はトキシン遺伝子の検出では陽性となるものの、トキシンタンパク抗原の検出では陰性となり、その結果、感染者として誤診され、過剰治療や薬剤耐性の出現を招くことがあります。そのため、米国感染症学会(IDSA)12はガイドラインにおいて、Clostridioides difficileにおける「トキシン検出」と「トキシン遺伝子検出」の臨床的意義を明確に区別しました。核酸検査のみで感染を診断することは不十分であり、活性トキシンタンパクを直接検出できる手法を採用することが推奨されています。さらに、抗菌薬治療後の市中肺炎では、患者の喀痰中の細菌DNA量は急速に減少しますが、尿中抗原は回復後も陽性を示し、数週間から数ヶ月間持続します13。H. pylori感染症の診断および治療においても同様の現象が観察されます。2022年、Mayo Clinic Laboratoriesは、抗菌薬治療後のフォローアップ患者223名を評価し、糞便検体中の低レベルの残留DNAの検出においてPCRが比較的感度が高いことを評価しました。一部の患者では、臨床的に回復し抗原陰性であっても、数週間にわたってPCR陽性の結果が得られました14。これらすべてが、異なる検出対象による生物学的な差異を改めて裏付けるものです。
本研究では、〜の抗原価と〜の間の定量的相関および等価性の同定について *H. pylori* 免疫クロマトグラフィー法により検出され、dPCRによる定量値は、~の特性評価に向けた実用的な指針を提供します。 H. pylori 標準物質および〜の評価のための in vitro 診断用試薬。1) 製品性能評価モデルの高度化を推進する:現在、〜の臨床試験評価は H. pylori 抗原検出試薬の臨床検体を用いた盲検同期比較試験 "ゴールドスタンダード" 組織学的検査、培養、または尿素呼気試験など15本研究は、規制当局が審査プロセスの申請書類において、試験結果と核酸定量法の間の適切な相関データを提出することを企業に義務付け、製品の性能を明確に定義すべきであることを提案する。 "不一致な結果範囲"、複雑な臨床シナリオにおける本製品の検出能をより現実的に反映させ、試薬の検出限界(LOD)をより包括的に定義するためである。2)これにより、細菌標準物質の割り当てに関する新たなアプローチが提供される。すなわち、品質管理および校正用の標準物質を、単一の "CFU(コロニー形成単位)" 〜へ "多次元特性値"8 これらには、抗原価および核酸コピー数が含まれます。本研究で構築された回帰モデルは、これら2つの数値間の関係における桁数の概算を提示することができ、標準物質の使用やラボ間比較のための定量的な根拠となります。
製造業者は、分析単位(例:CFU/mLまたは抗原価)による検出限界(LOD)だけでなく、デジタルPCR(dPCR)で決定したゲノムコピー数としての等価値も記載することを推奨します。これにより、異なる研究施設やプラットフォーム間での結果の比較および整合が可能になります。このような二重単位による報告は、ISO 175118の計量学的トレーサビリティ要件およびCLSI EP17-A216の検出能力評価フレームワークに準拠しています。
「低抗原–高核酸」サンプルが発生する潜在的な理由は以下の通りである:1) 菌株の遺伝的変異:抗原エピトープのアミノ酸が置換された場合、または輸送および分泌の過程で分泌タンパク質がブロックされた場合、抗原検出において「エスケープ」現象が起こる可能性がある17。2) dPCRは、保存された遺伝子配列をターゲットとして増幅するように設計されている。本研究でdPCRがターゲットとした特定の遺伝子は、メーカーの文書では開示されていない。しかし、市販の抗原検出キットは異なるH. pylori抗原(例:VacA、ウレアーゼ、鞭毛タンパク質、または全細胞抗原)をターゲットとしており、dPCRのターゲット遺伝子と特定のキットで認識される抗原との間の不一致は、バイナリーの陽性/陰性の不一致ではなく、散布図の4つの象限(高dPCR/低抗原、低dPCR/高抗原、高–高の一致、または低–低の一致)における定量的不一致として現れる可能性がある18。3) 検出方法の限界:抗原検出技術は、抗原濃度が極めて低いか極めて高い場合に制限され、抗体との親和性不足や過飽和によりシグナルが弱まるほか、サンプルマトリックスの影響も受ける。4) 検出限界性能の非対称性:dPCRの検出限界(LOD)は10–100 copies/mLに達するが、ウレアーゼに対するコロイド金免疫クロマトグラフィー法の検出限界は約104–105 CFU/mLである。細菌量が臨界値にあるとき、「低抗原–高核酸」現象が発生しやすい。5) 感染状態が臨床結果に与える影響は大きく、特に細菌感染とウイルス感染の区別において顕著である。感染過程において、遺伝子コピー数と抗原発現レベルは一定の対応関係を示さない。治療が成功した後、核酸レベルは急速に低下するが、抗原の消失はある程度の時間遅れる可能性がある19。
本研究で使用した細菌懸濁液は、胃生検検体と糞便サンプルの両方に由来しており、それぞれ干渉プロファイルの異なる異なるマトリックス環境を表しています。胃生検由来の分離株は、概して便に関連するPCR阻害剤を含みませんが、検体処理中に残留ペプシンにさらされる可能性があります。対照的に、糞便検体には、増幅効率を低下させ、dPCR定量値の過小評価につながるPCR阻害剤(胆汁酸、複合多糖類、ヘモグロビン分解産物など)や、細菌DNAが完全な状態で保持されていても標的抗原を分解させる可能性のある腸管プロテアーゼが含まれています。これらのマトリックス特有の影響は、上述の標的領域のミスマッチ機構とは独立して作用します。したがって、臨床検体間での定量的不一致を解釈する際には、調製プロトコルおよび手法のバリデーションを検体種類に適合させる必要があることが示唆されます。
熱不活化後の生存細菌と非生存細菌の比率を実験的に定量するため、生存PCR試薬システムを用いた生存PCRを全24株の培養分離株に対して実施した。この試薬はプロピジウムモノアジド(PMA)と同様に作用し、膜が損傷した細胞に選択的に浸透してゲノムDNAを共有結合的に修飾し、その後の増幅を阻害する。生存細菌の割合は、以下の式を用いて算出した:生存率% = (生存試薬(VR)処理後のDNAコピー数/µL) / (VR未処理のDNAコピー数/µL) × 100。すべての分離株において、熱不活化後の生存分画の中央値は4.6%(範囲:0.00%–33.0%)であり、56 °Cで25分間の熱不活化によって細菌の生存能は大幅に低下するものの、生存個体を完全に排除することはできないことが確認された。これらの生存能データは、dPCR高値/抗原価低値という不一致なプロファイルが、主に生存したH. pyloriではなく、残留した細胞外DNAおよび非生存細菌粒子内のDNAに由来するという我々の解釈を強く支持している。全24株の詳細な生存定量結果は付録表2にまとめられている。
本研究において、(探索的なデータセット固有の閾値に基づく)4象限分類を行った結果、8検体が抗原高・核酸低、4検体が抗原低・核酸低に分類され、さらに一致カテゴリーとして抗原高・核酸高が9検体、抗原低・核酸高が3検体であった。抗原高・核酸低の検体(n = 8)が存在することは、純粋培養であっても抗原発現量と核酸含有量が必ずしも一致しないことを示唆している。全24分離株は、定常増殖期(72時間培養;プロトコルのセクション1を参照)に回収された。定常期では、DNA複製はほぼ停止している一方で、構造的および代謝的な抗原は持続、あるいは蓄積し続ける。この増殖期のデカップリングは、抗原高・核酸低クラス(n = 8)が多く、抗原低・核酸高クラス(n = 3)が少ないという非対称性の妥当な生物学的根拠となり得るが、それだけで抗原発現の株間差や熱不活性化中の部分的な溶菌などの他のメカニズムを除外できるわけではない。抗原低・核酸高の検体(n = 3)が存在することは、抗原タイターが低いために必ずしも核酸量が低くなるわけではないことを裏付けており、特定のシナリオにおいて核酸検査が抗原検査を補完することを示している。なお、これらの閾値は探索的かつデータセット固有のものであり、検証済みの臨床診断基準を示すものではない。
本研究はサンプルサイズが小さい(n = 24)ため、強固なサブグループ解析を裏付けるための統計学的パワーが不十分であるという限界がある。サンプルは6つのタイターグループに分けられ、各グループの平均サンプル数はわずか4個であったため、正式なグループ間比較において有意な差を検出するための統計学的パワーが不足している。したがって、パワー不足の推論統計結果を提示することを避けるため、Kruskal-Wallis検定は適用しなかった。さらに、すべてのサンプルは培養分離株であり、胃粘膜、糞便、唾液などの臨床検体に見られるより複雑なマトリックス効果はカバーされていない。
開示事項
著者は開示すべき事項を何も持っていません。
本原稿の執筆、編集、統計解析、コード開発、および図の作成において、AIツールは一切使用されていません。
著者貢献度:
すべての著者が本研究へのそれぞれの貢献を確認しました。個々の著者の役割を以下に記載します。すべての著者が最終的な投稿原稿を読み、承認し、研究データの正確性と完全性に全責任を負います。Wenwen Sun:調査、データキュレーション、形式的分析、手法、草案執筆、資金獲得;Xiaona Han:調査、手法;Jin Zhang:調査、手法;Xinxin Duan:調査、手法;Tingting Li:概念化、指導;Manyu Li:概念化、指導、執筆(校閲および編集);Haiwei Zhou:概念化、指導、執筆(校閲および編集)。
謝辞
本研究は、国立薬物濫用防止研究所(NIDC)の若手研究者育成研究基金(助成番号 2025C5)の支援を受けて実施されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 2X dPCR Probe Master Mix Plus (Rox) | Sniper | RT021096A | デジタルPCR定量検出試薬 |
| Bacterial Genomic DNA Extraction Kit | Tiangen Biochemical Technology (Beijing) Co., Ltd. | Y2213/DP302-02 | 細菌核酸抽出 |
| Bio-Rad QX200 Droplet Digital PCR System | Jiangsu Bioperfectus Technologies Co., Ltd. | QX200 | デジタルPCR定量検出 |
| Digital PCR Integrated Machine | Sniper | DQ24 | デジタルPCR定量検出 |
| Digital PCR Integrated Machine | Ustar Biotechnologies (Hangzhou) Ltd. | DQ24 | デジタルPCR定量検出 |
| Digital Water Bath | Yiheng Scientific Instrument Co., Ltd. | DK-8D | 細菌懸濁液の56 °Cでの熱不活化 |
| Forward primer | Sangon Biotechnology (Shanghai) Co., Ltd. | / | デジタルPCR核酸増幅 |
| Gastric Helicobacter pylori Antigen Detection Kit (Colloidal Gold Method) | Shanghai Chemtron Biotech Co., Ltd. | B202301020 | H. pylori抗原検出 |
| Helicobacter pylori Agar Medium (solid) | Qingdao Haibo Biotechnology Co., Ltd. | HB8647 | H. pylori培養培地 |
| Helicobacter pylori antigen detection kit (colloidal gold method) | Bioneovan Co., Ltd. | 202403001 | H. pylori抗原検出 |
| Helicobacter pylori antigen detection kit (colloidal gold method) | Jiangsu Mole Bioscience Co., Ltd. | 20240310 | H. pylori抗原検出 |
| Helicobacter pylori antigen detection kit (colloidal gold method) | Hangzhou Genesis Biodetection & Biocontrol Ltd. | GG230601021 | H. pylori抗原検出 |
| Helicobacter pylori antigen detection kit (colloidal gold method) | Jiangsu Cowin Biotech Co., Ltd. | 28223 | H. pylori抗原検出 |
| Helicobacter pylori antigen detection kit (colloidal gold method) | Beijing Core Technology Co., Ltd. | 2415810 | H. pylori抗原検出 |
| Helicobacter pylori antigen detection reagent (immunochromatographic method) | Guangzhou Wondfo Biotech Co., Ltd. | W028402001 | H. pylori抗原検出 |
| Helicobacter pylori antigen detection reagent (latex method) | ABON Biopharm (Hangzhou) Co., Ltd. | 0000805308 | H. pylori抗原検出 |
| Heracell Tri-Gas Incubator | Thermo Fisher Scientific | N/A | 微好気培養;ガス組成:5% O2, 10% CO2, 85% N2 |
| Microcentrifuge Tubes (1.5 mL / 2 mL) | Axygen Scientific Inc. | MCT-150-C / MCT-200-C | サンプル希釈および核酸抽出 |
| Nucleic acid extraction or purification reagents | Jiangsu Bioperfectus Technologies Co., Ltd. | SDK60105 | 細菌核酸抽出 |
| Nucleic acid extraction reagent | TargetingOne | Pathogens TNA-B1 (11019) | 細菌核酸抽出 |
| PBS, 1X (pH 7.2-7.4, 0.01 M, cell culture) | Solarbio Science & Technology Co., Ltd. | P1020 | サンプル希釈 |
| Petri Dishes (90 mm) | Beekman Biotech | N/A | 細菌の分離および継代培養用滅菌シャーレ |
| Pipette Tips (10 uL / 200 uL / 1000 uL) | Axygen Scientific Inc. | T-300 / T-200-Y / T-1000-B | サンプル希釈および試薬分注用滅菌フィルターチップ |
| Probe | Sangon Biotechnology (Shanghai) Co., Ltd. | / | デジタルPCR核酸増幅 |
| Reverse primer | Sangon Biotechnology (Shanghai) Co., Ltd. | / | デジタルPCR核酸増幅 |
| SPSSPRO Online Statistical Analysis Platform | SPSSPRO | Web-based (https://www.spsspro.com/; accessed August 2026) | 統計解析:ピアソン相関、線形回帰 |
| Sterile Defibrinated Sheep Blood | Solarbio Science & Technology Co., Ltd. | TX0030-100 mL | H. pylori培養プレート用添加物 |
| TD-1 Digital PCR System | TargetingOne | TD-1 | デジタルPCR定量検出 |
| Viability PCR Reagent System | Promega | A8881 | 熱不活化H. pyloriの生存能PCR評価 |
| Vortex Mixer | Scientific Industries Inc. | SI-0256 | 細菌懸濁液の均質化 |
参考文献
- Ndip RN, et al. Helicobacter pylori isolates recovered from gastric biopsies of patients with gastro-duodenal pathologies in Cameroon: current status of antibiogram. Trop Med Int Health. 2008;13(6):848-54.
- Malfertheiner P, et al. Management of Helicobacter pylori infection: the Maastricht VI/Florence consensus report. Gut. 2022;71(9):1724-62.
- Hooi JKY, et al. Global prevalence of Helicobacter pylori infection: systematic review and meta-analysis. Gastroenterology. 2017;153(2):420-9.
- International Agency for Research on Cancer. Schistosomes, liver flukes and Helicobacter pylori. IARC Monogr Eval Carcinog Risks Hum. 1994;61:1-241.
- de Martel C, et al. Global burden of cancer attributable to infections in 2018: a worldwide incidence analysis. Lancet Glob Health. 2020;8(2):e180-90.
- Wang YK, et al. Diagnosis of Helicobacter pylori infection: current options and developments. World J Gastroenterol. 2015;21(40):11221-35.
- Hindson BJ, et al. High-throughput droplet digital PCR system for absolute quantitation of DNA copy number. Anal Chem. 2011;83(22):8604-10.
- International Organization for Standardization. ISO 17511:2020, In vitro diagnostic medical devices—requirements for establishing metrological traceability of values assigned to calibrators, trueness control materials and human samples. International Organization for Standardization; Geneva; 2020.
- Morisset D, et al. Quantitative analysis of food and feed samples with droplet digital PCR. PLoS One. 2013;8(5):e62583.
- World Health Organization. WHO international standard for SARS-CoV-2 RNA, NIBSC code 20/146. World Health Organization; Geneva; 2020.
- Forootan A, et al. Methods to determine limit of detection and limit of quantification in quantitative real-time PCR (qPCR). Biomol Detect Quantif. 2017;12:1-6.
- Johnson S, et al. Clinical practice guideline by the Infectious Diseases Society of America (IDSA) and Society for Healthcare Epidemiology of America (SHEA): 2021 focused update guidelines on management of Clostridioides difficile infection in adults. Clin Infect Dis. 2021;73(5):e1029-44.
- Hyams C, Williams OM, Williams P. Urinary antigen testing for pneumococcal pneumonia: is there evidence to make its use uncommon in clinical practice? ERJ Open Res. 2020;6(1):00223-2019.
- Marrero Rolon R, et al. Erratum for Marrero Rolon et al., “Clinical evaluation of a real-time PCR assay for simultaneous detection of Helicobacter pylori and genotypic markers of clarithromycin resistance directly from stool.” J Clin Microbiol. 2022;60(2):e0245221.
- China Food and Drug Administration. Technical review guidelines for registration of Helicobacter pylori antigen/antibody detection reagents. China Food and Drug Administration; Beijing; 2018.
- Clinical and Laboratory Standards Institute. EP17-A2, Evaluation of detection capability for clinical laboratory measurement procedures; approved guideline. 2nd ed. Clinical and Laboratory Standards Institute; Wayne, PA; 2012.
- Yamaoka Y, Graham DY. Helicobacter pylori virulence and cancer pathogenesis. Future Oncol. 2014;10(8):1487-500.
- Leal YA, et al. Utility of stool sample-based tests for the diagnosis of Helicobacter pylori infection in children. J Pediatr Gastroenterol Nutr. 2011;52(6):718-28.
- Devonshire AS, et al. The use of digital PCR to improve the application of quantitative molecular diagnostic methods for tuberculosis. BMC Infect Dis. 2016;16:366.