本論文では、動物飼育、卵の取り扱い、孵化後のケアに関する主要な手順、代表的なパフォーマンス指標、および本種の寿命と生物学的特性の概要を含め、Carausius morosusのラボコロニーを維持するための詳細なプロトコルについて概説します。
この記事について
サマリー
要約
*Carausius morosus*インド原産のナナフシの一種である *Oreopeleides* は、インドに固有の細い小枝のような外見をした昆虫です。飼育を通じて世界中に広く導入されており、研究室での利用やペットとしての飼育が一般的になっていますが、標準化された動物飼育のラボプロトコルは不足しています。本稿では、以下の詳細なラボ培養条件について報告します。 *C. morosus*ストックは以下の条件で保存しています。 23 °C、相対湿度70%、明暗周期12時間:12時間の条件下で飼育した。この飼育系は、食事およびケージ設置条件に関する標準化されたプロトコルに基づき、これらの条件下で2年以上にわたって正常に維持されている。また、継続的な実験を支援するための卵および孵化後の個体のケア方法についても報告する。 *C. morosus*本研究の飼育条件下において、同一の24時間以内に産卵された卵のモニターバッチ105群は、一貫して12日間の期間内に孵化した。また、孵化した個体の13.9%が成体へと正常に成長した。これらの標準化された手法は再現性とアクセシビリティを向上させ、発生、行動、生理学などの幅広い研究における実験モデルシステムとしてのC. morosusのより広範な利用を可能にする。
概要
非哺乳類モデルシステムの代替案への関心が高まる中、昆虫は幅広い生物学的多様性を探索する機会を提供するだけでなく、哺乳類モデルよりも研究コストが低く、飼育要件が簡便であり、規制上の障壁も少ないという利点があります1。新たな昆虫モデルシステムの登場により、例えばCarausius morosus (Sinéty, 1901)のようなナナフシに見られる単為生殖など、特有の生物学的現象の調査が可能になっています2。キイロショウジョウバエ(Drosophila melanogaster)は20世紀初頭以来、発生および遺伝プロセスの理解を形作ってきましたが3、C. morosusなどの他の昆虫モデルシステムは、発生生物学のみならず、運動制御、移動、およびニューロホルモン調節系の研究においても独自の機会を提供します4。
さらに、進化発生生物学の分野において、半変態(直接発生する)昆虫は、完全変態(間接発生する、あるいは変態を伴う)昆虫に比べて研究例が少ないままであり、 *D. melanogaster* 最も研究が進んでいるモデル昆虫として利用されており、〜のような直接発生する昆虫種を研究することで *C. morosus*、は、性的成熟に達するまでに数回の若虫の脱皮段階を経る5これにより、進化発生生物学研究における主要な系統的空白を埋めることが可能になります。これにより、昆虫の進化の初期に分岐したものの、現在の実験室モデルシステムにおいて同等に代表されていない不完全変態昆虫と完全変態昆虫との比較が可能になります。より広範な利用により *C. morosus* 実験生物としての利用は、飼育条件の不一致や再現性の欠如、ならびに成長と生存に関する明確なベンチマークの不在によって制限されてきました。本稿では、定義された培養条件と期待される結果を伴うステップバイステップのプロトコルを概説します。本プロトコルは、異なる研究室間で適用可能であり、胚発生の追跡、経時的な成長、および生殖能に関する実験を含む複数のアプリケーションを支援するものです。
C. morosusは飼育が容易であるため、研究室での研究および教育環境の両方に適しています。単為生殖を行う能力があるため6、複雑な交配セットアップが不要となり、維持管理の負担が軽減され、個体群管理が簡素化されます。飼育の成功には制御された環境条件が有利に働きますが、他の多くのモデル生物と比較して、その管理方法は依然として単純であり、費用対効果が高いと言えます。C. morosusは、アイビー(Hedera helix)、ブラックベリー(Rubus fruticosus)、バラの葉(Rosa spp.)などの一般的な植物材料を容易に摂食します。このシステムのその他の利点として、自切、脚の再生能力7、体の大きさと、多様なホスト植物を摂食できる能力が挙げられます。しかし、本種には制限事項もあり、公開されているゲノム配列がないこと、発育に比較的時間がかかること、そして胚の外殻(exochorion)が硬いため注射が困難な場合があることなどが含まれます8。これらの制限があるにもかかわらず、C. morosusは研究および教育への応用の両方において、実用的かつ効果的なモデルを提供します。
C. morosusの標準化された飼育プロトコルは、研究において一貫性と再現性のある結果を得るために極めて重要です。これまで、C. morosusに関する多くの室内研究が文献に報告されていますが6,9,10,11,12、我々が知る限り、室内でのC. morosusの飼育に関する詳細なプロトコルは現在まで発表されていません。本研究では、卵、孵化個体、および生殖成熟した成虫の飼育を含む、C. morosusの室内培養のための包括的な標準プロトコル群の確立に成功しました。これらの手法により、より幅広い生物学研究コミュニティにおいて、本昆虫がより利用しやすくなることを目指しています。
プロトコル
1. 環境飼育条件
- 気候制御された部屋またはインキュベーター内で、以下の環境設定で実験室培養を維持する:23 °C、相対湿度70%、明暗サイクル12:12時間
注:これらの条件下では、 C. morosus 産卵後、約74~80日で卵の孵化が予想される。
2. メッシュケージの設置と維持管理
注意:飼育には、3面に布製メッシュ換気部を備えたメッシュ昆虫飼育ケージの使用を推奨します C. morosus61 × 61 × 91.5 cmの飼育ケージは、最大50匹の成虫、または新規コロニーの確立時であれば最大500匹の幼虫を維持するのに適している。
- 適切なサイズのメッシュ囲いを選択する。動物を導入する前に、容器が清潔で破片などの汚物が付着していないことを確認する。
- 成熟した成虫を用いて新しいコロニーを確立する場合、25匹を置く–清潔な61 cm × 61 cm × 91.5 cmのメッシュケージに、成虫の雌50匹を入れる。
注:メッシュの開口部は0.2の範囲内にすべきである–1.0 mmの目開きを使用して、小型の第1令幼虫の脱出を防ぐ。 - 新規コロニーの確立には、かえったばかりの個体を用いて、最大約500匹のかえりひなを清潔な61 cm × 61 cm × 91.5 cmのメッシュ飼育ケージに移す。
3. 給餌と飼育管理
- ケージの清掃中は、昆虫を飼育容器内にそのまま残す。葉から静かに取り外し、清掃作業中に周囲を掃除できるよう、メッシュ製の飼育容器の底面に移動させる。
注:清浄化には約10分程度かかることが予想されます–1かごあたり20分。 - 毎週1回、アイビー、バラの茂み、またはバラなどの新鮮な葉を供給する。使用する植物材料はすべて農薬不使用であることを確認すること。ケージに投入する前に、流水で葉を洗浄し、表面の汚れや汚染物質を除去する。
- 茎を切り揃えて、水道水を入れた小型の瓶またはジャーに収まるようにすることで、葉の水分を保持する。調製した葉を飼育容器内に配置し、葉が持ち上がっていて昆虫がアクセスできるように注意する。配置後は、容器を慎重に閉じる。
- 毎週のケージ清掃時に、しおれたまたは乾燥した葉と、飼育ケージの底部に蓄積した糞便を除去する。
注:葉に乾燥、もろさ、しおれ、変色などの脱水症状が現れた場合は、直ちに植生を交換する。コロニーの健康と福祉を維持するためには、清潔な環境を保つことが不可欠である。 - 毎日、各飼育ケージを軽く霧吹きする1–250 mLのスプレー瓶から水道水を2回スプレーして、適切な水分を確保する。
注:これは特に重要である 孵化後1日目。エサの消費が急速に進む場合は、密度を低減する。
4. 収集および維持管理 Carausius morosus ヒナ
注:本研究では、以下のものを使用している。 “ヒナ” 卵から直ちに孵化した個体(第1齢幼虫)を指すために “若虫” は~を指す 〜するために 胚後脱皮に続く幼生段階。
- 新しく孵化した幼虫を6 cmのペトリ皿に採取する。
- 丸みを帯びたプラスチック製のピンセットを用いて、500匹以下の孵化個体を清潔な61 cm × 61 cm × 91.5 cmのメッシュ囲い内に静かに移す。
注意:外骨格の伸展が完了した、完全に孵化し体を伸ばした若虫のみを採取すること。卵から完全に孵化する前に若虫を攪乱すると、体の伸長が妨げられ、早期死亡を引き起こす可能性がある。同様の理由から、メッシュ飼育ケースへの移動後は、若虫を直接取り扱う回数を最小限に抑えるようにすること。 - 新鮮な葉をセクション3で説明されているように供給する。
- 新しいコロニー飼育ケージには、以下の情報を記載する:卵のロット採取日、孵化日または孵化日の範囲、および追加した孵化個体の数。
注:これは飼育環境の経過時間を記録し、生殖成熟期の開始時期を予測するものである。 - 孵化後の移送直後およびその後毎日、各飼育容器を1回、軽く霧吹きする–250 mLのスプレーボトルから水道水を2回スプレーして、適切な水分補給を確保する。
注意:これは孵化後1日目において特に重要である。孵化した個体は成体になるまで、発生の全期間を通じて同じ飼育容器内で育てることができる。第1項で記述した実験室条件下では、約13%の孵化個体が成体まで生存する。–5か月(表1). - 毎週のケージ清掃時に、死んだり損傷を受けたりしたヒナを除去して汚染を防ぐ。
5. 収集および維持管理 C. morosus 卵
- 成虫の雌が入った飼育容器を開ける。
- 手袋を着用した手で、ケージ底部にある卵と糞便を含む培地を前方の開口部へ静かに集めます。
- 手袋を着用した手で、材料を慎重に15 cmのペトリ皿に移して卵の回収を行う。
6. 昆虫の処分および飼育容器の廃棄物の処理
注:~の場合 C. morosus 実験に必要でなくなった、死亡した、または卵の採取が不要になった場合:
- 安楽死/昆虫の処分:培養または実験で使用しなくなった生きたまたは死んだ昆虫を、オートクレーブ可能な廃棄物用バッグに移し、-20℃で保管する。 °C冷凍庫で少なくとも72時間。
- 卵の破壊: 過剰な個体数を防ぐために、卵をすべて除去する 実験に使用しないマウスはケージまたはペトリ皿から取り出し、 autoclavable廃棄用バッグに入れて-20℃で保管する。 °72時間以上、C
- 廃棄物の取り扱い: 飼育ケージや卵や昆虫の収集に使用した材料から生じた汚染物は、オートクレーブ可能な廃棄物用バッグに入れ、-20℃で保管する。 °72時間以上、37°C
- 凍結後、耐圧滅菌袋をバイオハザード用の廃棄物容器に移し、適切に処分する。
注:~として C. morosus インド以外の地域では外来種であるため、環境中への意図しない放出を防ぐために、上記のようにすべての材料を適切に廃棄することが極めて重要である。
7. 卵子回収
- 鈍頭のプラスチック製ピンセットを用いて、各卵を慎重に持ち上げ、清潔な6 cmのペトリ皿に置く。
注: 成熟した卵は硬化した外層(エクソコリオン)で保護されており、濃褐色で植物の種子に似ている。卵の選別時にふんと区別しやすくするために、白色の背景を使用するとよい。 - 採取日時を記載して培養皿にラベルを貼り、追跡可能にしてください。培養中は換気のため、ふたを開けたままにしてください。
注:200個までの卵を保管するには、6 cmのペトリ皿で十分である。 - 予想される孵化期間の約1週間前(74–産卵後80日;Kovacikova & ペトリ皿の蓋を元に戻す(Extavour、未発表データ)。
- 予定されたかえりの日より前に、卵容器の毎日の観察を開始し、かえり始めるかえりひよこを確認する。
8. 寿命
- 孵化後は、個体を観察し、生殖成熟に達するまでの5〜6回の脱皮を記録する。第1節で記述した実験室条件下では、生殖成熟は平均して孵化後139日目に達する(表1).
- このプロトコルに従う場合、以下の培養条件下での発生時期を次のように定義する:胚発生期間(産卵から孵化まで)は74時間である。–80日;孵化から性的成熟(産卵開始)までの期間は約135日であり、産卵から性的成熟までは約200日、産卵から死亡までの総寿命は約9.5か月である。
結果
2024年9月から2025年11月までの間に、C. morosusの卵から生殖的に成熟した成体までの室内飼育に成功したデータを収集しました。この14か月間にわたり、成体の死亡率、産卵数、孵化時期、および孵化個体の成体までの生存率のいずれか、または複数を目的として、5つのケージを設置・維持し、モニタリングを行いました。本手法は、病原体関連の疾患や繁殖力の低下といった不適切な結果を招くことなく、長期的なコロニー維持を可能にします。2年以上の連続的な培養において、病原体に起因する明らかな大量死は観察されず、卵および孵化個体の生産は世代を超えて安定していました。
に示されたデータ 図1 および 図2 セットアップから孵化個体の成体到達まで、モニタリングした5つのケージにおける観察結果を提示し、各ケージで産下された卵の数および成体の死亡率を含める。各ケージの創始個体が性成熟に達し、産卵を開始した後、産卵開始時の初期個体数を確定させるため、各ケージに存在する成体数を記録した。経時的な各ケージの成体数を以下に示す。 図1 および 表1生存率の緩やかな低下を、加齢に伴う死亡と解釈した。
成体の生存率をモニタリングしたのと同じ5つのケージにおいて、並行して卵の産出量をモニタリングした(図1および図2)。ケージあたりの1日あたりの卵数は、産卵開始後の最初の30~50日間で最も高く、その後緩やかに減少した。総産卵数はケージ間で異なっていたが(表2)、この全体的なパターンは5つの反復ケージすべてで一貫していた。合計105個の卵バッチについて、50日間にわたって卵の孵化ダイナミクスをモニタリングした。ここで、卵バッチとは24時間以内に同じケージに産み付けられた卵のグループを指す。図3に示すバッチサイズの解析では、75個のバッチを小、中、大のカテゴリーに分類した。その結果、バッチ内の最初の卵が孵化した後、バッチサイズに関わらず(図3B)、最初の個体が孵化してから12日以内に90%の孵化完了に達することがわかった(図3D)。バッチ内の最初の個体が孵化した後の特定の時点までに孵化した卵の割合を説明するために「孵化完了」という用語を用いるが、90%孵化完了日に基づく卵バッチの分布は、ほとんどのバッチが最初の個体の孵化後10日から14日の間にこの閾値に達したことを示している(図3C)。
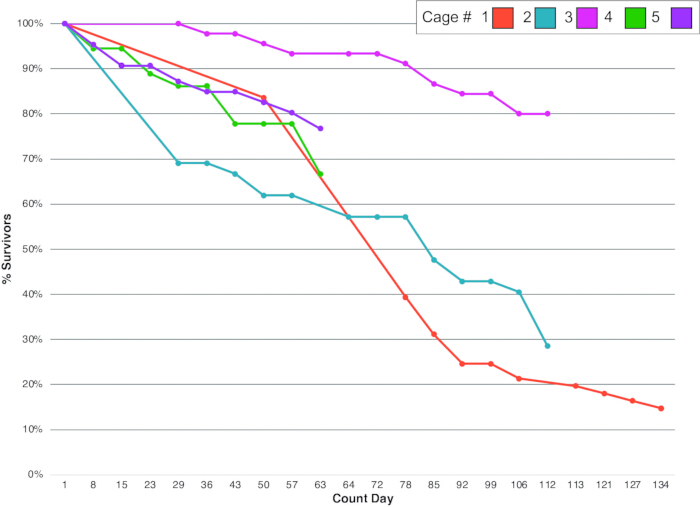
図1成体死亡率の動態 5回の反復における生存曲線 *C. morosus* 経時的な実験ケージの変化。モニタリング対象となった各ケージ内の個体における生存率の経時的変化をプロットしている。概要指標については、以下を参照。 表1. こちらの図の拡大版を表示するには、ここをクリックしてください。
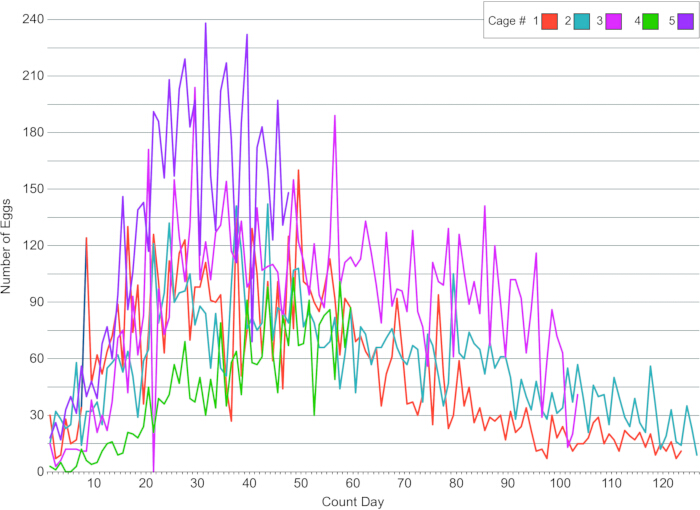
図2卵生産動態。 監視対象となった同一の5つのケージから回収された卵の数は、 図1ケージ1から5を、それぞれ47日、58日、106日、129日、132日間にわたり毎日モニタリングした。グラフは産卵開始から126日目までのデータを示している。要約指標については、以下を参照。 表2. この図の拡大版を表示するには、ここをクリックしてください。
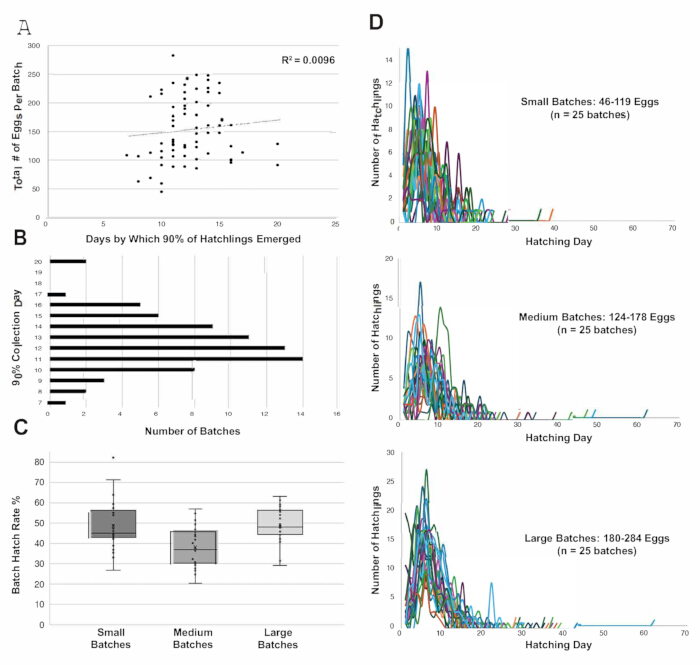
図3. 卵の孵化ダイナミクス。(A) 1バッチあたりの総卵数と、孵化率90%に達するまでに要した日数との関係。(B) 孵化7〜20日目にかけて、孵化率90%に達した日の卵バッチの分布。(C) 小・中・大の卵バッチサイズにおけるバッチ孵化率の分布。n = 各バッチサイズカテゴリーにつき25バッチ。(D) バッチサイズ分析に使用した75の卵バッチについて、70日間の回収期間における孵化軌跡。計105の卵バッチをモニタリングし、ここに示す分析では、総卵数に基づいて3分位数で区切った75バッチをグループ化した。この図の拡大版を表示するには、ここをクリックしてください。
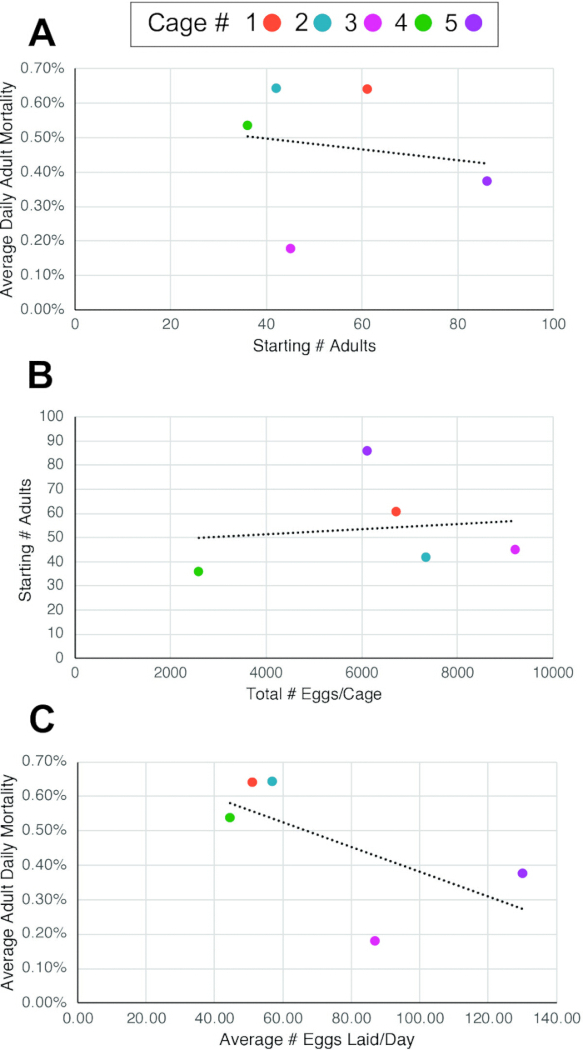
図4ケージあたりの成虫数、成虫死亡率、および産卵数の関係。 (A)有意な関係は認められない(R2 成人1日あたりの平均死亡数と、ケージ内の創設成虫数との間に(p = 0.025)有意な相関が認められた。B) 有意な相関関係は認められない(R2 総産卵数とケージ内の創設成虫数の間に(p = 0.017)有意な相関が認められた。C) 中程度の負の相関(R2 = 0.411) は、1日あたりの平均産卵数と成体の1日あたりの平均死亡率との間に認められた。成体の1日あたりの平均死亡率 =(総死亡率%)/(総モニタリング日数)。 この図の拡大版を表示するには、ここをクリックしてください。
| ケージ番号 | 旧ケージ番号 | 孵化1日目 ファウンダークージに幼獣を追加 | 最終孵化日 ファウンダーケージに幼若個体を導入した | # 孵化 ケージに幼獣を追加した | 孵化日数の範囲 添加した | ケージ開始から成体数カウントまでの平均時間 | 成体計数初日 | 成虫が産卵を開始した初日 | 孵化から成虫になるまでの経過時間 | 孵化から産卵までの経過時間 | 開始時の成虫数 | 孵化個体の成体までの生存率 フード | 成体数え上げ最終日 | 成人最終数 | 成人のモニタリング期間および人数 日 | モニタリング期間中の成人平均死亡率 [%] | 成人1日平均死亡率 [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | 不検出 | 14.00 | 166.00 | 5/29/ 2025 | 5/29/ 2025 | 173.00 | 173.00 | 61.00 | 未検出 | 10/9/ 2025 | 9.00 | 133.00 | 85.25% | 0.64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | 検出限界 | 27.00 | 130.00 | 7/17 /2025 | 7/17/ 2025 | 157.00 | 157.00 | 42.00 | 検出限界(ND) | 11/5/ 2025 | 12.00 | 111.00 | 71.43% | 0.64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | 未検出 | 7.00 | 110.00 | 7/17/ 2025 | 7/27/ 2025 | 103.00 | 113.00 | 45.00 | 検出限界(ND) | 11/5/ 2025 | 36.00 | 111.00 | 20.00% | 0.18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14.00 | 121.00 | 9/4/ 2025 | 9/13/2 025 | 119.00 | 128.00 | 36.00 | 10.29% | 11/5/ 2025 | 24.00 | 62.00 | 33.33% | 0.54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14.00 | 117.00 | 9/4/ 2025 | 9/24/ 2025 | 104.00 | 124.00 | 86.00 | 16.04% | 11/5/ 2025 | 66.00 | 62.00 | 23.26% | 0.38% |
| 平均値 | 15.20 | 128.80 | 131.20 | 139.00 | 54.00 | 13.17% | 29.40 | 95.80 | 46.65% | 0.48% |
表1:実験用ケージにおける成体の生存率および死亡動態5つの反復実験用ケージにおける成体の生存結果。各ケージについて、ケージ設置の日付範囲、各ケージの設置に使用した孵化幼魚数(5ケージ中2ケージ)、成体までの孵化幼魚生存率(5ケージ中2ケージ)、ケージ設置から成体個体数カウント開始および産卵開始までの期間、成体モニタリングの期間、開始時および終了時の成体個体数、モニタリング期間中の成体死亡数、および1日あたりの平均死亡数を報告する。成体までの孵化幼魚生存率は、開始時の孵化幼魚数が判明しているケージについてのみ算出した。
| ケージ番号 | 卵採取開始日 | 卵採取終了日 | 卵採取期間[日] | ケージあたりの総卵数 | 1日あたりの平均産卵数 | 成体の開始個体数 | 総卵数/開始時の成虫数 | 成虫1匹あたりの1日平均産卵数 |
| 1 | 5/29/2025 | 10/8/ 2025 | 132.00 | 6721.00 | 50.92 | 61.00 | 110.18 | 0.83 |
| 2 | 7/4/2025 | 11/10/2025 | 129.00 | 7333.00 | 56.84 | 42.00 | 174.60 | 1.35 |
| 3 | 7/27/2025 | 11/10/2025 | 106.00 | 9198.00 | 86.77 | 45.00 | 204.40 | 1.93 |
| 4 | 9/13/2025 | 11/10/2025 | 58.00 | 2583.00 | 44.53 | 36.00 | 71.75 | 1.24 |
| 5 | 9/24/2025 | 11/10/2025 | 47.00 | 6104.00 | 129.87 | 86.00 | 70.98 | 1.51 |
| 平均値 | 94.40 | 6387.80 | 73.79 | 54.00 | 126.38 | 1.37 |
表2:実験ケージごとの産卵数成熟個体を含む5つの反復実験ケージにおける産卵量。各ケージについて、卵収集の開始日と終了日、卵収集の総期間、ケージごとの累積産卵数、および1日あたりの平均産卵数を報告する。
ディスカッション
ここに詳述する飼育方法は、C. morosusの実験室集団を維持するための簡便で再現可能な枠組みを提供するものである。C. morosusは古くから実験室で飼育されたりペットとして飼われたりしてきたが、研究における飼育プロトコルは研究によって異なっていた6,9,10,11,12。一貫した環境条件と給餌方法を確保することは、C. morosusを発生学、生理学、および進化研究のための信頼性の高い実験モデル生物とするために重要である。
他のモデル昆虫と比較したC. morosusの発生時期
キイロショウジョウバエ Drosophila melanogaster のような完全変態昆虫と比較して、C. morosus は発達速度が遅く、幼若期がより長く続きます。D. melanogaster が 25 °C において約 24 h で胚発生を完了し、10–12 日以内に生殖成熟に達するのに対し13、我々の飼育条件下では、C. morosus は胚発生に 74–80 日を要し、孵化後約 135–139 日で生殖成熟に達します。これは 23 °C において、産卵から生殖成熟まで約 200 日に相当します(データは示さず)。この延長されたタイムラインは、不完全変態昆虫と完全変態昆虫の間の根本的な生理学的および進化的相違を反映しており14,15、コノハムシ目(Phasmatodea)全体で繰り返し見られる特徴です16,17,18。コオロギ Gryllus bimaculatus などの他の不完全変態昆虫は、より短い期間で胚発生を完了し、性的成熟に達しますが(29 °C において、それぞれ 10 日と 6 週間19)、C. morosus の緩やかな発達は、再現性のある研究や、胚発生および幼若期発達の詳細な縦断的研究を行うための独自の機会を提供します。
葉の供給源と給餌方法
本プロトコルでは、C. morosusコロニーの主要な餌としてアイビー(Hedera helix)を使用する方法を報告します。葉は、年間を通じてキャンパス内の一定の場所から採取しました。アイビーがすべての研究室で入手可能とは限りませんが、ブラックベリー(Rubus spp.)、イボタノキ(Ligustrum spp.)、ピラカンサ(Pyracantha spp.)、バラ(Rosa spp.)、セイヨウサンザシ(Crataegus monogyna)、オーク(Quercus spp.)、およびヘーゼル(Corylus spp.)を含む、いくつかの代替植物餌がC. morosusコロニーの維持に適していることが報告されています20。外部から採取した葉を使用する際の重要な留意点は、栄養内容が標準化された飼料(例:Drosophila melanogaster)に依存する研究室システムよりも管理しにくく、栄養的な変動が導入される可能性があることです。これを制限するため、全季節を通じて同じ場所の同じ植物種を使用し、定期的なケージメンテナンス時に週に1回、すべてのケージに葉を供給しました。給餌に使用したアイビーの枝には、通常、新葉と成熟葉が混在しており、特定の葉の成長段階に基づいて枝を選択はしませんでした。すべての葉は、ケージに入れる前に洗浄しました。一貫性を保ちコロニーの規模を管理するため、すべての葉を取り除き同日に replacement するという週次スケジュールを実施しました。カットしたアイビーの葉は、1週間の水分を維持するために、ケージ内の水を入れた容器に保持しました。ほとんどの場合、葉は1週間を通して良好な状態を維持していましたが、稀に乾燥や枯渇が起こることがあり、その場合は1週間が経過する前に葉を交換しました。
コロニーサイズ、生存率、および成虫の繁殖
適切なコロニーの構築と個体群密度の慎重な管理が、ストックの健全性を維持するための鍵となりました。61 cm x 61 cm x 91.5 cmのエンクロージャーあたり、孵化後個体を最大約500匹、または成体を最大50匹に維持することで、安定した条件、コロニーの維持、および再現性のある発育観察が可能となりました。
1ケージあたりの創設成虫数と1日あたりの平均死亡率を比較したところ(図4Aおよび表1)、これら2つのパラメータの間に予測可能な関係は見られませんでした。同様に、創設成虫の総数と総産卵数の間にも、強い予測関係は認められませんでした(図4B、表1、および表2)。その代わりに、成虫の1日あたりの平均死亡率が低いケージほど、1日あたりの平均産卵数が多いという緩やかな傾向が見られました(図4C)。しかし、ケージ間での差異は、成虫によって産卵数にばらつきがあることを示唆しており(表1および表2)、これは成虫の生存以外の要因が繁殖パターンに寄与していること、また、個々の雌によって1日の産卵数が異なる可能性があることを意味しています。
モニタリングしたすべてのケージにおいて、卵生産量は実験期間を通じて概ね減少しました(図 2)。ほとんどのケージでは、繁殖期の初期(最初の 50 日間)に 1 日あたりの産卵率が最も高く、その後、生産量は徐々に低下しました(図 2)。このパターンは、個体がおおよそ孵化後 135 日で通常は性成熟に達して産卵を開始し、その約 90 日後(孵化後約 225 日)に死亡が始まるという我々の観察結果と一致しています(データは示さず)。
孵化のタイミングとダイナミクス
モニタリングした卵のバッチ全体を通して、ほとんどの孵化は、最初に出現が始まってから一貫して12日間の期間内に起こりました(Figure 3D)。同様に、バッチのサイズと孵化率90%到達までのタイミングとの間には相関はなく(Figure 3A)、ほとんどのバッチが最初の個体が孵化した後10日から14日の間に孵化率90%に達しました(Figure 3B)。この予測可能な孵化期間は、C. morosusのコロニー管理において有用な特徴です。なぜなら、孵化した個体を同年齢のコホートにグループ化できるため、発達段階の特定が容易になり、実験的なばらつきを抑えることができるからです。また、一斉孵化がいつ起こるかを知ることで、飼育ケースの入れ替えや、ケース、葉、追跡材料の適時な準備を含むリソース配分をより適切に計画できるようになります。これは、大規模または長期的な研究において特に重要です。有性生殖と単為生殖の両方の Phasmatodea 種が研究されてきましたが、生殖様式のみが胚発生のタイミングの差を決定づけるという証拠は見当たりません。むしろ、発達の変動は種特異的であり、環境条件の影響を受けることが報告されています2。
卵の取り扱いと基材に関する検討事項
当研究室の卵の取り扱い方法では、飼育ケージの底から卵を直接回収し、通気性のあるペトリ皿で孵化させます。このアプローチにより、ココナッツファイバーや綿芯などの基質に卵を回収するコオロギの飼育系21とは異なり、卵を容易に観察することが可能です。C. morosusの卵の硬い外卵膜は、取り扱い時や乾燥に対する保護機能を有しており、当研究室の培養条件下では追加の基質なしにペトリ皿で安全に孵化させることができます。以上の標準化された手順により、再現性のある発生学的、行動学的、遺伝学的、または生理学的研究に向けた、健全なC. morosus個体群を維持するための体系的なアプローチが提供されます。一貫した環境制御(23 °C, 70% RH, 12:12 LD)、定期的なケージのメンテナンス、および予測可能な発生スケジュールにより、C. morosusは簡便で低コストなモデルシステムとなります。重要な点として、過密状態や共食い、または病原体負荷によってコロニーが急速に不安定化することがある一部のコオロギの飼育系22とは異なり、C. morosusは維持が容易であるため、大規模な実験や多世代にわたる研究に適しています。C. morosusが半変態モデル種としてより広く採用されるにつれ、標準化された手法の使用は、昆虫生物学の多様な分野における研究間の再現性と比較可能性を促進するはずです。
孵化から成体までの生存率
本研究における孵化から成体までの生存率(約13%)は、別の定量的な研究で報告された生存率よりも大幅に低い。 C. morosus 管理された実験室条件下での若虫の生存率を調べたところ、カロリー制限下では個体の68%が成虫まで生存し、一方、[以下、条件が続く]下では最大87%が生存した。 自由摂取 給餌23本コロニーで観察された生存率(約13%)が先行報告よりも低かったのは、飼育方法の違いに起因すると推測される。そしてこの違いは、我々の飼育目的と先行研究の目的が異なっていたことを反映している。我々のプロトコルは、個々のグループの生存率を最大化することではなく、大規模で継続的に繁殖するコロニーを維持するように設計されていた。そのため、卵から成体までを個別のケージで単独飼育した先行研究とは対照的に、我々は動物を高密度で飼育した。23ここで述べる高密度培養法は、個体飼育に比べて死亡率を上昇させる可能性があると考えている。特に、個体が過密状態や競争に対してより敏感であると考えられる若齢の若虫期において、その傾向が顕著であると考えられる。また、個別の葉ディスクを切り出して給餌する個体飼育法と比較して、より大きなケージを用いた方法では、植物の質のばらつきも影響を及ぼした可能性がある。23しかし、生存率は比較的低かったものの、我々のコロニーでは一貫して大量の卵が産出され、経時的に安定した状態を維持した(図1, 図3, 表 1、および 表2)。このことは、本稿で述べる手法が、長期的なラボ培養を維持する上で有効であることを示唆している。
生存に影響を与える要因およびプロトコルの制限事項
本プロトコルにおいて、生存率に影響を及ぼす可能性が高いため、慎重に管理すべき要因がいくつかあります。個体密度は重要なパラメータであり、特に初期齢の段階において、過密状態は生存率を低下させる可能性があります。生存率に影響を与えるもう一つのパラメータは、特に初期齢における適切な水分補給です。プロトコルに記載されているすべての手順およびタイミングは、本研究で使用した特定の環境条件に基づいています。しかし、湿度、温度、気流、または植物の種類が変化すると、水ミストの噴霧頻度、葉の交換頻度、卵の孵化時間、および全体の生存率に影響が出る可能性があります。例えば、より乾燥した培養条件下では、水分を維持するためにより頻繁な水ミストの噴霧と植物の交換が必要になる場合があります。また、植物種の違いが摂食や成長に影響を及ぼす可能性もあります。これらの要因は、飼育条件や実験目的に応じて調整する必要があります。幼虫の高い生存率、個体追跡、または行動アッセイが必要な用途では、開始時の密度を低く設定することが好ましいと考えられます。
開示事項
著者に開示すべき利益相反はありません。
謝辞
本プロジェクトは、Howard Hughes Medical Instituteの研究員であるCGEへのNational Science Foundation Award IOS 22207477による支援を受けて実施されました。Carausius morosusはインドのタミル・ナードゥ州原産と考えられており、本種の実験室培養は少なくとも1908年以来、インド国外で維持されてきたことを認めます。培養株の確立に使用した最初の成虫群を提供してくださったStanislav Gorb氏およびThies Büscher氏(キール大学)、ならびに初期コロニーを構築した元研究員のUpendra Bhattarai博士(現所属:ブラウン大学)を含むExtavour研究室の全メンバーの支援に心より感謝いたします。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| オートクレーブ対応ポリプロピレンバッグ、30.5 cm × 61 cm | VWR | 95042-554 | 昆虫、卵、および飼育ケージの廃棄物処理用 |
| バイオハザード用ゴミ箱 | N/A | N/A | 冷凍後の廃棄用 |
| 鈍端プラスチックピンセット | Amazon | B07YZ5FB27 | 卵および孵化後の幼虫の回収および取り扱い用 |
| 温湿度管理室またはインキュベーター | N/A | N/A | 23 °C、70% RH、および12:12時間の明暗サイクルを維持するため |
| 使い捨て手袋 | N/A | N/A | 卵の回収および廃棄物の取り扱い用 |
| 使い捨てペトリ皿、150 × 15 mm | VWR | 25384-326 | 卵の回収用 |
| 使い捨てペトリ皿、60 × 15 mm | VWR | 25384-092 | 卵の孵化用 |
| 新鮮な葉(アイビー、ブラックベリー、またはバラの葉) | N/A | N/A | 無農薬の餌として |
| フリーザー、-20 °C | N/A | N/A | 安楽死・廃棄、および廃棄前の卵または廃棄物の冷凍用 |
| メッシュ製昆虫飼育ケージ | Amazon | B09GS2CH1G | 昆虫の飼育用 |
| スプレーボトル、250 mL | Amazon | B000H88PCU | メッシュケージへの噴霧用 |
| 背の高いガラス容器、高さ18–23 cm | N/A | N/A | 水および植物の茎の保持用 |
| 水道水 | N/A | N/A | 噴霧および葉の水分維持用 |
| 白色の選別用表面またはトレイ | N/A | N/A | 選別時に卵と排泄物を区別するため |
参考文献
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
再版と許可
