このプロトコルは、遺伝的にコードされたツールを用いて、ショ ウジョウバエメラノガスター 幼虫の中枢神経系における定義された神経パートナー間の生体内での機能的シナプス活動を評価します。CsChrimson媒介によるシナプス前感覚ニューロンcIVdaの光遺伝的刺激は、シナプス後盆地4中間ニューロンにおけるCaMPARIのカルシウム依存性光変換を誘導します。
このコンテンツを表示するには、JoVEへの購読が必要です。 または、無料トライアルをお申し込みください。
この記事について
サマリー
要約
コネクトーム研究は、さまざまな種の神経系におけるシナプス結合の理解を大きく拡大しました。電子顕微鏡(EM)を用いたシナプスパートナーの特徴付けは詳細な解剖学的情報を提供しますが、神経ネットワークの機能的側面には補完的なアプローチが必要です。ショ ウジョウバエ に関する最近の研究では、幼虫の完全なコネクトームだけでなく、オス・メスの成虫の中枢神経系だけでなく、幼虫の侵害受容ネットワークなど特定の行動を調節する神経ネットワークの細胞構成要素も明らかになりました。第3齢幼虫期までに、クラスIV樹状化(cIVda)多樹状感覚ニューロン(侵害受容器)が盆地4中間ニューロンとのほとんどのシナプス接触を確立します。これらの解剖学的接続の機能的関連性を評価するため、遺伝的にコードされたカルシウム指示薬CaMPARI(カルシウム調節光活性化型比率積分器)が、未解離の3齢幼虫に用いられ、cIVdaニューロンとBasin-4中間ニューロン間のシナプス連結性を評価するために活動依存性の報告体として用いられました。CaMPARIは、細胞内カルシウムレベルの上昇に応じて放射スペクトルが変化する比率蛍光指標です。ベースライン条件下では、CaMPARIは緑色の蛍光を発します。高カルシウム濃度の場所や光変換光(~400 nm)に照射されると、不可逆的に赤色蛍光に切り替わります。シナプス後ニューロンへのカルシウム流入はシナプス活性化の特徴であるため、CaMPARI光変換は機能的シナプスシグナル伝達の読み取りを提供します。赤方偏移チャネルロドプシンCsChrimsonと同時進行のCaMPARI光変換を組み合わせて、3齢幼虫を顕微鏡スライド上で固定し、cIVda侵害受容器の光遺伝的活性化を図る段階的な方法が提示されています。盆地4ニューロンにおけるカルシウム依存性の光変換は、内部の動きや焦点面の変化にもかかわらず、これらの細胞間のシナプス結合性の機能的証拠を提供します。これは、未解体で未解離の ショウジョウバエ 幼虫におけるCaMPARIとシナプス前オプトジェネティック刺激の組み合わせの原理実証となります。
概要
中枢神経系(CNS)における正確なシナプスパートナーを特定することで、神経系の発達過程におけるシナプス接続の形成と精緻化を追跡できます。そのため、Caenorhabditis elegans 1,2やDrosophila melanogaster 3,4,5のような強力な遺伝モデル生物の完全なコネクトームだけでなく、マウスの一次視覚野6や人間の側頭野7を含む複雑な哺乳類脳のミリメートルスケールEM体積の再構築に注力しています.これらの研究は、解剖学レベルでシナプス結合の組織原理に関する独自の洞察を提供します。しかし、シナプスパートナーの機能的特徴付けは神経細胞の結合性に関する補完的な洞察を提供し、解剖学的発見の検証に必要とされています。
ショウジョウバエは、幼虫3および雌4、雄5の成体の中枢神経系の完全なコネクトームが利用可能であることに加え、予測可能な行動を調節するよく特徴づけられた神経回路(8,9,10)など、神経連結性の研究に多くの利点を提供します。幼生の侵害受容ネットワークは、精密なシナプス結合性を研究するのに適した回路の一つです。このネットワークのEM再構築により、侵害受容刺激を処理するために必要な詳細なシナプス連携が明らかになり、ノシフェンシブローリングとして知られる特徴的な逃避行動12,13が示されています。
このネットワーク内で、クラスIV樹状樹状化(cIVda)ニューロン14は痛みの検出に関与する主要な感覚侵害受容体として機能します。11,12,13,15,16。細胞体と樹状突起は体壁の周辺に位置し、軸索は幼虫腹側神経索(VNC)に投射しています15。中枢神経系内では、cIVdaニューロンは軸索末端を典型的なパターンでアーボリ化し、盆4中間ニューロン11、12、13、17とのシナプス接触の大部分を形成します。この定義されたシナプス関係により、cIVdaニューロンとBasin-4中間ニューロンが生体内でのシナプス結合性の機能的評価に理想的なペアであることが確立されます。個別に特定されたシナプスパートナー間の機能的つながりを解析する方法の開発は、特にステレオタイプ化された神経回路を持つ遺伝的に扱いやすいシステムにおけるシナプス発達と精緻化のメカニズムの調査を促進するでしょう。
CaMPARI(カルシウム変調光活性化型比率積分器)18は、細胞内カルシウムレベルの上昇に応じて発光スペクトルが変化する遺伝子的に符号化された比率蛍光指標です。ベースライン条件下では、CaMPARIは緑色の蛍光を発します。高カルシウム濃度の存在と光変換光(~400ナノメートル(nm))への曝露により、不可逆的に赤色蛍光に変換されます。シナプス後ニューロンへのカルシウム流入はシナプス活性化の特徴であるため、CaMPARI光変換は機能的シナプスシグナル伝達の読み取り値を提供します19,20。
CaMPARIに加え、遺伝子符号化カルシウム指示器(GECIs、GCaMPやRCAMP21など)や遺伝子符号化電圧指示器(GEVI)22 (アークライト23、Ace2N-mNeon24、VARNAM25)などの可逆センサーを用いて神経活動を可視化できます。これらの高速で可逆的なセンサーは、一時的な活動をリアルタイムで監視するのに適していますが、 生体内 イメージング中に動きのアーティファクトに影響を受けやすいです。これに対し、CaMPARIの統合的かつ不可逆的な光変換特性により、定められた時間枠内で活動を捉えることができ、画像20の撮影中に焦点面がずれても神経細胞の活性化を検出できます。さらに、CaMPARIフォトコンバージョンは紫光の強度を調整することで調整でき、シナプス強度の低下や閾値以下の入力を検出することが可能です。これらの特性により、マウス皮質27、ゼブラフィッシュ脳28、 C. elegans29、成虫ショ ウジョウバエ20の研究など、頭部固定や拘束なしに自由に動く動物の活動マッピングが可能になりました。
CaMPARI光変換と共焦点顕微鏡を用いたシナプス前光遺伝刺激を組み合わせて、未解離のショウジョウバエ幼虫を対象に機能的なシナプスパートナーを可視化するプロトコルが記述されています。このアプローチでは、CaMPARIを用いて、生きた第3齢幼虫のcIVdaニューロンの光遺伝的活性化後のベイスン4中間ニューロンにおけるシナプス後カルシウム流入を検出します。cIVdaニューロンは赤色光活性化のチャネルロドプシンCsChrimson30,31を発現し、Basin-4インターニューロンはCaMPARIを発現します。赤色光への曝露は、時間的に制御された方法で侵害受容刺激を模倣し、侵害受容体を選択的に活性化します。16,30。この戦略により、シナプス前活性化がシナプス後ニューロンにおけるカルシウム依存性CaMPARI光変換を誘導するかどうかを評価し、シナプス結合の機能的証拠を提供します。
CIVda–Basin-4の連結性解析において、CsChrimsonと組み合わせてCaMPARIを用いることを支持するいくつかの技術的利点があります。まず、cIVda樹状突起は幼虫の体壁を完全かつ重なりのないタイル状に形成し、解剖による損傷による交絡作用なく、完全な感覚ニューロンの光遺伝的活性化を可能にします16。第二に、幼虫は顕微鏡スライド上で物理的に固定されていますが、内部の動きによって中枢神経の位置や焦点面が画像撮影時に頻繁に変化します。CaMPARIフォトコンバージョンはこのような運動アーティファクトに対する感度が低く、神経活動の安定した時間統合された読み取りを提供します。第三に、CaMPARIの統合的かつ調整可能な特性により、シナプスの強度や接触数が減少した初期発達段階などでさえシナプス活動を検出できるため、将来のシナプス形成と精緻化の研究を支持します。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
プロトコル
ショ ウジョウバエ を含むすべての実験的手技は、機関のガイドラインに従って実施されました。遺伝子型w;Basin4-LexA/CyO-TwGFP;ppk-GAL4/ppk-GAL4(RRID:BDSC_54899 12 およびRRID:BDSC_32079 16の組換えから得られる)は、オプトジェネティックおよびCaMPARI発現の誘導に用いられました(w-、UAS-IVS-CsChrimson.mVenus、LexAOp-CaMPARI2;Sp/Cyoは、それぞれシナプス前および後シナプスパートナーにおいてRRID:BDSC_81085と第2染色体マーカーの組換えによって得られました。このプロトコルで使用される研究ツールは 材料表に記載されています。
1. 幼虫の調製
- 処女メスのUAS-CsChrimson、LexAop-CaMPARI間の遺伝交配を設置しました。BDSC_81085例えば、2つの二元系を含む2つの系統を持つフライ系統のオス(例えば、関心のあるシナプス前ニューロンがGAL4発現を駆動し、関心のシナプス後ニューロンがLexA33,34を駆動する)からなるオス。
- 標準的なコーンミール寒天培地35,36,37,38に0.5 mM全トランスレチナール(ATR)を補足したプラスチックバイアルに遺伝子交配をセットし、CsChrimson活性化30,33。ATRなしの並列バイアルをATRなしの制御として準備してください。
注: トウモロコシ粉の寒天培地を沸騰せずに溶かします。固まらずに冷ます。40 mM ATRストック溶液(メーカー指示に従って95%エタノールで希釈した粉末ATR)を準備し、培地中で0.5 mMに希釈して十分に混ぜます。 - 光の照射を防ぐために、バイアル全体をアルミホイルで覆います。
注:ATRは光に敏感な性質のため、常に暗闇の中で育てる環境を維持し、意図しない神経細胞の活性化を防ぐこと。CsChrimsonは赤色光(590〜680 nm)に最も感度が高いですが、他の可視光波長31,39でも活性化されることがあります。 - 25°Cで小瓶を培養し、幼虫を第3齢期まで育てます。
2. 幼虫の動けなくなる
- 絵筆を使って第三齢幼虫を採取します。幼虫を0.1 M PBSを含む3ウェルのマイクロスポットプレートで洗浄し、栄養を除去します。
注: 余分なPBSは除去しないでください。水分補給に役立ちます。 - きれいなカバースリップ(18 × 18 mm)の各隅に少量のモデリングクレイを置きます。幼虫をカバースリップのPBSの一滴に浸し、腹側を下に向けさせます。
注: 腹側神経索(VNC)の画像診断のために、幼虫を背側に取り付け、腹面がカバースリップに接触するようにします。この向きにより、VNC内のベイスン4インターニューロンがカバースリップを通じて対物レンズに向き合うことができます。 - 幼虫が入ったカバースリップの上にきれいな顕微鏡スライドを置きます。
- カバースリップは、角に追加のモデリングクレイを塗って固定します。幼虫の破裂やカバースリップを避けつつ、幼虫を動けなくする十分な圧力をかけてください。
3. 刺激、フォトコンバージョン、イメージングワークフロー
- CaMPARIを発現するシナプス後ニューロンのベースラインzスタックを、緑色(488 nm、レーザー出力0.8%)と赤色(~561 nm、0.8%レーザー出力)チャネルを同時に使用して取得します。Zステップ1μm、解像度256×256ピクセル解像度、ライン平均2、双方向走査、40×/1.2対焦点顕微鏡でスキャン速度9を使用します。すべての撮影は暗い環境で行ってください。実験全体を通して同じZスタックパラメータを維持してください。
注: 幼虫VNCでは定型的な位置に明るい緑色の細胞体があり、ベースラインでは赤色蛍光は検出されません。 - 幼虫を30秒間連続刺激し、同時光変換光(405 nm、レーザー出力0.5%)と光発生刺激光(594 nm、レーザー出力0.8%)を用います。
- 赤(~561 nm)および緑(488 nm)チャネルの両方で 、ステップ3.1 と同じパラメータを用いたポスト刺激Zスタックを取得します。VNC細胞体は基準値と似た位置にあると予想されます。ATR餌を与えられた幼虫の刺激時に活性化されたニューロンで赤色CaMPARI蛍光を検出し、非ATR対照群では光変換が最小限であること。
注:ワークフローとパラメータは図1にまとめられています。
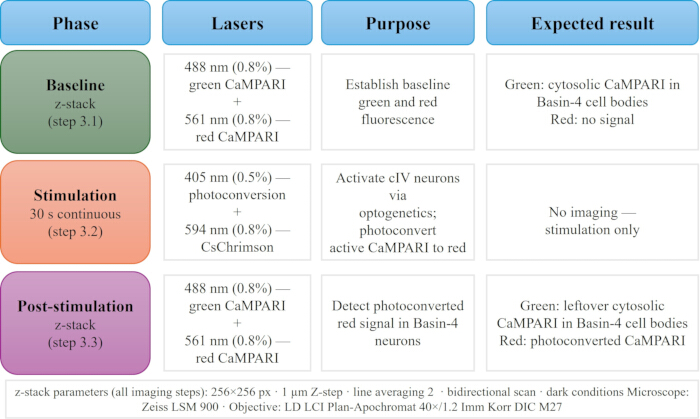
図1:刺激、光変換(PC)、およびイメージングのワークフロー。 3段階の連続画像診断フェーズを用いて、ベイスン4ニューロンのカルシウム活性を評価しました。ベースライン段階では、488nmおよび561nmレーザーを用いて、刺激前に緑色および赤色のCaMPARI蛍光を捕捉するためにzスタックを取得しました。刺激段階では、cIVdaニューロンがCsChrimson(594 nm)を通じて光遺伝学的に活性化され、同時に405 nmの光変換で活性化されたCaMPARIが緑色蛍光から赤色蛍光へと変換されました。この30年代の期間中は画像検査は行われませんでした。刺激後段階では、ベースライン時と同じレーザー設定でzスタックを再取得し、Basin-4細胞体内の光変換赤色信号を検出しました。すべてのzスタックは256×256ピクセルで取得され、Zステップ1μm、ライン平均2、暗闇条件下で40×/1.2 NA対焦点鏡を備えた共焦点顕微鏡で取得されました。 この図の拡大版はこちらをクリックしてご覧ください。
4. 画像解析
- バイオフォーマットを有効にしてフィジー(RRID:SCR_002285)でzスタック画像を開きます。スタック表示をハイパースタックに設定し、カラーモードをコンポジットに設定し、オートスケールを有効にしてください。Z平面をスクロールして最適な焦点の良い平面を選びましょう。選択した平面を複製する(画像→複製;チャンネル数:1–2;選択したZ平面)を選んだ。
- 赤と緑のチャンネルを分割(画像→カラー→分割チャンネル)。
注: 画像→で明るさとコントラストを調整 → 明るさ/コントラスト→ 両チャンネルの自動調整。 - 2チャンネルから背景を差し引く(プロセス→背景を差し引く)。50ピクセルのローリングボール半径を使って。
- 測定値を(分析→セット測定)を設定し、面積、平均グレー値、積分密度(IntDen)、標準偏差、最小・最大グレー値を含めるようにしてください。
- Freehandツールを使って、緑のチャンネル内の各セルの周囲に興味領域(ROI)を描画します。ROIマネージャーにROIを追加して測定してください。赤いチャンネルにも同じROIを適用して測定します。
- 幼虫や細胞の識別子を含むすべての測定値をスプレッドシートに記録してください。
注: 刺激前後の画像の両方で測定を行います。 - 各細胞ごとに(R/G)前後 の赤 色蛍光比を積分密度値(Integrated Density)値を用いて計算します。幼虫ごとの平均細胞レベル。
注: 統合密度(面積×平均)は、異なるサイズのセル間での比較を可能にします。 - Δ(R/G)は幼虫平均値を用いて(R/G)後 − (R/G)前 として計算します。正のΔ(R/G)値を、光変換時のシナプス後カルシウム活性の増加と解釈します。
注: 負のΔ(R/G)値はノイズや背景の非対称性から生じることがあります。負の値を0に設定してください。このデータセットでは、1隻の幼虫が負の値(−0.008)を示し、0に設定されていました。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
結果
このプロトコルに従い、CaMPARIを用いて未解離の D. melanogaster 第3齢幼虫で、cIVdaニューロンとBasin-4中間ニューロン間の機能的結合性が評価されました(図2)。光変換(PC)光やオプトジェネティック活性化による刺激が行われる前、Basin-4の中間ニューロンは細胞質のCaMPARI発現により緑色蛍光を示していました(図2A)。基底条件下では赤色蛍光は検出されず(図2B)、刺激前の光変換の欠如が確認されました。
PC光と光遺伝学刺激を同時に照射すると、CaMPARIは緑色蛍光から赤色蛍光へと変換されました(図2C、D)。光変換がCsChrimson介在の神経細胞活動によって特異的に駆動されていること...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
ディスカッション
ここで述べるプロトコルにより、未解の D. melanogaster 幼虫における定義されたシナプスパートナー間のシナプス結合性の質的および定量的評価が可能となります。このアプローチは、cIVda感覚ニューロンのオプトジェネティック刺激と、CaMPARIを用いた活性化されたシナプス後盆地4中間ニューロンの可視化を組み合わせて、未解離幼生の中枢神経系(CNS)におけるシナプス活動を監視します。これまでのD . melanogaster におけるCaMPARIの応用は主に成虫期20 、または物理的なシナプス前刺激(例:侵害受容体熱刺激)を必要としたものに焦点が当てられました17。本手法はCaMPARIの使用を早期発生段階まで拡張し、光遺伝学的シナプス前刺激とCaMPARIに基づくシナプス後検出を組み合わせることでシナプス活動の機能評価戦略を導入します。オプトジェネティック活性化はシナプス前入力の正確な時間的制御を行い、制御された刺激とその後のシ...
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
開示事項
著者たちは競合する利害関係を一切認めていない。
謝辞
マサチューセッツ州ウッズホールの海洋生物学研究所は、記載された技術とプロトコルのトラブルシューティングのホストおよび支援活動で評価されています。
アクセスが制限されています。このコンテンツを表示するにはログインするか、トライアルを開始してください。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.1 M リン酸緩衝生理食塩水 (PBS) | Sigma Aldrich | P5368-10PAK | 幼虫を水和し、実験装置に取り付けるための溶液に使用する化学物質 |
| オールトランス-レチノール (ATR) | Sigma Aldrich | R2500-500mg | オプトジェネティクスツールを活性化させるために餌に添加する化学物質 |
| コンフォカル顕微鏡 | ZEISS | LSM900 コンフォカル | コンフォカル顕微鏡、客観レンズ (40×/1.2 NA)、光/レーザー光源 (405、488、561 nm) |
| カブリガラス (18x18mm) | VWR | 48366-205 | 撮像用の動物の取り付けに使用 |
| エタノール (95%) | Sigma Aldrich | E7023 | 粉末ATRの溶媒として使用 |
| Fiji (ImageJ) | オープンソース | RRID:SCR_002285 | 撮像解析に使用 |
| Prism version 10.4.1 | GraphPad Software Inc. | RRID:SCR_002798 | 統計解析に使用 |
| 顕微鏡スライド | VWR | 48300-041 | 撮像用の動物の取り付けに使用 |
| モデリング粘土 | Flinn scientific | FB0600 | カブリガラスを顕微鏡スライドに固定し、幼虫をその間に挟むのに使用 |
| ペイントブラシ | Genesee scientific | 59-204 | 幼虫を異なる場所へ移動させるために使用 |
| 標準コーンミールアガー培地 | Genesee scientific | 66-123 | 同様の標準的なレシピと材料を使用して食事も調製可能 |
| 標準的なショウジョウバエ用プラスチックバイアル (25mm x 95mm ショウジョウバエ用細型バイアル) | Genesee scientific | 32-109 | 大型バイアルや瓶も使用可能 |
| 3ウェルマイクロスポットプレート | Electron Microscopy Sciences | 71561-01 | 個々の幼虫を分離し、洗浄するために使用するプレート |
| ショウジョウバエストック (遺伝子型: w; Basin4-LexA/CyO-TwGFP; ppk-GAL4/ppk-GAL4) | Bloomington Drosophila Stock Center | RRID:BDSC_54899 & RRID:BDSC_32079 | RRID:BDSC_54899とRRID:BDSC_32079を組み合せて取得 |
| ショウジョウバエストック (遺伝子型: w, UAS-IVS-CsChrimson.mVenus, LexAOp-CaMPARI2; Sp/CyO) | Bloomington Drosophila Stock Center | RRID:BDSC_81085 | RRID:BDSC_81085と第二染色体マーカーを組み合せて取得 |
再版と許可
