本プロトコルでは、ガス交換測定と同時に、傷による揮発性物質放出の開始、ピーク時間、およびキネティクスを解明するための、チャンバー内での標準化された切断手法を提供します。
方法論記事
葉の傷害揮発性物質のリアルタイム定量およびガス交換のためのチャンバー内切断法
31 回視聴
⸱
2026年9月11日
この記事について
サマリー
要約
植物の葉から放出される揮発性有機化合物(VOCs)は、ストレスシグナリング、植物と大気の相互作用、および植物の防御において重要な役割を果たしています。なかでも、傷害誘導性VOCs(wVOCs)は、機械的な損傷、植食、または環境的な攪乱から数秒以内に放出されます。その放出ダイナミクスは、組織破壊のタイミング、深刻度、および方法に強く依存します。しかし、機械的なアーティファクト、変動する曝露条件、および損傷から測定までのタイムラグがあるため、正確な定量化は依然として困難です。本研究では、wVOCsおよびガス交換をリアルタイムでモニタリングするための、標準化されたチャンバー内葉切除プロトコルを提示します。外科用カッターをポータブルガス交換チャンバーに統合することで、安定した光、湿度、CO2、および温度条件下にある密閉チャンバー内で、クリーンかつ制御された切断を可能にしました。プロトン移行反応飛行時間型質量分析計(PTR-TOF-MS)を用いてチャンバー出口での揮発性物質の放出を連続的に測定し、遅延と信号の歪みを最小限に抑えました。このセットアップにより、放出の開始、ピークタイミング、最大上昇率、および総放出量を高い時間分解能で特定できます。この手法をQuercus rubra、Acer platanoides、およびGossypium hirsutumに適用したところ、異なる葉のタイプ間で明確に異なる傷害誘導放出パターンを識別できることが実証されました。従来のサンプリングに伴う遅延を排除することで、本手法は傷害誘導放出の完全な速度論的軌道を解明し、従来のアプローチにおける主要な制限を克服します。本手法は、植物生理学、生態生化学、および植物と大気の相互作用における急速なストレス応答を研究するための堅牢な枠組みを提供します。
概要
植物は、迅速な化学信号を放出することで損傷に反応しますが、その信号を正確に捉えることは技術的に困難なままです。植食、風害、または機械的な刺激を受けた後数秒以内に、植物は揮発性有機化合物(VOCs)の一時的なバーストを放出し、これにより内部防御を活性化させ、近隣の植物にプライミングを促します1,2,3,4。これらの傷誘発VOCs(wVOCs)には、グリーンリーフ揮発性物質(GLVs)、メタノール、短鎖アルコールおよびアルデヒド、テルペノイド、そしてオキシリピン誘導体が含まれます。これらは、葉肉細胞での新規合成、あるいは樹脂道やトライコームなどの貯蔵構造の破裂によって発生します。即時的なストレス信号として、wVOCsは生理的な防御を調整し、植物間コミュニケーションを媒介し、大気化学と相互作用します1,5,6,7。
自然な植食行動は、物理的損傷に唾液や微生物由来のエリシターが組み合わさるため、実験的研究では、物理的損傷のみに対する反応を分離して調べるために擬似的な傷害処理が用いられます8。しかし、wVOCsは一過性の性質を持つため、本質的に捕捉が困難です。スタティックヘッドスペースサンプリングとガスクロマトグラフィー質量分析(GC-MS)を組み合わせた従来の手法では、初期の放出バーストを見逃し、そのキネティックプロファイルを歪めてしまうことがよくあります9,10。平衡到達までの遅延、インキュベーション温度の上昇、およびサンプリングラインの延長により、滞在時間が増加し、記録される信号が歪みます。これは、特にセスキテルペンなどの反応性化合物において顕著です9,11,12。これらのアーティファクトが相まって、信号強度が低下し、傷害誘導性揮発性物質放出の時間的ダイナミクスが不明確になるため、植物のストレス応答の解釈を困難にしています。
また、多くの研究では、チャンバー外で葉に傷をつけるために測定を中断させています。このような中断は、ガス流を不安定にし、創傷を与えるタイミングを変化させ、切開精度の制御性を低下させます。13,14,15その結果、受傷後の最初の数分間は、記憶が消失しているか、あるいは歪んでいることが多い。13、放出率がピークに達し、特徴的な速度論的パターンが現れる正確なタイミング3,6,16,17いくつかの手法では、テフロン製ブレードやメカニカルパンチを用いて、大容量チャンバー内で葉の切除が行われました。12,18,19しかし、これらのセットアップでは、カッターのずれや葉の硬さの違いにより、封止の不安定さ、切断長の不一致、および切開の不均一性がしばしば生じました。さらに、チャンバー容積が大きいことで空気の入れ替えが遅れ、揮発性シグナルが広範囲に分散しました。16これらの実験的な制限が相まって、安定した生理学的条件下における創傷誘導性放出の時間的ダイナミクスを正確に特性解析することを妨げています。
これらの課題を克服するため、本研究では、プロトン移動反応時間飛行型質量分析計(PTR-TOF-MS)に接続されたガス交換システムに外科用カッターを組み込んだ、チャンバー内でのリアルタイム wounding(傷害)プロトコルを提示します。このプロトコルにより、制御された環境条件下での同調的な葉の wounding と揮発性物質の検出が可能となり、同時に揮発性物質のフラックスとガス交換を高時間分解能で測定できます。測定チャンバー内で葉の切除を行うことで、従来の手法に伴うサンプリングの遅延を最小限に抑え、急速に放出される wounding 誘発性揮発性物質の時間的ダイナミクスを維持し、機械的特性が異なる葉における標準化された切断手順を示します。この時間分解能により、wounding 誘発性揮発性物質放出の開始、ピーク時間、および種特異的なキネティクスを直接的に特性評価することが可能になります。
このプロトコルの適用性を多様な葉のタイプで実証するため、解剖学的および生理学的特性が異なる3つの種(Quercus rubra、Acer platanoides、およびGossypium hirsutum)を用いて評価を行いました。すべての種に同一の測定条件を適用することで、実験的な変動を最小限に抑えつつ、幅広い放出パターンにわたって傷誘起VOCのダイナミクスを分解できることが示されました。本手法は、制御された環境条件下で傷誘起VOCの高時間分解能測定を必要とする研究に広く適用可能です。これらの特徴により、植物の迅速なストレス応答を調査するための標準化された枠組みが提供され、異なる種や実験系へのプロトコルの適用が容易になります。
プロトコル
すべての植物は、成長室内の制御環境下で育成されました。使用した試薬および装置は、材料表に記載されています。
1. チャンバー内リーフカッターの製作と設置
- 標準的な測定ヘッドの内寸(4 cm × 2 cm)に適合するように設計した回転式葉切断機を作製する。
- 機械的安定性を確保するため、銀ろう付けを用いてカミソリ刃をステンレス製ロッド(直径 1 mm)に取り付ける。
注意:カミソリ刃は非常に鋭利である。取り扱い時は耐切創手袋を着用すること。使用後は、鋭利な物品に関する施設の研究室安全手順に従ってカミソリ刃を廃棄すること。銀ろう付けは適切な換気下で行い、保護メガネを着用すること。 - ブレード保持ロッドをステンレス製注射針(外径 1.6 mm)に挿入し、軸方向への自由な回転を可能にする。
- 回転機能を維持しつつ気密状態を保持するため、低放出ポリテトラフルオロエチレン(PTFE)ストッパーを使用して針の両端を封止する。
- 内部カッターを制御して回転させられるよう、ロッドの近位端に手動回転ノブを取り付ける。
- カッターを下部チャンバー半分に固定するため、真鍮製スプリング板(厚さ 0.2 mm)で作製した2つの柔軟な支持体を針の外表面に取り付ける。
- 葉の表面に接触することなくブレードを挿入できるよう、下部チャンバーのガスケットに三角形の切り込みを入れる。
- ガス漏れを防ぐため、低放出のシーリングパテを使用して挿入点を封止する。
注:次に進む前に、カッターの設置によってチャンバーの密閉性が損なわれていないことを確認すること。チャンバーが完全に閉じること、熱電対が葉の表面に接触したままであること、およびガス交換システムが漏れなく安定した気流を示していることを確認する。チャンバーの状態が安定したことが確認された後にのみ進めること。約 10 mm の切り込みを入れることができるブレード長を選択する。統合された切断機構および葉チャンバー内での配置は、図 1B に示す。
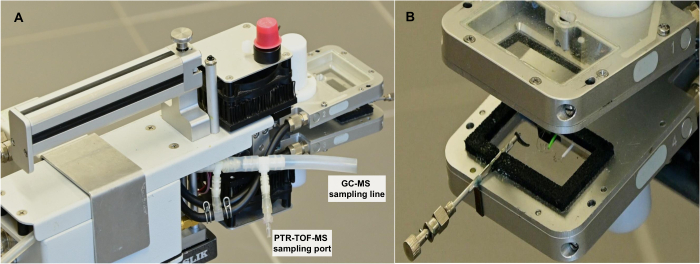
図 1: チャンバー内葉切断装置および揮発性物質サンプリングラインを統合した改良型ガス交換システム。 (A) 改良型ガス交換システムの概要。揮発性物質回収のため、チャンバー出口付近に配置されたPTR-TOF-MSサンプリングポートとGC–MSサンプリングラインを示す。 (B) 開放したチャンバーの拡大図。統合された切断機構と、 wounding(損傷)時に葉が配置される領域を示す。カッターはチャンバーに密閉して組み込まれており、測定中にエンクロージャーを開けることなく葉に損傷を与えることができる。この構成により、制御された環境条件下での揮発性物質放出とガス交換のリアルタイムモニタリングが可能となる。 こちらのリンクをクリックして、この図の拡大版を表示してください。
2. 揮発性サンプリング経路の構成
- チャンバー出口にテフロン製T字管(内径 1/16″または1/8″)を設置し(図 1A)、チャンバーと揮発性分析計の間のチューブ長を最小限に抑えます。
- 不活性チューブ(例:FEPまたはPTFE、内径 1.6 mm)を使用して、出口をVOC採取システムに接続します。チャンバーと揮発性分析計の間のチューブを可能な限り短くし、内部容積、滞留時間、および吸着損失を最小限に抑えるため、T字管をチャンバー出口の直後に設置します。
- チャンバーの空気流量を 750 µmol s-1 に維持します。
注:不活性チューブを短くすることで、反応性化合物の吸着と滞留時間を短縮できます。
3. 植物材料の調製
- Quercus rubra、Acer platanoides、およびGossypium hirsutumを、環境制御チャンバー内(昼間 25 °C / 夜間 20 °C、相対湿度 60%、光強度 1000 µmol m-2 s-1、光周期 16 h/ 8 h)で4ヶ月間栽培する。
- 実験期間を通じて、植物を周囲の大気CO2濃度(~430 ppm)で維持する。
- 土壌が圃場容水量に達するまで、2日ごとにすべての植物に潅水する。
- 発達段階が同等である、完全に展開し、老化していない葉を実験用に選出する。
4. 葉の傷つけおよびVOC回収実験
- 葉を密閉し、環境条件を設定する
- 内部カッターを備えたキュベットに、十分に展開した付着葉を封入します。
- ブロック温度を〜に設定する 25 °C、相対湿度を60%に、光化学有効光強度を 1000 µmol m-2 s-1 (赤 90%、青 10%)、および~への気流を 750 µmol s-1.
- 選択した環境条件下で、純CO2吸収量(net CO2)が定常状態の値に達するまで葉を順化させます。2 葉を密閉した後、通常20〜30分以内に、同化速度、気孔コンダクタンス、およびベースラインのVOCシグナルが定常状態に達します。
- ガス交換、蛍光、およびVOCのモニタリングを実施する
- 1 Hzの分解能で、ガス交換とVOC(揮発性有機化合物)の同時測定を開始します。
- ガス交換測定の完了後、定常状態の蛍光収率(Fs)後、飽和パルスを印加する(8000 µmol m-2 s-1, 0.6秒) ~経由で 最大蛍光収量を測定するためのチャンバー型蛍光光度計 (3055-FL) (Fm明光順応葉における(′)。
- アクチニックライトを消し、葉を20分間暗適応させる。
- 葉の暗呼吸を記録する。
- 初期蛍光を測定します(F₀)弱変調測定光を用いて(0.03 µmol m-2 s-1)、続いて飽和パルスを照射し、暗順応させた葉における最大蛍光値を得る(Fm).
- アクチニックライトを再び点灯させる。
- 損傷前のベースラインが安定するまで、同一の環境条件下でVOCおよびガス交換の測定を継続する。
注: wounding(傷害処理)を行う前に、選択した環境条件が安定していること、および純CO₂同化量、蒸散量、およびベースラインのVOC信号が定常状態に達していることを確認してください。選択した測定設定の下でこれらの条件が維持された後のみ、次へ進んでください。
- 葉の損傷およびVOCの採取
- 最初のVOCカートリッジを出口ラインに挿入し、ポータブル定流量空気サンプリングポンプに接続します。200 mL min⁻¹の一定流量で、カートリッジにチャンバー内の空気を吸引させます。-1C3–C17の揮発性物質の捕捉に適した、マルチベッドステンレス製吸着カートリッジ(長さ10.5 cm、内径3 mm)を使用する。カートリッジには、Carbotrap C 20/40メッシュ(0.2 g)、Carbopack B 40/60メッシュ(0.1 g)、およびCarbotrap X 20/40メッシュ(0.1 g)を、サンプリング方向に向かって吸着強度が弱い順に充填して使用する。
注:サンプリング前に、高純度ヘリウムを200 mL/minでカートリッジに通してコンディショニングを行ってください。-1 3時間、~で 250 °Cカートリッジサンプリングにより、実験目的で必要な場合には、その後のオフラインGC-MS分析による化合物の同定が可能になります。本稿で述べるワークフローの一部としてカートリッジ採取が含まれていますが、本研究で提示する代表的な結果は、連続的なPTR-TOF-MS測定から得られたものです。吸着剤の選択は、標的VOCの揮発性範囲と極性に加え、サンプリング条件に合わせて行ってください。 - 200 mL min⁻¹の流量で、傷付け前のVOCを15分間採取する。-1.
- カートリッジを交換し、2分間VOCを回収する。
- 内部カッターを回転させる 360° チャンバーを開けることなく葉を切り出し、ブレードを初期位置に戻します。
注:チャンバーの密閉性を完全に維持しながら、葉の切開部位が密閉された葉身内にあるように葉を配置してください。葉のサイズや形態で可能な限り、主脈を切断することを避け、サンプル間での切開位置を可能な限り一定にしてください。主脈の損傷は、傷による揮発性物質の放出を大幅に増加させる可能性があるため、傷をつける位置を一定にすることで実験の再現性が向上します。5.
注意:切断前に、チャンバーが完全に密閉されていることを確認してください。 - 同じカートリッジを用いて、さらに13分間VOCの回収を継続する。
- 3本目のカートリッジを挿入し、15分間VOCを捕集する。
- リアルタイム検出のため、全期間を通じてPTR-TOF-MSを連続的に動作させる。
注:各植物の測定前後に、同一の環境条件下でチャンバー内が空の状態のバックグラウンド試料を採取してください。データ解析時、これらのバックグラウンド測定値をVOC放出データのベースライン補正に使用します。
- 最初のVOCカートリッジを出口ラインに挿入し、ポータブル定流量空気サンプリングポンプに接続します。200 mL min⁻¹の一定流量で、カートリッジにチャンバー内の空気を吸引させます。-1C3–C17の揮発性物質の捕捉に適した、マルチベッドステンレス製吸着カートリッジ(長さ10.5 cm、内径3 mm)を使用する。カートリッジには、Carbotrap C 20/40メッシュ(0.2 g)、Carbopack B 40/60メッシュ(0.1 g)、およびCarbotrap X 20/40メッシュ(0.1 g)を、サンプリング方向に向かって吸着強度が弱い順に充填して使用する。
5. 揮発性物質の検出および装置の操作
- PTR-TOF-MSの導入部およびドリフトチューブの温度を以下に設定する 80 °C、入口流量100 mL/min-1、水蒸気流量 4.0 mL min⁻¹-1、イオン電流 4.0 mA、ドリフトチャンバー圧力 2.1 mbar、ドリフトチューブ電場強度比 115 Td、および TOF-MS モジュール圧力 1.2 × 10⁻⁷ mbar
- サンプリング間隔400 ps、時間分解能1 Hzで揮発性シグナルを記録する。
- 主要な植物揮発性物質クラスを代表するVOCを含む認定ガス標準混合物を用いて、実験ごとにPTR-TOF-MSの校正を行う。記載された手順に従い、PTR-MS Viewerソフトウェアを用いて校正データを処理し、VOC濃度を算出する。13,16.
6. カートリッジサンプルの オフラインGC-MS分析
注: 以下の手順では、上記のワークフロー中に回収したカートリッジサンプルのオフライン分析について説明します。GC-MS分析により補完的な化合物同定が行われますが、本研究で提示している代表的な結果は、連続的なPTR-TOF-MS測定に基づいています。
- Kännasteら20によって記述された手順に従い、GC-MSシステムに接続された自動熱脱着装置を用いてカートリッジから熱脱着を行う。
- 標準物質およびNIST質量スペクトルライブラリとの比較により化合物を同定する。電子衝撃イオン化(70 eV)を用いて質量分析検出を行い、利用可能な場合は保持時間と質量スペクトルの両方を標準物質と照合して化合物の同一性を確認する。
注:カートリッジサンプリングは、C3–C17揮発性物質の捕捉に関するKännasteら20の改変プロトコルに従う。
7. データ解析
- 分析前に、すべての放出トレースから空チャンバーのバックグラウンドを差し引く。モニタリングした各質量の切創前ベースラインを、切断直前の一定時間における平均信号として定義する。
- 切断時間を、モニタリングしたすべての質量の共通参照点として使用する。放出開始(emission onset)は、葉の切断後にベースライン補正済みのVOC信号で検知された最初の増加として決定する。
注:放出開始は、切創前ベースラインを超える連続した最初の増加であり、放出バーストの上昇相まで持続するものと定義し、これにより機器ノイズに起因する単発的な変動は除外した。 - ピーク到達時間を、切断時間から最大放出信号までの間隔として算出する。放出バーストの最大傾斜を、隣接するデータ点間の前方および後方傾斜の平均を用いて、ベースライン補正済み信号の一次微分から算出する13。ピーク強度を、バースト中に観察された最大放出値として定義する。
結果
揮発性物質のサンプリング位置がシグナル検出に影響を与えるか evaluating するため、葉チャンバーへの制御ガス注入を用いて2つの構成を比較しました。一方のセットアップでは、改良されたガス交換チャンバーのチャンバー出口で直接揮発性物質をサンプリングしました(図 1)。対照的に、もう一方は、空気が検出器に到達する前にガス交換分析計のチューブを通過する構成としました。両方のシグナルを同時に記録することで、その時間的ダイナミクスの直接的な比較が可能になりました。
純粋な揮発性化合物を注入すると、明確な放出ピークを伴う迅速な検出器応答が認められた(図2)。チャンバー出口で直接サンプリングした場合、信号は注入直後に上昇し、鋭い極大値に達した後、急速に減衰した。一方、分析器チューブの後端でサンプリングした場合、同一の化合物において応答の遅延および減衰が認められた。
イソプレン(m/z 69)については、サンプリング位置間の時間的遅延は最小限であり、ピーク強度は同程度に維持されました(図 2A)。Z-3-ヘキセン-1-オール(m/z 83)については、チューブを通過することで、直接サンプリングと比較してピーク高さが減少し、減衰曲線が広くなりました(図 2B)。この影響はα-ピネン(m/z 137)で最も顕著であり、チャンバー出口で直接測定した信号と比較して、チューブ通過によりピークが強く減衰しました(図 2C)。
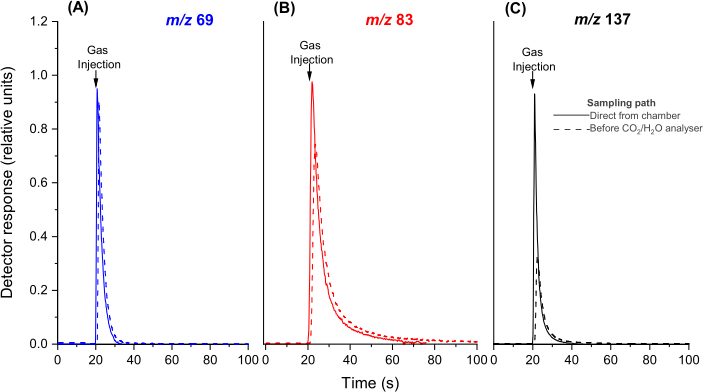
図 2: 揮発性物質検出の時間的応答に対するサンプリング位置の影響。純粋な(A)イソプレン (m/z 69)、(B)Z-3-ヘキセン-1-オール(主にフラグメントイオン m/z 83として検出)、および(C)α-ピネン (m/z 137)の注入に対する応答を、2つのサンプリング位置で記録した。実線はチャンバー出口直後のサンプリングを、破線はガス交換システムチューブ通過後、CO₂/H₂O分析器前の標準サンプリング位置を表す。矢印はガスの注入を示す。応答は、チャンバー近傍でのPTR-QMSサンプリングにより検出された最大信号で正規化した。応答形状の違いを可視化するため、標準サンプリングの時間経過を直接サンプリングに対して0.9 sシフトさせた。この図はRasulovら.16より改変したものである。こちらをクリックして、この図の拡大版を表示してください。
葉の切断により、すべての種(Quercus rubra、Acer platanoides、およびGossypium hirsutum)において、化合物特異的な揮発性物質の急速な放出が誘発され、システムはこれらの放出を数秒以内に検出しました。チャンバー内セットアップにより、放出の開始時期とピーク時間を直接的に解明できたため、測定を中断することなく、化合物ごとの速度論的な定量化が可能となりました。
すべての種において、創傷誘起性の支配的なPTR-TOF-MS信号がm/z 99で検出され、これは先行するPTR-TOF-MS研究に基づき、LOX由来のヘキセナール型化合物であると暫定的に割り当てられた(図 3、 図 4、および 図 5)。ピーク放出量は3種の間で24–300 nmol m-2 s-1の範囲にあり、本プロトコルが広範な放出強度の創傷誘起性VOCダイナミクスを分解できる能力を有していることが示された(図 3、 図 4、および 図 5)。いずれの場合においても、m/z 99は切断後数秒以内に増加し、約39–57 s以内にピークに達し、モニタリングした質量の中で最も急激な上昇を示した(表 1)。これにより、m/z 99が創傷バーストの支配的な急性成分であることが特定された。
A. platanoides (図 4B) および G. hirsutum (図 5B) では、切断前の質量 69 の放出量は無視できる程度であり、傷害後もわずかな増加にとどまった。対照的に、Q. rubra では切断前から相当量の基線放出が認められ、その後、一時的な緩やかな増加を経て安定した。これは、傷害応答に構成的なイソプレンの放出が重畳していることと一致している (図 3B)。
モニタリングした他の質量においても、切断後に明確な時間的経過が認められた。種を問わず、m/z 43、57、69、および99はバーストの初期段階を定義した一方、m/z 45および83はより遅くピークに達した(Figure 3、Figure 4、およびFigure 5;Table 1)。このパターンはA. platanoidesで最も顕著であり、m/z 45は切断直後に上昇し始めたが、ピークに達したのは約155 s後であった。これは、初期のLOX関連フラグメントよりも応答が緩やかで持続的であることを示している(Figure 4A; Table 1)。同様に、m/z 83はすべての種において初期フラグメントよりも遅くピークに達し、特にG. hirsutumでは遅延が顕著で、約223 s後に最大値に達した(Figure 5A; Table 1)。
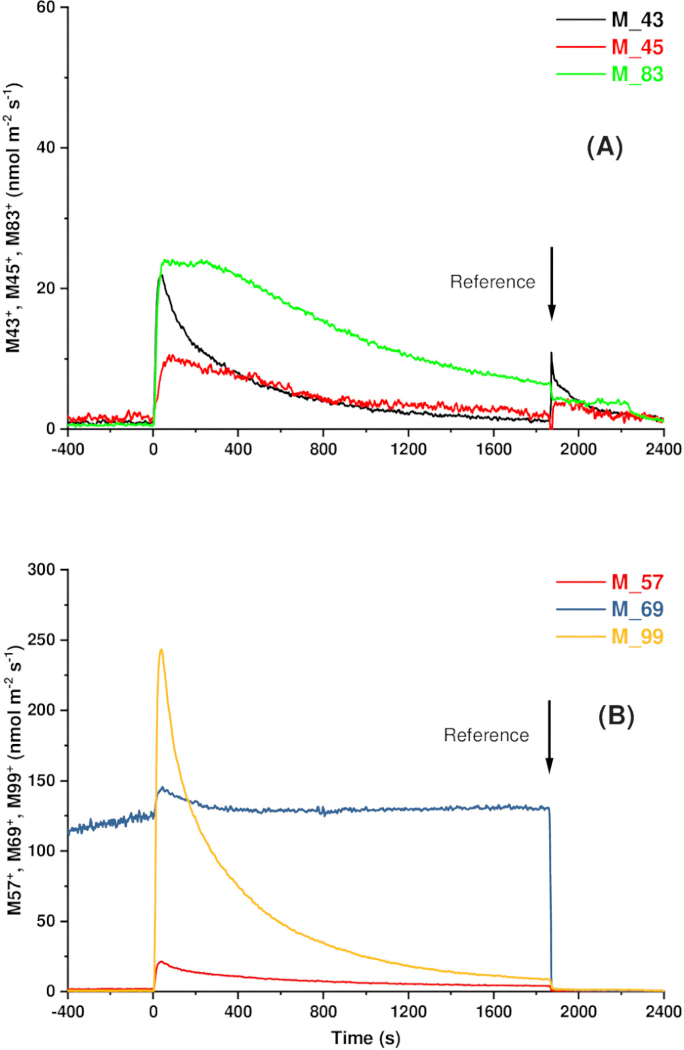
図3代表的な葉における傷誘起揮発性物質放出の時間分解測定 *Quercus rubra*. (Am/z 43、45、および83。B) m/z 57、69、および99。t = 0において、図に示されるチャンバー内リーフカッターを用いて葉を切断した。 図110 mmの切開を加えた。揮発性物質の放出はプロトン移動反応時間飛行型質量分析計(PTR-TOF-MS)で連続的にモニタリングし、ガス交換速度はWalz GFS-3000システムを用いて測定した。シグナルは、本プロトコルで達成可能な時間分解能を示す、代表的なベースライン補正後の放出プロファイルとして示している。参照 表 1 これらの放出プロファイルから抽出された代表的な速度論的記述子について。 こちらの図の拡大版を表示するには、ここをクリックしてください。
これらの共通した特徴があるにもかかわらず、代表的な測定結果は、放出軌跡が種によって異なる可能性があることを示しています。Q. rubraでは、m/z 43および57が急速に上昇しましたが、減衰相で乖離し、m/z 57の方がm/z 43よりも緩やかに減少しました(Figure 3A,B)。A. platanoidesではこのパターンが逆転し、m/z 43の方が後半の減少が緩やかでした(Figure 4A)。G. hirsutumでは、すべての信号の強度が低く、放出プロファイルは急速な初期ピークとより緩やかな減衰が組み合わさっていました。特にm/z 45は、減衰相においてわずかな二次的上昇を示しました(Figure 5A)。
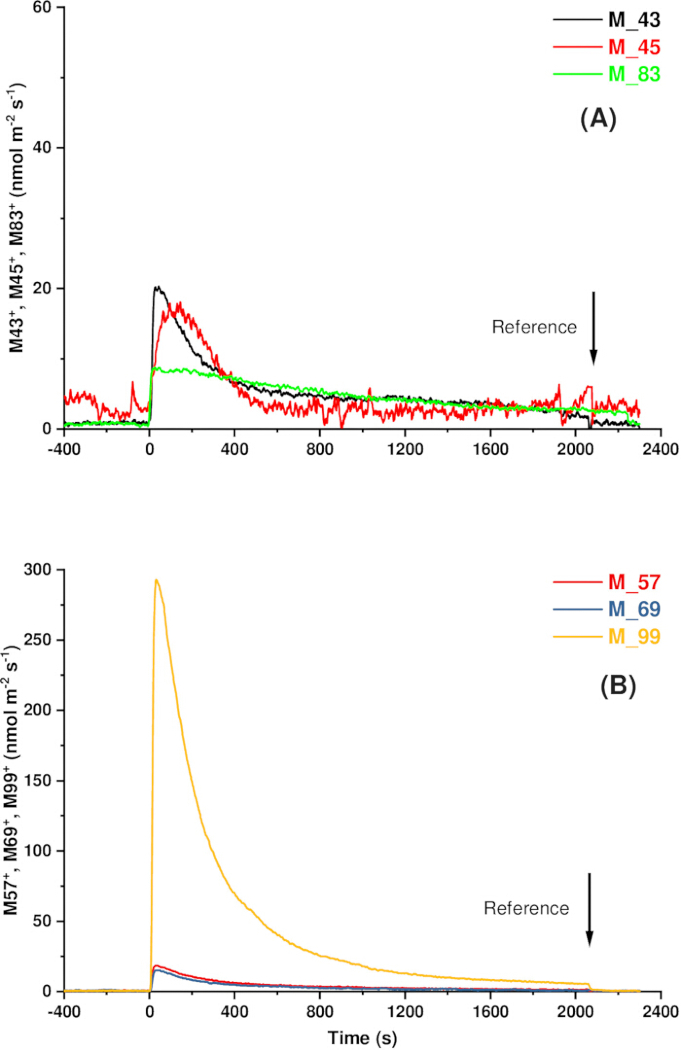
図 4: Acer platanoidesの代表的な葉における、 wounding 誘起性揮発性物質放出の時間分解能測定。 (A) m/z 43, 45, および 83。 (B) m/z 57, 69, および 99。t = 0 において、チャンバー内カッターを用いて葉を切断した (図 1; 10 mm の切開)。揮発性物質の放出は、プロトン転移反応時間飛行型質量分析計 (PTR-TOF-MS) で連続的に測定し、ガス交換は Walz GFS-3000 システムで測定した。シグナルは、本プロトコルで達成可能な時間分解能を示す代表的なベースライン補正済み放出プロファイルとして示されている。これらの放出プロファイルから抽出した代表的な速度論的記述子については、表 1 を参照。 この図の拡大版を表示するには、ここをクリックしてください。
これらのパターンを総合すると、傷による放出は単一の同期的なバーストではなく、急峻な初期成分に続いて緩やかで遅延した反応が起こるという、化合物特異的なカスケードに従っていることが示唆されます。
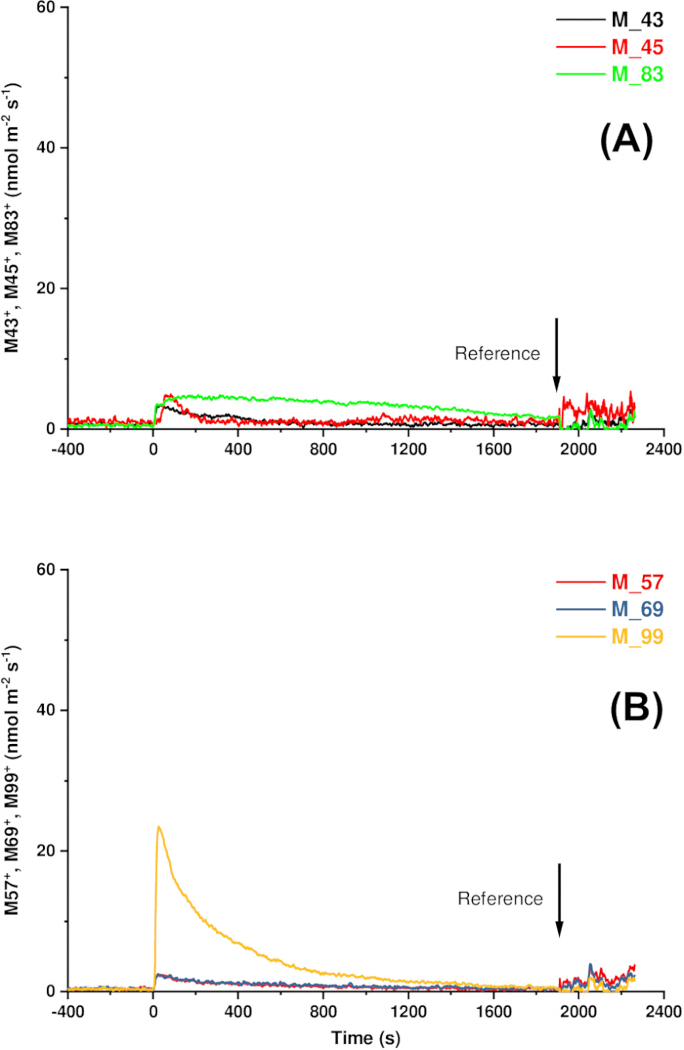
図 5: Gossypium hirsutumの代表的な葉における、傷誘発性の時間分解揮発性物質放出。 (A) m/z 43, 45, および 83. (B) m/z 57, 69, および 99. 葉はt = 0において、チャンバー内カッター(図 1; 10 mmの切開)を用いて切断された。揮発性物質の放出は、プロトン移動反応飛行時間型質量分析計(PTR-TOF-MS)を用いて連続的に測定され、ガス交換はWalz GFS-3000システムを用いて測定された。シグナルは、本プロトコルで達成可能な時間分解能を示す、代表的なベースライン補正後の放出プロファイルとして示されている。これらの放出プロファイルから抽出された代表的な速度論的記述子については、表 1を参照のこと。この図の拡大版を表示するには、ここをクリックしてください。
ディスカッション
本プロトコルでは、制御された実験条件下で、傷による揮発性物質放出の高時間分解能分析が可能になります。切断イベントを葉チャンバー内で直接行い、揮発性シグナルを連続的にモニタリングすることで(図1)、サンプリングの遅延、チャンバーの開放、または測定装置外での葉の操作によって導入される歪みのない放出応答を捉えることができます。これらの乱れは、密閉容器ベースの測定において、放出ピークの見かけ上のタイミングと大きさの両方を変化させる可能性があります3,6,13,17。傷付けと測定を同一の密閉容器内で行うことにより、本プロトコルは放出のタイムラインを維持し、ストレス誘起性の揮発性応答の信頼性の高い時間分解定量化を可能にします。
| 種 | プロトン化分子量 | ピーク強度 (nmol m-2 s-1) | 切断後の開始時間 (s) | ピーク到達時間 (s) | 最大傾斜 (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
表1:葉の wounding 後に連続 PTR-TOF-MS 測定から抽出された、ピーク強度、放出開始、ピーク到達時間、および最大勾配の代表値。数値には、ピーク強度、放出開始、ピーク到達時間、および最大勾配が含まれる。これらの値は、本プロトコルによって生成されるキネティクス記述子の種類を示すものであり、種間の統計的比較ではなく、概念実証の例として提供されている。放出開始は、切断後に事前 baseline を超えて検知された最初の増加として定義し、ピーク到達時間は切断から最大信号までの間隔、最大勾配は baseline 補正済み信号の最大一次導関数として定義した。
サンプリング位置を比較したところ、サンプリング構成が記録された信号に顕著な影響を与えることが示されました(図 2)。チャンバー出口での直接サンプリングでは迅速なピーク形成が維持されましたが、分析チューブ後のサンプリングではピーク形成が遅延し、信号強度も減衰しました。この影響はイソプレン(m/z 69)では無視できる程度であり、m/z 83 では中程度、α-pinene(m/z 137)で最も強く、これは分子量の大きい化合物や反応性の高い化合物ほど輸送に関連した歪みが増大するという知見と一致しています10,21。チューブ表面への吸着、サンプリングラインでの輸送遅延、および輸送中の化学的相互作用により、放出ピークの広がりや減衰が生じ、その結果、揮発性物質の速度論的な解釈が変化する可能性があります9,12,21。
本プロトコルの主な利点は、傷による揮発性物質放出の極めて初期の段階を解明できることです。すべての種において、この初期段階は切断後数秒以内に現れ、m/z 99におけるバーストが支配的であり、これは最高のピーク強度と最大傾斜の両方を示しました(図3、 図4、および 図5; 表1)。ピークの最大値は切断後約 40–57 s 以内に現れ、これは先行研究で一般的に報告されている 100–280 s よりも大幅に早い結果となりました13,19,22。この時間的なずれは、チャンバー内で wounding(切断)と検出が同期し、葉の取り扱いやサンプリングラインの輸送による遅延が最小限に抑えられたことを反映していると考えられます。
同一のエンクロージャー内で傷付けと検出を同期させることで、本プロトコルにより、切断直後にm/z 43および57が上昇し、一方でm/z 45はより遅くピークに達し、より緩やかな減衰動態を示すというフラグメントレベルのカスケードが解明されました(図 3、 図 4、および 図 5; 表 1))。GC-MSと比較して化合物レベルの分離が欠如しているものの、この順序は、初期放出がリポキシゲナーゼ由来のC6アルデヒドに支配され、その後に下流のアルコールおよび関連生成物が続くという、従来のPTRベースの研究結果と一致しています19,22。過去のPTR-TOF-MS研究と同様に、支配的なm/z 99信号はヘキセナール型化合物と一致し、そのm/z 81における脱水フラグメントが主要な初期信号として同定される一方、m/z 83はヘキセノールおよびヘキサナールからの寄与を反映しています22。このシーケンスは、小型で迅速に形成される含酸素化合物が、より大型または複雑な分子よりも早く放出されるという、サイズおよび経路依存的な階層性をさらに支持するものです13,23。
リポキシゲナーゼ由来の断片以外に、暫定的にイソプレンと同定されたm/z 69のシグナルは、代表的な例の間で異なる放出軌跡を示した(図3, 図4、および 図5). *Q. rubra* 実質的なベースライン排出量が認められたが、一方で *A. platanoides* および *G. hirsutum* 既知の放出特性と一致する、ごくわずかな量のみが生成された24,25種を越えて、イソプレンは傷害に対してわずかにしか反応せず、これは~と一致している。 デノボ(新規) 合成 〜経由で MEP経路は光合成代謝に依存しているため、機械的損傷による影響は間接的なものにとどまる15.
これらの急速な動態は、機械的損傷に対する葉の十分に立証された生化学的反応を反映しています。機械的な損傷はリポキシゲナーゼ経路を迅速に活性化し、これにより膜脂質の酸化からC6揮発性物質および関連する酸素含有化合物の一過性のパルスが生成されます5,7,17,22,23。これらの放出は強い非対称的な動態を示し、組織の破壊後に急速に上昇し、その後緩やかな減衰相へと移行します16。本システムにおけるこの非対称なパターンは、Table 1にまとめられた代表的な速度論的記述子によって示されるように、数秒から数分のタイムスケールで展開しますが、チャンバー外で葉を傷つける研究では、ピークが遅延することが報告されています13。このより早い時間分解能により、信号を発生時から捉え、時間的なぼやけを低減し、上昇相と減衰相の両方を直接定量することが可能になります。これらの速度論的特徴が組み合わさることで、完全な放出軌跡が定義されますが、離散的または遅延サンプリングの手法では、これを過小評価することがよくあります5,15。
チャンバー内での切断操作を標準化することで、傷の形状と程度の一貫性が確保され、実験の再現性がさらに向上します。これらはいずれも切開長によって決定され、VOC放出量に直接影響を与えるためです5,18,22。しかしながら、切断ブレードはチャンバー内の固定位置にあるため、切開位置は葉のサイズや形態、および気密シールを維持する必要性に影響されます。可能な限り、切開は中脈やその他の主脈を避け、脈間の葉身内に行う必要があります。ただし、特に幅が狭い葉や小さい葉の場合、主脈を完全に避けることが常に保証できるわけではありません。主脈への損傷は、傷によって誘発されるVOC放出量を大幅に変化させる可能性があるため5、切開位置は同一実験内のサンプル間で可能な限り一定に保つ必要があります。
再現性のある傷誘発VOC測定値を得るためには、安定した環境条件を維持することも同様に重要です。VOCの生成、放出、および輸送は環境条件に影響されるため、すべての測定を通じて、チャンバー内の温度、湿度、照度、CO2濃度、および気流を一定に維持しました。これらの変数を標準化することで、実験的なばらつきをさらに最小限に抑え、傷誘発VOCキネティクスの再現性を向上させることができます。加えて、本プロトコルは同時ガス交換測定と完全に互換性があるため、今後の応用として、同一の実験条件下でVOC放出ダイナミクスを光合成や蒸散の変化に直接関連付けることが可能です26。このような測定は、VOC生成の生化学的調節と、傷ついた組織からの水溶性含酸素化合物の蒸散促進を含む、揮発性物質の放出に影響を与える物理的プロセスとを区別するのに役立つと考えられます16。したがって、処理間または種間の差異は、環境条件、傷の形状、および葉の発育段階を含む植物材料が実験全体を通じて標準化されている場合にのみ解釈されるべきです12。
従来のチャンバー内アプローチにより、リアルタイムでの傷誘発VOC測定の実現可能性は示されているが、同時に重要な技術的限界も明らかになった。不規則な切断、不均一な傷のサイズ、およびチャンバー密閉の乱れが、測定値間にばらつきをもたらしていた18,19。さらに、これらのアプローチでは比較的大きなチャンバー容量に依存することが多く、その結果、空気の入れ替わりが遅くなり、ピーク形成が遅延し、揮発性成分のシグナルプロファイルが広がる傾向にあった22,27。このような影響は、揮発性の低い化合物ほど顕著になり、温度によって変動する可能性がある21。対照的に、本プロトコルで使用する小型のチャンバー(内部容量 〜8 mL)は、空気の滞留時間を短縮し、我々の測定で観察されたより急峻な立ち上がりに寄与している(図1)。
本プロトコルは、森林生態系の直接的なin situモニタリングではなく、制御された生理学的実験のために開発されました。測定は、明確に定義された環境条件下で、植物に付着した葉に対して行われるため、実験的なばらつきが最小限に抑えられ、傷によって誘導されるVOCキネティクスの精密な特性評価が可能になります。フィールドへの適用は、ポータブルなガス交換およびVOC検出システムの利用可能性に依存します。それにもかかわらず、統合された切断機構は軽微な変更のみで異なるチャンバー構成に適応させることができるため、これらの技術が利用可能になれば、ポータブルガス交換プラットフォームやその他の実験プラットフォームへ容易に転用できるはずです。この柔軟性により、VOC放出ダイナミクスの正確な特性評価に必要な時間分解能を維持しつつ、植物の急速なストレス応答を調査する機会が広がり、葉の損傷に対する極めて初期の生理学的および生化学的応答のメカニズム研究が促進されます。
開示事項
著者らは利益相反がないことを宣言します。
謝辞
本研究は、エストニア研究評議会(PRG2207)およびエストニア教育研究省(Center of Excellence Agro-CropFuture、「Agroecology and new crops in future climates」、TK200U1)からの助成を受けて実施されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| TD-20熱脱離装置付きGC-MSシステム | Shimadzu | GCMS-QP2010 Plus; TD-20 | TD-20熱脱離装置付きGC-MSシステム。www.shimadzu.com |
| GFS-3000 ガス交換システム | Walz GmbH | GFS-3000 | 葉のガス交換測定用。www.walz.com |
| 高純度ヘリウム (99.999%) | Local supplier | N/A | 吸着カートリッジのコンディショニングおよびGC-MS熱脱離に使用。www.airliquide.com(または同等のサプライヤー)。 |
| イソプレン校正標準物質 | Sigma-Aldrich Chemie GmbH | Custom | カスタムイソプレン校正標準物質 (3.43 ppm)。www.sigmaaldrich.com |
| 低放出封止パテ | Local supplier | N/A | チャンバー内のカッター挿入箇所の封止に使用。 |
| マルチベッドステンレス製吸着カートリッジ | Supelco | Custom | 長さ 10.5 cm × 内径 3 mm。Carbotrap C (0.2 g, 20–40 mesh)、Carbopack B (0.1 g, 40–60 mesh)、および Carbotrap X (0.1 g, 20–40 mesh) を充填。VOCのオプションのオフラインGC-MS同定に使用。www.sigmaaldrich.com |
| ポータブル定流量空気サンプリングポンプ | SKC Inc. | 210-1003MTX | ポータブル定流量空気サンプリングポンプ。 |
| PTR-TOF 8000 質量分析計 | Ionicon Analytik GmbH | PTR-TOF 8000 | VOC検出用。www.ionicon.com |
| 銀ハンダ線 | Local supplier | N/A | カミソリ刃をステンレス棒に固定するために使用。 |
| バネ用真鍮板 (厚さ 0.2 mm) | Local supplier | N/A | カッターを固定するためのフレキシブルサポートとして使用。 |
| ステンレス棒 (直径 1 mm) | Local supplier | N/A | カッター支持棒。 |
| ステンレス製注射針 (外径 1.6 mm) | Local supplier | N/A | 回転カッター刃のハウジング。 |
| テフロンストッパー | Local supplier | N/A | 回転を可能にしつつカッターハウジングを封止するために使用。 |
| テフロン製T字型コネクタ | Local supplier | N/A | チューブ長を短縮するため、チャンバー出口付近に設置。 |
| テフロンチューブ (FEPまたはPTFE) | Local supplier | N/A | チャンバーと検出器間のVOCサンプリングライン。 |
| VOC校正ガス混合物 | Ionimed GmbH | Custom | N2中に各化合物 1 ppm。PTR-TOF-MSの校正に使用。www.ionimed.com |
参考文献
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
再版と許可
この記事は公開されました
動画は近日公開